1. Charakterystyka
1.1. Definicja i zakres pojęcia
Pamięć robocza (ang. working memory) to system czasowego przechowywania informacji połączonego z jej jednoczesnym przetwarzaniem, należący do podstawowych funkcji poznawczych człowieka [1]. Pozwala utrzymać w umyśle kilka elementów, przekształcać je i używać ich do bieżącego zadania, gdy bodźca już nie ma [2]. W klasyfikacji pamięci mieści się po stronie systemów krótkotrwałych, przeciwstawianych pamięci długotrwałej. W najbardziej znanym ujęciu, modelu wieloskładnikowym, jest zespołem współpracujących podsystemów, a nie jednym magazynem [3].
Pamięć robocza bywa utożsamiana z pamięcią krótkotrwałą, ale oba pojęcia opisują co innego. Pamięć krótkotrwała oznacza samo utrzymanie materiału przez krótki czas, bez jego przekształcania. Kryterium różnicującym jest jednoczesne przetwarzanie: w metaanalizie 77 badań zadania łączące przetwarzanie z przechowywaniem lepiej przewidywały rozumienie tekstu niż proste powtarzanie słów lub cyfr [4]. Obie miary różnią się też wrażliwością na wiek: zakres pamięci roboczej maleje z wiekiem silniej niż zakres pamięci krótkotrwałej [5]. Od pamięci długotrwałej pamięć robocza różni się niezależnością od przyśrodkowego płata skroniowego, dopóki materiał mieści się w jej pojemności [6].
Granica wobec uwagi i funkcji wykonawczych jest mniej ostra, bo pojęcia te częściowo na siebie zachodzą. Według jednego z ujęć informacja trafia do pamięci roboczej przez skierowanie uwagi na wewnętrzne reprezentacje [7]. W analizie wyników 137 studentów aktualizacja treści pamięci roboczej okazała się jedną z trzech odrębnych, choć skorelowanych funkcji wykonawczych, obok przełączania i hamowania [8]. Pamięć robocza jest więc składnikiem kontroli poznawczej, a nie jej synonimem.
Zakres pojęcia wyznacza przede wszystkim pojemność. Liczbę około siedmiu porcji informacji, podaną przez Millera w 1956 roku, Cowan uznał za szacunek przybliżony i zabieg retoryczny [9, 10]. Według jego zestawienia czysta pojemność, mierzona w warunkach uniemożliwiających powtarzanie i grupowanie materiału, wynosi średnio około czterech porcji [10]. Modele zasobów opisują ją inaczej, jako ograniczony zasób rozdzielany między elementy, tak że o wyniku decyduje jakość zapisu, a nie tylko liczba elementów [11]. Znaczenie pamięci roboczej wynika z jej położenia w poznaniu, bo jej pojemność ogranicza procesy poznawcze wyższego rzędu, w tym kontrolowaną uwagę i rozumowanie [12]. Jej sprawność jest też ważnym czynnikiem prognostycznym zdolności do nauki szkolnej [12].
1.2. Elementy składowe
Elementy pamięci roboczej opisuje się przede wszystkim na poziomie modeli psychologicznych, zbudowanych na podstawie badań zachowania i obserwacji chorych [13]. Najszerzej stosowany jest model wieloskładnikowy Baddeleya i Hitcha, rozwijany od 1974 roku [3, 14]. Wyróżnia on dwa magazyny wyspecjalizowane według rodzaju materiału i jeden system nadzorujący, do których później dołączono czwarty składnik [15].
Pętla fonologiczna utrzymuje informację opartą na mowie, na przykład numer telefonu powtarzany w myślach. Notes wzrokowo-przestrzenny pełni tę samą funkcję wobec informacji wzrokowej i przestrzennej. Centralny system wykonawczy jest systemem kontroli uwagi, który koordynuje pracę pozostałych składników [15]. Czwarty składnik, bufor epizodyczny, Baddeley zaproponował w 2000 roku, ponieważ pierwotny model nie wyjaśniał, jak informacja z różnych źródeł łączy się w jedną całość [14]. Bufor jest magazynem o ograniczonej pojemności, zapisującym treść w kodzie wielomodalnym, czyli niezależnym od zmysłu. Wiąże informację z pozostałych podsystemów i z pamięci długotrwałej w jednolitą reprezentację epizodu, dostępną dla świadomości [14]. Późniejsze doświadczenia przemawiają za zmienionym opisem, w którym wiązanie cech bodźca, na przykład koloru z kształtem, zachodzi automatycznie, zanim informacja trafi do bufora [16].
Cztery składniki modelu różnią się rodzajem treści, zadaniem i momentem wprowadzenia do teorii.
| Składnik | Rodzaj treści | Zadanie | Wprowadzony |
| Pętla fonologiczna | materiał słowny, dźwiękowy | utrzymanie informacji opartej na mowie | 1974 |
| Notes wzrokowo-przestrzenny | obrazy, położenie | utrzymanie informacji wzrokowej i przestrzennej | 1974 |
| Centralny system wykonawczy | treść pozostałych składników | kontrola uwagi, koordynacja podsystemów | 1974 |
| Bufor epizodyczny | kod wielomodalny | łączenie informacji z podsystemów i pamięci długotrwałej w epizod | 2000 |
Model wieloskładnikowy został stworzony na podstawie badań chorych neurologicznie i nadal jest na nich sprawdzany. U części chorych pamięć długotrwała była upośledzona przy zachowanej krótkotrwałej, a u innych odwrotnie [13]. Składniki modelu są jednak zdefiniowane czynnościowo, a pytanie o ich podłoże w mózgu podejmują modele alternatywne.
Modele alternatywne nie zakładają osobnych magazynów. Cowan zaproponował, że ograniczenie pojemności dotyczy ogniska uwagi, które obejmuje około czterech porcji informacji [10]. W ujęciu opartym na badaniach obrazowych pamięć robocza jest aktywowaną częścią zasobów, które mózg już przechowuje. Informacja trafia do niej przez skierowanie uwagi na reprezentacje pojęciowe z pamięci długotrwałej, czuciowe lub ruchowe [7]. Modele zasobów zmieniają jednostkę opisu. Zamiast stałej liczby miejsc zakładają ograniczony zasób rozdzielany elastycznie między wszystkie elementy, przez co wraz z liczbą elementów spada dokładność każdego z nich [11]. Autor modelu wieloskładnikowego zestawia te podejścia z własnym, wskazując zarówno punkty wspólne, jak i różnice [3, 13]. Żaden z modeli nie wyparł pozostałych, a wybór zależy od pytania. Dysocjacje kliniczne łatwiej opisać podsystemami, a dane o rozproszonym zapisie w mózgu łatwiej opisać aktywacją i uwagą.
1.3. Organizacja pamięci roboczej
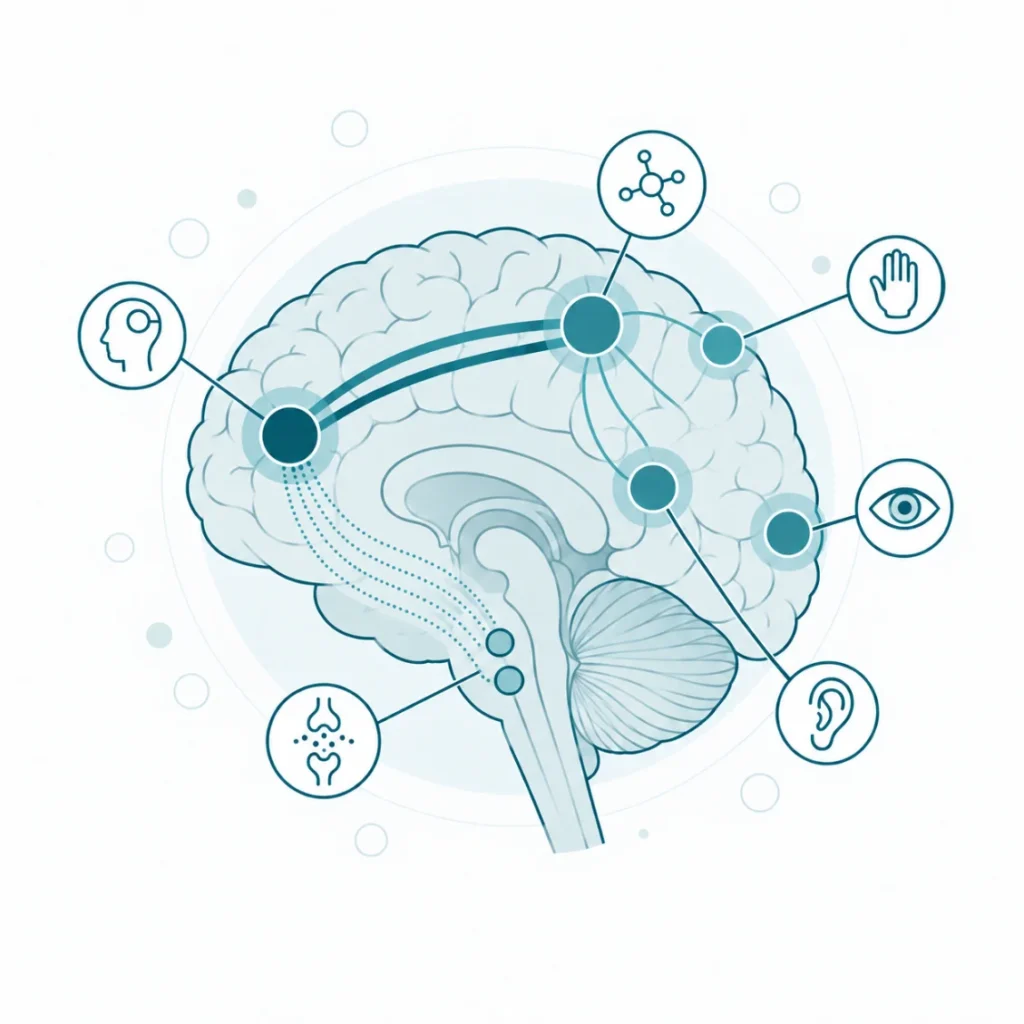
Pamięć robocza nie ma jednego ośrodka w mózgu. Jej czynność zapewnia rozproszona sieć obszarów kory i struktur podkorowych, w której kora przedczołowa i kora ciemieniowa współpracują z obszarami przetwarzającymi wrażenia zmysłowe. W metaanalizie 189 eksperymentów z czynnościowym rezonansem magnetycznym u zdrowych osób zadania pamięci roboczej aktywowały obustronną sieć czołowo-ciemieniową [2]. Obszary tej sieci różnią się rolą: jedne dostarczają treści, inne je podtrzymują i nimi sterują, a jeszcze inne przekładają je na działanie.
Wejściem układu są reprezentacje w obszarach, które przetwarzają dany rodzaj informacji także poza zadaniem pamięciowym. Treść pamięci roboczej zapisuje się więc w tych samych okolicach kory, które analizują obraz, dźwięk lub znaczenie słowa [7]. W badaniach u ludzi i małp treść przechowywaną w pamięci roboczej odczytywano z aktywności wielu obszarów, od kory czuciowej przez korę ciemieniową po korę przedczołową [17]. Reprezentacje te nie są jednak kopiami. W korze czuciowej zapis jest bardziej szczegółowy, a w korze przedczołowej bardziej abstrakcyjny i przekształcony pod kątem nadchodzącego działania [17]. Część obszarów odpowiada też na określony rodzaj materiału. Okolica Broki była aktywna wybiórczo w zadaniach słownych, a kora przedruchowa brzuszna i grzbietowa w zapamiętywaniu odpowiednio tożsamości i położenia obiektów [2].
Ośrodkiem sterującym jest kora przedczołowa, zwłaszcza jej część grzbietowo-boczna, wraz z korą ciemieniową tylną. Zadanie n-back wymaga porównywania bieżącego bodźca z bodźcem sprzed kilku prób. W metaanalizie 24 badań obrazowych jego odmiany stale aktywowały korę przedczołową grzbietowo-boczną i brzuszno-boczną, bieguny czołowe, korę przedruchową oraz przyśrodkową i boczną korę ciemieniową tylną [18]. Według przeglądu badań obrazowych kora przedczołowa nie jest przy tym głównym magazynem treści [7]. Wzmacnia reprezentacje potrzebne w danej chwili i rozstrzyga między regułami, które w danym kontekście konkurują o kierowanie zachowaniem [7]. Już u małp neurony kory przedczołowej i jądra przyśrodkowego grzbietowego wzgórza zmieniały częstotliwość wyładowań w trakcie zadania z opóźnioną odpowiedzią [19]. Obszary czołowo-ciemieniowe aktywne w zadaniach pamięci roboczej należą do sieci kontroli poznawczej, której czynność wykracza poza samo przechowywanie informacji.
Wyjściem układu jest zachowanie kierowane informacją, której nie ma już w otoczeniu. Nadrzędną kontrolę nad samą korą przedczołową, określaną w piśmiennictwie jako „kontrola kontrolera”, zapewnia jej współdziałanie z prążkowiem oraz wstępującymi sygnałami dopaminowymi [7]. Zapis w korze przedczołowej jest już przekształcony w sposób, który przygotowuje odpowiedź ruchową lub decyzję [17]. Z rozproszenia treści w wielu obszarach wynika, że pytanie o jedno miejsce pamięci roboczej ustępuje pytaniu, jak wyspecjalizowane okolice razem przekształcają informację zmysłową w odroczoną odpowiedź [17]. Główne elementy tej organizacji zestawiono według położenia w układzie, wnoszonej treści i rodzaju danych.
| Element | Miejsce w układzie | Co wnosi | Rodzaj metod naukowych |
| Kora czuciowa (wzrokowa, słuchowa) | wejście | szczegółowy zapis cech bodźca | rezonans czynnościowy u ludzi, zapisy u małp |
| Okolica Broki, kora przedruchowa | wejście i wyjście | zapis materiału słownego, tożsamości i położenia obiektów | metaanaliza badań rezonansem czynnościowym |
| Kora ciemieniowa tylna | ośrodek | zapis treści pośredni między korą czuciową a przedczołową | metaanalizy badań obrazowych, przegląd danych u ludzi i małp |
| Kora przedczołowa grzbietowo-boczna | ośrodek | wzmacnianie treści istotnych, wybór reguły, zapis abstrakcyjny | rezonans czynnościowy u ludzi, zapisy u małp |
| Prążkowie i wstępujące włókna dopaminowe | regulacja | kontrola nad korą przedczołową | przegląd danych u ludzi i zwierząt |
Żaden element tej sieci nie wykonuje całej pracy sam. Pamięć robocza jest właściwością sieci, a nie pojedynczego pola kory. Z tym rozproszeniem zgodne jest to, że jej zaburzenia mogą występować w prawie wszystkich chorobach neurologicznych i psychicznych [2].
1.4. Rys historyczny
Pojęcie pamięci roboczej wyłoniło się z krytyki wyobrażenia o jednym, jednolitym magazynie krótkotrwałym [15]. W 1956 roku Miller opisał granicę około siedmiu porcji informacji, którą człowiek jest w stanie przetworzyć naraz [9]. Obraz jednolitego magazynu podważyły obserwacje chorych: u jednych pamięć długotrwała była upośledzona przy zachowanej krótkotrwałej, u innych odwrotnie [13]. W 1974 roku Baddeley i Hitch, odtwarzając w zadaniach podwójnych u zdrowych osób skutki takich uszkodzeń, zaproponowali model trzech składników zamiast jednego magazynu [13, 14].
Niezależnie od psychologów neurofizjolodzy szukali komórkowego podłoża pamięci. W 1971 roku Fuster i Alexander zarejestrowali u małp neurony kory przedczołowej, z których część miała wyładowania podwyższone przez cały okres opóźnienia między wskazówką a odpowiedzią [19]. Autorzy uznali to za wskazówkę, że obwody łączące korę czołową ze wzgórzem uczestniczą w procesach uwagi, na których opiera się pamięć krótkotrwała [19]. W 1989 roku Funahashi, Bruce i Goldman-Rakic opisali, że spośród 87 neuronów kory przedczołowej, których aktywność w okresie opóźnienia rosła albo malała, 79% reagowało wybiórczo na kierunek zapamiętanej wskazówki [20]. W 2001 roku Cowan obniżył szacunek Millera do około czterech porcji [10]. W 2008 roku Mongillo i współpracownicy zaproponowali alternatywę dla założenia, że zapis wymaga nieprzerwanych wyładowań: zapis w krótkotrwałych zmianach siły synaps [21].
2. Działanie układu
2.1. Sygnał wejściowy i jego przetwarzanie
Sygnałem wejściowym pamięci roboczej jest informacja zmysłowa albo treść przywołana z pamięci długotrwałej, która pozostaje potrzebna po zniknięciu źródła. Stan wyjściowy to reprezentacja bodźca w obszarach kory, które go analizują, na przykład w korze wzrokowej dla obrazu [7]. O tym, która z wielu takich reprezentacji zostanie utrzymana, decyduje uwaga, a jej udział jest pierwszym krokiem kodowania [7].
Kodowanie przebiega w kilku krokach. Najpierw filtr uwagi oparty na cechach dopuszcza do dalszego przetwarzania kolor, kształt czy położenie istotne dla zadania [22]. Następnie cechy są łączone w obiekt i zapisywane jako całość w magazynie obiektowym, który w modelu wieloskładnikowym odpowiada buforowi epizodycznemu [22]. Kora przedczołowa wzmacnia w tym czasie reprezentacje potrzebne do zadania, czyli zwiększa ich wyrazistość względem treści konkurencyjnych [7]. Stanem końcowym jest kilka aktywnych reprezentacji, których liczbę ogranicza pojemność ogniska uwagi [10]. Obiekty złożone z powiązanych cech są przy tym bardziej podatne niż pojedyncze cechy na zakłócenie przez bodźce, które pojawiają się tuż po nich [22]. O sprawności pamięci roboczej decyduje więc nie tylko jej pojemność, ale też skuteczność wyboru treści na wejściu i ochrona zapisu przed kolejnymi bodźcami.
2.2. Przekaźnictwo w obrębie układu
Przekaźnictwo w obrębie pamięci roboczej to sposób, w jaki sieć neuronów podtrzymuje zapis przez sekundy po zniknięciu bodźca. Klasyczne wyjaśnienie zakłada aktywność podtrzymaną, czyli utrzymujące się wyładowania neuronów kory przedczołowej w okresie opóźnienia [20]. Nowsze modele dopuszczają zapis bez ciągłych wyładowań. Oba mechanizmy różnią się nośnikiem zapisu, kosztem energetycznym i rodzajem dowodów.
W modelu aktywności podtrzymanej komórki piramidowe kory przedczołowej grzbietowo-bocznej pobudzają się nawzajem przez synapsy pętli zwrotnych. U małp to wzajemne pobudzenie zależało od receptorów NMDA [23]. Receptory NMDA to jonotropowe receptory glutaminianu, nazwane od N-metylo-D-asparaginianu, które otwierają kanał dopiero przy jednoczesnym związaniu przekaźnika i depolaryzacji błony. Miejscowe zablokowanie receptorów NMDA z podjednostką NR2B albo podanie ketaminy, leku blokującego te receptory, znosiło podtrzymane wyładowania tak zwanych komórek opóźnienia [23]. Receptory AMPA, czyli szybkie receptory glutaminianu nazwane od kwasu α-amino-3-hydroksy-5-metylo-4-izoksazolopropionowego, dostarczały w tym układzie tła depolaryzacji potrzebnego do utrzymania wyładowań sieci [23]. Autorzy wiązali tę zależność z upośledzeniem poznawczym w chorobach, w których przekaźnictwo przez receptory NMDA jest uszkodzone, takich jak schizofrenia i choroba Alzheimera [23].
Model aktywności cichej przenosi zapis z wyładowań na synapsy. Według modelu obliczeniowego Mongillo i współpracowników zapis utrzymuje resztkowy wapń w zakończeniach presynaptycznych, który przez pewien czas ułatwia uwalnianie przekaźnika w połączeniach zwrotnych [21]. Wapń ustępuje powoli, więc sieć wystarczy odświeżać rzadkimi wyładowaniami, co czyni ten mechanizm oszczędnym energetycznie [21]. Za takim zapisem przemawia obserwacja, że aktywność w okresie opóźnienia nie zawsze towarzyszy utrzymaniu treści, lecz rośnie i słabnie zależnie od bieżącej przydatności zapamiętanego elementu [24]. U ludzi treść zapamiętanego elementu odczytywano z odpowiedzi elektroencefalograficznej na krótki bodziec sondujący, nawet gdy nie było ani uwagi skierowanej na ten element, ani utrzymującej się aktywności [25]. Siła tego ukrytego zapisu przewidywała dokładność odpowiedzi, a polecenie zapomnienia elementu usuwało jego ślad [25].
Trzecia propozycja dotyczy porządku wielu elementów naraz. Hipoteza kodu theta-gamma zakłada, że kolejne elementy są reprezentowane w kolejnych cyklach szybkich oscylacji gamma, zagnieżdżonych w jednym cyklu wolniejszych oscylacji theta [26]. Najwyraźniej opisano taki kod w hipokampie dla informacji przestrzennej, a jego rola w pamięci roboczej kory pozostaje hipotezą sprawdzaną przez korelacje i zaburzanie oscylacji [26]. Trzy mechanizmy zestawiono według nośnika zapisu i rodzaju dowodów.
| Mechanizm | Nośnik zapisu | Koszt energetyczny | Główne dowody |
| Aktywność podtrzymana | ciągłe wyładowania sieci pobudzających się komórek piramidowych | wyższy | zapisy neuronów u małp, blokada receptorów NMDA |
| Aktywność cicha | krótkotrwałe ułatwienie synaptyczne zależne od wapnia | niższy | model obliczeniowy, sondowanie zapisu elektroencefalografią u ludzi |
| Kod theta-gamma | położenie elementu w cyklu oscylacji | nieokreślony | głównie hipokamp, korelacje w korze |
Mechanizmy te nie muszą się wykluczać. Według interpretacji zgodnej z danymi Stokesa i Wolffa aktywność podtrzymana obsługuje element, na którym skupiona jest uwaga, a zapis ukryty przechowuje elementy chwilowo odłożone [24, 25]. Dlatego element pominięty przez uwagę nie znika z pamięci roboczej.
2.3. Sprzężenia zwrotne i regulacja
Regulacja pamięci roboczej polega na dostrajaniu siły połączeń w sieci kory przedczołowej przez przekaźniki napływające z pnia mózgu i podstawy przodomózgowia. U małp zubożenie kory przedczołowej grzbietowo-bocznej w noradrenalinę i dopaminę albo w acetylocholinę upośledzało jej czynność poznawczą w stopniu porównywalnym z usunięciem samej kory [27]. Większość tych modulatorów działa według wąskiej zależności w kształcie odwróconej litery U, która sprzęga stan pobudzenia organizmu ze sprawnością poznawczą [27]. Zarówno niedobór, jak i nadmiar pobudzenia receptorów pogarsza więc wynik.
Dopamina działa na sieć pamięci roboczej w korze przedczołowej między innymi przez receptory D1, które pobudzają wytwarzanie cyklicznego adenozynomonofosforanu, czyli cAMP, przekaźnika wtórnego zmieniającego pobudliwość błony neuronu. U małp wykonujących zadanie przestrzenne słabe pobudzenie receptorów D1 wyostrzało dostrojenie neuronów, bo tłumiło ich odpowiedzi na kierunki nieistotne [28]. Silne pobudzenie zmniejszało natomiast wyładowania w okresie opóźnienia dla wszystkich kierunków, przez co neurony traciły wybiórczość [28]. Oba efekty zależały od sygnalizacji przez cAMP, a opisano je u małp i u szczurów [28]. W badaniach obrazowych u ludzi katecholaminy stabilizowały reprezentacje w stopniu zależnym od wyjściowego poziomu przekaźnictwa [27]. Skutek tego samego środka działającego na przekaźnictwo katecholaminowe zależy więc od wyjściowego stanu przekaźnictwa u danej osoby.
Noradrenalina wzmacnia sieć pamięci roboczej przez postsynaptyczne receptory α2A, leżące w kolcach dendrytycznych komórek piramidowych obok kanałów HCN, czyli kanałów kationowych otwieranych przez hiperpolaryzację i nukleotydy cykliczne [29]. Pobudzenie receptora α2A hamuje wytwarzanie cAMP, a spadek cAMP zamyka kanały HCN, co wzmacnia łączność czynnościową sieci neuronów kory przedczołowej [29]. U małp pobudzenie receptorów α2A, zahamowanie cAMP albo blokada kanałów HCN nasilały wyładowania w okresie opóźnienia, a nadmiar cAMP powodował ich zanik [29]. Z tego mechanizmu wynika uzasadnienie stosowania guanfacyny, agonisty receptora α2A, jako leku wzmacniającego czynność kory przedczołowej grzbietowo-bocznej [30].
Acetylocholina, przekaźnik układu cholinergicznego, działa w tej samej sieci przez nikotynowe receptory α7 skupione w synapsach glutaminergicznych. U małp receptory te były niezbędne dla podtrzymanych wyładowań i warunkowały działanie receptorów NMDA [31]. Przy silnym stresie katecholaminy zaczynają działać na sieć przeciwnie. Ostry, niekontrolowany stres wywołuje w korze przedczołowej duży wyrzut katecholamin, który uruchamia sygnalizację wapniowo-cAMP i otwiera pobliskie kanały potasowe w kolcach dendrytycznych [32]. Otwarte kanały potasowe osłabiają połączenia synaptyczne i wygaszają aktywność podtrzymaną [32]. Ten sam układ przekaźników, który w umiarkowanym stężeniu wzmacnia pamięć roboczą, w nadmiarze ją wyłącza, co odpowiada prawemu ramieniu krzywej odwróconego U.
| Przekaźnik | Receptor w korze przedczołowej | Skutek umiarkowanego pobudzenia | Skutek nadmiaru |
| Dopamina | D1 | wyostrzenie dostrojenia neuronów | spadek wyładowań i utrata wybiórczości |
| Noradrenalina | α2A | zamknięcie kanałów HCN, wzmocnienie sieci | przy wysokim stężeniu w stresie osłabienie połączeń przez szlak wapniowo-cAMP, któremu pobudzenie α2A przeciwdziała |
| Acetylocholina | nikotynowy α7 | warunek działania receptorów NMDA i wyładowań podtrzymanych | brak danych |
| Glutaminian | NMDA (podjednostka NR2B) | podtrzymanie pobudzenia sieci | brak danych |
Dopamina, noradrenalina i acetylocholina działają w tej sieci jako modulatory, które dynamicznie regulują siłę połączeń między komórkami piramidowymi [27]. Od tej siły zależy, czy treść utrzyma się w sieci przez cały okres opóźnienia.
2.4. Funkcje pamięci roboczej
Funkcje pamięci roboczej wynikają z tego, że udostępnia ona informację nieobecną w otoczeniu procesom, które akurat jej potrzebują. Od ponad pięćdziesięciu lat jest opisywana jako system koordynujący przetwarzanie informacji [7]. Poszczególne funkcje różnią się tym, jaki proces korzysta z utrzymanej treści: odroczone działanie, rozumienie mowy, wnioskowanie albo sterowanie uwagą.
2.4.1. Kierowanie zachowaniem z opóźnieniem
Kierowanie zachowaniem z opóźnieniem to najprostsza funkcja pamięci roboczej: odpowiedź następuje po czasie, a informacja o celu musi przetrwać ten czas bez wsparcia bodźca. Pamięć robocza pozwala sterować zachowaniem informacją, której w danej chwili nie ma w otoczeniu [7]. Wzorcowym laboratoryjnym przykładem jest zadanie z opóźnioną odpowiedzią u małp. Zwierzę patrzy w punkt centralny, przez pół sekundy widzi wskazówkę na obwodzie pola widzenia, a po opóźnieniu trwającym od 1 do 6 sekund wykonuje ruch oczu do zapamiętanego miejsca [20]. W tym czasie neurony kory przedczołowej utrzymują zapis kierunku wskazówki [20]. Codziennym odpowiednikiem jest zapamiętanie, gdzie odłożono przedmiot, na czas odwrócenia wzroku. Dzięki tej funkcji zachowanie przestaje zależeć wyłącznie od bodźców obecnych w danej chwili.
2.4.2. Rozumienie języka
Rozumienie języka wymaga, by początek zdania pozostał dostępny, gdy dociera jego koniec, i by znaczenie wcześniejszych zdań łączyło się z nowymi. Pamięć robocza dostarcza tej ciągłości, a w zadaniach słownych aktywuje między innymi okolicę Broki, związaną z mową i językiem [2]. W metaanalizie danych 6179 uczestników z 77 badań sprawność pamięci roboczej wiązała się ze zdolnością rozumienia tekstu [4]. Lepszymi czynnikami prognostycznymi rozumienia były zadania łączące przetwarzanie z przechowywaniem, na przykład zakres czytania, niż zadania mierzące samo przechowywanie, takie jak zakres cyfr [4]. Dobrze przewidywały je także zadania oparte na działaniach arytmetycznych, więc związek nie wynika wyłącznie z operowania słowami [4]. Rozumienie języka korzysta zatem z ogólnej zdolności do przetwarzania informacji przy jednoczesnym jej przechowywaniu, a nie tylko z magazynu materiału słownego.
2.4.3. Rozumowanie
Rozumowanie, czyli wyprowadzanie wniosków z kilku przesłanek naraz, wymaga utrzymania tych przesłanek i ich wzajemnych relacji. Pojemność pamięci roboczej ogranicza liczbę relacji, które da się rozważyć jednocześnie, i należy do czynników ograniczających rozumowanie [12]. Związek ten jest na tyle silny, że część badaczy uznawała pamięć roboczą i inteligencję ogólną za niemal ten sam konstrukt [33]. Metaanaliza 86 prób badawczych nie potwierdziła tej tożsamości: średnia korelacja między pamięcią roboczą a inteligencją ogólną, skorygowana o błąd pomiaru, wyniosła 0,479 [33]. Przy takiej korelacji różnice w pamięci roboczej odpowiadają za mniej więcej jedną czwartą różnic w inteligencji ogólnej między ludźmi. Oba konstrukty są więc wyraźnie powiązane, ale różne, co ma znaczenie przy ocenie programów obiecujących wzrost inteligencji przez ćwiczenie pamięci roboczej.
2.4.4. Kontrola uwagi i aktualizacja treści
Kontrola uwagi i aktualizacja treści oznaczają ciągłą wymianę zawartości pamięci roboczej: nowe elementy wchodzą na miejsce nieaktualnych, a elementy nieistotne są odsuwane. W analizie zmiennych latentnych u 137 studentów aktualizacja treści okazała się odrębną funkcją wykonawczą, skorelowaną z przełączaniem i hamowaniem, ale od nich rozdzielną [8]. Wynik w zadaniu z zakresem operacji, jednym z klasycznych zadań złożonych pamięci roboczej, wiązał się najsilniej właśnie z aktualizacją [8]. Rdzeń sieci aktywnej w zadaniach pamięci roboczej, wyodrębniony w metaanalizie badań obrazowych, może pełnić ogólną funkcję skupiania przetwarzania na jednej z konkurujących reprezentacji [2]. Ta funkcja łączy pamięć roboczą z siecią uwagową, ponieważ wybór treści do utrzymania i wybór bodźca do analizy korzystają z podobnego mechanizmu wzmacniania jednych reprezentacji kosztem innych [7]. Sprawna aktualizacja chroni więc bieżące zadanie przed wpływem informacji, która przestała być potrzebna.
2.5. Interakcje z innymi układami
Pamięć robocza współpracuje z układami, które same nie należą do jej sieci, ale decydują o tym, co do niej trafia i co z niej zostaje. Najważniejszymi partnerami są hipokamp z pozostałymi strukturami przyśrodkowego płata skroniowego, układy regulujące czuwanie i sen oraz układ reakcji na stres. Każda z tych interakcji dotyczy innego etapu pracy pamięci roboczej.
Hipokamp przejmuje materiał, gdy pamięć robocza przestaje wystarczać. Wczesne badania chorych z uszkodzeniem przyśrodkowego płata skroniowego prowadziły do wniosku, że struktury te tworzą ślady długotrwałe, a pamięć robocza od nich nie zależy [6]. Ponowna analiza danych utrzymała ten wniosek tylko dla materiału mieszczącego się w pojemności pamięci roboczej. Wynik zależy od pamięci długotrwałej i od przyśrodkowego płata skroniowego nawet przy krótkim odstępie czasu, gdy materiału jest więcej lub trudno go powtarzać [6]. Tak samo jest wtedy, gdy uwagę odwraca inne zadanie [6]. W badaniach obrazowych aktywność przyśrodkowego płata skroniowego podczas kodowania rosła z obciążeniem i przewidywała, ile materiału zostanie zapamiętane na dłużej [6]. Granica między oboma systemami przebiega więc według ilości materiału, a nie według długości odstępu między zapamiętaniem a odtworzeniem.
Układy czuwania decydują o tym, czy sieć pamięci roboczej ma warunki do pracy. W korze acetylocholina jest uwalniana w czasie czuwania, a w głębokim śnie nie [31]. Ponieważ receptory α7 warunkują działanie sieci kory przedczołowej, autorzy badania na małpach wiązali z tą różnicą odmienne stany umysłu w czuwaniu i we śnie [31]. U ludzi znaczenie czuwania dla pamięci roboczej widać w badaniach nad deprywacją snu. W metaanalizie badań nad całkowitym brakiem snu trwającym krócej niż 48 godzin pamięć robocza należała do obszarów poznania, w których wyniki się pogarszały [34]. Prawidłowy rytm snu i czuwania jest więc jednym z warunków sprawności pamięci roboczej.
Układ reakcji na stres wpływa na pamięć roboczą dwiema drogami: przez katecholaminy uwalniane w korze i przez kortyzol, końcowy hormon osi podwzgórze–przysadka–nadnercza. Obie drogi nie są równoważne. W metaanalizie badań u ludzi ostry stres pogarszał pamięć roboczą, a skutki podania samego kortyzolu wyraźnie się od tego różniły [35]. Autorzy wnioskowali, że stres działa na funkcje wykonawcze przez mechanizmy inne niż kortyzol albo obok niego [35]. Z badań na zwierzętach wiadomo, że jednym z takich mechanizmów jest nadmiar katecholamin w korze przedczołowej [32]. Samo stężenie kortyzolu nie wystarcza więc do oceny, jak stres wpłynie na pamięć roboczą.
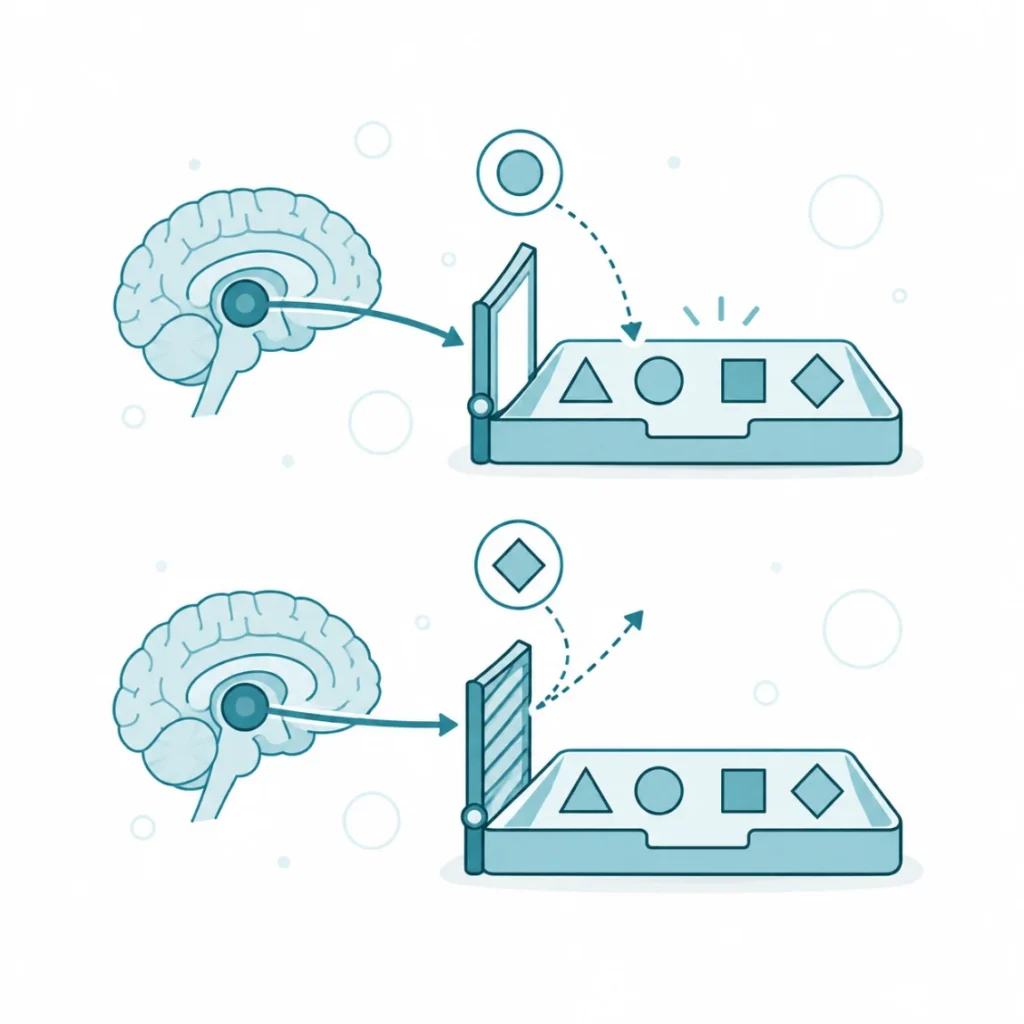
3. Zaburzenia i modyfikacja
3.1. Przeciążenie i osłabienie czynności
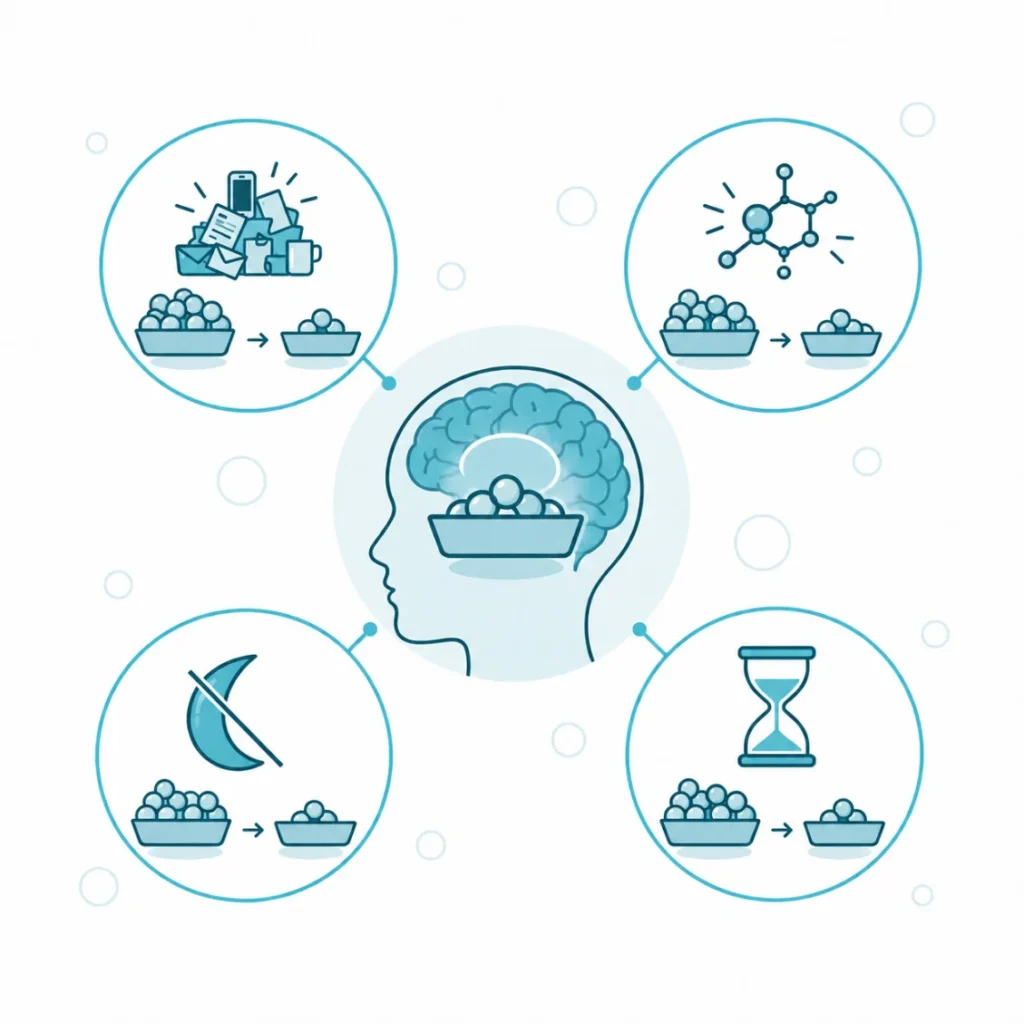
Osłabienie pamięci roboczej nie wymaga choroby. Jej sprawność spada u osób zdrowych, gdy zadanie przekracza pojemność układu, gdy działa silny stres, po nieprzespanej nocy i z wiekiem. Stany te różnią się mechanizmem, przez który obniżają sprawność układu.
Przeciążenie pojemności jest najprostszą przyczyną błędów. Gdy liczba elementów rośnie, spada dokładność zapisu każdego z nich, co w modelach zasobów wynika z dzielenia ograniczonego zasobu na coraz więcej części [11]. Po przekroczeniu pojemności wynik zaczyna zależeć od pamięci długotrwałej i od struktur przyśrodkowego płata skroniowego [6]. Ostry stres działa na innym poziomie, bo osłabia samą sieć kory przedczołowej, która utrzymuje treść [32]. Nawet łagodny ostry stres, na który badany nie ma wpływu, może szybko i wyraźnie obniżyć sprawność funkcji zależnych od kory przedczołowej [36]. W metaanalizie badań u ludzi ostry stres pogarszał pamięć roboczą i elastyczność poznawczą, a wiele efektów zależało od płci i innych czynników [35]. Przewlekły stres zmienia już budowę kory przedczołowej, bo prowadzi do utraty kolców i rozgałęzień dendrytów jej neuronów [32, 36].
Brak snu i starzenie obniżają sprawność pamięci roboczej razem z innymi funkcjami poznawczymi. W metaanalizie badań nad deprywacją snu dłuższe czuwanie wiązało się z gorszą dokładnością wykonania zadań poznawczych [34]. W metaanalizie zadań werbalnych różnice między młodszymi a starszymi dorosłymi wystąpiły we wszystkich rodzajach zadań [5]. Były najmniejsze dla prostego powtarzania, większe dla zakresu cyfr wspak i największe dla zadań pamięci roboczej łączących przetwarzanie z przechowywaniem [5]. Spadek sprawności pamięci roboczej postępuje od prawidłowego starzenia przez łagodne zaburzenia poznawcze do otępienia, choć poszczególne etapy różnią się obrazem zachowania i zmianami w mózgu [37]. Cztery stany zestawiono według mechanizmu i rodzaju danych.
| Stan | Główny mechanizm | Rodzaj metod naukowych |
| Przeciążenie pojemności | podział ograniczonego zasobu, przejście na pamięć długotrwałą | badania zachowania i obrazowe u ludzi |
| Ostry stres | nadmiar katecholamin osłabiający sieć kory przedczołowej | metaanaliza u ludzi, badania na zwierzętach |
| Deprywacja snu | zmiana stanu czuwania | metaanaliza u ludzi |
| Starzenie | większy spadek zadań łączących przetwarzanie z przechowywaniem | metaanaliza u ludzi |
Z zestawienia wynika, że słaby wynik w pojedynczym zadaniu pamięci roboczej nie wskazuje przyczyny. Ten sam spadek może odzwierciedlać chwilowe przeciążenie, stres, niewyspanie albo zmiany związane z wiekiem.
3.2. Udział pamięci roboczej w chorobach
Zaburzenia pamięci roboczej występują w wielu chorobach psychicznych i neurologicznych, dlatego ich obecność sama w sobie nie wskazuje jednej jednostki chorobowej [2]. Dane pochodzą głównie z metaanaliz porównujących chorych z osobami zdrowymi, więc opisują różnice między grupami, a nie przyczynę choroby.
Zespół nadpobudliwości psychoruchowej z deficytem uwagi (ang. attention-deficit/hyperactivity disorder, ADHD) to zaburzenie neurorozwojowe, w którym modele choroby przypisują deficytowi pamięci roboczej rolę jednego z głównych zaburzeń poznawczych [38]. U dzieci z ADHD metaanaliza wykazała duże różnice wobec rówieśników zarówno w pamięci roboczej fonologicznej, jak i wzrokowo-przestrzennej [38]. W metaanalizie 38 badań u dorosłych różnice były umiarkowane w obu rodzajach zadań, co wskazuje, że deficyt utrzymuje się po okresie dzieciństwa [39]. Wielkość różnic zależała też od cech zadań, na przykład od obciążenia centralnego systemu wykonawczego [38, 39]. Rozbieżne wyniki pojedynczych badań w ADHD mogą więc wynikać z różnic w budowie zadań [39].
W schizofrenii deficyt pamięci roboczej jest jednym z głównych objawów poznawczych [40]. W metaanalizie 187 badań chorzy wypadali gorzej od osób zdrowych we wszystkich trzech rodzajach zadań: fonologicznych, wzrokowo-przestrzennych i obciążających centralny system wykonawczy, a różnic nie tłumaczył niższy iloraz inteligencji [1]. Deficyt występował niezależnie od rodzaju materiału i nie narastał przy wydłużaniu opóźnienia powyżej sekundy, co wskazuje na zaburzenie kodowania albo wczesnej fazy utrzymania [40]. W metaanalizie 52 badań obrazowych chorzy wykonujący zadania pamięci roboczej mieli zmienioną aktywację obustronnej kory przedczołowej grzbietowo-bocznej i kory ciemieniowej tylnej [41]. Zależność aktywności podtrzymanej od receptorów NMDA, opisana u małp, jest jednym z proponowanych ogniw łączących te zmiany z zaburzeniami przekaźnictwa glutaminergicznego w schizofrenii [23].
W depresji zaburzenia pamięci roboczej nie ograniczają się do okresu nasilonych objawów. W metaanalizie 252 badań osoby po ustąpieniu epizodu depresji wypadały gorzej od zdrowych między innymi w zadaniach pamięci roboczej, a deficyty narastały z liczbą przebytych epizodów [42]. Wcześniejsza metaanaliza 113 badań opisała u chorych szerokie upośledzenie funkcji wykonawczych, według części danych większe przy cięższych objawach [43]. W zaburzeniach lękowych dane dotyczą głównie lęku mierzonego kwestionariuszem: w metaanalizie 177 prób obejmujących 22 061 osób wyższy lęk wiązał się z mniejszą pojemnością pamięci roboczej [44]. U młodzieży z chorobą afektywną dwubiegunową w okresie remisji metaanaliza 24 badań wykazała umiarkowane do dużych deficyty kilku funkcji, w tym pamięci roboczej [45]. W łagodnych zaburzeniach poznawczych spadek sprawności pamięci roboczej i funkcji wykonawczych bywa proponowany jako wskaźnik przejścia od prawidłowego starzenia do choroby Alzheimera [37].
Jednostki chorobowe różnią się populacją badaną, zakresem deficytu i stanem danych.
| Jednostka | Populacja w metaanalizie | Zakres deficytu pamięci roboczej | Uwagi o danych |
| ADHD | dzieci, dorośli | duży u dzieci, umiarkowany u dorosłych | zależność od cech zadania |
| Schizofrenia | dorośli chorzy | duży, we wszystkich rodzajach zadań | niezależny od ilorazu inteligencji |
| Depresja | osoby po epizodzie | mały do umiarkowanego | narasta z liczbą epizodów |
| Lęk | osoby z lękiem mierzonym kwestionariuszem | mały | głównie lęk jako cecha, nie rozpoznanie |
| Choroba afektywna dwubiegunowa | młodzież w remisji | umiarkowany do dużego | duża niejednorodność badań |
| Łagodne zaburzenia poznawcze | osoby starsze | narastający w kierunku otępienia | przegląd narracyjny |
Deficyt pamięci roboczej jest w tych jednostkach mierzalnym składnikiem obrazu choroby, a nie kryterium rozpoznania. Autorzy metaanalizy dotyczącej depresji wskazali te deficyty jako ważny cel leczenia, także w zapobieganiu nawrotom [42].
3.3. Modyfikacja behawioralna
Modyfikacja behawioralna pamięci roboczej obejmuje przede wszystkim komputerowe programy treningowe i wysiłek fizyczny. Obie drogi przebadano w wielu badaniach z grupą kontrolną, a ich wyniki różnią się zależnie od tego, co uznaje się za efekt. Poprawa w ćwiczonym zadaniu, poprawa w zadaniach niećwiczonych i zmiana sprawności w codziennym życiu to trzy różne efekty, określane jako transfer bliski, pośredni i daleki.
Trening pamięci roboczej daje wyraźny efekt w zadaniach podobnych do ćwiczonych. W metaanalizie 23 badań z 30 porównaniami programy treningowe przynosiły wiarygodną krótkotrwałą poprawę sprawności pamięci roboczej [46]. Dla materiału słownego poprawa nie utrzymywała się jednak w badaniach kontrolnych po zakończeniu treningu, a dla materiału wzrokowo-przestrzennego nieliczne dane wskazywały na jej możliwe utrzymanie [46]. Nie znaleziono przekonujących dowodów na przeniesienie efektu na zdolności werbalne i niewerbalne, hamowanie uwagi, dekodowanie słów ani arytmetykę [46]. Późniejsza metaanaliza 87 publikacji ze 145 porównaniami potwierdziła poprawę w niećwiczonych zadaniach pamięci roboczej bezpośrednio po treningu [47]. W porównaniu z grupą kontrolną wykonującą inne zajęcia nie stwierdzono natomiast wiarygodnej poprawy inteligencji, rozumienia tekstu ani arytmetyki [47]. Wielkość poprawy w zadaniach pamięci roboczej nie wiązała się też z wielkością efektów dalekich [47].
Ocena transferu dalekiego pozostaje przedmiotem sporu. W metaanalizie 20 badań treningu zadaniem n-back u zdrowych osób w wieku 18–50 lat stwierdzono mały, ale istotny wzrost inteligencji płynnej, czyli zdolności rozwiązywania nowych problemów [12]. Krytycy tej analizy wskazali błędy w doborze badań, pominięcie różnic wyjściowych między grupami oraz łączenie badań z aktywną i bierną grupą kontrolną [48]. Ich ponowna analiza nie potwierdziła ogólnego efektu poznawczego [48]. W trzech badaniach z randomizacją obejmujących łącznie 460 osób poprawa w niećwiczonym zadaniu n-back pośredniczyła w poprawie wyniku testu rozumowania matrycowego [49]. W dwóch z tych badań sam trening nie dał przy tym efektu grupowego [49]. Przegląd badań cytowanych przez firmy oferujące trening poznawczy wykazał wiele dowodów poprawy w ćwiczonych zadaniach, mniej w zadaniach pokrewnych i niewiele w zadaniach odległych oraz w codziennym funkcjonowaniu [50]. Obecny stan wiedzy przemawia więc za efektem treningu w samych zadaniach pamięci roboczej i przeciw jego szerokiemu przenoszeniu na inne zdolności.
Pojedyncza sesja wysiłku fizycznego działa na pamięć roboczą krótkotrwale i w niewielkim stopniu. Autorzy metaanalizy wskazali, że badania długotrwałych programów ćwiczeń zgodnie wykazują korzystny wpływ na funkcje poznawcze, a wyniki dla pojedynczych sesji były dotąd rozbieżne [51]. W bayesowskiej metaanalizie 113 badań z udziałem 4390 zdrowych młodych dorosłych pojedyncza sesja wysiłku poprawiała wyniki poznawcze w małym stopniu [51]. W zadaniach sprawdzających funkcje wykonawcze poprawa dotyczyła pamięci roboczej i hamowania [51]. Efekt ten opisuje stan tuż po wysiłku, a nie trwałą zmianę pojemności układu [51]. Łącznie dane o treningu i wysiłku pokazują, że pamięć robocza reaguje na interwencje behawioralne, ale zmiany są mniejsze i węższe, niż obiecują to programy komercyjne [50].
3.4. Wsparcie suplementacyjne
Wpływ suplementów na pamięć roboczą oceniano w badaniach, w których mierzono wynik zadań pamięci roboczej albo szerzej pojętej pamięci. Dla większości substancji mechanizm działania na sieć kory przedczołowej u ludzi nie został ustalony, a wyniki badań są rozbieżne. Najmocniejsze dane dotyczą ekstraktu z brahmi i kreatyny, a najsłabsze lub zerowe – miłorzębu, kwasów omega-3 i żeń-szenia.
Ekstrakt z brahmi, rośliny Bacopa monnieri, w metaanalizie sieciowej 29 badań z randomizacją u zdrowych dorosłych poprawiał wyniki zadań pamięci roboczej w porównaniu z placebo i z miłorzębem [52]. Przewaga dotyczyła głównie wyższych dawek ekstraktu [52]. Autorzy zaznaczyli, że wnioski opierają się na porównaniach pośrednich, bo brakowało badań zestawiających oba ekstrakty bezpośrednio [52]. Wcześniejsza metaanaliza dziewięciu badań wiązała długotrwałe przyjmowanie ekstraktu głównie z szybszym przetwarzaniem uwagowym [53]. Kreatyna, która w mózgu buforuje zasoby adenozynotrifosforanu, poprawiała w badaniu z placebo u 45 młodych wegetarian wynik zakresu cyfr wspak i testu matryc Ravena [54]. W metaanalizie badań z randomizacją u zdrowych osób poprawiała miary pamięci ogółem, wyraźnie u osób w wieku 66–76 lat i bez istotnego efektu u osób w wieku 11–31 lat [55]. L-tyrozyna, prekursor dopaminy i noradrenaliny, poprawiała wynik w trudniejszej wersji zadania n-back, a w łatwiejszej nie [56]. Według przeglądu jej działanie ujawnia się głównie w krótkotrwałych sytuacjach stresu lub dużego obciążenia poznawczego [57].
Kofeina, nieselektywny antagonista receptorów adenozynowych [70], daje wyniki niejednoznaczne. W badaniu z randomizacją u 59 osób poprawiała wynik zadania n-back tylko u osób ekstrawertycznych [58]. W badaniu u 20 młodych osób regularnie przyjmujących kofeinę codzienne jej przyjmowanie w warunkach badania wiązało się z większą liczbą błędów w trudnej wersji zadania n-back niż placebo [59]. W badaniu u 18 osób regularnie pijących kawę lub herbatę pojedyncze podanie pogorszyło pamięć roboczą przestrzenną bez wpływu na słowną [60]. L-teanina, aminokwas herbaty, w jednym badaniu poprawiła po jednorazowym podaniu wynik zadania pamięci roboczej u osób w wieku 50–69 lat [61]. W innym badaniu podana osobno zmniejszyła liczbę poprawnych odejmowań w pamięci, a dopiero w połączeniu z kofeiną skróciła czas odpowiedzi w liczbowym zadaniu pamięci roboczej [62].
Kwasy omega-3, zwłaszcza kwas dokozaheksaenowy, są wbudowane w fosfolipidy błon komórek mózgu [71]. Metaanaliza 24 badań z randomizacją nie wykazała jednak poprawy żadnej miary poznawczej po ich podawaniu u osób zdrowych ani u osób z ADHD i pokrewnymi zaburzeniami neurorozwojowymi [63]. Poprawę pamięci krótkotrwałej stwierdzono tylko u osób z niskim wyjściowym stężeniem tych kwasów [63]. Badanie z randomizacją u 193 zdrowych dorosłych w wieku 20–80 lat również nie wykazało wpływu na pamięć roboczą [64]. Miłorząb nie wpływał na pamięć w metaanalizie 13 badań u zdrowych osób [65]. Żeń-szeń w badaniu z randomizacją u 30 młodych dorosłych w wyższej dawce poprawiał, a w niższej spowalniał liczenie w pamięci [66]. Przy wyniku zależnym od dawki nie da się określić jednego kierunku wpływu żeń-szenia na pamięć roboczą.
Osiem substancji z badaniami, w których mierzono pamięć roboczą lub pamięć ogółem, zestawiono według mechanizmu, kierunku wpływu i siły dowodu.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Brahmi | mechanizm u ludzi nieustalony | ↑ wynik zadań pamięci roboczej, głównie przy wyższych dawkach | A (metaanaliza sieciowa, porównania pośrednie) |
| Kreatyna | bufor energetyczny adenozynotrifosforanu w mózgu | ↑ zakres cyfr wspak u wegetarian, ↑ pamięć ogółem u osób starszych | A (pamięć ogółem), B (zakres cyfr wspak) |
| L-tyrozyna | prekursor dopaminy i noradrenaliny | ↑ w zadaniu trudniejszym i przy obciążeniu, ~ w zadaniu łatwym | B |
| Kofeina | antagonista receptorów adenozynowych | ~ lub ↓, poprawa tylko w podgrupie osób ekstrawertycznych | B |
| L-teanina | mechanizm u ludzi nieustalony | ~ (wyniki rozbieżne między badaniami) | B |
| Kwasy omega-3 | składnik fosfolipidów błon komórek mózgu, mechanizm wpływu na pamięć roboczą nieustalony | ~ | A |
| Miłorząb | mechanizm u ludzi nieustalony | ~ (pamięć ogółem) | A |
| Żeń-szeń | mechanizm u ludzi nieustalony | ~ (efekt zależny od dawki, w tym pogorszenie) | B |
Dane z metaanaliz przemawiają za poprawą tylko w przypadku brahmi i kreatyny, przy czym dla brahmi opierają się na porównaniach pośrednich, a dla kreatyny dotyczą głównie osób starszych. Dla pozostałych substancji wyniki są zerowe albo zależą od warunków badania, dawki i cech badanych.
4. Uwagi praktyczne
4.1. Jak to zbadać
Pamięć roboczą ocenia się zadaniami neuropsychologicznymi, w których badany zapamiętuje materiał i jednocześnie coś z nim robi. Wynik podaje się jako liczbę poprawnie odtworzonych elementów albo odsetek trafnych odpowiedzi i porównuje z normami dla wieku. Normy wiekowe są konieczne, bo zakres pamięci roboczej zmniejsza się z wiekiem, a zadania łączące przetwarzanie z przechowywaniem są na wiek bardziej wrażliwe niż proste powtarzanie [5].
Najprostszym zadaniem jest zakres cyfr, wchodzący w skład skal inteligencji Wechslera [72]. W wersji wprost badany powtarza ciąg cyfr w tej samej kolejności, co sprawdza głównie samo przechowanie. W wersji wspak odtwarza ciąg od końca, a odwrócenie kolejności wymaga przetwarzania utrzymanej treści. Dlatego wersja wspak jest bliższa pamięci roboczej i silniej zależy od wieku niż wersja wprost [5]. Zadanie n-back wymaga śledzenia ciągu bodźców i sygnalizowania, gdy bieżący bodziec jest taki sam jak ten sprzed określonej liczby prób [18]. Zadania złożone, takie jak zakres operacji, zakres czytania czy zakres liczenia, przeplatają zapamiętywanie elementów z rozwiązywaniem działań lub czytaniem zdań [67]. Conway i współpracownicy opisali szczegółowo ich rzetelność i trafność, a wynik zakresu operacji wiązał się z aktualizacją treści pamięci roboczej [8, 67].
| Zadanie | Co mierzy | Główne ograniczenie |
| Zakres cyfr wprost | przechowanie materiału słownego | mierzy raczej pamięć krótkotrwałą niż roboczą |
| Zakres cyfr wspak | przechowanie z przekształceniem kolejności | silnie zależny od wieku, wymaga norm wiekowych |
| N-back | śledzenie i aktualizacja ciągu bodźców | słabo skorelowany z zadaniami złożonymi |
| Zadania złożone (zakres operacji, czytania) | przetwarzanie połączone z przechowywaniem | wymagają umiejętności liczenia lub czytania |
Wyboru zadania nie da się więc sprowadzić do kwestii wygody. Zadania złożone i n-back korelują ze sobą słabo i nie mogą być używane zamiennie jako miara tej samej zdolności [68].
Na wynik zadań pamięci roboczej wpływają czynniki niezwiązane z trwałą sprawnością układu. Należy do nich lęk, zarówno deklarowany w kwestionariuszu, jak i wywołany eksperymentalnie, który wiąże się z gorszym wynikiem w zadaniach prostych, złożonych i typu n-back [44]. Podobnie działają ostry stres i niewyspanie [34, 35]. Pojedynczy niski wynik jest więc opisem sprawności w danym dniu, a nie rozpoznaniem. Ocenę pamięci roboczej interpretuje się w pełnym badaniu neuropsychologicznym, razem z wywiadem i wynikami innych prób.
4.2. Na co warto zwrócić uwagę
Przekonanie, że gry komputerowe ćwiczące pamięć zwiększają inteligencję, nie znajduje oparcia w obecnych danych. Źródłem nieporozumienia jest utożsamianie lepszego wyniku w ćwiczonej grze z lepszym myśleniem w ogóle, choć to drugie wymagałoby transferu dalekiego, którego badania z aktywną grupą kontrolną nie potwierdziły [47]. Spór o ten efekt rozgrywał się publicznie. W 2014 roku ponad 70 naukowców podpisało list odrzucający korzyści takich programów, a kilka miesięcy później 133 naukowców i praktyków ogłosiło list przeciwny [50]. Autorzy przeglądu tłumaczyli rozbieżność różnymi standardami oceny dowodów i wskazali, że żadne z badań cytowanych przez firmy nie spełniało wszystkich warunków dobrze zaprojektowanego badania [50]. Mały efekt dla inteligencji płynnej w metaanalizie badań treningu zadaniem n-back pozostaje sporny, bo zależy od sposobu doboru badań i rodzaju grupy kontrolnej [12, 48].
Utożsamianie pamięci roboczej z pamięcią krótkotrwałą prowadzi do błędów w interpretacji badań. Prawidłowy wynik w prostym powtarzaniu cyfr nie wyklucza słabszej pamięci roboczej, ponieważ oba rodzaje zadań różnią się wrażliwością na wiek i siłą związku z rozumieniem tekstu [4, 5]. Z tego samego powodu pamięć roboczą trudno opisać jedną liczbą. Pojemność rzędu czterech porcji dotyczy warunków, w których nie można grupować ani powtarzać materiału, a w codziennych zadaniach grupowanie i wiedza z pamięci długotrwałej zwiększają ilość utrzymywanej informacji [10]. Różne liczby podawane dla pojemności pamięci roboczej nie są więc sprzeczne, bo opisują różne warunki pomiaru.
Przekonanie, że wykonywanie wielu czynności naraz ćwiczy pamięć roboczą, nie ma potwierdzenia w badaniach. W jednym z badań porównano osoby, które często korzystają jednocześnie z wielu mediów, z osobami robiącymi to rzadko. Pierwsza grupa była bardziej podatna na zakłócenia przez nieistotne bodźce i nieistotne treści w pamięci, a także gorzej przełączała się między zadaniami [69]. Było to badanie przekrojowe, więc nie rozstrzyga, czy wielozadaniowość osłabia kontrolę uwagi, czy osoby o słabszej kontroli chętniej wykonują wiele czynności naraz [69]. Kierunek zależności jest w każdym razie przeciwny do potocznego oczekiwania.
Wiedza o komórkowych mechanizmach pamięci roboczej pochodzi głównie z badań na małpach i szczurach. Zależność od receptorów NMDA, receptorów α7, receptorów D1 i receptorów α2A opisano w zapisach pojedynczych neuronów kory przedczołowej u zwierząt [23, 28, 29, 31]. U ludzi dostępne są przede wszystkim pośrednie dane z badań obrazowych i farmakologicznych, zgodne z tymi mechanizmami, zwłaszcza z zależnością skutku katecholamin od stanu wyjściowego [27]. Przenoszenie szczegółów tych mechanizmów na człowieka wymaga więc ostrożności, a relacja między modelem aktywności podtrzymanej i modelem aktywności cichej pozostaje przedmiotem sporu [24, 25]. Ocena utrzymujących się trudności z pamięcią roboczą należy do lekarza albo neuropsychologa, bo mogą one towarzyszyć między innymi depresji, ADHD i łagodnym zaburzeniom poznawczym.