
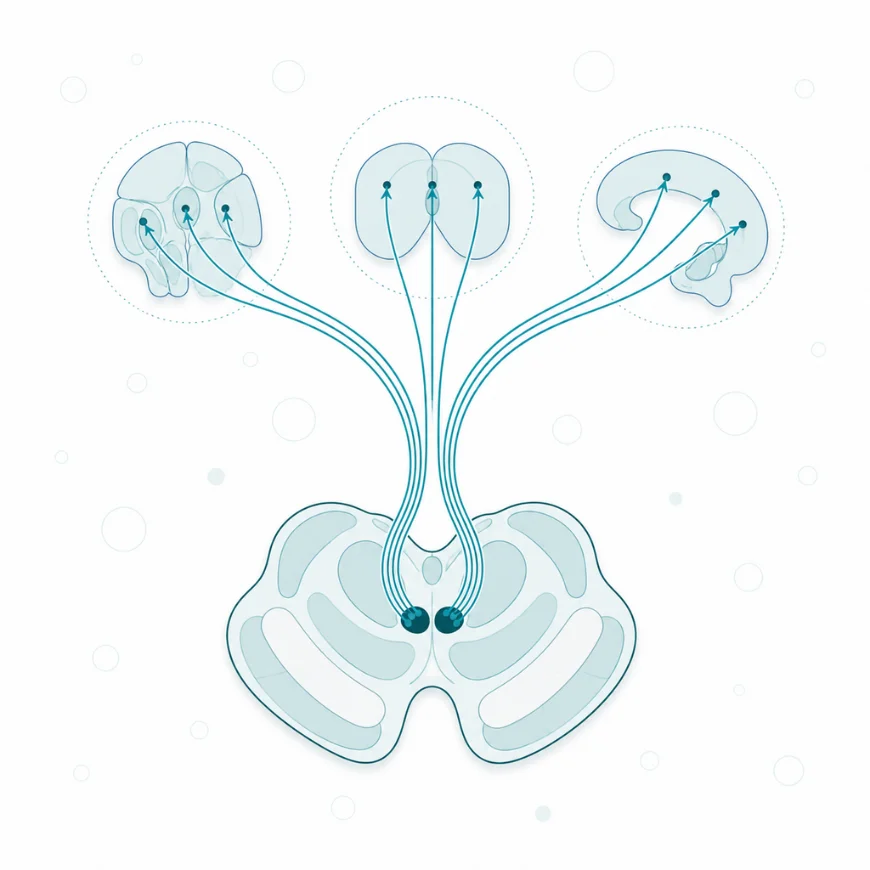
1. Charakterystyka struktury
1.1. Definicja i nazewnictwo
Brzuszne pole nakrywki (ang. ventral tegmental area, VTA) to obszar brzusznej części nakrywki śródmózgowia zawierający skupisko neuronów dopaminowych, należący do układu dopaminergicznego mózgu. Leży po obu stronach linii pośrodkowej i graniczy z częścią zbitą istoty czarnej [1]. Nazwa opisuje położenie, a nie budowę, ponieważ VTA nie jest jądrem o wyraźnych granicach anatomicznych [1]. Neurony dopaminowe VTA tworzą grupę komórek oznaczaną symbolem A10, sąsiadującą z grupą A9 w istocie czarnej [2].
W podziale anatomicznym VTA jest częścią śródmózgowia, czyli najwyższego piętra pnia mózgu. W podziale czynnościowym zalicza się je do układu nagrody, ponieważ jego neurony uczestniczą w zachowaniach nakierowanych na nagrodę i cel [3]. Aksony VTA docierają do prążkowia brzusznego, kory przedczołowej, ciała migdałowatego i innych struktur przodomózgowia [4]. Ciała komórkowe neuronów zawierających monoaminy w pniu mózgu szczura opisali w 1964 roku A. Dahlström i K. Fuxe, stosując metodę fluorescencji histochemicznej [5].
VTA bywa utożsamiane z populacją neuronów dopaminowych. Obszar ten zawiera jednak także liczne neurony uwalniające kwas γ-aminomasłowy (ang. gamma-aminobutyric acid, GABA), główny przekaźnik hamujący mózgu, oraz nieliczne neurony uwalniające pobudzający glutaminian [6]. VTA nie jest też synonimem układu nagrody ani drogi mezolimbicznej. Układ nagrody obejmuje również struktury docelowe, a droga mezolimbiczna to pęczek aksonów wychodzących z VTA, a nie skupisko ciał komórek. Od sąsiedniej części zbitej istoty czarnej VTA różni się głównie celami projekcji, a nie przekaźnikiem [2]. Kryterium różnicującym jest więc położenie i kierunek połączeń, a nie sama obecność dopaminy.
Pojęcie VTA obejmuje ciała komórkowe i dendryty neuronów tego obszaru wraz z ich lokalnymi połączeniami. Nie obejmuje zakończeń aksonów w strukturach docelowych, choć to tam działa uwalniana z nich dopamina. Według autorów pracy z 2008 roku badania czynnościowe mózgu człowieka dotyczyły dotąd głównie obszarów docelowych, a nie samego VTA [7]. Zaburzenia pracy neuronów VTA i struktur, na które wpływają, wiąże się z uzależnieniem i depresją [8]. Zmiany w układzie dopaminowym śródmózgowia opisano także w schizofrenii [9]. Z tego powodu VTA wymaga opisu odrębnego od opisu dopaminy jako przekaźnika i od opisu układu nagrody jako całości.
1.2. Położenie i granice
VTA zajmuje brzuszną, przyśrodkową część nakrywki śródmózgowia, między istotą czarną a linią pośrodkową. Z częścią zbitą istoty czarnej graniczy bez wyraźnej przegrody, a ograniczenia techniczne rezonansu magnetycznego dodatkowo utrudniają wyznaczenie jego obrysu [1]. W piśmiennictwie brakuje też zgody co do nazewnictwa części VTA, co utrudnia porównywanie wyników różnych zespołów [1].
U szczura w obrębie VTA wyróżnia się kilka jąder, między innymi jądro międzypęczkowe, jądro przyramienne i jądro okołomiędzypęczkowe [6]. Jądra te różnią się składem komórkowym, zwłaszcza odsetkiem neuronów hamujących [6]. Obok podziału na jądra stosuje się podział na część przednio-przyśrodkową, tylno-przyśrodkową i boczną [10]. Podział ten ma znaczenie czynnościowe, ponieważ poszczególne części wysyłają aksony do innych przedziałów prążkowia brzusznego [10].
Uporządkowanie przestrzenne VTA nie jest jednak ścisłe. W badaniu na szczurach neurony zasilające dziesięć różnych celów leżały przemieszane, a żaden cel nie otrzymywał włókien z jednego tylko podobszaru [4]. Neurony dopaminowe i GABA-ergiczne zasilające poszczególne cele miały przy tym odmienne wzorce rozmieszczenia w obrębie VTA [4]. Położenie neuronu w VTA pozwala więc przewidzieć jego cel projekcji tylko w przybliżeniu.
U człowieka granice VTA wyznacza się w obrazach rezonansu magnetycznego. Małe jądra położone głęboko w mózgu trudno uwidocznić, a dostępne atlasy rezonansu obejmowały tylko 7% z 455 jąder podkorowych [11]. Jedną z dróg rozwiązania tego problemu są aparaty o indukcji pola 7 T, czyli siedmiu tesli [11]. Autorzy atlasu probabilistycznego VTA z 2021 roku odnotowali, że wcześniej nie istniał anatomicznie precyzyjny atlas tego obszaru oparty na danych 7 T [11]. Taki atlas pozwala wyznaczyć VTA u konkretnej osoby i przypisać mu sygnał z badań czynnościowych [1].
1.3. Skład komórkowy
VTA zawiera trzy główne populacje neuronów, rozróżniane według uwalnianego przekaźnika: dopaminowe, GABA-ergiczne i glutaminianowe [3, 12]. Populacje te różnią się liczebnością i położeniem w obrębie VTA [6].
Liczebność tych populacji oszacowano u szczurów metodą stereologiczną, czyli przez zliczanie komórek w seryjnych przekrojach z poprawką na ich objętość. Neurony dopaminowe rozpoznawano po hydroksylazie tyrozynowej, enzymie syntezy dopaminy, a pozostałe po mRNA, czyli matrycowym RNA przenoszącym informację z genu do miejsca syntezy białka, dwóch białek znacznikowych [6]. Pierwszym była dekarboksylaza kwasu glutaminowego (ang. glutamic acid decarboxylase, GAD), enzym wytwarzający GABA. Drugim był pęcherzykowy transporter glutaminianu typu 2 (ang. vesicular glutamate transporter 2, VGLUT2), białko ładujące glutaminian do pęcherzyków synaptycznych. Neurony z mRNA GAD stanowiły 35% komórek VTA, a w części zbitej istoty czarnej 29% [6]. Ich udział różnił się między jądrami VTA i wynosił 12% w jądrze międzypęczkowym, 30% w przyramiennym i 45% w okołomiędzypęczkowym [6]. Neurony z mRNA VGLUT2 stanowiły około 2–3% policzonych komórek, czyli około 1600 neuronów, i skupiały się w dziobowo-przyśrodkowej części VTA. W istocie czarnej takich neuronów nie znaleziono [6].
Podział na trzy populacje jest uproszczeniem, ponieważ część neuronów uwalnia dwa przekaźniki. Niektóre neurony dopaminowe VTA uwalniają dodatkowo GABA albo glutaminian [3]. U gryzoni większość neuronów dopaminowych zasilających powłokę jądra półleżącego zawiera VGLUT2, więc może uwalniać także glutaminian [13]. Opisano również neurony VTA, które uwalniają jednocześnie glutaminian i GABA [14]. Neurony glutaminianowe VTA poznano słabiej niż dopaminowe, między innymi z powodu ich stosunkowo niewielkiej liczby [12].
Trzy populacje neuronów VTA różnią się znacznikiem, udziałem w liczbie komórek u szczura i działaniem uwalnianego przekaźnika [3, 6].
| Populacja | Znacznik w badaniu stereologicznym | Udział w VTA szczura | Działanie przekaźnika |
| Dopaminowa | hydroksylaza tyrozynowa | pozostała część policzonych neuronów | modulujące, przez receptory metabotropowe |
| GABA-ergiczna | mRNA GAD | 35%, od 12% do 45% zależnie od jądra | hamujące |
| Glutaminianowa | mRNA VGLUT2 | około 2–3%, głównie część dziobowo-przyśrodkowa | pobudzające |
Neurony niedopaminowe stanowią zatem dużą część obszaru tradycyjnie uznawanego za dopaminowy, na co zwrócili uwagę autorzy badania stereologicznego [6].
2. Mechanizm działania
2.1. Połączenia wejściowe
Neurony VTA otrzymują wejścia z wielu obszarów mózgu, a skutek pobudzenia danego wejścia zależy od tego, na które neurony VTA ono trafia. W badaniu na myszach użyto zmodyfikowanego wirusa wścieklizny, który przechodzi wstecz przez pojedynczą synapsę i znakuje neurony wysyłające wejście. Neurony dopaminowe VTA i istoty czarnej otrzymywały wejścia z liczniejszych obszarów, niż wcześniej sądzono, w tym z ośrodków autonomicznych, ruchowych i czuciowych [16]. Charakterystyczne wejścia pobudzające do neuronów dopaminowych VTA pochodziły z podwzgórza bocznego, a do istoty czarnej z kory czuciowo-ruchowej i jądra niskowzgórzowego [16]. Autorzy wiążą to z udziałem VTA w kodowaniu wartości nagrody.
Ważnym źródłem hamowania jest dziobowo-przyśrodkowe jądro nakrywki (ang. rostromedial tegmental nucleus, RMTg), zbudowane z neuronów GABA-ergicznych. Neurony RMTg wysyłają gęste projekcje do neuronów dopaminowych śródmózgowia i otrzymują silne wejście z uzdeczki bocznej [17]. Uzdeczka boczna należy do nadwzgórza i działa na VTA dwiema drogami. U myszy jej włókna tworzyły synapsy na neuronach dopaminowych zasilających korę przedczołową oraz na neuronach GABA-ergicznych RMTg [18]. Neurony dopaminowe odbierają ponadto lokalne wejścia hamujące i pobudzające od sąsiednich neuronów samego VTA [3].
Z pnia mózgu docierają wejścia z jądra grzbietowo-bocznego nakrywki (ang. laterodorsal tegmental nucleus, LDTg) i jądra konarowo-mostowego nakrywki (ang. pedunculopontine tegmental nucleus, PPTg). Oba jądra wysyłają do VTA włókna cholinergiczne i glutaminianowe [19, 20]. U myszy włókna LDTg tworzyły synapsy głównie na neuronach dopaminowych zasilających boczną część powłoki jądra półleżącego [18]. Włókna PPTg pobudzały natomiast neurony niedopaminowe VTA [20].
Z kory przedczołowej biegną do VTA włókna pobudzające o dużej wybiórczości. U szczurów zakończenia korowe tworzyły synapsy na neuronach dopaminowych, które wysyłały aksony z powrotem do kory przedczołowej, a nigdy na neuronach GABA-ergicznych tej projekcji [21]. Wśród neuronów zasilających jądro półleżące zakończenia korowe trafiały odwrotnie, na neurony GABA-ergiczne, a nigdy na dopaminowe [21]. Do VTA docierają też aksony neuronów oreksynowych podwzgórza bocznego [22]. Hipokamp wpływa na VTA pośrednio, przez kilka stacji przekaźnikowych w przodomózgowiu [23].
Wybrane wejścia do VTA różnią się neuronami docelowymi i skutkiem ich pobudzenia w badaniach na zwierzętach [17–21, 24].
| Źródło wejścia | Neurony docelowe w VTA | Skutek pobudzenia wejścia | Gatunek |
| Uzdeczka boczna | dopaminowe zasilające korę przedczołową, GABA-ergiczne RMTg | zachowania awersyjne | mysz |
| RMTg | dopaminowe | hamowanie neuronów dopaminowych przez bodźce przykre | szczur |
| LDTg | dopaminowe zasilające boczną część powłoki jądra półleżącego | zachowania nagradzające | mysz |
| PPTg | niedopaminowe | uczenie się skojarzenia bodźca z pokarmem | mysz |
| Kora przedczołowa | dopaminowe zasilające korę, GABA-ergiczne zasilające jądro półleżące | pobudzenie synaptyczne | szczur |
Przeciwne skutki pobudzenia wejść z uzdeczki bocznej i z LDTg wynikają więc z tego, do której podgrupy neuronów VTA te wejścia docierają [18].
2.2. Połączenia wyjściowe
VTA wysyła aksony do struktur przodomózgowia i pnia mózgu, a główne drogi dopaminowe nazywa się według celu. Droga mezolimbiczna prowadzi do prążkowia brzusznego, czyli do jądra półleżącego i guzka węchowego, oraz do innych struktur układu limbicznego [10]. Droga mezokortykalna prowadzi do przyśrodkowej kory przedczołowej i przedniej części zakrętu obręczy [4]. U człowieka drogi te odtwarza się w obrazowaniu dyfuzyjnym rezonansu magnetycznego [25].
W jądrze półleżącym włókna z różnych części VTA kończą się w różnych przedziałach. U szczurów tylno-przyśrodkowa część VTA zasilała przyśrodkową część powłoki jądra półleżącego i guzek węchowy [10]. Część boczna unerwiała głównie rdzeń i boczną część powłoki, a część przednio-przyśrodkowa miała z prążkowiem brzusznym niewiele połączeń [10]. U myszy neurony dopaminowe zasilające przyśrodkową część powłoki, jej część boczną i korę przedczołową różniły się podstawowymi właściwościami synaps [26]. Autorzy uznali, że układ dopaminowy wychodzący z VTA może składać się z trzech odrębnych obwodów [26]. W grzbietowo-przyśrodkowej części powłoki wszystkie zakończenia dopaminowe pochodziły od neuronów uwalniających też glutaminian [13]. Najsilniejsze połączenia pobudzające tych neuronów trafiały na interneurony cholinergiczne prążkowia [13].
Drogi wychodzące z VTA nie są wyłącznie dopaminowe. W badaniu na szczurach, obejmującym dziesięć celów projekcji, neurony niedopaminowe stanowiły ponad 50% neuronów projekcyjnych dla każdego celu z wyjątkiem rdzenia jądra półleżącego [4]. Neurony GABA-ergiczne stanowiły najwyżej 20% każdej projekcji, z wyjątkiem drogi do brzuszno-bocznej części istoty szarej okołowodociągowej, gdzie ich udział zbliżał się do 50% [4]. Autorzy wnioskowali stąd o znacznym udziale neuronów glutaminianowych w wielu projekcjach VTA.
VTA unerwia także uzdeczkę boczną. U szczurów i myszy większość neuronów VTA zasilających uzdeczkę zawierała znaczniki glutaminianu i GABA, a pojedynczy akson uwalniał oba przekaźniki na ten sam neuron uzdeczki [14]. Dopamina z VTA dociera również do hipokampu [23]. Ta sama struktura może więc jednocześnie przekazywać różne sygnały do różnych celów, zależnie od tego, która grupa jej neuronów jest aktywna.
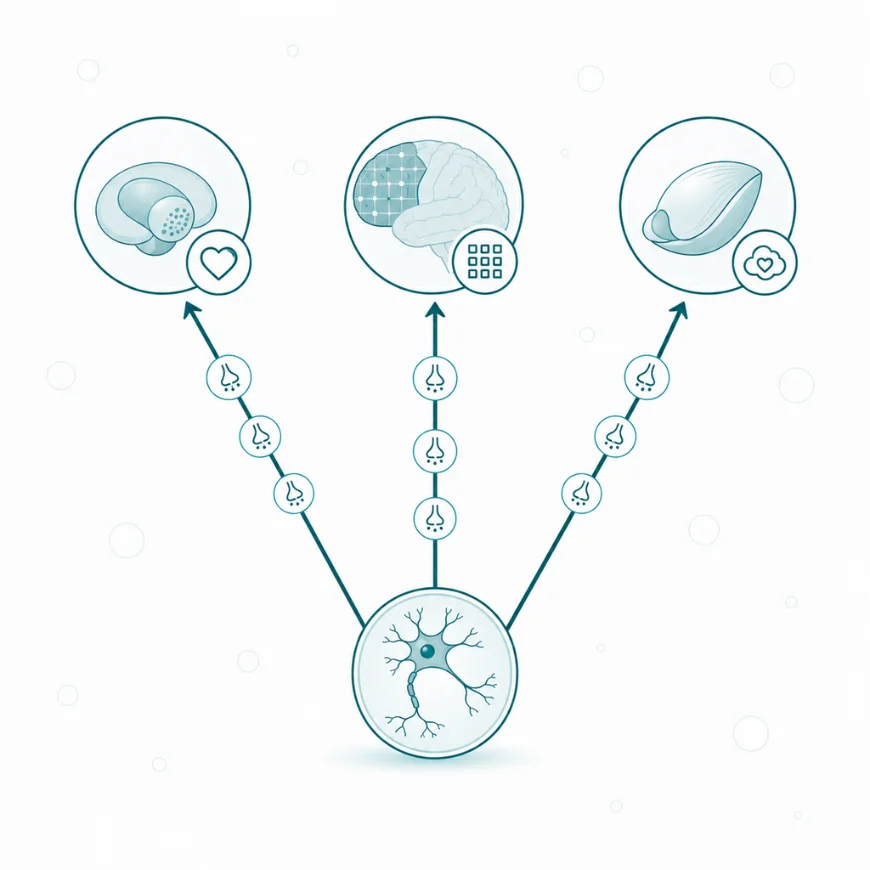
Z brzusznego pola nakrywki wychodzą trzy szlaki — do prążkowia brzusznego, kory przedczołowej i układu limbicznego — mają one różne funkcje.
2.3. Neurochemia obszaru
Neurony dopaminowe VTA wytwarzają dopaminę z aminokwasu tyrozyny. Pierwszy etap syntezy katalizuje hydroksylaza tyrozynowa, która przekształca tyrozynę w lewodopę, bezpośredni prekursor dopaminy.
Uwalnianie dopaminy podlega samoregulacji przez autoreceptory D2, czyli receptory dopaminowe typu D2 położone na samych neuronach dopaminowych [27]. Są to receptory metabotropowe o działaniu hamującym, sprzężone z białkami G typu Gi/o. Występują zarówno na ciele komórki i dendrytach, jak i na zakończeniach aksonów [27]. Pobudzone przez dopaminę regulują częstotliwość wyładowań neuronu oraz syntezę, uwalnianie i wychwyt zwrotny dopaminy [27]. Neuron dopaminowy ogranicza w ten sposób własną aktywność, gdy stężenie dopaminy w jego otoczeniu rośnie.
Neurony dopaminowe VTA wyładowują się w dwóch trybach: tonicznym, o małej częstotliwości, oraz fazowym, w postaci szybkich salw impulsów [28]. Różnicę między trybami zbadano metodą optogenetyczną, czyli przez sterowanie wybranymi neuronami za pomocą światła po wprowadzeniu do nich białek światłoczułych. U myszy tylko pobudzenie fazowe wywoływało krótkotrwałe wzrosty stężenia dopaminy o wielkości nieosiągalnej przy dłuższej stymulacji o małej częstotliwości [29]. Tryb wyładowań decyduje więc o tym, jaki sygnał dopaminowy otrzyma struktura docelowa.
Pracę neuronów dopaminowych kształtują lokalne neurony GABA-ergiczne VTA, które je hamują [3]. Zmiana aktywności tych neuronów hamujących zmienia więc pośrednio wyładowania neuronów dopaminowych. Glutaminian uwalniany razem z dopaminą działa przez receptory jonotropowe, czyli kanały jonowe otwierane przez przekaźnik. W przyśrodkowej części powłoki jądra półleżącego takie zakończenia pobudzały interneurony cholinergiczne do wyładowań salwami w skrawkach mózgu [13]. Jeden neuron VTA może więc wywołać w strukturze docelowej zarówno szybką odpowiedź glutaminianową, jak i wolniejszą modulację dopaminową.
2.4. Funkcje brzusznego pola nakrywki
VTA uczestniczy w pięciu grupach czynności: w uczeniu się na podstawie błędu przewidywania nagrody, w motywacji do wysiłku, w przetwarzaniu bodźców przykrych, w pamięci i w podtrzymywaniu czuwania. Dane przyczynowe, oparte na pobudzaniu lub hamowaniu wybranych neuronów, pochodzą z badań na gryzoniach i małpach [29, 30]. U człowieka pracę VTA ocenia się głównie w badaniach obrazowych [7].
2.4.1. Błąd przewidywania nagrody
VTA dostarcza sygnału, który pozwala uczyć się, jakie bodźce i działania zapowiadają nagrodę. U naczelnych wyładowania neuronów dopaminowych śródmózgowia sygnalizowały zmiany i błędy w przewidywaniu przyszłych nagród [31]. W. Schultz, P. Dayan i P. R. Montague opisali w 1997 roku ten sygnał jako neuronalne podłoże przewidywania nagrody i powiązali go z ilościowymi teoriami uczenia się [31]. Błąd przewidywania nagrody to różnica między nagrodą otrzymaną a oczekiwaną. Gdy nagroda przewyższa oczekiwanie, błąd jest dodatni, a gdy jest od niego mniejsza, błąd jest ujemny.
U człowieka odpowiedź VTA zmierzono w czynnościowym rezonansie magnetycznym (ang. functional magnetic resonance imaging, fMRI), który rejestruje zmiany utlenowania krwi towarzyszące aktywności neuronów. Badanie wykonano techniką dostosowaną do obrazowania pnia mózgu [7]. Przy nagrodach pierwotnych sygnał VTA odzwierciedlał dodatni błąd przewidywania, a prążkowie brzuszne błąd dodatni i ujemny [7]. Zdarzenia bez nagrody nie wywoływały istotnej odpowiedzi VTA [7].
Związek przyczynowy potwierdziły badania optogenetyczne. U myszy fazowe pobudzenie neuronów dopaminowych VTA wystarczało do wytworzenia warunkowej preferencji miejsca, w którym zwierzę otrzymywało stymulację [29]. Szczury wykonywały intensywnie czynność, która wyzwalała optyczne pobudzenie ich neuronów dopaminowych VTA [32]. Samostymulację elektryczną mózgu opisali u szczurów już w 1954 roku J. Olds i P. Milner, drażniąc okolicę przegrody i inne obszary [33]. Sygnał dopaminowy VTA działa zatem jak sygnał uczący, który zmienia wartość przypisaną bodźcom, a nie jak prosty sygnał otrzymania nagrody.
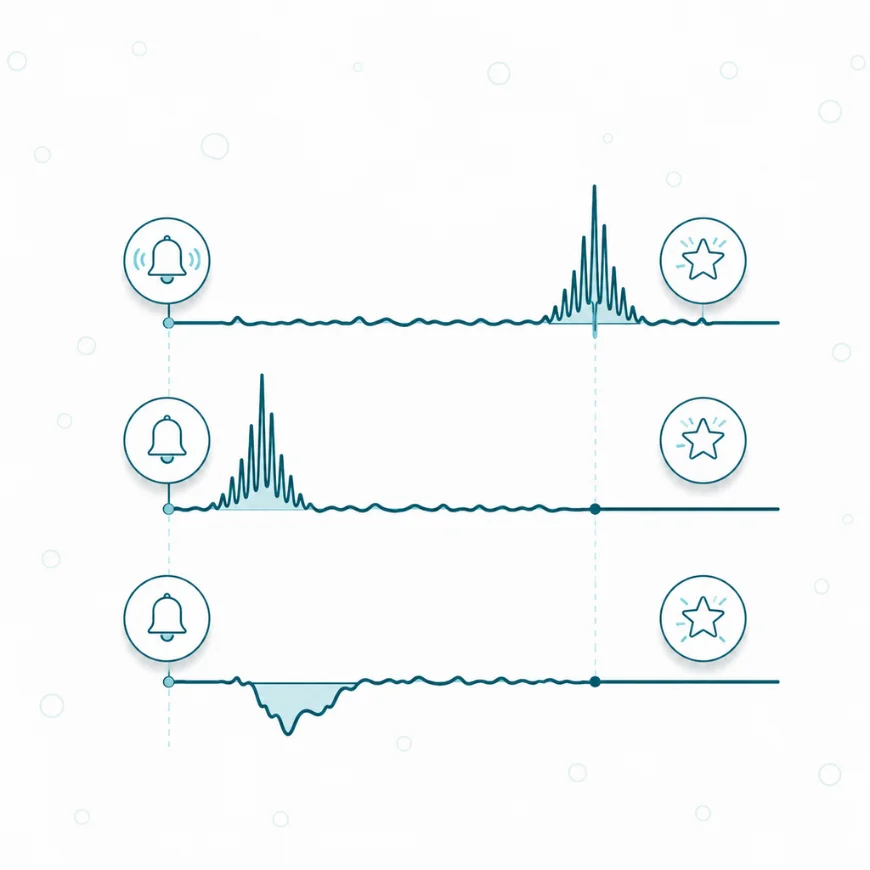
Wyładowanie koduje błąd predykcji nagrody: przesuwa się z nagrody na sygnał ją zapowiadający, a przy jej braku spada poniżej linii podstawowej.
2.4.2. Motywacja i wysiłek
Dopamina z VTA uwalniana w jądrze półleżącym uczestniczy w motywacji, ale w węższym sensie, niż sugeruje określenie „neurony nagrody”. Według przeglądu J. D. Salamone i M. Correy nazywanie neuronów dopaminowych neuronami nagrody jest nadmiernym uogólnieniem [34]. Dopamina jądra półleżącego nie pośredniczy w podstawowej motywacji pokarmowej ani w apetycie [34]. Uczestniczy natomiast w aktywacji zachowania, podejmowaniu wysiłku, zbliżaniu się do celu i podtrzymywaniu zaangażowania w zadanie [34]. Procesy te dotyczą zarówno dążenia do nagrody, jak i unikania bodźców przykrych [34].
K. C. Berridge i T. E. Robinson rozróżniają dwa składniki nagrody [35]. Pierwszym jest „chcenie”, czyli motywacyjna istotność bodźca, a drugim „lubienie”, czyli przyjemność odczuwana przy konsumpcji. Chcenie wytwarzają rozległe układy obejmujące dopaminę mezolimbiczną. Lubienie zależy od mniejszych, łatwiej zaburzanych układów, które nie wymagają dopaminy [35]. Na tym rozróżnieniu opiera się teoria uwrażliwienia motywacyjnego, ogłoszona w 1993 roku [36]. W ujęciu tych autorów aktywność dopaminowa VTA określa, jak silnie organizm dąży do celu, a nie to, jak przyjemne będzie jego osiągnięcie.
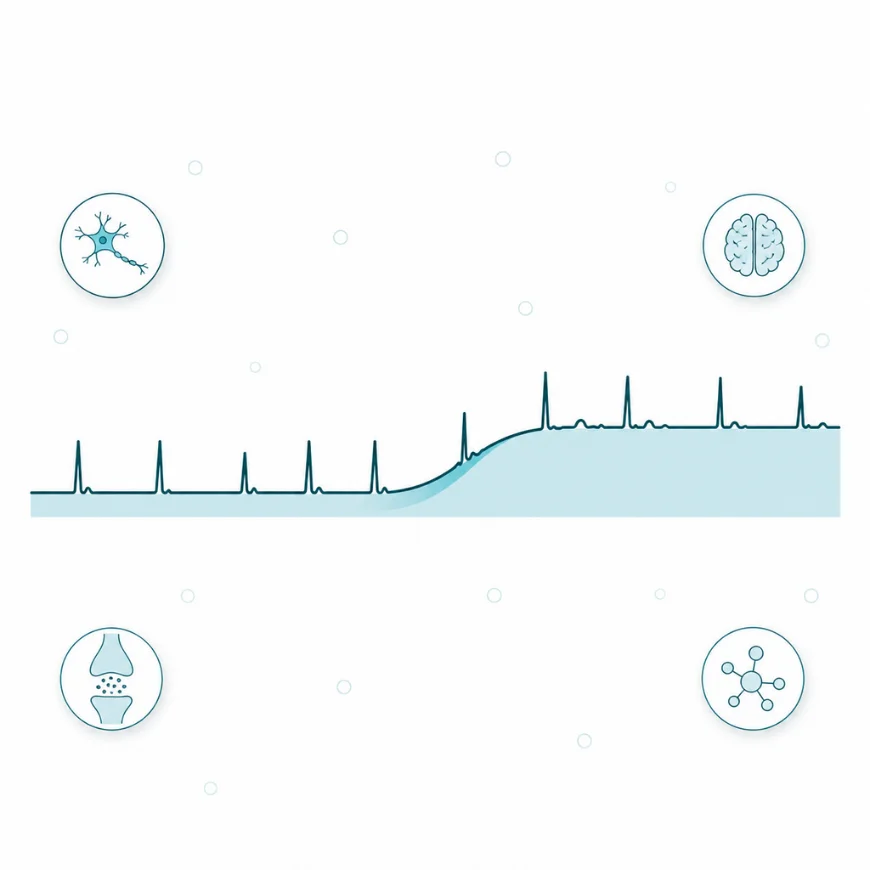
Sygnał toniczny i fazowy są niezależne. Pierwszy ustawia tło motywacyjne, drugi niesie informację o zdarzeniu.
2.4.3. Bodźce przykre
Neurony dopaminowe VTA reagują nie tylko na nagrody. Większość z nich jest pobudzana przez nagrodę i zapowiadające ją bodźce, a hamowana przez bodźce przykre [37]. Część neuronów dopaminowych jest jednak szybko i silnie pobudzana przez bodźce przykre. Zwiększa to fazowo stężenie dopaminy w przyśrodkowej korze przedczołowej i jądrze półleżącym [37]. Autorzy przeglądu tłumaczą tę pozorną sprzeczność niejednorodnością VTA.
Niejednorodność ta ma podłoże anatomiczne. U myszy bodziec przykry zmieniał synapsy pobudzające na neuronach dopaminowych zasilających przyśrodkową korę przedczołową [26]. Synapsy neuronów zasilających boczną część powłoki jądra półleżącego zmieniały się pod wpływem bodźców zarówno nagradzających, jak i przykrych. Autorzy wiążą tę podgrupę z kodowaniem istotności bodźca, niezależnie od jego znaku [26].
Hamowanie neuronów dopaminowych przez bodźce przykre przekazuje w dużej mierze RMTg. Neurony RMTg szczura były pobudzane przez bodźce przykre różnych zmysłów, a hamowane przez bodźce związane z nagrodą [24]. Pobudzał je też brak oczekiwanej nagrody [17]. Zniszczenie RMTg znacznie osłabiało hamowanie neuronów VTA wywołane bodźcami przykrymi i upośledzało uczenie się unikania miejsc z nimi kojarzonych [24]. VTA koduje więc wartość bodźców w obu kierunkach, a wynik zależy od tego, która podgrupa neuronów i które wejście zostały pobudzone.
2.4.4. Pamięć robocza i utrwalanie pamięci
Dopamina z VTA wpływa na dwa rodzaje pamięci: na pamięć roboczą przez korę przedczołową i na pamięć długotrwałą przez hipokamp. Pamięć robocza to krótkotrwałe przechowywanie informacji potrzebnej do bieżącego zadania. U małp neurony kory przedczołowej utrzymują w tym czasie aktywność związaną z konkretnym położeniem bodźca, zwaną polem pamięciowym [30]. Antagoniści receptora dopaminowego D1 podawani metodą jonoforezy, czyli prądem elektrycznym w bezpośrednie otoczenie neuronu, wybiórczo wzmacniali pola pamięciowe tych neuronów [30]. Autorzy uznali, że dopamina przez receptory D1 bezpośrednio moduluje dopływ sygnałów pobudzających do neuronów kory przedczołowej.
Według modelu pętli hipokamp–VTA hipokamp wykrywa informację nową, niezapisaną jeszcze w pamięci długotrwałej [23]. Sygnał nowości dociera przez podkładkę, jądro półleżące i gałkę bladą brzuszną do VTA. Dopamina uwalniana następnie w hipokampie ułatwia długotrwałe wzmocnienie synaptyczne i uczenie się [23].
U ludzi w badaniu fMRI wskazówki zapowiadające wysoką nagrodę pieniężną za zapamiętanie sceny aktywowały VTA, jądro półleżące i hipokamp, ale tylko przed scenami później zapamiętanymi [38]. Badani częściej pamiętali po 24 godzinach sceny poprzedzone wskazówką wysokiej nagrody [38]. Silniejsza korelacja aktywności hipokampu i VTA wiązała się z lepszym zapamiętaniem następnej sceny [38]. Aktywność VTA przed zapamiętywaniem przewidywała więc, czy informacja zostanie utrwalona.
2.4.5. Czuwanie
Neurony dopaminowe VTA uczestniczą w podtrzymywaniu czuwania, co opisano w badaniu na myszach [39]. Ich aktywność, rejestrowana fotometrią wapniową, zmieniała się wraz ze stanem snu i czuwania. Hamowano je metodą chemogenetyczną, czyli przez syntetyczne receptory pobudzane podanym związkiem, oraz metodą optogenetyczną. Zahamowanie tych neuronów tłumiło czuwanie, także w obecności bodźców istotnych dla zwierzęcia [39]. Przed zaśnięciem nasilało ono budowanie gniazda, czyli zachowanie przygotowujące do snu.
Pobudzenie optogenetyczne wywoływało i podtrzymywało czuwanie oraz tłumiło sen i budowanie gniazda [39]. Poszczególne projekcje neuronów dopaminowych VTA w różny sposób wpływały na stan pobudzenia [39]. Wyniki dotyczą myszy, dlatego udział VTA w rytmie snu i czuwania człowieka pozostaje wnioskiem z modelu zwierzęcego.
3. Uszkodzenie i patologia
3.1. Następstwa uszkodzenia
Następstwa uszkodzenia VTA u człowieka opisano pośrednio: przez uszkodzenie dróg z niego wychodzących w chorobach naczyniowych i zwyrodnieniowych oraz przez skutki stymulacji elektrycznej tej okolicy [25, 40, 41]. Uzupełniają je doświadczenia na małpach, w których usuwano dopaminę z obszaru docelowego drogi mezokortykalnej [42].
W badaniu przekrojowym 213 chorych z chorobą małych naczyń mózgu, czyli z uszkodzeniem drobnych tętnic i włośniczek, odtworzono w obrazowaniu dyfuzyjnym pięć dróg wychodzących z VTA [25]. Drogi te łączyły VTA z trzema obszarami kory przedczołowej, przednią częścią zakrętu obręczy i jądrem półleżącym. Większe uszkodzenie dróg mezokortykalnych wiązało się z wolniejszym przetwarzaniem informacji, gorszą funkcją wykonawczą i pamięcią, apatią oraz zaburzeniami chodu [25]. Największy udział we wspólnym czynniku tych objawów miała droga do przedniej części zakrętu obręczy [25].
W chorobie Parkinsona apatia, czyli ubytek motywacji do działania, wiąże się z uszkodzeniem kilku układów przekaźnikowych. Oceniano je w pozytonowej tomografii emisyjnej (ang. positron emission tomography, PET), która obrazuje rozmieszczenie w mózgu cząsteczek znakowanych izotopem. W badaniu 30 nieleczonych chorych z niedawno rozpoznaną chorobą osoby z apatią miały, w porównaniu z osobami zdrowymi, obustronne uszkodzenie dopaminowe w obrębie istoty czarnej i VTA [40]. Nasilenie apatii wiązało się jednak głównie z uszkodzeniem układu serotoninowego w prawym jądrze ogoniastym i korze oczodołowo-czołowej [40].
U makaków rezusów miejscowe zubożenie w dopaminę grzbietowo-bocznej kory przedczołowej, czyli obszaru docelowego drogi mezokortykalnej, upośledzało zadanie przestrzenne z odroczoną odpowiedzią naprzemienną. Zaburzenie było prawie tak silne jak po chirurgicznym usunięciu tego obszaru kory [42]. Ustępowało po podaniu agonistów dopaminy, lewodopy i apomorfiny [42].
Głęboką stymulację elektryczną okolicy VTA zastosowano w leczeniu opornego na leki przewlekłego klasterowego bólu głowy [41]. W serii 18 chorych po średnio 14 miesiącach głębokiej stymulacji mózgu liczba napadów zmniejszyła się średnio z pięciu do dwóch na dobę, a nasilenie lęku zmalało [41]. Wyniki testów funkcji poznawczych, nastroju i apatii nie zmieniły się istotnie [41]. W opisanych badaniach uszkodzenie dróg wychodzących z VTA wiązało się więc z apatią i zaburzeniami poznawczymi, a stymulacja tej okolicy nie pogarszała funkcji poznawczych.
3.2. Udział brzusznego pola nakrywki w chorobach
Zmiany w pracy VTA i jego dróg opisano w uzależnieniu, schizofrenii, depresji, zespole nadpobudliwości psychoruchowej z deficytem uwagi i w chorobie Parkinsona. Siła i rodzaj dowodów różnią się między tymi chorobami [8, 43, 44].
W uzależnieniu VTA jest punktem wyjścia drogi, na którą działają substancje uzależniające z różnych klas. Zbadano to metodą mikrodializy, czyli pobierania płynu międzykomórkowego przez cienką sondę wprowadzoną do tkanki. U swobodnie poruszających się szczurów opioidy, etanol, nikotyna i psychostymulanty zwiększały pozakomórkowe stężenie dopaminy, silniej w jądrze półleżącym niż w grzbietowej części jądra ogoniastego [45]. Leki bez potencjału uzależniającego, między innymi przeciwdepresyjna imipramina, nie zmieniały tego stężenia [45].
Poszczególne klasy substancji działają na VTA różnymi mechanizmami. W skrawkach mózgu szczura opioidy nie wpływały bezpośrednio na neurony dopaminowe, lecz hiperpolaryzowały lokalne neurony GABA-ergiczne przez receptor μ [46]. Zmniejszało to hamujący dopływ GABA do neuronów dopaminowych, czyli je odhamowywało [46]. U myszy jednorazowe podanie kokainy, substancji z klasy psychostymulantów, wywoływało długotrwałe wzmocnienie synaps pobudzających na neuronach dopaminowych VTA [47]. Wzmocnieniu ulegały prądy receptorów AMPA, czyli receptorów kwasu α-amino-3-hydroksy-5-metylo-4-izoksazolopropionowego, które przewodzą szybkie pobudzenie glutaminianowe. Zmiana utrzymywała się 5 dni, ale nie 10, i nie powstawała przy jednoczesnym zahamowaniu receptorów NMDA [47]. Receptory NMDA, czyli receptory N-metylo-D-asparaginianu, uruchamiają trwałe zmiany siły synaps. Kokaina zmieniała też synapsy na neuronach dopaminowych zasilających przyśrodkową i boczną część powłoki jądra półleżącego [26]. U szczurów podanie oreksyny A bezpośrednio do VTA przywracało wygaszone wcześniej poszukiwanie substancji [22].
Teoria uwrażliwienia motywacyjnego zakłada, że u podatnych osób substancje uzależniające trwale uwrażliwiają układ dopaminy mezolimbicznej [35]. Wzmacnia to „chcenie” substancji, zwłaszcza wyzwalane przez kojarzone z nią bodźce, bez wzrostu „lubienia” [35]. Dane u ludzi są mniej jednolite niż u zwierząt. W badaniach obrazowych psychostymulanty wyraźnie zwiększały stężenie dopaminy w prążkowiu, dla alkoholu dowody były częściowe, a dla konopi i opioidów słabe albo żadne [44]. Dostępność receptorów dopaminowych i uwalnianie dopaminy w prążkowiu były zmniejszone w uzależnieniu od psychostymulantów i alkoholu, lecz nie od opioidów, nikotyny i konopi [44]. Według autorów przeglądu ujęcie uzależnienia jako zaburzenia układu dopaminowego nie przyniosło dotąd nowych metod leczenia [44].
W schizofrenii zmiany dotyczą przede wszystkim presynaptycznej funkcji dopaminowej w prążkowiu, które otrzymuje włókna z VTA i istoty czarnej. Hipoteza dopaminowa schizofrenii przeszła trzy wersje [48]. Pierwsza zakładała nadmiar dopaminy, druga nadmiar podkorowy z niedoborem w korze przedczołowej [48]. Wersja III zakłada, że różne czynniki ryzyka zbiegają się na zwiększonej presynaptycznej funkcji dopaminowej w prążkowiu. Psychoza wynika w tym ujęciu z przypisywania istotności bodźcom, które jej nie mają [48]. Obrazowanie in vivo konsekwentnie wykazywało zwiększoną zdolność syntezy i uwalniania dopaminy w prążkowiu chorych [43]. Niewiele wariantów genetycznych ryzyka dotyczy jednak bezpośrednio układu dopaminowego [43].
W badaniu 74 chorych na schizofrenię i 80 osób zdrowych oceniono rezonansem magnetycznym zawartość neuromelaniny, barwnika gromadzonego w neuronach dopaminowych i uznawanego za znacznik ich długotrwałej aktywności [9]. Sygnał w obszarze istoty czarnej i VTA był u chorych wyższy, przy wielkości efektu 0,38 [9]. Różnica była największa w części przyśrodkowej i brzusznej, zasilającej obszary prążkowia unerwiane przez korę limbiczną i kojarzeniową [9]. W podgrupie 38 chorych zdolność syntezy dopaminy w śródmózgowiu korelowała z jej syntezą w prążkowiu, przy współczynniku korelacji 0,71 [9]. Obecne leki przeciwpsychotyczne działają według autorów hipotezy wersji III poniżej miejsca pierwotnego zaburzenia [48].
W depresji udział VTA badano głównie w modelach zwierzęcych, które dały wyniki pozornie sprzeczne. U gryzoni poddanych przewlekłemu łagodnemu stresowi zahamowanie neuronów dopaminowych śródmózgowia wywoływało objawy przypominające depresję, a ich pobudzenie te objawy znosiło [49]. U myszy poddanych powtarzanej porażce społecznej fazowe pobudzenie neuronów dopaminowych VTA zwiększało natomiast podatność na takie objawy [28]. Efekt zależał od drogi. Podatność zwiększało fazowe pobudzenie neuronów zasilających jądro półleżące, ale także zahamowanie neuronów zasilających korę przedczołową [28].
U ludzi z depresją i anhedonią, czyli utratą zdolności odczuwania przyjemności, prążkowie brzuszne słabiej reaguje na wskazówki zapowiadające nagrodę [50]. Zmiana ta utrzymuje się po skutecznym leczeniu. Opisano ją również u dzieci rodziców chorych na depresję, które same nie chorowały, a niektóre takie zmiany przewidywały pierwszy epizod choroby [50]. W badaniu z randomizacją obejmującym 151 chorych z depresją lekooporną dodano do leczenia przeciwdepresyjnego pramipeksol, lek pobudzający receptory dopaminowe [51]. W 12. tygodniu obserwacji wynik skali samooceny objawów obniżył się średnio o 6,4 punktu, wobec 2,4 punktu w grupie placebo [51]. Z powodu działań niepożądanych leczenie przerwało 20% chorych otrzymujących pramipeksol i 5% otrzymujących placebo [51]. Celem głębokiej stymulacji mózgu badanej w depresji lekoopornej jest też przyśrodkowy pęczek przodomózgowia, szlak istoty białej biegnący od VTA. Według przeglądu z 2022 roku wyniki są obiecujące, lecz oparte na zbyt małej liczbie chorych [52].
W zespole nadpobudliwości psychoruchowej z deficytem uwagi (ang. attention-deficit/hyperactivity disorder, ADHD) zmiany opisano w drodze mezolimbicznej, a także w jądrze ogoniastym [53]. W badaniu PET 53 nieleczonych dorosłych z ADHD i 44 osób zdrowych chorzy mieli mniej transportera dopaminy i receptorów dopaminowych typu D2 i D3 (D2/D3) w jądrze półleżącym i w śródmózgowiu [53]. Mniejsza dostępność receptorów D2/D3 w tych obszarach wiązała się z nasileniem zaburzeń uwagi [53].
W chorobie Parkinsona część neuronów dopaminowych VTA jest względnie odporna na zwyrodnienie, a większą odporność wykazuje podgrupa neuronów dopaminowych śródmózgowia zawierająca VGLUT2 [54]. U części chorych leczonych lekami dopaminergicznymi rozwija się zespół rozregulowania dopaminowego, przypominający uzależnienie [36].
Choroby, w których opisano udział VTA, różnią się rodzajem zmiany i rodzajem danych, na których opiera się jej opis [9, 28, 43–45, 50, 53, 54].
| Choroba | Zmiana w układzie VTA | Główne źródło danych |
| Uzależnienie | wzrost dopaminy w jądrze półleżącym, plastyczność synaps neuronów dopaminowych | mikrodializa i elektrofizjologia u gryzoni, PET u ludzi |
| Schizofrenia | zwiększona synteza i uwalnianie dopaminy w prążkowiu, wyższy sygnał neuromelaniny w śródmózgowiu | PET i rezonans magnetyczny u ludzi |
| Depresja | zmieniona aktywność fazowa neuronów dopaminowych, słabsza odpowiedź prążkowia brzusznego na nagrodę | optogenetyka u gryzoni, fMRI u ludzi |
| ADHD | mniej transportera dopaminy i receptorów D2/D3 w drodze mezolimbicznej | PET u ludzi |
| Choroba Parkinsona | względna odporność części neuronów dopaminowych na zwyrodnienie | modele przedkliniczne i dane kliniczne |
Dane obrazowe u ludzi opisują więc głównie stan zakończeń dopaminowych w prążkowiu, a mechanizmy komórkowe w samym VTA poznano przede wszystkim w modelach zwierzęcych.
3.3. Ocena i obrazowanie
Stan VTA u człowieka ocenia się metodami obrazowymi stosowanymi w badaniach naukowych. Każda z nich mierzy inną cechę układu dopaminowego albo dróg wychodzących z VTA.
PET z rakloprydem znakowanym węglem-11 mierzy dostępność receptorów D2/D3, czyli tę ich część, która może związać znacznik. Znacznik ten konkuruje z dopaminą własną organizmu o wiązanie z receptorem [55]. Spadek wiązania może więc oznaczać zarówno więcej dopaminy, jak i mniej receptorów, a rozstrzygnięcie wymaga dodatkowego pomiaru [55]. Transporter dopaminy obrazuje się w PET za pomocą innego znacznika, wiążącego się z tym białkiem [53]. PET z fluorodopą znakowaną fluorem-18 mierzy zdolność syntezy dopaminy w śródmózgowiu i prążkowiu [9].
Rezonans magnetyczny czuły na neuromelaninę pokazuje zawartość barwnika w neuronach dopaminowych śródmózgowia [9]. W badaniu schizofrenii zarówno ten pomiar, jak i synteza dopaminy w śródmózgowiu dotyczyły wspólnie istoty czarnej i VTA [9]. Aktywność samego VTA rejestrowano w fMRI techniką dostosowaną do obrazowania pnia mózgu [7]. Atlas probabilistyczny z danych 7 T pozwala wyznaczyć obszar VTA u poszczególnych osób [11]. Obrazowanie dyfuzyjne ocenia natomiast integralność dróg wychodzących z VTA, a nie samych neuronów [25].
Metody te różnią się mierzoną cechą i głównym ograniczeniem interpretacji [1, 9, 25, 55].
| Metoda | Co mierzy | Główne ograniczenie |
| PET z rakloprydem | dostępność receptorów D2/D3 w prążkowiu | wynik zależy od stężenia dopaminy i od liczby receptorów |
| PET z fluorodopą | zdolność syntezy dopaminy | sygnał śródmózgowia wspólny dla istoty czarnej i VTA |
| Rezonans czuły na neuromelaninę | zawartość barwnika w neuronach dopaminowych | sygnał wspólny dla istoty czarnej i VTA |
| fMRI | zmiany utlenowania krwi w VTA | brak wyraźnych granic obszaru, sygnał pośredni |
| Obrazowanie dyfuzyjne | integralność dróg wychodzących z VTA | ocena włókien, a nie neuronów |
Żadna z tych metod nie mierzy wprost wyładowań neuronów VTA, dlatego wyniki badań obrazowych opisują skutki jego pracy w tkankach docelowych albo sygnał pośredni.
3.4. Czynniki wpływające na stan struktury
Na pracę neuronów VTA wpływa stres. Ostry i powtarzany stres zmienia aktywność neuronów dopaminowych VTA, a rodzaj zmiany zależy od podgrupy neuronów i jej projekcji [37]. U myszy powtarzana porażka społeczna zwiększała fazowe wyładowania neuronów dopaminowych VTA wyłącznie u zwierząt podatnych, bez zmian u odpornych [28].
Niedobór snu zmienia receptory w strukturach docelowych VTA. U 20 zdrowych osób jedna noc bez snu zmniejszała dostępność receptorów D2/D3 w prążkowiu brzusznym, co wiązało się z mniejszą czujnością i większą sennością [55]. Metylofenidat, lek zwiększający stężenie dopaminy przez hamowanie jej transportera, podnosił je w podobnym stopniu po nocy przespanej i nieprzespanej [55]. Autorzy uznali, że wynik przemawia za zmniejszeniem liczby receptorów, a nie za zwiększonym uwalnianiem dopaminy [55].
Liczba neuronów dopaminowych śródmózgowia zależy też od warunków rozwoju płodowego. U makaków rezusów napromienianych w życiu płodowym, w okresie powstawania tych neuronów, całkowita liczba neuronów z hydroksylazą tyrozynową w istocie czarnej i VTA była w wieku dorosłym średnio o 33% mniejsza niż u zwierząt kontrolnych [15]. Wielkość ciał pozostałych neuronów nie różniła się między grupami [15]. U szczurów narażonych w życiu płodowym na nikotynę nie stwierdzono w wieku dorosłym zmian objętości ani liczby komórek w części zbitej istoty czarnej i w VTA [56]. Nie różniła się też liczba synaps pobudzających i hamujących w VTA [56].
Czynniki modyfikowalne, takie jak stres i niedobór snu, zmieniają więc głównie aktywność neuronów i receptory w strukturach docelowych. Czynniki rozwojowe mogą natomiast trwale zmienić liczbę neuronów. Dane te pochodzą w większości z modeli zwierzęcych, a u ludzi dotyczą receptorów w prążkowiu, dlatego nie pozwalają ocenić, w jakim stopniu te same czynniki zmieniają budowę VTA człowieka.
4. Na co warto zwrócić uwagę
Określenie dopaminy jako „hormonu przyjemności” łączy dwa nieporozumienia. Dopamina uwalniana z zakończeń neuronów VTA działa jako przekaźnik w obrębie mózgu, a nie jako hormon krążący we krwi. Jej działanie łączy się przede wszystkim z dążeniem do nagrody i z uczeniem się, a przyjemność konsumpcji zależy od innych układów [34, 35]. Część neuronów dopaminowych VTA reaguje ponadto pobudzeniem na bodźce przykre [37]. Wzrost aktywności VTA nie oznacza więc stanu przyjemności, lecz zmianę oceny wartości i istotności bodźców.
VTA nie jest jednorodnym ośrodkiem dopaminowym, dlatego doniesienie o „pobudzeniu VTA” nie mówi, która populacja neuronów była aktywna. Odsetki poszczególnych populacji pochodzą ponadto z różnych metod i gatunków [6, 13]. Nie da się ich wprost zsumować ani przenieść na człowieka.
Twierdzenie, że każda substancja uzależniająca działa przez wyrzut dopaminy z VTA, przenosi na ludzi wynik badań na szczurach. U ludzi zależność ta jest wyraźna tylko dla części klas substancji [44]. Teoria uwrażliwienia motywacyjnego wiąże przy tym uzależnienie z trwałą zmianą reaktywności układu, a nie z jednorazowym wzrostem stężenia dopaminy [36].
Dane o depresji pochodzą głównie z modeli gryzoni, w których pobudzenie neuronów dopaminowych VTA raz łagodziło, a raz nasilało objawy przypominające depresję [28, 49]. Wynik zależał od modelu stresu, wzorca wyładowań i drogi, której dotyczyła manipulacja [28, 37]. Nie uzasadnia to prostego wniosku, że w depresji dopaminy z VTA jest za mało albo za dużo.
Sygnał fMRI z okolicy VTA wymaga ostrożnej interpretacji. VTA nie ma wyraźnych granic, a ograniczenia techniczne rezonansu magnetycznego utrudniają jego uwidocznienie [1]. Opisane metody obrazowe są narzędziami badawczymi, a ich wyniki dotyczą grup badanych, a nie rozpoznania u pojedynczej osoby. Decyzje dotyczące leczenia zaburzeń, w których uczestniczy VTA, należą do lekarza psychiatry albo neurologa.