1. Informacje wstępne
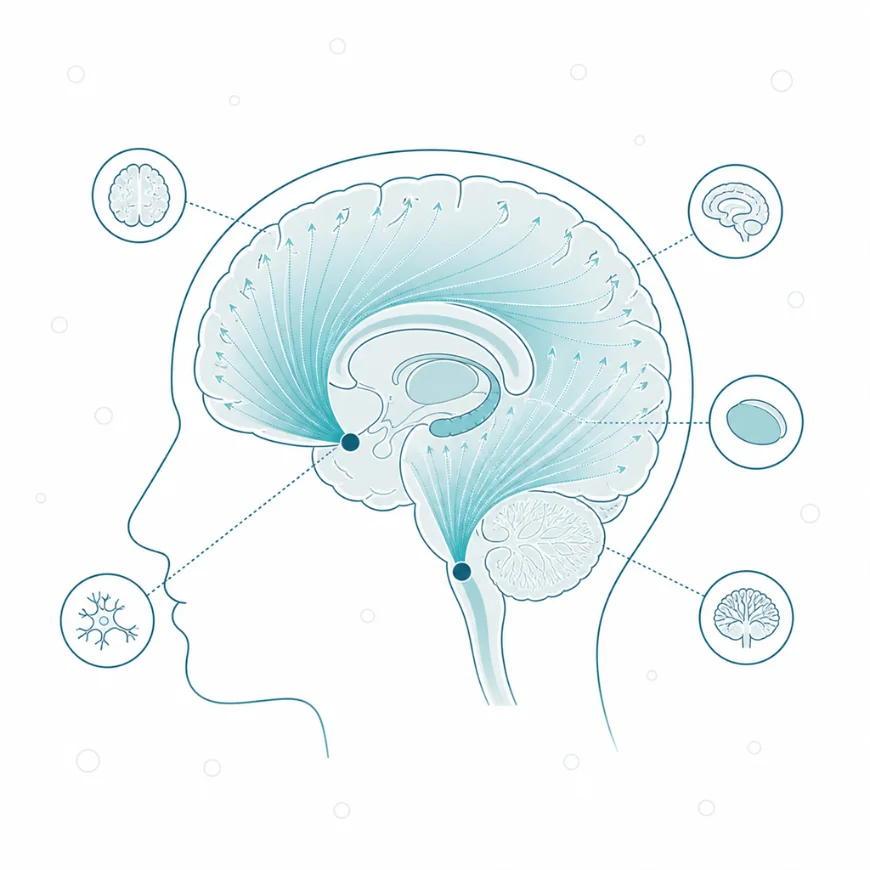
Układ cholinergiczny zaangażowany jest przede wszystkim w regulację wyższych funkcji korowych związanych z pamięcią, uczeniem się, koncentracją i uwagą. W obrębie układu cholinergicznego wyróżnia się neurony cholinergiczne, anatomiczne struktury cholinergiczne, neuroprzekaźnik acetylocholinę oraz receptory cholinergiczne.
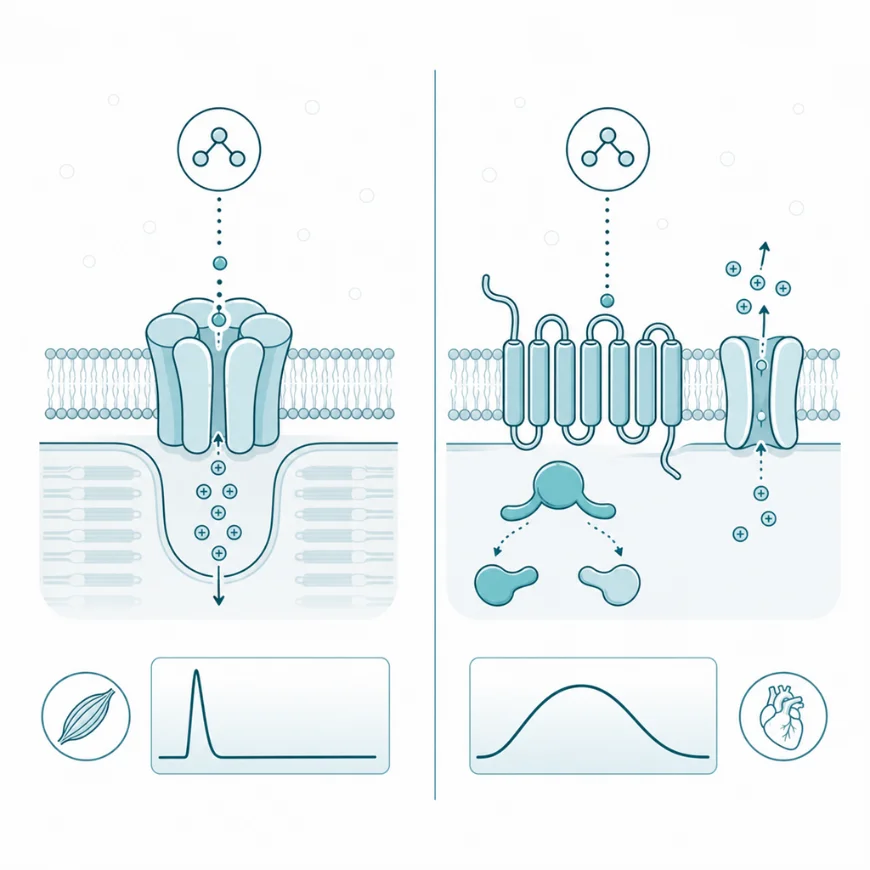
Receptory nikotynowe działają natychmiast, muskarynowe wolniej i przez białko G. Podział ten wyznacza profil działania leków cholinergicznych.
3. Neurotransmisja cholinergiczna
Głównym neuroprzekaźnikiem układu cholinergicznego jest ACh. Substraty do syntezy ACh stanowią cholina i acetylokoenzym A. Cholina powstaje głównie w wyniku hydrolizy i przemian lipidów (np. lecytyny) i jest dostarczana do ośrodkowego UN wraz z krwią. Do cytoplazmy neuronów cholina jest wchłaniana na drodze aktywnego transportu (swoisty transporter choliny zależny od jonów sodu). Warto podkreślić, że im bardziej nasilona jest aktywność układu cholinergicznego, tym więcej choliny jest pobierane do cytoplazmy neuronów. Acetylokoenzym A powstaje z pirogronianu w mitochondriach.
Reakcja syntezy ACh z jej substratów jest katalizowana przez acetylocholinotransferazę (AChT) – enzym obecny w wysokim stężeniu w zakończeniach nerwów cholinergicznych. Powstała acetylocholina jest magazynowana w pęcherzykach synaptycznych. W wyniku depolaryzacji błony presynaptycznej (przewodzenia impulsu nerwowego) dochodzi do uwolnienia ACh (na drodze egzocytozy) do szczeliny synaptycznej. Acetylocholina oddziałuje na receptory muskarynowe i nikotynowe obecne na błonie postsynaptycznej i wzbudza określone szlaki transdukcji sygnału (opisane poniżej). Po odłączeniu od receptora, ACh jest rozkładana do choliny i kwasu octowego przez acetylocholinoesterazę (AChE; enzym obecny w przestrzeni synaptycznej synaps cholinergicznych). Acetylocholina może być również hydrolizowana przez butyrylocholinoesterazę (BChE), enzym obecny głównie w wątrobie, ale także w osoczu krwi, jelitach, sercu, płucach, nerkach czy trzustce. Powstała cholina jest zwrotnie wchłaniana do zakończeń presynaptycznych neuronów. Hamowanie AChE zwiększa koncentrację ACh w synapsie i wyzwala odpowiedź zarówno z receptorów muskarynowych, jak i nikotynowych. Warto podkreślić, że również wiele nieneuronalnych komórek organizmu jest zdolnych do syntezy ACh. Obecność AChT wykazano m.in. w astrocytach, limfocytach T, komórkach skóry, oczu, nerek, wątroby czy łożyska.
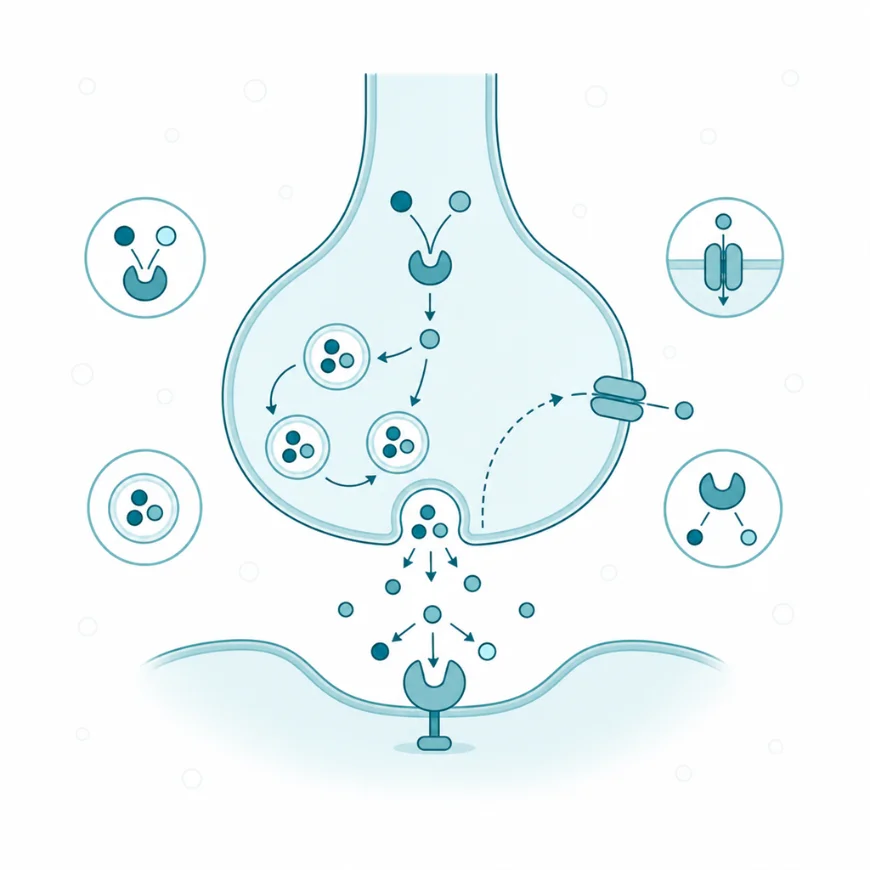
Cały cykl — synteza, uwolnienie i rozkład — zamyka się w szczelinie synaptycznej. Cholina wraca do zakończenia i jest używana ponownie.
4. Receptory cholinergiczne
W układzie cholinergicznym wyróżnia się dwa typy receptorów: muskarynowe oraz nikotynowe. Nazwa receptorów cholinergicznych wywodzi się od ich egzogennych ligandów tj. muskaryny (pobudzającej receptory muskarynowe) oraz nikotyny (pobudzającej receptory nikotynowe). Acetylocholina pobudza oba typy receptorów, tym samym może wykazywać działanie zarówno muskarynowe, jak i nikotynowe.
4.1. Receptory muskarynowe
Receptory muskarynowe (mAChRs) należą do grupy błonowych receptorów metabotropowych sprzężonych z białkiem G. Są one zbudowane z pojedynczego łańcucha aminokwasowego posiadającego siedem transbłonowych domen helikalnych. Koniec aminokwasowy receptora znajduje się na zewnątrz komórki, natomiast koniec karboksylowy wewnątrz komórki. W wyniku przyłączenia liganda (miejsce wiązanie liganda znajduje się w zewnątrzkomórkowej części receptora) dochodzi do zmiany konformacji receptora, a w efekcie aktywowane zostaje białko G. Aktywne białko G oddziałuje z właściwym sobie enzymem efektorowym, który z kolei reguluje stężenie wtórnych przekaźników. Do enzymów efektorowych zaliczane są m.in. cyklaza adenylowa oraz fosfolipaza A2, C i D. Białkami docelowymi dla aktywnego białka G mogą być również kanały potasowe oraz pompy wapniowe.
Dotychczas na podstawie sekwencji aminokwasowej zidentyfikowano pięć typów mAChRs: M1, M2, M3, M4 i M5. W zależności od szlaku transdukcji sygnału wzbudzanego w komórce wyróżnia się dwie grupy mAChRs: 1/ M1, M3 i M5 oraz 2/ M2 i M4. W wyniku związania liganda z receptorami należącymi do pierwszej grupy dochodzi do aktywacji typu Gq białka G. Aktywne białko G aktywuje fosfolipazę C, która odpowiada za hydrolizę obecnego w błonie komórkowej difosforanu fosfatydyloinozytolu. W efekcie powstają dwa wtórne przekaźniki: trifosforan inozytolu (IP3) i diacyloglicerol (DAG). IP3 stymuluje wzrost stężenia jonów wapnia w cytoplazmie. Jony wapnia łączą się z kalmoduliną, a kompleks Ca2+-kalmodulina aktywuje zależne od niego kinazy (CaMK). DAG przy udziale jonów wapnia aktywuje kinazę białkową C (PKC). CaMK oraz PKC fosforylują z kolei białka docelowe. W zależności od rodzaju białka efekt fosforylacji jest różny. Enzymy mogą ulegać aktywacji lub dezaktywacji, kanały białkowe otwarciu lub zamknięciu, a białka wiążące DNA mogą pobudzać lub blokować transkrypcję genów.
W wyniku związania liganda z receptorami należącymi do drugiej grupy dochodzi do aktywacji typu Gi/o białka G. Aktywne białko G hamuje aktywność cyklazy adenylowej, efektem czego jest spadek stężenia cyklicznego adenozynofosforanu (cAMP) w komórce. Obniżenie poziomu cAMP powoduje zwiększenie napływu jonów potasowych do wnętrza komórki. Na skutek zwiększenia poziomu jonów potasu w komórce dochodzi do zamykania kanałów wapniowych (zmniejszona pobudliwość komórki). Dodatkowo, związanie liganda przez mAChRs może również aktywować szlaki transdukcji sygnału związane z aktywacją fosfolipazy A2 i D (przemiany kwasu arachidonowego i choliny).
Receptory muskarynowe są zlokalizowane zarówno w ośrodkowym, jak i obwodowym układzie nerwowym. Ich obecność wykazano również w licznych narządach. Szlaki transdukcji sygnału wynikające z aktywacji mAChRs zaangażowane są przede wszystkim w regulację procesów korowych (zapamiętywanie, uczenie się), ale także regulację procesów autonomicznych, czuciowych czy motorycznych. Lokalizację mAChR oraz efekt fizjologiczny związany z ich aktywacją przedstawiono szczegółowo w Tabeli 1.
Do egzogennych agonistów mAChRs należą m.in. karbachol, betanechol czy metacholina. Z kolei do egzogennych antagonistów mAChRs zaliczyć można m.in. atropinę, hioscynę, tropikamid oraz pirenzepinę.
| Typ receptora | Lokalizacja | Obecność w mózgu (ilość receptorów) |
Procesy |
| M1 |
|