
1. Charakterystyka istoty czarnej
1.1. Definicja i nazewnictwo
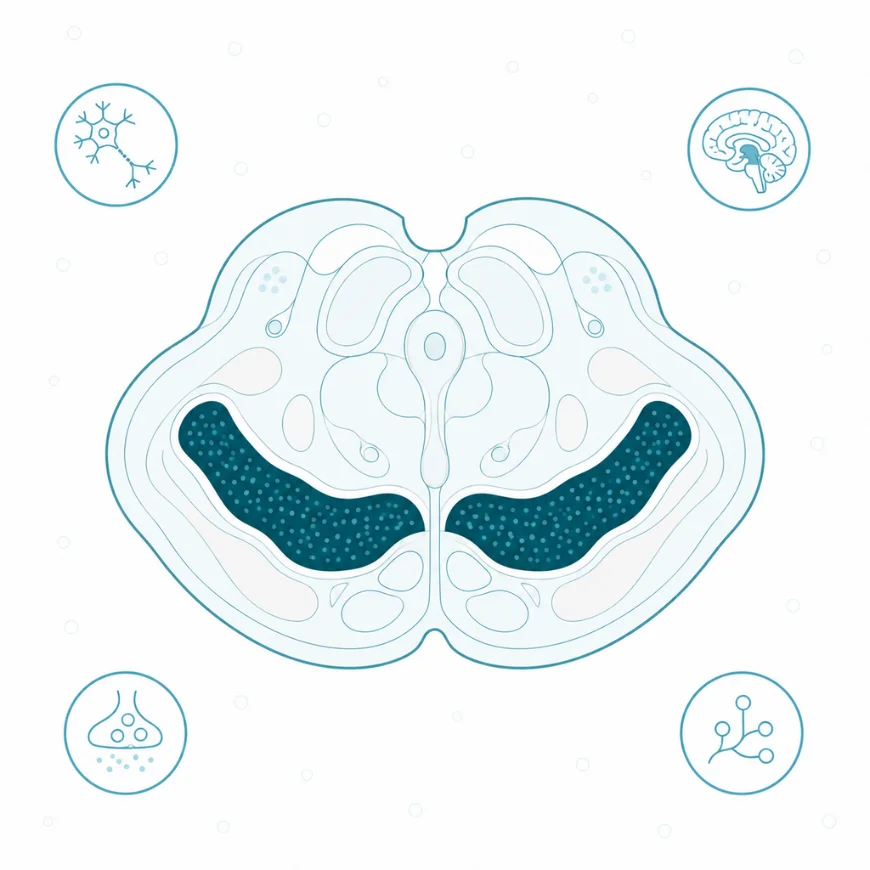
Istota czarna (łac. substantia nigra) to parzyste jądro brzusznej części śródmózgowia, które czynnościowo należy do jąder podstawy [1]. Nazwa pochodzi od ciemnej barwy jądra, widocznej na przekroju pnia mózgu bez powiększenia. Barwę nadaje neuromelanina, czyli barwnik gromadzony w ciałach neuronów dopaminowych [2]. Istota czarna składa się z dwóch części o odmiennej budowie i zadaniach. Część zbita (łac. pars compacta, SNc) zawiera neurony wytwarzające dopaminę, które wysyłają ją do prążkowia. Część siatkowata (łac. pars reticulata, SNr) zawiera neurony hamujące, które przekazują sygnał jąder podstawy do wzgórza i pnia mózgu [1].
W podziale anatomicznym istota czarna jest strukturą śródmózgowia, a nie kresomózgowia, w którym leżą prążkowie i gałka blada. W podziale czynnościowym zalicza się ją do pięciu jąder tworzących obwód jąder podstawy, obok prążkowia, dwóch części gałki bladej i jądra niskowzgórzowego [1]. Neurony dopaminowe SNc tworzą grupę komórek oznaczaną w klasyfikacji histochemicznej symbolem A9 [3]. Stanowią tym samym część układu dopaminergicznego, czyli sieci neuronów mózgu wytwarzających dopaminę.
Istota czarna bywa mylona z brzusznym polem nakrywki, ponieważ oba obszary leżą obok siebie i zawierają neurony dopaminowe. Brzuszne pole nakrywki, oznaczane jako grupa A10, wysyła aksony do innych celów i w chorobie Parkinsona traci mniej komórek [3]. Jego neurony zasilają głównie struktury układu nagrody, związane z motywacją [4]. Kryterium różnicującym jest więc kierunek projekcji i podatność na zwyrodnienie, a nie rodzaj przekaźnika. Istota czarna nie jest też tożsama z jądrami podstawy jako całością, bo stanowi tylko jedno z ich jąder. Określenie „ośrodek choroby Parkinsona” również upraszcza obraz, ponieważ choroba obejmuje także inne struktury i układy przekaźnikowe [5].
Pojęcie istoty czarnej obejmuje obie części wraz ze skupiskami neuronów dopaminowych, które wnikają w część siatkowatą [6]. Nie obejmuje natomiast zakończeń aksonów w prążkowiu, choć to tam dopamina z istoty czarnej działa i tam mierzy się ją w badaniach obrazowych. Uszkodzenie istoty czarnej tłumaczy objawy ruchowe choroby Parkinsona, a samo jądro jest celem kilku metod obrazowania mózgu [5, 6]. Z tego powodu budowa i połączenia istoty czarnej mają bezpośrednie znaczenie kliniczne, odrębne od znaczenia jąder podstawy jako całości.
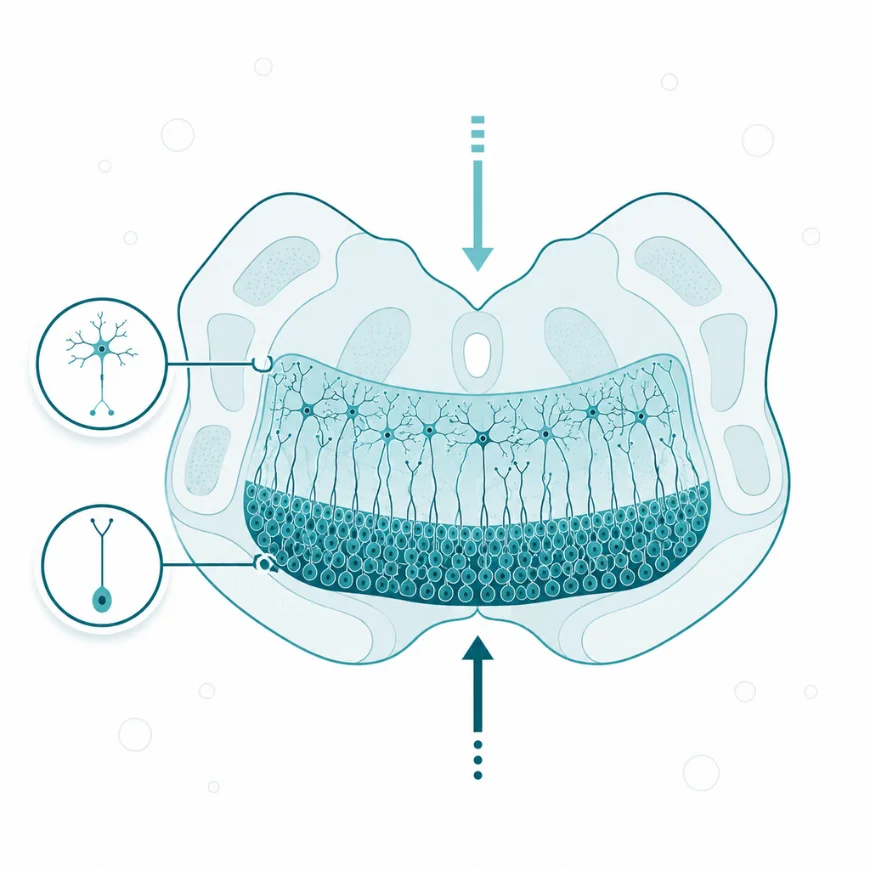
Istota czarna ma dwie części o przeciwnych rolach: zbita wysyła dopaminę do prążkowia, siatkowata jest jądrem wyjściowym układu pozapiramidowego.
1.2. Lokalizacja
Istota czarna leży w brzusznej części śródmózgowia i ciągnie się wzdłuż jego osi długiej po obu stronach linii pośrodkowej. Od strony brzusznej przylega do odnogi mózgu, czyli pasma włókien zstępujących z kory do pnia mózgu i rdzenia kręgowego. Włókna biegnące z prążkowia przebijają odnogę i kończą się w bocznej części SNr [7]. Przyśrodkowo istota czarna graniczy z brzusznym polem nakrywki, drugą grupą neuronów dopaminowych śródmózgowia [3].
Obie części jądra zajmują różne piętra. SNr tworzy warstwę brzuszną, przylegającą do odnogi, a SNc warstwę grzbietową [6]. Granica między nimi nie jest gładka. Pasma neuronów dopaminowych wnikają głęboko w SNr, dlatego na przekroju obie części się zazębiają [6].
Części istoty czarnej różnią się też składem chemicznym, co decyduje o ich wyglądzie w rezonansie magnetycznym. U osób zdrowych SNr zawiera więcej żelaza niż SNc [6]. W sekwencjach czułych na żelazo lepiej widać więc część siatkowatą, a w sekwencjach czułych na neuromelaninę część zbitą [6]. Różne techniki obrazowania wyznaczają zatem granice istoty czarnej nieco inaczej [6].
1.3. Budowa komórkowa i podział
Istota czarna człowieka liczy kilkaset tysięcy neuronów. W badaniu stereologicznym mózgów siedmiu osób z grupy kontrolnej istota czarna zawierała średnio 550 tys. neuronów barwnikowych i 260 tys. neuronów bez barwnika [8]. Neurony barwnikowe należą do populacji dopaminowej, choć nie każdy neuron dopaminowy zawiera neuromelaninę [9].
Pojedynczy neuron dopaminowy SNc ma bardzo rozgałęzione drzewo aksonalne, pozbawione osłonki mielinowej. Według szacunku z modelu komputerowego drzewo to u człowieka tworzy ponad milion synaps, a jego łączna długość przekracza 4 m [10]. Drzewo to jest o rzędy wielkości większe niż u innych typów neuronów [10].
SNc nie jest jednorodna. Barwienie na kalbindynę, białko wiążące wapń obecne we włóknach docierających z prążkowia, dzieli ją na dwa rodzaje przedziałów [11]. Obszar bogaty w kalbindynę nazwano macierzą, a ubogie w nią gniazda nigrosomami. W badaniu mózgów siedmiu osób bez chorób neurologicznych 60% neuronów dopaminowych leżało w macierzy, a 40% w pięciu nigrosomach [11]. Układ ten powtarzał się w kolejnych mózgach, więc może służyć za stały punkt odniesienia przy mapowaniu jądra [11].
Drugi podział opiera się na położeniu neuronów w osi grzbietowo-brzusznej. W SNc wyróżnia się warstwę brzuszną i grzbietową, a każdą z nich dzieli się dalej na trzy obszary, od przyśrodkowego do bocznego [12]. Oba podziały mają znaczenie kliniczne, ponieważ poszczególne przedziały SNc tracą neurony w chorobie Parkinsona w stałej kolejności [12, 13].
1.4. Neuromelanina i żelazo
Neuromelanina to ciemny barwnik, który gromadzi się w ciałach neuronów dopaminowych istoty czarnej i neuronów noradrenergicznych miejsca sinawego [2]. W chorobie Parkinsona ilość barwnika w obu tych strukturach wyraźnie maleje, razem z ubytkiem neuronów, które go zawierają [2].
W zaproponowanym szlaku syntezy punktem wyjścia jest dopamina, która pozostaje w cytoplazmie poza pęcherzykami synaptycznymi. Taka dopamina utlenia się samoistnie do chinonu dopaminy, cząsteczki silnie reagującej z białkami [2]. Chinon przekształca się następnie w barwnik ciemny, a przy obecności aminokwasu cysteiny w jego jaśniejszą odmianę, zawierającą siarkę [2]. W reakcjach tych uczestniczą białka dostarczające cysteiny oraz żelazo [2]. Obecność tyrozynazy, enzymu wytwarzającego melaninę w skórze, w neuronach istoty czarnej pozostaje niepotwierdzona [2].
Tworzenie neuromelaniny chroni neuron, ponieważ usuwa z cytoplazmy nadmiar reaktywnej dopaminy [14]. Barwnik wiąże też metale, a kompleks neuromelaniny z żelazem jest głównym związkiem żelaza w neuronach dopaminowych [14]. Ilość neuromelaniny w istocie czarnej rośnie z wiekiem w przybliżeniu liniowo [15].
Ta sama właściwość może jednak stać się źródłem uszkodzenia. Gdy organella z neuromelaniną gromadzą z wiekiem dużo żelaza i toksyn, mogą zapoczątkować proces zwyrodnienia neuronu [14]. Barwnik uwolniony z obumierających neuronów pobudza mikroglej, a mikroglej uszkadza kolejne neurony, które uwalniają kolejną porcję barwnika [14]. Autorzy przeglądu opisują ten mechanizm jako samonapędzający się, a jego udział w chorobie u człowieka pozostaje hipotezą.
Żelazo związane z neuromelaniną nadaje jej właściwości paramagnetyczne, czyli zdolność wpływania na lokalne pole magnetyczne [15]. Dzięki temu barwnik można uwidocznić u żywego człowieka w rezonansie magnetycznym. Neuromelanina jest więc jednocześnie znacznikiem neuronów podatnych na zwyrodnienie i obiektem pomiaru w diagnostyce.
1.5. Rys historyczny
Istotę czarną opisał w 1786 roku Félix Vicq d’Azyr, ale przez ponad sto lat nie łączono jej z chorobą Parkinsona [5]. W 1893 roku Paul Blocq i Georges Marinesco znaleźli u chorego z jednostronnym drżeniem otorbiony guz ograniczony do istoty czarnej po przeciwnej stronie [5]. Na tej podstawie Édouard Brissaud zaproponował w 1895 roku, że istota czarna jest głównym miejscem zmian w chorobie Parkinsona [5]. Hipotezę potwierdził w 1919 roku Konstantin Trétiakoff, który w pracy doktorskiej opisał ubytek neuronów barwnikowych istoty czarnej i wtręty nazwane przez niego ciałami Lewy’ego [16]. Wielu współczesnych mu badaczy uważało jednak, że choroba niszczy przede wszystkim prążkowie i gałkę bladą [5].
Spór rozstrzygnęła neurochemia. W 1957 roku Arvid Carlsson stwierdził u zwierząt, że lewodopa znosi bezruch wywołany rezerpiną [17]. Jego zespół ustalił następnie, że dopamina mózgu gromadzi się głównie w prążkowiu [17, 18]. W 1960 roku Herbert Ehringer i Oleh Hornykiewicz wykryli w mózgach zmarłych chorych głęboki niedobór dopaminy w prążkowiu [18, 19]. Niedobór dopaminy w samej istocie czarnej opisano w 1963 roku, co wskazało na drogę nigro-prążkowiową [18]. Jej istnienie potwierdziły badania na zwierzętach w latach 1964–1965 [18].
2. Mechanizm działania istoty czarnej
2.1. Połączenia wejściowe
Istota czarna odbiera sygnały głównie z innych jąder podstawy, a jej dwie części mają w dużej mierze wspólne źródła wejść [20]. O aktywności jądra decyduje bilans wejść hamujących i pobudzających.
Większość wejść do neuronów dopaminowych SNc stanowią włókna hamujące, uwalniające kwas γ-aminomasłowy. Pochodzą one z prążkowia po tej samej stronie, z gałki bladej i z SNr [20]. Wejścia pobudzające, glutaminianowe, stanowią mniej niż 30% wejść z jąder podstawy. Biegną głównie z jądra niskowzgórzowego i z jądra konarowo-mostowego nakrywki, które wysyła do SNc także włókna cholinergiczne [20, 21].
Neurony dopaminowe wyładowują się rytmicznie nawet po odcięciu wejść, na przykład w skrawkach mózgu, dzięki własnemu mechanizmowi oscylacji zależnemu od wapnia [20]. Wejścia nie wywołują więc ich aktywności, lecz zmieniają jej wzorzec. Fazowa aktywność wejść hamujących, pobudzających i cholinergicznych przełącza neuron z rytmu regularnego w nieregularny albo w salwy impulsów [20].
SNr otrzymuje hamujące włókna z neuronów prążkowia należących do drogi bezpośredniej oraz z gałki bladej [22]. Pobudzające włókna glutaminianowe dochodzą do niej z jądra niskowzgórzowego, które leży w niskowzgórzu [22]. Wejścia te są uporządkowane topograficznie. U makaków ogon jądra ogoniastego unerwia tylny, grzbietowo-boczny obszar SNr bezpośrednio albo przez brzuszną część gałki bladej zewnętrznej [23]. Każdy obszar SNr podlega więc wpływom innego fragmentu prążkowia, co pozwala mu sterować innym zestawem czynności [24].
2.2. Połączenia wyjściowe
Istota czarna ma dwa odmienne rodzaje wyjść. SNc wysyła dopaminę, która zmienia sposób przetwarzania sygnałów w prążkowiu, a SNr wysyła hamujące polecenia do ośrodków wykonawczych [1].
Droga nigro-prążkowiowa łączy neurony dopaminowe SNc z grzbietowym prążkowiem, zwłaszcza ze skorupą [25]. Dopamina uwalnia się także z dendrytów tych neuronów, które sięgają w głąb SNr. Pobudza tam neurony hamujące i zwiększa częstotliwość ich wyładowań, tworząc bardzo krótką drogę od części zbitej do części siatkowatej [26].
Neurony SNr wysyłają aksony hamujące do trzech grup celów. Pierwszą tworzą jądra wzgórza wyższego rzędu, które przekazują sygnał do kory płata czołowego i ruchowej [27, 28]. U szczurów SNr unerwia jądro brzuszne przyśrodkowe, jądra śródblaszkowe i jądro przyśrodkowe grzbietowe, a omija jądra przekaźnikowe pierwszego rzędu [29]. U makaków głównym celem drogi nigro-wzgórzowej jest wielkokomórkowa część jądra brzusznego przedniego [28]. U człowieka drogę tę uwidoczniono w traktografii rezonansu magnetycznego o indukcji pola 7 T [30].
Drugim celem są wzgórki górne, czyli ośrodek pokrywy śródmózgowia kierujący szybkimi ruchami oczu [31]. Trzecim są ośrodki ruchowe śródmózgowia i pnia mózgu, w tym niecholinergiczne neurony jądra konarowo-mostowego [21, 32]. Poszczególne populacje neuronów SNr łączą się z wybranymi ośrodkami pnia, a każdy z nich steruje innym rodzajem ruchu [24].
Wszystkie wyjścia SNr są hamujące i aktywne także w spoczynku [32]. Istota czarna działa więc na swoje cele przez zmianę siły hamowania, a nie przez wysyłanie pobudzenia.
2.3. Procesy neurochemiczne
Dwie części istoty czarnej różnią się przekaźnikiem, sposobem wyładowań i podatnością na zwyrodnienie. Neurony SNc dzielą część cech z neuronami sąsiedniego brzusznego pola nakrywki, a część cech mają swoistych.
Neurony SNc wytwarzają dopaminę i wyładowują się wolno, w trzech wzorcach [20, 22]. Bez wejść synaptycznych, na przykład w skrawkach mózgu, neurony te wyładowują się regularnie, jak rozrusznik. W żywym mózgu najczęstszy jest rytm nieregularny, a w odpowiedzi na nagrodę lub zapowiadający ją bodziec pojawia się salwa od 2 do 8 impulsów [20].
Neurony SNr uwalniają kwas γ-aminomasłowy i wyładowują się samoistnie, szybko i bez przerw. Taką aktywność zapewniają kanały jonowe, które utrzymują błonę komórkową stale blisko progu pobudzenia [22]. Pracę tych neuronów modulują dopamina, serotonina i endokannabinoidy [22].
Neurony dopaminowe SNc mają więcej transportera dopaminy niż neurony brzusznego pola nakrywki [33]. Transporter to białko błonowe, które wychwytuje dopaminę z przestrzeni międzykomórkowej z powrotem do neuronu. Gęstość transportera w danej grupie neuronów wiąże się ze stopniem jej ubytku w chorobie Parkinsona [33].
Trzy sąsiednie populacje neuronów różnią się przekaźnikiem, celem projekcji, gęstością transportera dopaminy i losem w chorobie Parkinsona [1, 3, 4, 33].
| Cecha | Część zbita (A9) | Część siatkowata | Brzuszne pole nakrywki (A10) |
| Główny przekaźnik | dopamina | kwas γ-aminomasłowy | dopamina |
| Główny cel projekcji | grzbietowe prążkowie | wzgórze, wzgórki górne, ośrodki ruchowe pnia | struktury układu nagrody |
| Transporter dopaminy | gęstość wysoka | nie dotyczy | gęstość niższa niż w części zbitej |
| Los w chorobie Parkinsona | największy ubytek neuronów | zmieniony wzorzec wyładowań | ubytek mniejszy niż w części zbitej |
Zestawienie pokazuje, że o podatności neuronu nie decyduje sam przekaźnik, ponieważ neurony dopaminowe obu sąsiednich grup różnią się losem w chorobie.
2.4. Funkcje istoty czarnej
Istota czarna uczestniczy w czterech grupach czynności: w wyborze i inicjowaniu ruchu, w sterowaniu ruchami oczu, w uczeniu się nawyków i w odmierzaniu czasu. Dane o tych czynnościach pochodzą w dużej części z badań na makakach i gryzoniach [31, 34, 35].
2.4.1. Inicjowanie ruchu
Istota czarna uczestniczy w wyborze ruchu przez stałe hamowanie ośrodków ruchowych. W spoczynku neurony SNr hamują ośrodki ruchowe pnia mózgu i w ten sposób powstrzymują gotowe programy ruchowe [36]. Wybrany ruch zostaje uruchomiony, gdy neurony prążkowia drogi bezpośredniej zahamują neurony SNr. Spadek aktywności SNr zdejmuje hamowanie z konkretnego ośrodka, czyli go odhamowuje [32, 36].
Droga pośrednia, biegnąca przez gałkę bladą zewnętrzną i jądro niskowzgórzowe, działa odwrotnie. Zwiększa aktywność SNr i tłumi ruchy konkurencyjne [36]. Dopamina z SNc pobudza neurony prążkowia drogi bezpośredniej, a neurony drogi pośredniej hamuje. W obu przypadkach przesuwa bilans w stronę uruchomienia ruchu [36, 37]. Układ ten zaproponowali jako model w 1989 roku Roger Albin, Anne Young i John Penney [37]. W ich modelu brak dopaminy w chorobie Parkinsona zwiększa aktywność wyjścia jąder podstawy, co tłumaczy ubóstwo i spowolnienie ruchów [37].
W badaniu na myszach aktywność neuronów dopaminowych drogi nigro-prążkowiowej zmieniała się w chwili przełączania wybieranego działania. Optogenetyczna zmiana stężenia dopaminy w prążkowiu przesuwała ten wybór [38]. Dopamina z istoty czarnej nie wykonuje więc ruchu, lecz ustala, który z przygotowanych programów ruchowych zostanie uwolniony.
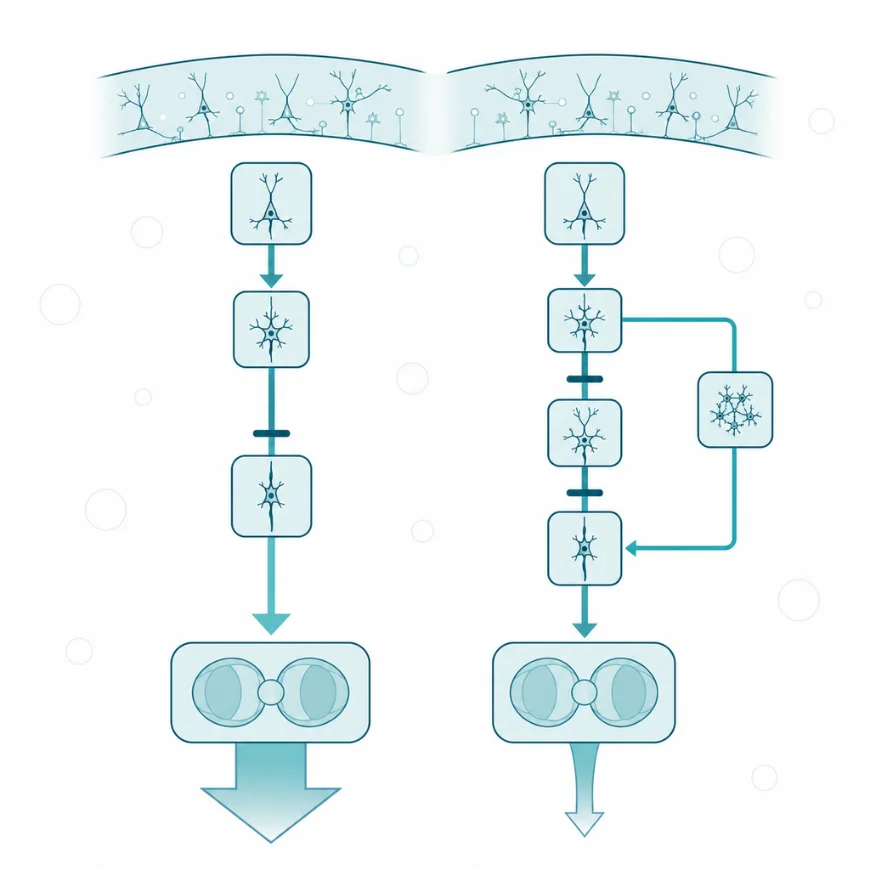
Jądra podstawy regulują motorykę za pomocą dwóch głównych obwodów: drogi bezpośredniej i pośredniej. Droga bezpośrednia ułatwia wykonanie zamierzonego ruchu, podczas gdy droga pośrednia hamuje ruchy niepożądane. Obie ścieżki są modulowane przez dopaminę, uwalnianą przez neurony istoty czarnej pars compacta (SNc).
2.4.2. Ruchy sakadyczne oczu
Istota czarna steruje sakadami, czyli szybkimi ruchami oczu przenoszącymi wzrok na nowy cel. Neurony SNr hamują wzgórki górne w sposób ciągły. Gdy jądro ogoniaste zahamuje SNr, wzgórek górny zostaje odhamowany i wyzwala sakadę w kierunku wybranego celu [31]. Drugi mechanizm, z udziałem gałki bladej zewnętrznej i jądra niskowzgórzowego, może to hamowanie dodatkowo wzmocnić [31].
U makaków neurony SNr zmniejszały aktywność silniej, gdy za ruch oczu w danym kierunku czekała nagroda [39]. Ułatwia to sakady do celów nagradzanych. W badaniu na trzech makakach te same neurony wyciszały się przy wyborze celu, a nasilały wyładowania przy jego odrzuceniu. Zablokowanie wejść glutaminianowych do bocznej części SNr upośledzało hamowanie odruchowych sakad [40].
U chorych na chorobę Parkinsona sakady są zbyt krótkie, a trudność sprawia zwłaszcza rozpoczynanie sakad kierowanych pamięcią. Autorzy przeglądu wiążą te zaburzenia z nadmiernym hamowaniem wzgórków górnych przez wzmożoną aktywność wyjścia jąder podstawy [41]. Ruchy oczu dają więc wgląd w pracę SNr bez inwazyjnych pomiarów.
2.4.3. Uczenie nawyków i wzmacnianie działań
Dopamina z SNc bierze udział w utrwalaniu działań, które przyniosły korzyść. Salwy impulsów, którymi neurony SNc reagują na nagrodę, uwalniają dopaminę fazowo, czyli krótkimi porcjami. W przeglądzie porównującym jądra podstawy różnych kręgowców fazowe uwalnianie dopaminy służy decyzjom opartym na wartości i uczeniu się ruchowemu [36].
Przy długotrwałym powtarzaniu działanie przestaje zależeć od aktualnej wartości nagrody i staje się nawykiem, czyli reakcją wyzwalaną przez sam bodziec. W badaniu na szczurach obustronne zniszczenie drogi nigro-prążkowiowej toksyną 6-hydroksydopaminą uniemożliwiło to przejście [34]. Zwierzęta po zabiegu nadal reagowały na obniżenie wartości nagrody. Zwierzęta kontrolne przestały natomiast na nie reagować przy jednym z dwóch wyuczonych działań, co oznaczało wytworzenie nawyku [34].
SNr uczestniczy w innej postaci uczenia. Jej tylny, grzbietowo-boczny obszar przekazuje u makaków sygnał wartości obiektów wyuczonej przez długie doświadczenie, a nie wartości zmieniającej się z próby na próbę [23, 28]. Istota czarna łączy więc dwa rodzaje uczenia: SNc utrwala skojarzenie bodźca z działaniem, a SNr wykorzystuje utrwaloną wartość obiektów do kierowania wzroku.
2.4.4. Odmierzanie czasu
Neurony dopaminowe SNc uczestniczą w odmierzaniu odcinków czasu rzędu sekund, potrzebnych do rozpoczęcia działania we właściwej chwili. W badaniu na myszach aktywność tych neuronów zmieniała się przy przełączaniu działania w określonym momencie, a jej przebieg skalował się z długością odmierzanego odcinka [38].
Drugie badanie dotyczyło optogenetyki, czyli sterowania aktywnością neuronów światłem po wprowadzeniu do nich białek światłoczułych. Myszy przytrzymywały dźwignię przez co najmniej 3 s, żeby otrzymać nagrodę [35]. Pobudzenie neuronów dopaminowych SNc wydłużało odmierzany odcinek, a ich zahamowanie go skracało. Analiza modelem dryfu i dyfuzji wskazała, że dopamina zmieniała próg decyzji o zakończeniu odliczania, a nie tempo wewnętrznego zegara [35].
Oba badania dotyczą myszy, dlatego udział istoty czarnej człowieka w odmierzaniu czasu pozostaje wnioskiem z modeli zwierzęcych. Hipoteza wynikająca z tych prac zakłada, że niedobór dopaminy zmienia nie tylko siłę ruchu, lecz także chwilę jego rozpoczęcia.
3. Uszkodzenie i patologia
3.1. Następstwa uszkodzenia
Zawał ograniczony do istoty czarnej jest rzadką przyczyną parkinsonizmu naczyniowego [42]. Objawy pojawiają się wtedy po stronie ciała przeciwnej do ogniska [43]. Opisano 66-letniego mężczyznę z lewostronnym drżeniem, sztywnością i spowolnieniem ruchów, u którego rezonans magnetyczny wykazał zawał zatokowy w prawej istocie czarnej [43]. U innego chorego zawał w obszarze unaczynienia tętnicy Percherona objął istotę czarną po jednej stronie. Tomografia ze znacznikiem transportera dopaminy wykazała mniejszy wychwyt w prążkowiu po tej samej stronie, co wskazuje na zwyrodnienie drogi nigro-prążkowiowej za ogniskiem [42].
Istota czarna ulega też zwyrodnieniu wtórnemu po zawale obejmującym prążkowie. Ubytek hamujących włókien prążkowiowo-nigralnych odhamowuje neurony SNr, które następnie ulegają zwyrodnieniu, a neurony SNc obumierają wstecznie [44]. W obrazowaniu dyfuzyjnym zmiana ta daje jasne ognisko, które bywa błędnie brane za nowy zawał [44].
Klasycznym przykładem wybiórczego uszkodzenia istoty czarnej u człowieka jest zatrucie MPTP, czyli 1-metylo-4-fenylo-1,2,3,6-tetrahydropirydyną. Związek ten powstał jako produkt uboczny nielegalnej syntezy pochodnej petydyny [45]. W 1983 roku J. William Langston i współpracownicy opisali czworo osób, u których po dożylnym przyjęciu takiego preparatu rozwinął się ciężki parkinsonizm [45]. Metabolit MPTP, jon 1-metylo-4-fenylopirydyniowy, jest wychwytywany przez transporter dopaminy do wnętrza neuronów dopaminowych. Hamuje tam kompleks I, czyli pierwszy enzym łańcucha oddechowego mitochondriów, w którym komórka wytwarza większość energii [33].
W badaniu pośmiertnym trzech takich chorych, zmarłych 3–16 lat po ekspozycji, stwierdzono ubytek neuronów barwnikowych istoty czarnej, rozplem gleju i skupiska mikrogleju wokół neuronów, bez ciał Lewy’ego [46]. Autorzy uznali ten obraz za znak, że krótkotrwałe uszkodzenie może uruchomić utrzymujący się proces zwyrodnienia [46]. Opisane przypadki łączy wspólny wniosek: ubytek neuronów SNc albo ich połączeń z prążkowiem wystarcza do wywołania parkinsonizmu, a strona objawów odpowiada stronie uszkodzenia.
3.2. Udział istoty czarnej w chorobach
Istota czarna jest główną strukturą uszkadzaną w chorobie Parkinsona i w kilku innych zespołach parkinsonowskich. Zespoły te łączy zwyrodnienie drogi nigro-prążkowiowej z ubytkiem neuronów i rozplemem gleju w istocie czarnej [47].
W chorobie Parkinsona obumierają przede wszystkim barwnikowe neurony dopaminowe SNc. W badaniu stereologicznym mózgów siedmiu chorych liczba neuronów barwnikowych była mniejsza o 66%, a neuronów bez barwnika o 24% niż w grupie kontrolnej [8]. Ubytek ma stały rozkład przestrzenny. W badaniu 20 mózgów chorych najwięcej neuronów tracił boczny obszar warstwy brzusznej SNc, średnio 91%, mniej obszar przyśrodkowy tej warstwy i warstwa grzbietowa [12]. Autorzy oszacowali, że w chwili pojawienia się objawów ubytek w bocznym obszarze warstwy brzusznej wynosi 68%, a w całej ogonowej części istoty czarnej 48% [12]. Wśród przedziałów chemicznych najwięcej traci nigrosom 1, w którym ubytek neuronów dopaminowych sięgał 98% [13].
Wielkość ubytku zależy od sposobu liczenia neuronów. W badaniu 28 mózgów chorych zmarłych od 1 do 27 lat po rozpoznaniu liczba neuronów z hydroksylazą tyrozynową, enzymem syntezy dopaminy, była mniejsza o 50–90% już w najwcześniejszych badanych okresach [25]. Neurony z neuromelaniną ubywały wolniej. W jedynym przypadku z pierwszego roku po rozpoznaniu brakowało ich około 10%, a w kolejnych latach od 30 do 60% [25]. Zakończenia dopaminowe w grzbietowej skorupie znikały niemal całkowicie w ciągu 4 lat od rozpoznania [25]. Według autorów ubytek neuronów z barwnikiem pozostaje w tyle za utratą znaczników dopaminowych, więc część neuronów traci cechy dopaminowe, zanim obumrze [25].
W istocie czarnej chorych gromadzą się wtręty zbudowane głównie z alfa-synukleiny, zwane ciałami Lewy’ego [48]. Według modelu stopniowania zmian wtręty pojawiają się najpierw w jądrze grzbietowym nerwów językowo-gardłowego i błędnego oraz w przednim jądrze węchowym, a istotę czarną obejmują później [49]. U około 10% osób po 65. roku życia bez objawów neurologicznych stwierdza się podobną patologię alfa-synukleiny, ale bez ubytku neuronów [47]. W metaanalizie 77 badań rezonansu magnetycznego zawartość żelaza w SNc i SNr była u chorych większa niż u osób zdrowych [50].
Wybiórczą podatność neuronów SNc tłumaczy kilka hipotez. Pierwsza wiąże ją z rytmiczną aktywnością tych neuronów, podczas której do komórki napływa wapń przez kanały typu L. Napływ ten zwiększa obciążenie mitochondriów i wytwarzanie utleniaczy [51]. Druga hipoteza wskazuje na koszt energetyczny przewodzenia impulsów w rozległym aksonie pozbawionym osłonki mielinowej. W modelu komputerowym koszt ten rósł wraz z wielkością i złożonością drzewa aksonalnego [10]. Trzecia łączy podatność z neuromelaniną. Im większy odsetek neuronów z barwnikiem miała dana grupa dopaminowa śródmózgowia, tym więcej komórek traciła w chorobie, przy współczynniku korelacji 0,97 [9]. Czwarta wskazuje na transporter dopaminy, który może wprowadzać do neuronu toksyny podobne do jonu 1-metylo-4-fenylopirydyniowego [33].
Istota czarna ulega też zwyrodnieniu w innych chorobach. W zaniku wieloukładowym alfa-synukleina gromadzi się głównie we wtrętach cytoplazmatycznych komórek glejowych, a w postępującym porażeniu nadjądrowym białko tau odkłada się w neuronach i glejach [47]. W badaniu Fearnleya i Leesa zanik wieloukładowy reprezentowała jego postać zwana zwyrodnieniem prążkowiowo-nigralnym [12]. Choroby te różnią się rodzajem gromadzonego białka, rozkładem ubytku neuronów w istocie czarnej i zawartością w niej żelaza [12, 47, 50].
| Choroba | Białko gromadzone | Rozkład ubytku neuronów w istocie czarnej | Żelazo w istocie czarnej wobec choroby Parkinsona |
| Choroba Parkinsona | alfa-synukleina w neuronach | największy w bocznym obszarze warstwy brzusznej | punkt odniesienia |
| Zanik wieloukładowy | alfa-synukleina w komórkach glejowych | podobny do choroby Parkinsona, większy w warstwie grzbietowej | więcej |
| Postępujące porażenie nadjądrowe | białko tau w neuronach i glejach | bez przewagi bocznej warstwy brzusznej, raczej przyśrodkowy | więcej |
Rozkład ubytku i zawartość żelaza nie są więc jednakowe we wszystkich zespołach parkinsonowskich, co ma znaczenie dla ich różnicowania.
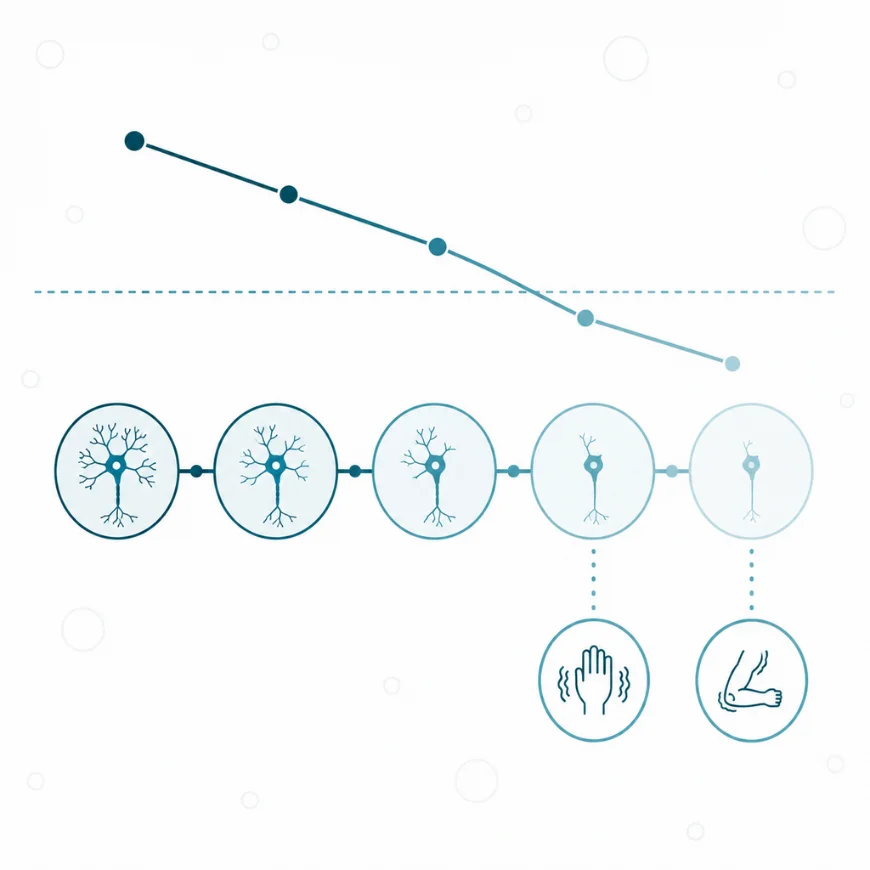
Objawy pojawiają się dopiero po utracie ponad połowy neuronów istoty czarnej. Choroba jest więc zwykle w stanie zaawansowanym już w chwili rozpoznania.
3.3. Ocena stanu istoty czarnej i obrazowanie
Stan istoty czarnej ocenia się metodami obrazowymi, które mierzą różne jej cechy. Jedne pokazują zakończenia aksonów w prążkowiu, inne echogeniczność jądra albo zawartość neuromelaniny i żelaza.
Tomografia emisyjna pojedynczego fotonu (ang. single-photon emission computed tomography, SPECT) wykonywana z ioflupanem, czyli znakowanym radioaktywnym jodem ligandem transportera dopaminy, pokazuje gęstość zakończeń neuronów dopaminowych w prążkowiu. Badanie to jest znane pod nazwą handlową DaTSCAN. Według przeglądu systematycznego wykonuje się je głównie przy niepewnym rozpoznaniu klinicznym, na przykład przy podejrzeniu drżenia samoistnego, parkinsonizmu polekowego albo naczyniowego [52]. Swoistego wzorca, który odróżniałby chorobę Parkinsona od parkinsonizmów atypowych, dotąd nie opisano [52].
Ultrasonografia przezczaszkowa pokazuje u części chorych powiększony obszar istoty czarnej o podwyższonej echogeniczności, zwany hiperechogenicznością [53]. W metaanalizie 39 badań czułość tej cechy w wykrywaniu choroby Parkinsona wyniosła 0,84, a swoistość 0,85 [53]. W odróżnianiu choroby Parkinsona od drżenia samoistnego wartości te wyniosły odpowiednio 84,6% i 83,9%, przy wysokim ryzyku błędu doboru chorych [54]. W postępującym porażeniu nadjądrowym hiperechogeniczność występowała u 22% chorych [55].
Rezonans magnetyczny czuły na neuromelaninę mierzy sygnał i objętość SNc. W metaanalizie 12 badań jego czułość wyniosła 89%, a swoistość 83% [56]. Nigrosom 1 leży w ogonowej części SNc [13]. W obrazowaniu podatności magnetycznej jest widoczny u osób zdrowych jako jasny obszar, a w chorobie Parkinsona zanika [6]. Obraz ten nazwano znakiem ogona jaskółki [57]. W metaanalizie 17 badań brak znaku miał czułość 0,91 i swoistość 0,89, przy dużej niejednorodności badań [57]. Ilościowe pomiary żelaza najlepiej odróżniały chorych od zdrowych właśnie w istocie czarnej, lecz według autorów metaanalizy nie wystarczały do trafnego rozpoznania [50].
Metody te różnią się mierzoną cechą, obrazem typowym dla choroby Parkinsona i trafnością w metaanalizach [50, 52, 53, 56, 57].
| Metoda | Co mierzy | Obraz typowy dla choroby Parkinsona | Trafność w metaanalizach |
| SPECT z ioflupanem | zakończenia neuronów SNc w prążkowiu | zmniejszony wychwyt w prążkowiu | wzorzec nieswoisty wobec parkinsonizmów atypowych |
| Ultrasonografia przezczaszkowa | echogeniczność istoty czarnej | hiperechogeniczność | czułość 0,84, swoistość 0,85 |
| Rezonans czuły na neuromelaninę | sygnał i objętość SNc | mniejszy sygnał i objętość | czułość 89%, swoistość 83% |
| Obrazowanie podatności magnetycznej | nigrosom 1 | brak znaku ogona jaskółki | czułość 0,91, swoistość 0,89 |
| Ilościowy pomiar żelaza | zawartość żelaza | więcej żelaza w SNc i SNr | pole pod krzywą 0,85 |
Każda z metod ocenia inną cechę istoty czarnej, dlatego wyniki badań obrazowych uzupełniają obraz kliniczny, a nie go zastępują.
3.4. Czynniki wpływające na stan istoty czarnej
Stan istoty czarnej zmienia się z wiekiem. W badaniu 36 mózgów osób bez parkinsonizmu liczba neuronów barwnikowych w ogonowej części SNc malała liniowo, o 4,7% na dekadę życia [12]. Ubytek związany z wiekiem był największy w warstwie grzbietowej i w przyśrodkowym obszarze warstwy brzusznej, a najmniejszy w obszarze bocznym, czyli odwrotnie niż w chorobie Parkinsona [12]. Autorzy uznali na tej podstawie, że samo starzenie się nie odgrywa istotnej roli w powstawaniu choroby [12]. Z wiekiem przybywa też neuromelaniny i żelaza w neuronach dopaminowych [14, 15].
Wśród czynników środowiskowych szeroko badano pestycydy. W badaniu kliniczno-kontrolnym zagnieżdżonym w kohorcie rolników ze Stanów Zjednoczonych chorobę Parkinsona wiązało się ze stosowaniem rotenonu i parakwatu [58]. Rotenon hamuje kompleks I łańcucha oddechowego, a parakwat nasila stres oksydacyjny [58]. Dla obu związków iloraz szans wyniósł 2,5, przy 110 chorych i 358 osobach z grupy kontrolnej [58]. W metaanalizie 13 badań kliniczno-kontrolnych narażenie na parakwat wiązało się z ilorazem szans 1,64 [59]. W przeglądzie 12 przeglądów żaden autor nie uznał jednak związku przyczynowego między parakwatem a chorobą Parkinsona za dowiedziony [60].
Aktywność fizyczna wiąże się z mniejszym ryzykiem choroby. W metaanalizie 8 badań prospektywnych, obejmujących 544 336 osób, najwyższy poziom aktywności umiarkowanej i intensywnej wiązał się z ryzykiem względnym 0,71 [61]. Związek był silniejszy u mężczyzn, a lekka aktywność nie wiązała się z ryzykiem [61]. W przeglądzie 46 przeglądów systematycznych badania prospektywne wskazywały na mniejsze ryzyko u osób aktywnych fizycznie, palących tytoń i pijących kawę. Autorzy ocenili jednak 84,7% tych przeglądów jako prace o krytycznie niskiej jakości metodycznej [62].
Wszystkie te dane dotyczą ryzyka zachorowania, a nie bezpośredniego pomiaru istoty czarnej. Mówią więc o czynnikach związanych z chorobą, której podłożem jest ubytek neuronów SNc, a nie o zmianach samej struktury u osób zdrowych.
4. Na co warto zwrócić uwagę
Choroba Parkinsona bywa opisywana jako brak dopaminy w całym mózgu. W badaniu Ehringera i Hornykiewicza głęboki niedobór dopaminy stwierdzono w prążkowiu, czyli w obszarze docelowym drogi nigro-prążkowiowej [18, 19]. Lewodopa uzupełnia ten niedobór jako prekursor przekaźnika, co jest klasycznym przykładem leczenia zastępczego [63]. Choroba nie ogranicza się jednak do istoty czarnej. Obejmuje wybrane populacje neuronów ośrodkowych i autonomicznych, a to, które z nich ulegają zmianom, decyduje o objawach pozaruchowych [47]. Stan samej istoty czarnej wyjaśnia więc objawy ruchowe, ale nie cały obraz choroby.
Pojedyncza liczba opisująca „próg objawów” upraszcza dane. Szacunki ubytku neuronów w chwili pojawienia się objawów pochodzą z niewielkich serii pośmiertnych i z pojedynczych przekrojów ogonowej części jądra [12]. Wynik zależy też od tego, czy liczy się neurony z barwnikiem, czy z enzymem syntezy dopaminy [25]. Porównywanie odsetków z różnych prac bez podania metody może więc prowadzić do sprzecznych wniosków.
Wynik badania obrazowego istoty czarnej nie jest rozpoznaniem. Hiperechogeniczność stwierdza się również u części osób bez choroby Parkinsona [64]. W kohorcie 1178 osób zdrowych obserwowanych do 10 lat była jednym z czynników powiązanych z późniejszym zachorowaniem, obok płci i łagodnych objawów ruchowych [64]. Wynik tomografii z ioflupanem opisuje stan zakończeń w prążkowiu, a na jego odczyt mogą wpływać niektóre leki i substancje psychoaktywne, co grozi wynikiem fałszywie dodatnim [65].
Wiedza o czynnościach istoty czarnej pochodzi w dużej mierze z badań na modelach zwierzęcych. Udział w sakadach opisano u makaków, w nawykach u szczurów, a w odmierzaniu czasu u myszy [34, 35, 39]. U człowieka te same czynności ocenia się pośrednio, głównie przez zaburzenia obserwowane w chorobie Parkinsona [41]. Interpretacja wyniku badania obrazowego i decyzja o dalszej diagnostyce należą do lekarza neurologa.