
1. Charakterystyka
1.1. Definicja i nazewnictwo
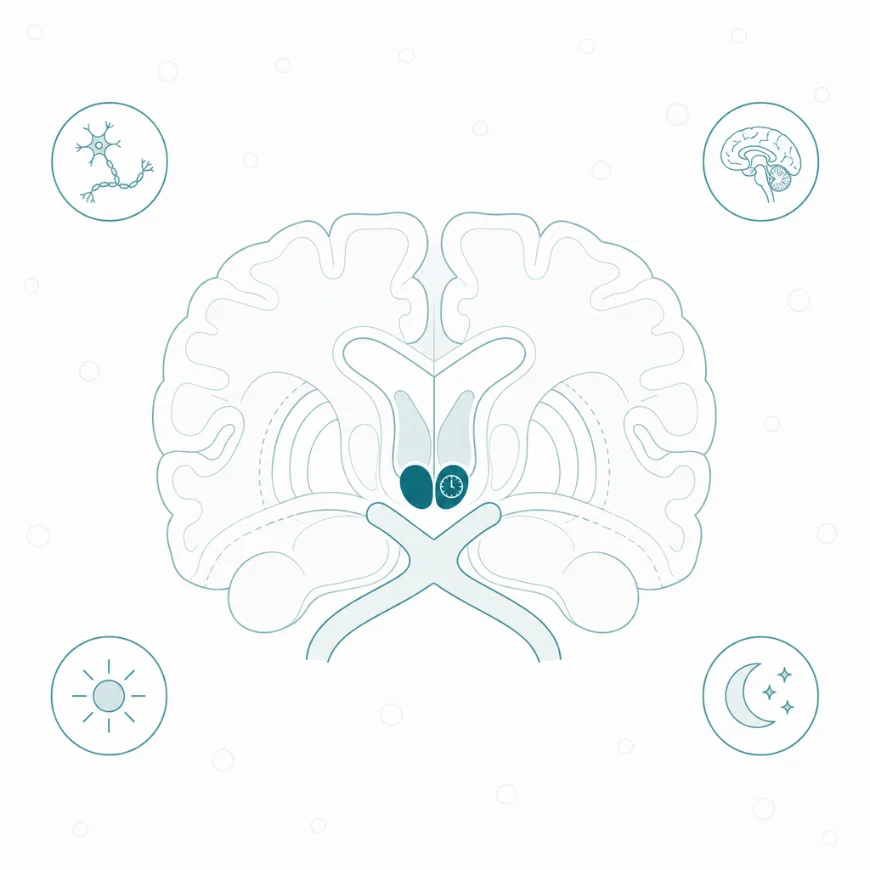
Jądro nadskrzyżowaniowe (ang. suprachiasmatic nucleus, SCN) to parzyste jądro przedniej części podwzgórza, które pełni u ssaków rolę głównego zegara okołodobowego [1]. Łacińska nazwa nucleus suprachiasmaticus opisuje położenie jądra nad skrzyżowaniem wzrokowym, czyli miejscem, w którym część włókien nerwów wzrokowych przechodzi na stronę przeciwną. Każde z dwóch jąder, prawe i lewe, liczy około 10 tysięcy neuronów [1]. Mimo tak małej liczby komórek SCN wyznacza dobowe cykle zachowania i fizjologii całego organizmu [1].
W podziale anatomicznym SCN należy do jąder przedniej, nadwzrokowej okolicy podwzgórza. W podziale czynnościowym jest ośrodkiem układu okołodobowego, któremu podporządkowane są zegary komórkowe innych tkanek [2]. Z tego powodu SCN nie jest tożsame z rytmem dobowym ani z zegarem biologicznym rozumianym jako cały układ. Układ ten obejmuje także zegary wątroby, mięśni i tkanki tłuszczowej, a SCN stanowi jego ośrodek nadrzędny [2].
SCN bywa mylone z szyszynką, ponieważ obie struktury wiąże się z nocą i melatoniną. Kryterium różnicujące stanowi kierunek sygnału: szyszynka wydziela melatoninę dopiero wtedy, gdy otrzyma pobudzenie z SCN przekazane drogą wielosynaptyczną [3]. Od jądra przykomorowego podwzgórza SCN różni się zadaniem. Jądro przykomorowe steruje wydzielaniem hormonów i układem autonomicznym, natomiast SCN nadaje tym czynnościom porę doby, wysyłając do niego własne włókna [3, 4].
Pojęcie SCN obejmuje obie połowy jądra wraz z ich neuronami, astrocytami i siecią połączeń wewnętrznych. Nie obejmuje dróg doprowadzających, które zaczynają się w siatkówce i we wzgórzu. Znaczenie SCN wynika z połączenia dwóch cech: jego neurony same generują rytm, a zarazem otrzymują bezpośrednią informację o świetle z siatkówki [1, 5]. Dzięki temu SCN przekłada porę dnia w otoczeniu na sygnał czasu dla narządów, a jego obustronne zniszczenie znosi dobową organizację wielu czynności naraz [6].
1.2. Lokalizacja
SCN leży w przedniej, brzusznej części podwzgórza, po obu stronach dolnego odcinka komory trzeciej [1]. Od dołu każde z jąder przylega do górnej powierzchni skrzyżowania wzrokowego, a od przodu graniczy z okolicą przedwzrokową. Powyżej, przy ścianie komory, leży jądro przykomorowe, do którego SCN wysyła część włókien wyjściowych [3].
Takie położenie skraca drogę włóknom siatkówkowym. Odchodzą one od skrzyżowania i wnikają do jądra od strony brzusznej, gdzie kończą się w strefie odbierającej sygnał z siatkówki [7]. Bliskość skrzyżowania ma także następstwo kliniczne. Guzy okolicy siodła tureckiego, które uciskają skrzyżowanie, mogą jednocześnie zaburzać czynność SCN [8].
U człowieka kształt jądra różni się między płciami. W badaniu sekcyjnym, w którym jądro uwidoczniono barwieniem na wazopresynę, SCN kobiet było wydłużone, a SCN mężczyzn bardziej kuliste [9]. U myszy położenie i organizacja jądra są podobne jak u innych ssaków [10]. Wnioski anatomiczne z badań na gryzoniach przenosi się więc na człowieka stosunkowo pewnie, choć reakcje czynnościowe ludzkiego SCN bywają odmienne [11].
1.3. Budowa komórkowa i podział
SCN zbudowane jest z drobnych, gęsto ułożonych neuronów, między którymi leżą astrocyty [1, 12]. Astrocyty to komórki glejowe, które regulują skład przestrzeni międzykomórkowej wokół neuronów. Niemal wszystkie neurony SCN wytwarzają kwas γ-aminomasłowy (GABA), czyli główny przekaźnik hamujący mózgu [13]. GABA występuje w nich razem z neuropeptydami, a rodzaj tych peptydów różni się między częściami jądra [10].
Na podstawie składu peptydów dzieli się SCN na rdzeń i otoczkę. Rdzeń zajmuje część brzuszną, przylegającą do skrzyżowania wzrokowego. Jego neurony zawierają wazoaktywny peptyd jelitowy (ang. vasoactive intestinal peptide, VIP), który przekazuje sygnał czasu innym komórkom jądra [4, 10]. Część z nich zawiera także peptyd uwalniający gastrynę (ang. gastrin-releasing peptide, GRP), również biorący udział w synchronizacji rytmów komórkowych [10, 14]. Do rdzenia docierają włókna z siatkówki, włókna zawierające neuropeptyd Y oraz włókna serotoninergiczne [10].
Otoczka obejmuje część grzbietową i przyśrodkową jądra. Jej neurony wytwarzają wazopresynę argininową (AVP), czyli peptyd, który w SCN służy jako jeden z sygnałów wyjściowych zegara [10, 15]. U człowieka rozmieszczenie jest podobne. W materiale sekcyjnym neurony z AVP leżą w otoczce, a neurony z VIP w rdzeniu, i obie populacje wykazują dobowe wahania liczby komórek zawierających peptyd [16].
Podział na rdzeń i otoczkę ma sens czynnościowy. Rdzeń jest miejscem wejścia sygnału świetlnego i synchronizacji komórek, a otoczka w większym stopniu wyznacza długość okresu rytmu [4]. Z tego podziału wynika kierunek przepływu informacji w jądrze: od komórek odbierających światło do komórek przekazujących rytm dalej.
1.4. Rozwój i pochodzenie
SCN powstaje z tkanki przyszłego podwzgórza we wczesnym okresie życia płodowego [17]. Zegar płodu działa jeszcze przed urodzeniem, choć nie odbiera światła. Jego rytm podąża wtedy za sygnałami niezwiązanymi ze światłem, które przekazuje organizm matki [17, 18].
Po porodzie głównym sygnałem ustawiającym zegar staje się cykl światła i ciemności [17]. Dojrzewanie jądra trwa jednak długo po urodzeniu. U człowieka populacje neuronów z AVP i VIP rozwijają się w dużej części dopiero po narodzinach [19]. Właściwości sieci SCN, w tym sposób sprzężenia komórek, zmieniają się także między kolejnymi okresami rozwoju [14]. Wcześniak traci przy tym rytmiczne sygnały od matki, bo zostaje przeniesiony z macicy do stałych warunków oddziału intensywnej terapii [17]. Noworodek ma więc działający oscylator, ale niedojrzały układ jego sygnałów wyjściowych.
1.5. Rys historyczny
Do początku lat siedemdziesiątych ubiegłego wieku nie wiedziano, która struktura mózgu ssaków generuje rytmy okołodobowe [14]. W 1972 roku dwie niezależne grupy opisały skutki zniszczenia SCN u szczura. Moore i Eichler stwierdzili utratę dobowego rytmu kortykosteronu nadnerczowego [20]. Stephan i Zucker opisali, że obustronne uszkodzenie SCN trwale znosi dobowy rytm picia i aktywności ruchowej, podczas gdy uszkodzenie sąsiedniej okolicy przedwzrokowej rytmu nie zmienia [6].
Uszkodzenie wskazywało miejsce, ale nie rozstrzygało, czy SCN wytwarza rytm, czy tylko go przekazuje. Rozstrzygnięcie przyniosło w 1990 roku doświadczenie Ralpha i współpracowników z przeszczepem SCN u chomików z mutacją skracającą okres rytmu [21]. Przeszczep przywracał rytm zwierzętom z usuniętym własnym jądrem, a przywrócony rytm zawsze miał okres dawcy [21].
Pozostawało pytanie, czy rytm powstaje w sieci neuronów, czy w pojedynczych komórkach. W 1995 roku Welsh i współpracownicy zarejestrowali wyładowania pojedynczych neuronów SCN szczura w hodowli. Rytmiczne neurony miały własne rytmy okołodobowe o fazach niezależnych od sąsiadów [22]. Od tego czasu SCN opisuje się jako zespół autonomicznych oscylatorów komórkowych, które sieć zespala w jeden sygnał [1].
2. Mechanizm działania
2.1. Połączenia wejściowe
SCN otrzymuje trzy główne rodzaje wejść: bezpośrednie z siatkówki, pośrednie ze wzgórza i serotoninergiczne z pnia mózgu [4]. Dociera do niego także informacja z innych okolic podwzgórza [4].
Najważniejszym wejściem jest droga siatkówkowo-podwzgórzowa, czyli pęczek włókien, który odgałęzia się od nerwu wzrokowego w skrzyżowaniu i kończy w brzusznej części SCN [7]. Tworzą ją aksony nielicznej grupy komórek zwojowych siatkówki, które zawierają barwnik melanopsynę i reagują na światło same, bez pośrednictwa czopków i pręcików [5]. Komórki te nazywa się komórkami zwojowymi siatkówki wewnętrznie światłoczułymi (ang. intrinsically photosensitive retinal ganglion cells, ipRGC), a ich rolą jest przekazywanie do zegara informacji o natężeniu światła [5]. W doświadczeniach na myszach synchronizacja rytmu ze światłem zachodziła nawet po utracie pręcików i czopków [5].
Zakończenia ipRGC uwalniają w SCN dwa przekaźniki [7]. Pierwszym jest glutaminian, a drugim przysadkowy peptyd aktywujący cyklazę adenylanową (ang. pituitary adenylate cyclase-activating polypeptide, PACAP), który moduluje odpowiedź neuronów na glutaminian [7]. Glutaminian podany do SCN w nocy przesuwa fazę rytmu podobnie jak światło. Zablokowanie receptorów glutaminianu znosi natomiast przesunięcia wywołane przez światło [7].
Drugie wejście pochodzi z listka międzykolankowego, położonego w obrębie ciała kolankowatego bocznego wzgórza. Jego neurony wysyłające włókna do SCN zawierają GABA oraz neuropeptyd Y, peptyd uwalniany tu razem z GABA jako współprzekaźnik [13]. Trzecie wejście tworzą włókna serotoninergiczne z jąder szwu, które kończą się w rdzeniu SCN [4, 10]. Światło ma zatem do SCN drogę jednosynaptyczną, a pozostałe sygnały docierają przez stacje pośrednie we wzgórzu i w pniu mózgu [4, 7].
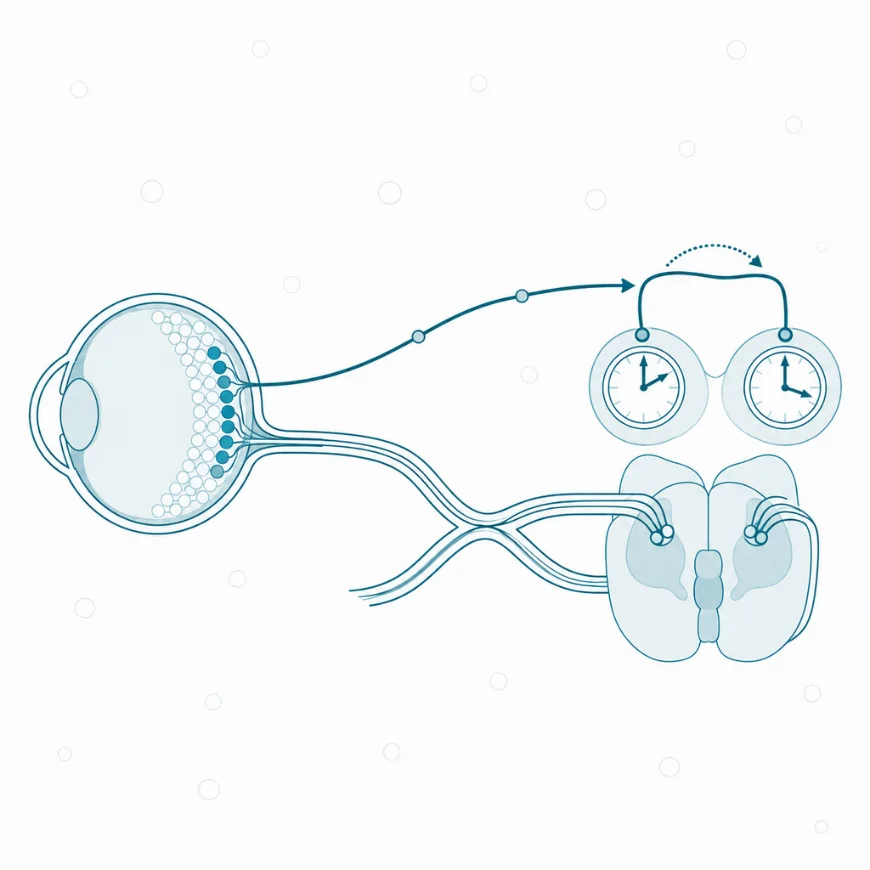
Światło dociera do zegara dobowego osobną drogą siatkówkowo-podwzgórzową, niezależną od widzenia. Osoba niewidoma może mieć zachowaną synchronizację tego zegara.
2.2. Połączenia wyjściowe
Włókna wyjściowe SCN są krótkie i kończą się głównie w przyśrodkowym podwzgórzu, od okolicy przedwzrokowej do podwzgórza tylnego [10]. Główne ich cele to strefa podprzykomorowa, jądro przykomorowe podwzgórza i okolica przedwzrokowa [4]. Poza podwzgórzem włókna SCN docierają do jądra przykomorowego wzgórza i do przegrody bocznej [10].
Ważnym przekaźnikiem pośrednim jest jądro grzbietowo-przyśrodkowe podwzgórza, które otrzymuje sygnał z SCN bezpośrednio oraz przez strefę podprzykomorową [23]. Jądro to wysyła włókna GABA-ergiczne do jądra przedwzrokowego brzuszno-bocznego, sprzyjającego zasypianiu. Do podwzgórza bocznego, w tym do neuronów oreksynowych podtrzymujących czuwanie, kieruje natomiast włókna glutaminianergiczne [23].
Najlepiej poznaną drogą wyjściową jest droga do szyszynki. SCN przekazuje sygnał do jądra przykomorowego podwzgórza, skąd włókna schodzą do słupa pośrednio-bocznego piersiowej części rdzenia kręgowego [3]. Następnie włókna przedzwojowe układu współczulnego biegną do zwoju szyjnego górnego, a jego włókna zazwojowe docierają do szyszynki [3]. Neurony tego zwoju uwalniają w szyszynce noradrenalinę, która pobudza syntezę melatoniny [24]. SCN wywiera na tę drogę wpływ zarówno hamujący, jak i pobudzający. Dlatego po jego zniszczeniu u szczurów wytwarzanie melatoniny traci różnicę dnia i nocy i utrzymuje się na niskim, stałym poziomie [24].
Poza połączeniami nerwowymi SCN wysyła sygnały dyfuzyjne. Przeszczep SCN zamknięty w półprzepuszczalnej kapsule, która uniemożliwiała wyrastanie aksonów, przywracał chomikom z usuniętym jądrem rytm aktywności ruchowej [25]. Część takich sygnałów może docierać do narządów okołokomorowych przez lokalne połączenia naczyniowe [26]. Jednym z przekaźników wyjściowych jest AVP, która u gryzoni zapowiada zbliżanie się fazy spoczynku i obniża wydzielanie kortykosteronu [15]. Wyjścia SCN są więc nieliczne i krótkie, a zasięg ogólnoustrojowy zegar uzyskuje dzięki stacjom pośrednim w podwzgórzu i w układzie autonomicznym [2].
2.3. Działanie neuroprzekaźników
Neurochemia SCN łączy jeden przekaźnik wspólny dla prawie wszystkich neuronów z kilkoma neuropeptydami, które różnicują populacje komórek [13, 14]. GABA jest przekaźnikiem wszystkich lub prawie wszystkich neuronów jądra [13]. Większość połączeń wewnątrz SCN ma zatem charakter GABA-ergiczny, a o odrębności populacji decydują peptydy.
VIP działa jak sygnał synchronizujący. U myszy pozbawionych VIP albo jego receptora rytm wyładowań zanikał w około połowie neuronów SCN, a neurony nadal rytmiczne traciły zgodność fazy [27]. Codzienne podawanie substancji pobudzającej receptor VIP przywracało rytmiczność i synchronię neuronom pozbawionym samego peptydu [27]. AVP wpływa na długość okresu zegara, a GRP, podobnie jak VIP i AVP, należy do peptydów synchronizujących rytmy komórkowe [4, 14]. Stężenie glutaminianu i GABA w przestrzeni międzykomórkowej SCN regulują także astrocyty, zgodnie z rytmem własnego zegara [12].
Pięć przekaźników SCN różni się położeniem i rolą w pracy zegara.
| Przekaźnik | Główne położenie w SCN | Rola w pracy zegara |
| GABA | niemal wszystkie neurony | połączenia wewnętrzne i wyjścia |
| VIP | rdzeń | synchronizacja neuronów, utrzymanie ich rytmiczności |
| GRP | rdzeń | synchronizacja rytmów komórkowych |
| AVP | otoczka | wpływ na długość okresu, sygnał wyjściowy |
| glutaminian | zakończenia z siatkówki, astrocyty | przekazanie sygnału świetlnego, regulacja aktywności neuronów |
Wspólny przekaźnik, GABA, nadaje wyjściom SCN jednolity charakter. Peptydy decydują natomiast o tym, które komórki synchronizują sieć, a które wyznaczają okres rytmu.
2.4. Funkcje jądra nadskrzyżowaniowego
SCN wykonuje pięć zadań: generuje rytm, dostraja go do światła, przekazuje porę doby tkankom obwodowym, ustala porę snu i czuwania oraz odmierza długość dnia w ciągu roku [1, 2, 28]. Wszystkie wynikają z połączenia oscylatora komórkowego z wejściem świetlnym i siecią wyjściową.
2.4.1. Generowanie rytmu okołodobowego
SCN określa się jako tak zwany zegar nadrzędny (ang. master clock), czyli oscylator, który utrzymuje rytm bez sygnałów z otoczenia i nadaje fazę pozostałym zegarom organizmu [1]. Wyizolowane SCN zachowuje rytm w hodowli tkankowej przez czas nieograniczony [1].
Rytm powstaje w pojedynczych komórkach dzięki pętli sprzężenia zwrotnego między genami a białkami. Białka CLOCK i BMAL1 łączą się w czynnik transkrypcyjny, który uruchamia geny Per i Cry [29]. Powstałe z nich białka PER i CRY gromadzą się w cytoplazmie, wracają do jądra komórkowego i hamują czynnik, który je wytworzył [29]. Po rozkładzie PER i CRY hamowanie ustępuje, a cykl zaczyna się od nowa w ciągu około doby. Za opisanie molekularnego mechanizmu tej pętli Hall, Rosbash i Young otrzymali Nagrodę Nobla w dziedzinie fizjologii lub medycyny za 2017 rok [30].
Pojedynczy neuron SCN jest jednak oscylatorem nieprecyzyjnym. U myszy z wyłączonym genem Per1 albo Cry1 rozdzielone neurony SCN traciły trwały rytm [31]. Te same neurony połączone w skrawku jądra zachowywały rytmiczność, podobnie jak zachowanie zwierząt [31]. Sprzężenie komórek w sieci chroni więc zegar przed zaburzeniami genetycznymi i synchronizuje fazy oscylatorów komórkowych [31].
Częścią zegara są także astrocyty. U myszy, u których działał wyłącznie zegar astrocytów SCN, jądro podtrzymywało oscylacje molekularne, a zwierzęta zachowywały rytm aktywności [32]. Astrocyty przywracały rytm neuronom za pomocą sygnałów glutaminianowych [32]. Przez dziesięciolecia SCN traktowano jako zegar wyłącznie neuronalny, a to przekonanie zmieniło odkrycie roli astrocytów [1]. Rytm SCN jest zatem własnością trzech poziomów naraz: pętli genowej w komórce, sprzężenia neuronów w sieci i współpracy neuronów z astrocytami [1, 12].
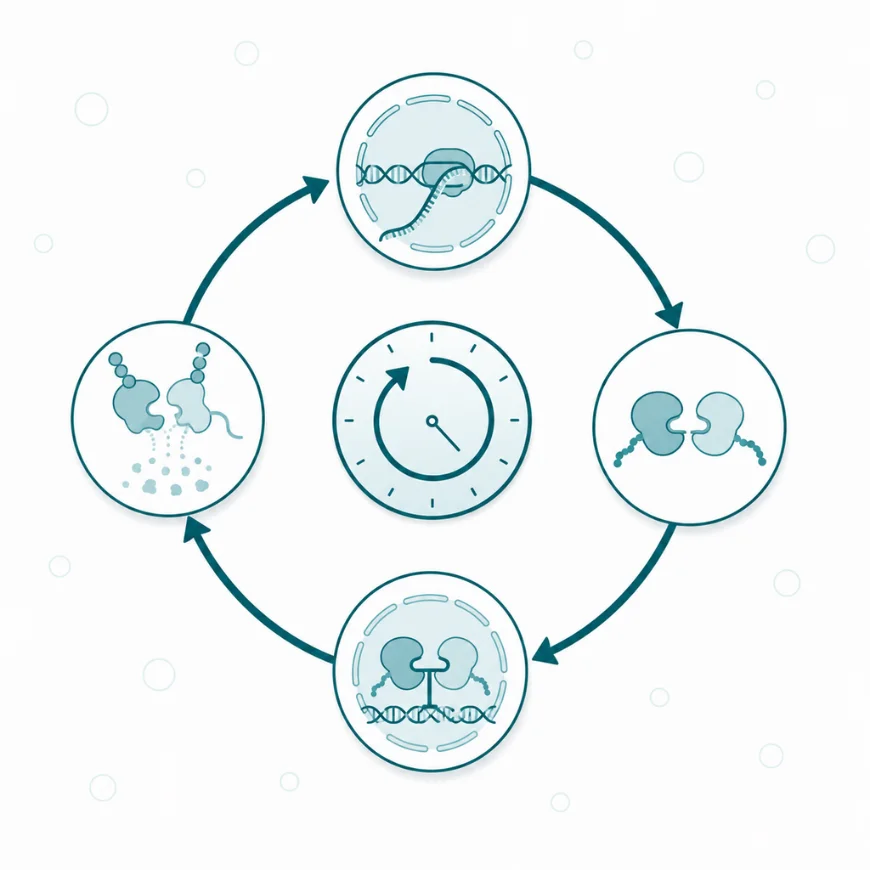
Biologicznym fundamentem zegara molekularnego jest pętla sprzężenia zwrotnego. Wyprodukowane białka stopniowo blokują aktywność własnych genów, a cały ten proces automatycznie resetuje się i powtarza co około 24 godziny.
2.4.2. Synchronizacja zegara dobowego ze światłem
Codzienna korekta zegara jest potrzebna, ponieważ jego własny okres u człowieka odbiega od 24 godzin, co ujawnia się u osób niewidomych bez percepcji światła [33]. Rolę korektora pełni światło, które SCN odbiera przez ipRGC.
Światło padające na siatkówkę pobudza ipRGC, a ich zakończenia uwalniają w rdzeniu SCN glutaminian i PACAP [7]. W neuronach rdzenia sygnał ten uruchamia w nocy ekspresję genów Per1 i Per2, czyli elementów pętli zegarowej [7]. Wzrost ilości białka PER przestawia fazę oscylatora w tych komórkach. Neurony rdzenia przekazują następnie zmianę fazy pozostałym komórkom jądra, w czym udział ma VIP [4].
Kierunek przesunięcia zależy od pory ekspozycji i opisuje go krzywa odpowiedzi fazowej. Światło wieczorem i w pierwszej połowie nocy opóźnia rytm, a światło nad ranem go przyspiesza [34, 35]. W badaniu z krótką ekspozycją na jasne białe światło różnica między największym opóźnieniem a największym przyspieszeniem wyniosła 2,2 godziny [34]. Przy świetle przyćmionym, poniżej 3 luksów, krzywej nie stwierdzono [34]. Zegar człowieka, którego okres odbiega od doby, wraca w ten sposób codziennie do zgodności z cyklem światła i ciemności.
2.4.3. Synchronizacja zegarów obwodowych
Zegary komórkowe działają w niemal wszystkich tkankach, a SCN ustala ich wspólną fazę [12]. Zegary te pracują także poza kontrolą SCN. U zwierząt z usuniętym jądrem ujawniają się oscylatory związane z przemianą materii, na przykład przy ograniczeniu pory karmienia [36].
SCN wyrównuje fazy tkanek trzema drogami [2]. Droga nerwowa biegnie przez układ autonomiczny, a droga hormonalna przez dobowe rytmy kortyzolu i melatoniny. Droga behawioralna działa przez porę jedzenia, snu i aktywności, które SCN również porządkuje w czasie [2]. W ten sposób narządy otrzymują informację o porze doby, choć same nie odbierają światła.
Zegary obwodowe mogą jednak odejść od fazy SCN, gdy sygnały lokalne nie zgadzają się z sygnałem centralnym [36]. U ludzi rytmy lipidów i białek wątrobowych przesuwały się pod wpływem światła i posiłków według krzywej odpowiedzi fazowej innej niż krzywa melatoniny [37]. Faza tkanek jest więc wypadkową sygnału z SCN i sygnałów lokalnych, a ich rozbieżność określa się jako desynchronizację wewnętrzną [36].
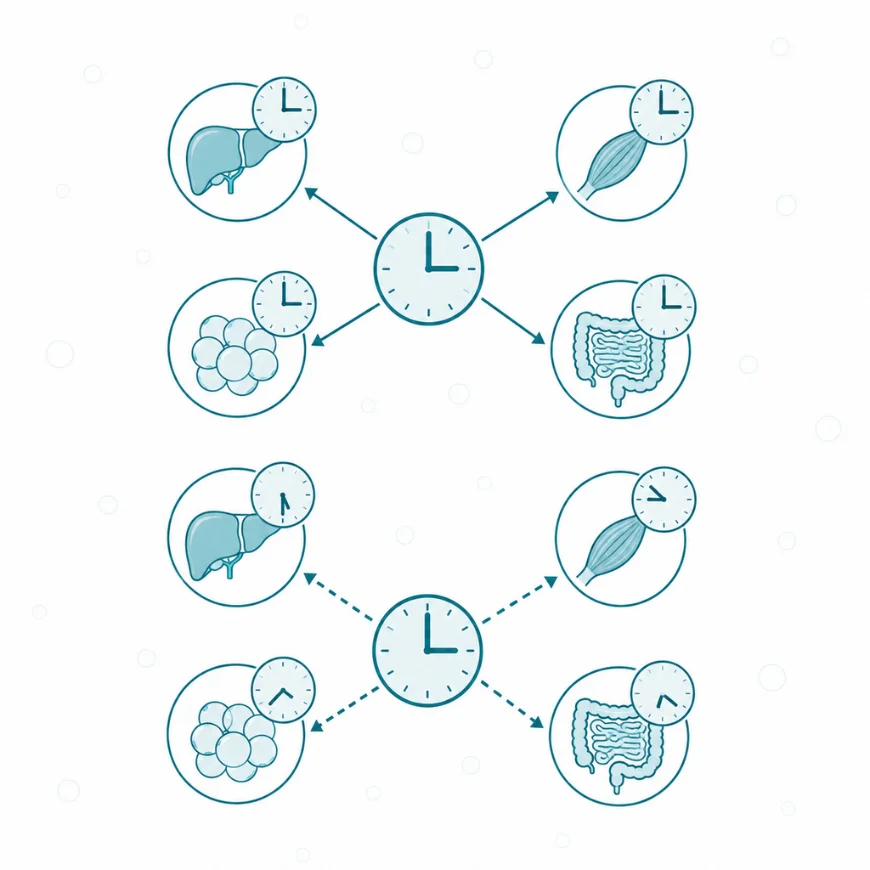
Zegary obwodowe w wątrobie, mięśniach i jelitach mają własne regulatory – reagują przede wszystkim na pory posiłków. Stąd łatwo o ich rozejście się z zegarem centralnym w mózgu.
2.4.4. Kontrola pory snu i czuwania
SCN nie wywołuje snu bezpośrednio, lecz ustala porę, w której sen jest najbardziej prawdopodobny. W modelu dwuprocesowym regulacji snu składnik okołodobowy, nazywany procesem C, pochodzi z SCN i współdziała z narastającą w czasie czuwania potrzebą snu, czyli procesem S [36]. Zapisy aktywności elektrycznej SCN wskazują, że oba procesy oddziałują na siebie w sposób ciągły [36].
Ważną stacją przekazującą sygnał SCN do ośrodków snu i czuwania jest jądro grzbietowo-przyśrodkowe podwzgórza [23]. U szczurów zniszczenie tego jądra zmniejszało dobowe rytmy czuwania, jedzenia, aktywności ruchowej i kortykosteroidów o 78–89% [23]. Obniżała się przy tym także całkowita dobowa ilość tych czynności [23]. U szczurów rytm snu i czuwania wymaga więc zarówno sprawnego zegara, jak i nienaruszonej stacji przekazującej jego sygnał.
2.4.5. Odmierzanie długości dnia
SCN rejestruje nie tylko porę świtu i zmierzchu, lecz także długość dnia, co pozwala zwierzętom przygotować się do zmian sezonowych [28]. Hipoteza podwójnego oscylatora, sformułowana przez Pittendrigha, zakłada, że zegar składa się z dwóch sprzężonych oscylatorów [28]. Jeden z nich śledzi świt, a drugi zmierzch, więc odstęp między ich fazami koduje długość dnia [28].
Połączenie hamującego i pobudzającego wpływu SCN na syntezę melatoniny może pozwalać na dopasowanie jej nocnego wydzielania do długości nocy [24]. U człowieka liczba neuronów SCN zawierających wazopresynę zmienia się nie tylko w cyklu dobowym, ale także w cyklu rocznym [19]. Hipoteza zakłada, że te roczne wahania wiążą się z rocznymi zmianami nastroju i snu u ludzi [19].
3. Uszkodzenie i patologia
3.1. Skutki uszkodzenia jądra nadskrzyżowaniowego
Opisane u człowieka uszkodzenia SCN dotyczą głównie chorych z guzami okolicy siodła tureckiego i skrzyżowania wzrokowego, takimi jak czaszkogardlak i gruczolak przysadki [8, 38]. Obraz zaburzeń odpowiada skutkom doświadczalnego zniszczenia jądra u zwierząt [6].
Opis przypadku z 1991 roku dotyczył chorej z ograniczonym uszkodzeniem przedniego podwzgórza. Zaburzeniu uległ u niej dobowy rozkład snu i czuwania, rytm temperatury ciała oraz funkcje poznawcze [39]. W przeglądzie systematycznym 32 prac o dzieciach z czaszkogardlakiem opisywano rozregulowanie rytmu snu i czuwania. Wśród jego mechanizmów wymieniano uszkodzenie SCN i niskie stężenie melatoniny [38]. Częstości tych zaburzeń nie udało się ustalić z powodu braku danych [38].
W badaniu 17 chorych po operacji gruczolaka przysadki, który uciskał skrzyżowanie wzrokowe, wydzielanie melatoniny było często nieprawidłowe [8]. U 12 z nich co najmniej jeden nocny parametr rytmu dobowego odbiegał od normy [8]. Różnica w wydzielaniu melatoniny względem grupy kontrolnej nie osiągnęła jednak istotności statystycznej [8]. Podobne wzorce zaburzeń stwierdzono u chorych leczonych z powodu czaszkogardlaka [8]. Ogniskowe uszkodzenie okolicy SCN u człowieka wiąże się więc z rozchwianiem pory snu i rytmu temperatury ciała, a u części chorych także z nieprawidłowym wydzielaniem melatoniny.
3.2. Udział jądra nadskrzyżowaniowego w chorobach
W chorobie Alzheimera objętość SCN i liczba jego komórek są wyraźnie zmniejszone. Sąsiednie jądra przykomorowe i nadwzrokowe zachowują natomiast liczbę komórek [40]. W badaniu sekcyjnym chorych z ciężkim otępieniem w przebiegu choroby Alzheimera liczba neuronów z wazopresyną w grzbietowej części SCN była mniejsza niż w grupie kontrolnej, wynosząc 9,75 wobec 16,7 w polu pomiarowym [41]. Rósł przy tym stosunek astrocytów do neuronów [41]. Zmiany neuronalne i glejowe w SCN opisano także w innych tauopatiach [42].
Ubytek komórek ma odbicie w zachowaniu. Amplituda dobowego rytmu aktywności ruchowej, mierzona za życia, korelowała z liczbą neuronów VIP w SCN zarówno u chorych z chorobą Alzheimera, jak i u osób bez otępienia [43]. Choroba Alzheimera wiązała się ponadto z opóźnieniem fazy rytmu [43]. Z zaburzeniami rytmu łączy się tak zwane zjawisko zachodu słońca (ang. sundowning), czyli wieczorne nasilenie niepokoju i dezorientacji u chorych z otępieniem [44]. Jego częstość w różnych badaniach wynosi od 1,6% do 66%, a mechanizm obejmuje neurodegenerację, zaburzenia snu, rytmu okołodobowego i nastroju [44].
Drugą grupę stanowią zaburzenia rytmu okołodobowego snu i czuwania, w których zegar traci zgodność z dobą. Ich najwyraźniejszy przykład dotyczy osób niewidomych bez percepcji światła. W badaniu 49 osób niewidomych rytm melatoniny był swobodnie biegnący, czyli przesuwający się każdego dnia względem doby, u 17 z 30 osób bez percepcji światła [33]. Okres tego rytmu wynosił od 24,13 do 24,79 godziny, podczas gdy 14 z 19 osób zachowujących percepcję światła miało rytm prawidłowo zsynchronizowany [33].
U większości osób całkowicie niewidomych występuje zaburzenie rytmu snu i czuwania innego niż 24-godzinny [45]. W pierwszym z dwóch badań z randomizacją tazymelteon, agonista obu receptorów melatoninowych, zsynchronizował rytm po miesiącu u 20% chorych wobec 3% w grupie placebo [45]. W drugim utrzymanie efektu wymagało kontynuacji leczenia [45]. Choroby dotykające SCN albo jego wejścia świetlnego mają więc wspólny skutek: zegar traci amplitudę lub zgodność z dobą, a objawy przenoszą się na sen, zachowanie i wydzielanie hormonów.
3.3. Badanie funkcjonowania jądra nadskrzyżowaniowego
Czynność SCN u człowieka ocenia się pośrednio, przez rytmy, którymi jądro steruje [46]. Bezpośrednie obrazowanie tak małej struktury wymaga czynnościowego rezonansu magnetycznego o bardzo wysokiej rozdzielczości przestrzennej i pozostaje metodą badawczą [11]. W takim badaniu ludzkie SCN odpowiadało na światło spadkiem sygnału, czyli zmniejszeniem aktywności, odwrotnie niż u gryzoni nocnych [11].
Najdokładniejszym markerem fazy zegara jest początek wydzielania melatoniny w przyćmionym świetle (ang. dim light melatonin onset, DLMO), czyli pora, o której stężenie melatoniny w ślinie lub osoczu zaczyna wieczorem rosnąć [46]. Pomiar wykonuje się w przyćmionym świetle, ponieważ światło hamuje wydzielanie melatoniny [47]. DLMO pozwala odróżnić rytm zsynchronizowany z dobą od swobodnie biegnącego i ocenić przesunięcie fazy [46]. Zamiennie oznacza się rytm wydalania z moczem 6-sulfatoksymelatoniny, głównego metabolitu melatoniny [33, 46].
Aktygrafia, czyli ciągły zapis ruchów ciała czujnikiem noszonym na nadgarstku, rejestruje rytm aktywności i odpoczynku [43]. Każdy z tych pomiarów opisuje wyjście zegara, a nie samo jądro. Nieprawidłowy wynik może więc wynikać także z zaburzeń wejścia świetlnego, czynności szyszynki albo trybu życia.
3.4. Czynniki wpływające na stan jądra nadskrzyżowaniowego
Stan SCN zmienia się pod wpływem czynników niemodyfikowalnych, takich jak wiek, oraz sygnałów z otoczenia, które przesuwają fazę zegara. Wiek zmienia budowę i sprawność sieci jądra, a sygnały z otoczenia przesuwają porę jego rytmu.
Z wiekiem dobowe wahania liczby neuronów z wazopresyną w ludzkim SCN słabną po 50. roku życia, a liczba tych neuronów maleje po 80. roku życia [19]. U starzejących się myszy neurony SCN tracą zgodność fazy, część z nich osiąga szczyt aktywności w przeciwfazie, a rytm całego jądra ma mniejszą amplitudę [48]. U człowieka zmianom w SCN towarzyszy ponadto mniejszy dopływ sygnału świetlnego do zegara [49].
Jasne światło jest podstawowym sygnałem synchronizującym zegar okołodobowy [50]. W badaniu 116 zdrowych osób oświetlenie pokojowe przed snem opóźniało początek wydzielania melatoniny u 99% badanych i skracało czas jej wydzielania o około 90 minut [47]. Pora posiłków działa inaczej. Opóźnienie posiłków o 5 godzin przesunęło rytm glukozy w osoczu o około 5,7 godziny, ale nie zmieniło rytmu melatoniny i kortyzolu, czyli markerów fazy SCN [51].
Wysiłek fizyczny przesuwa fazę rytmu melatoniny zależnie od pory. W badaniu 99 osób wysiłek rano i wczesnym popołudniem przyspieszał rytm, a wieczorem go opóźniał [50]. Wielkość tych przesunięć była porównywalna z oczekiwaną dla jasnego światła o tym samym czasie trwania [50]. Melatonina podana z zewnątrz działa na zegar według własnej krzywej odpowiedzi fazowej. Po południu, kilka godzin przed wieczornym wzrostem własnej melatoniny, przyspiesza rytm, a rano po przebudzeniu go opóźnia [52]. W pierwszej połowie nocy prawie nie przesuwa fazy [52]. Zmiany strukturalne SCN opisano dotąd w związku z wiekiem i chorobami neurodegeneracyjnymi [42, 49].
4. Na co warto zwrócić uwagę
Szyszynka i melatonina nie są zegarem organizmu. Z budowy drogi wyjściowej SCN wynika, że rytm melatoniny odzwierciedla fazę zegara, ale jej nie tworzy [3, 24]. Melatonina wpływa zwrotnie na SCN tylko w określonych porach doby, więc pełni rolę sygnału korygującego, a nie źródła rytmu [52]. Z tego samego powodu pomiar melatoniny służy do oceny fazy zegara, a nie do oceny szyszynki jako narządu.
Przekonanie, że na zegar działa wyłącznie światło niebieskie, jest uproszczeniem. W badaniu czynnościowym rezonansem magnetycznym aktywność ludzkiego SCN zmieniało światło niebieskie, zielone i pomarańczowe [11]. Większą wrażliwość na fale krótkie potwierdza natomiast badanie, w którym światło niebieskie o natężeniu około 11 luksów przesuwało fazę rytmu z siłą około 75% efektu światła białego o natężeniu 10 tysięcy luksów [35]. Dla zegara liczy się więc barwa, a także natężenie i pora ekspozycji, bo zwykłe oświetlenie pokojowe wieczorem przesuwa wydzielanie melatoniny także bez udziału ekranów [47].
Zaburzenia rytmu w chorobie Alzheimera nie wynikają wyłącznie z ubytku neuronów SCN. Przegląd badań sekcyjnych wskazuje na ograniczony zanik jądra u części chorych [53]. Doświadczenia z przeszczepami płodowego SCN pokazały ponadto, że wiele funkcji zegara utrzymuje się nawet przy szczątkowej tkance SCN [53]. W grę wchodzą także słabszy dopływ światła do zegara oraz zaburzenia snu i nastroju [44, 49]. Melatonina w przeglądzie systematycznym badań z randomizacją nie poprawiała głównych parametrów snu u chorych z chorobą Alzheimera, przy niskiej pewności danych [54]. W tym samym przeglądzie antagoniści receptorów oreksynowych, blokujący sygnał podtrzymujący czuwanie, z umiarkowaną pewnością wydłużali całkowity czas snu nocnego [54].
Dane o sprzężeniu neuronów, roli VIP i zegarze astrocytów pochodzą z badań na myszach i szczurach [27, 31, 32]. U człowieka SCN bada się głównie w materiale sekcyjnym i przez markery pośrednie [16, 46]. Gryzonie laboratoryjne są zwierzętami nocnymi, więc wnioski o reakcji ich zegara na światło nie przenoszą się na człowieka wprost [11]. Treść ma charakter edukacyjny, a utrwalone przesunięcie pory snu lub rozchwianie rytmu dobowego jest wskazaniem do konsultacji lekarskiej.