

1. Charakterystyka receptorów nikotynowych
1.1. Definicja i przynależność
Receptory nikotynowe (ang. nicotinic acetylcholine receptors, nAChR) to białka błonowe, które po związaniu acetylocholiny otwierają własny kanał dla kationów i w ciągu milisekund zmieniają potencjał błony komórki. Należą do receptorów jonotropowych, czyli takich, w których miejsce wiązania przekaźnika i kanał jonowy są częściami tej samej cząsteczki [1]. W obrębie tej grupy tworzą rodzinę pentamerów z pętlą cysteinową (ang. Cys-loop). Do tej samej rodziny należą też hamujące receptory kwasu γ-aminomasłowego typu A i receptory glicyny oraz pobudzające receptory serotoninowe typu 3 [2]. Receptor nikotynowy był pierwszym receptorem neuroprzekaźnika zidentyfikowanym chemicznie i stał się wzorcem dla całej tej rodziny [3].
Acetylocholina działa w organizmie przez dwie niespokrewnione klasy receptorów, które różnią się budową i szybkością odpowiedzi. Receptory muskarynowe należą do receptorów metabotropowych: nie mają kanału, a sygnał przekazują przez białka G i kaskadę enzymów. Receptor nikotynowy przewodzi jony bezpośrednio, więc jego odpowiedź jest szybsza i krótsza. Nazwy obu klas pochodzą od alkaloidów, które pobudzają głównie jedną z nich: nikotyny z tytoniu i muskaryny z muchomora czerwonego. Nie pochodzą więc od liganda fizjologicznego [1]. Receptor nikotynowy nie jest zatem receptorem „dla nikotyny”, tylko receptorem acetylocholiny, na który nikotyna działa jako ligand obcy organizmowi. Od kanałów bramkowanych napięciem odróżnia go mechanizm otwarcia: kanał receptora nikotynowego otwiera związanie przekaźnika, a nie zmiana potencjału błony [1].
Zakres pojęcia obejmuje wszystkie pentamery składane z podjednostek kodowanych przez rodzinę genów receptora nikotynowego, a nie jedno białko. U ssaków rodzina ta liczy 16 homologicznych podjednostek, które łączą się w liczne podtypy o odmiennym rozmieszczeniu, przewodnictwie i farmakologii [2]. U kręgowców podtypy dzieli się według głównego miejsca występowania na mięśniowe, neuronalne i występujące w komórkach rzęsatych ucha wewnętrznego [4]. Podział ten jest umowny, bo podtypy „neuronalne” występują też w komórkach śródbłonka, gleju, komórkach odpornościowych i nabłonku płuc [5]. Znaczenie rodziny wynika z tego, że te same białka przenoszą sygnał z nerwu ruchowego na mięsień, łączą neurony zwojów autonomicznych i modulują uwalnianie przekaźników w mózgu [1]. Są też punktem uchwytu leków zwiotczających mięśnie, leków stosowanych w leczeniu zależności od tytoniu oraz celem przeciwciał w miastenii [6, 7, 8].
1.2. Budowa i podtypy
Receptor nikotynowy jest zbudowany z pięciu podjednostek ułożonych jak klepki beczki wokół wspólnego kanału, który przebija błonę komórkową. Każda podjednostka ma dużą część zewnątrzkomórkową, cztery odcinki przechodzące przez błonę i pętlę po stronie cytoplazmy [2]. W modelu receptora z narządu elektrycznego ryby drętwy, opracowanym przy rozdzielczości 4 Å, opisano wszystkie trzy części cząsteczki: domenę wiążącą ligand, część błonową i domenę wewnątrzkomórkową [9]. Przedsionki kanału po obu stronach błony niosą silny ładunek ujemny, a boczne okienka po stronie cytoplazmy odsiewają jony o niewłaściwym ładunku i rozmiarze [9]. Dzięki temu kanał przepuszcza kationy, a zatrzymuje aniony.
Miejsce wiązania acetylocholiny leży w części zewnątrzkomórkowej, na styku dwóch sąsiednich podjednostek, z których stronę główną tworzy podjednostka α [1]. W receptorze mięśniowym dwie podjednostki α niosą dwa miejsca wiązania, a w stanie spoczynku mają inną konformację niż trzy pozostałe podjednostki [9]. Związanie przekaźnika zamyka pętle B i C wokół cząsteczki acetylocholiny i uruchamia obrót części błonowych, który otwiera kanał [9]. Receptor mięśniowy płodu zawiera podjednostki α, β, γ i δ, a u dorosłego podjednostkę γ zastępuje ε. Zamiana ta zmienia przewodnictwo i czas otwarcia kanału [10]. Receptor α7 różni się od mięśniowego składem: jest homopentamerem zbudowanym z pięciu identycznych podjednostek, więc miejsca wiązania powstają na stykach jednakowych białek [11, 12].
Kanał receptora nikotynowego przepuszcza jony sodu, potasu i wapnia, a udział wapnia w prądzie zależy od składu podjednostek [13]. Najwięcej wapnia przewodzi receptor α7. W oocytach żaby z ekspresją receptora α7 szczura względna przepuszczalność dla Ca²⁺ była większa niż w innych receptorach nikotynowych [11]. Przewyższała nawet przepuszczalność receptora glutaminianu typu NMDA, czyli receptora N-metylo-D-asparaginianu znanego z dużego przewodnictwa wapniowego [11]. Struktura ludzkiego receptora α7 wyjaśniła tę cechę: w przedsionku kanału leży pierścień reszt aminokwasowych o ładunku ujemnym, który przyciąga kationy i zwiększa przewodnictwo dla wapnia [12]. Ten sam receptor odczula się szybciej niż jakikolwiek inny receptor z pętlą cysteinową [12]. W efekcie pobudzenie receptora α7 wywołuje w komórce krótki napływ wapnia, a nie trwałą depolaryzację błony.
1.3. Rys historyczny
Receptor nikotynowy dał początek samemu pojęciu receptora. W 1905 roku J.N. Langley badał działanie nikotyny i kurary na mięsień poprzecznie prążkowany [14]. Na tej podstawie wprowadził pojęcie „substancji receptywnej”, czyli składnika komórki, z którym łączy się trucizna, i z tego pojęcia wyrosła idea receptora [1]. Przez następne dziesięciolecia receptor pozostawał jednak pojęciem farmakologicznym bez zidentyfikowanej cząsteczki [3]. W 1970 roku J.-P. Changeux, M. Kasai i C.Y. Lee użyli α-bungarotoksyny, polipeptydu o masie około 8000 Da z jadu węża Bungarus multicinctus [15]. Toksyna nieodwracalnie blokowała pobudzenie komórek narządu elektrycznego i wiązanie dekametonium przez białko wyizolowane z tej tkanki, co według autorów wzmocniło wniosek, że białko to jest receptorem [15]. Była to pierwsza chemiczna identyfikacja receptora neuroprzekaźnika [3]. Bogatym źródłem receptora mięśniowego stał się następnie narząd elektryczny ryby drętwy [1]. W 2005 roku Nigel Unwin przedstawił model atomowy tego receptora przy rozdzielczości 4 Å, w którym po raz pierwszy opisano na poziomie chemicznym domenę wiążącą ligand i domenę wewnątrzkomórkową [9]. W 2021 roku zespół C.M. Noviello przedstawił uzyskane kriomikroskopią elektronową struktury ludzkiego receptora α7 w stanie spoczynku, aktywacji i odczulenia [12].

2. Działanie molekularne
2.1. Ligandy endogenne i egzogenne
Ligandem fizjologicznym wszystkich receptorów nikotynowych jest acetylocholina uwalniana z zakończeń neuronów cholinergicznych, ale nie jest ona jedyną cząsteczką organizmu, która te receptory pobudza. Cholina, czyli produkt rozkładu acetylocholiny przez acetylocholinoesterazę, działa jako agonista wybiórczy receptora α7 [16]. W skrawkach hipokampa szczura cholina pobudzała receptory α7 na interneuronach i ułatwiała uwalnianie kwasu γ-aminomasłowego [16]. Autorzy tej pracy uznali, że cholina powstająca w synapsie z rozkładu acetylocholiny może wystarczać do sterowania aktywnością tego podtypu [16]. Aktywność receptora zmieniają też białka organizmu. Białko lynx1, spokrewnione budową z neurotoksynami węży, występuje w dużych neuronach kory, hipokampa i móżdżku, a w oocytach żaby zwiększało prądy wywołane acetylocholiną [17].
Agonistami egzogennymi są przede wszystkim alkaloidy roślinne i zwierzęce oraz leki zaprojektowane na ich wzór. Nikotyna, alkaloid tytoniu, wiąże się z miejscem acetylocholiny w wielu podtypach i otwiera kanał. Niskie stężenia nikotyny utrzymujące się we krwi osób palących tytoń zarówno pobudzają receptory neuronalne, jak i je odczulają [2]. Cytyzyna, alkaloid z nasion złotokapu, wiąże się z dużym powinowactwem z receptorem α4β2 i pobudza go tylko częściowo [18]. Wareniklina powstała na wzór budowy cytyzyny [19]. W receptorach szczura wyrażonych w oocytach żaby była częściowym agonistą receptora α4β2 o skuteczności 13,4% odpowiedzi na acetylocholinę, a zarazem pełnym agonistą receptora α7 [19]. Epibatydyna, alkaloid wyizolowany ze skóry żaby, wiązała się z miejscami nikotynowymi w błonach mózgu szczura ze stałą wiązania około 0,05 nM [20]. U myszy działała przeciwbólowo, a działanie to znosiła mekamylamina, antagonista receptorów nikotynowych [20].
Antagoniści i modulatory działają w trzech różnych miejscach cząsteczki receptora. Antagoniści kompetycyjni zajmują miejsce wiązania acetylocholiny. Taką cząsteczką jest d-tubokuraryna, czynny składnik kurary. W strukturze receptora mięśniowego ryby drętwy stabilizowała ona konformację podobną do stanu odczulenia, także bez obecności agonisty [21]. Toksyna α-bungarotoksyna wiąże się z receptorem mięśniowym niemal nieodwracalnie, dlatego służy jako znacznik receptora [1]. Mekamylamina blokuje sam kanał jonowy, a nie miejsce wiązania agonisty [22]. Pozytywne modulatory allosteryczne wiążą się poza miejscem acetylocholiny i same kanału nie otwierają. Cząsteczka PNU-120596 zwiększała prądy wywołane agonistą w ludzkim receptorze α7 i wydłużała czas otwarcia kanału, a nie zmieniała prądów receptorów α4β2 ani α3β4 [23].
Ligandy receptorów nikotynowych można uporządkować według pochodzenia, rodzaju działania i preferowanego podtypu.
| Ligand | Pochodzenie | Działanie na receptor | Podtyp, którego dotyczy działanie |
| Acetylocholina | przekaźnik organizmu | agonista pełny | wszystkie podtypy |
| Cholina | produkt rozkładu acetylocholiny | agonista wybiórczy | α7 |
| Lynx1 | białko neuronów | modulator zwiększający prąd | receptory neuronalne (oocyty) |
| Nikotyna | alkaloid tytoniu | agonista, przy długiej ekspozycji odczula | receptory neuronalne |
| Cytyzyna | alkaloid złotokapu | agonista częściowy | α4β2 |
| Wareniklina | lek syntetyczny | agonista częściowy α4β2, pełny α7 | α4β2, α7, α3β4 |
| Epibatydyna | alkaloid ze skóry żaby | agonista o bardzo dużym powinowactwie | receptory neuronalne |
| d-Tubokuraryna | czynny składnik kurary | antagonista | receptor mięśniowy |
| α-Bungarotoksyna | jad węża Bungarus multicinctus | antagonista niemal nieodwracalny | receptor mięśniowy |
| Mekamylamina | lek syntetyczny | bloker kanału | receptory neuronalne |
| PNU-120596 | związek badawczy | pozytywny modulator allosteryczny | α7 |
Podobieństwo budowy ligandu nie przesądza o odpowiedzi receptora. Wareniklina powstała na wzór cytyzyny, obie pobudzają receptor α4β2 tylko częściowo, a mimo to wareniklina jest pełnym agonistą receptora α7.
2.2. Podtypy receptora i ich rozmieszczenie
Podtyp receptora nikotynowego określa zestaw pięciu podjednostek, a od tego zestawu zależy, w jakiej tkance receptor występuje i jak reaguje na ligandy. Receptor mięśniowy leży w błonie włókna mięśniowego naprzeciw zakończenia nerwu ruchowego, w tak zwanej płytce końcowej, i przekazuje sygnał z neuronu ruchowego na mięsień [24]. U dorosłego ma skład dwóch podjednostek α1 oraz po jednej β1, δ i ε, a w życiu płodowym zamiast ε zawiera γ [9, 10]. Receptory zwojów autonomicznych zbudowane są głównie z podjednostek α3 i β4 [25]. U myszy pozbawionych podjednostek β2 i β4 neurony zwoju szyjnego górnego nie odpowiadały na acetylocholinę, źrenice były rozszerzone i nie zwężały się na światło, a pęcherz moczowy był powiększony [25]. U tych zwierząt zawiodło więc przekazywanie sygnału w zwojach obu części autonomicznego układu nerwowego.
W mózgu dominują dwa podtypy o odmiennych właściwościach. Receptory zawierające podjednostkę β2, przede wszystkim α4β2, są najliczniejszym podtypem mózgowym i pośredniczą we wzmacniającym działaniu nikotyny [26]. Transkrypty podjednostki α7 wykryto w dużej ilości w hipokampie, korze mózgu, ciele migdałowatym, podwzgórzu i okolicach węchowych szczura [11]. W układzie cholinergicznym receptory te leżą często nie w samej synapsie, lecz na zakończeniach presynaptycznych innych neuronów, gdzie zmieniają ilość uwalnianego przekaźnika [27]. Szczególną rolę pełnią receptory neuronów dopaminergicznych brzusznego pola nakrywki śródmózgowia. U myszy na ciałach tych neuronów przeważał receptor α4β2, a na ich zakończeniach w prążkowiu występowały także receptory z podjednostką α6 [28]. Przywrócenie podjednostki β2 wyłącznie w brzusznym polu nakrywki myszy pozbawionych tej podjednostki przywracało uwalnianie dopaminy pod wpływem nikotyny [29].
Poza neuronami ośrodkowymi receptory nikotynowe działają w komórkach, które nie przewodzą impulsów nerwowych. Podjednostki α9 i α10 tworzą receptor komórek rzęsatych ucha wewnętrznego, przez który włókna odprowadzające z pnia mózgu regulują czynność tych komórek [4]. Receptor α7 występuje na makrofagach i hamuje uwalnianie przez nie czynnika martwicy nowotworów pod wpływem acetylocholiny [30]. U myszy pozbawionych podjednostki α7 elektryczne drażnienie nerwu błędnego nie hamowało wytwarzania tej cytokiny, choć u myszy prawidłowych je hamowało [30]. Receptory nikotynowe opisano ponadto w komórkach śródbłonka, gleju, nabłonka płuc i komórkach nowotworowych, gdzie wpływają na różnicowanie, podziały i odpowiedź zapalną [5].
Główne podtypy receptora nikotynowego różnią się składem, miejscem występowania i właściwościami kanału.
| Podtyp | Główne miejsce występowania | Wyróżniająca właściwość | Znaczenie |
| (α1)₂β1δε – mięśniowy dorosły | płytka końcowa mięśnia szkieletowego | dwa miejsca wiązania na podjednostkach α1 | przekaźnictwo nerwowo-mięśniowe, cel przeciwciał w miastenii, punkt uchwytu leków zwiotczających |
| (α1)₂β1γδ – mięśniowy płodowy | mięsień płodu | inne przewodnictwo i czas otwarcia niż postać dorosła | przekaźnictwo w mięśniu rozwijającym się |
| α3β4 | zwoje autonomiczne | główny receptor zwojowy | przekaźnictwo współczulne i przywspółczulne |
| α4β2 | mózg, zwłaszcza kora i prążkowie | najliczniejszy podtyp mózgowy, nadregulacja pod wpływem nikotyny | działanie wzmacniające nikotyny, punkt uchwytu warenikliny i cytyzyny |
| α6β2 | zakończenia neuronów dopaminergicznych w prążkowiu | występuje na zakończeniach, a nie na ciałach neuronów | modulacja uwalniania dopaminy |
| α7 – homopentamer | hipokamp, kora, makrofagi | największa przepuszczalność dla Ca²⁺, najszybsze odczulenie | modulacja uwalniania przekaźników, hamowanie wydzielania cytokin |
| α9α10 | komórki rzęsate ucha wewnętrznego | najbardziej odmienny od pozostałych | odprowadzająca regulacja słuchu |
Rozmieszczenie podtypów tłumaczy, dlaczego ta sama acetylocholina uruchamia skurcz mięśnia, przekaźnictwo zwojowe i hamowanie zapalenia, a leki działające na jeden podtyp mogą oszczędzać pozostałe.
2.3. Kaskada po aktywacji
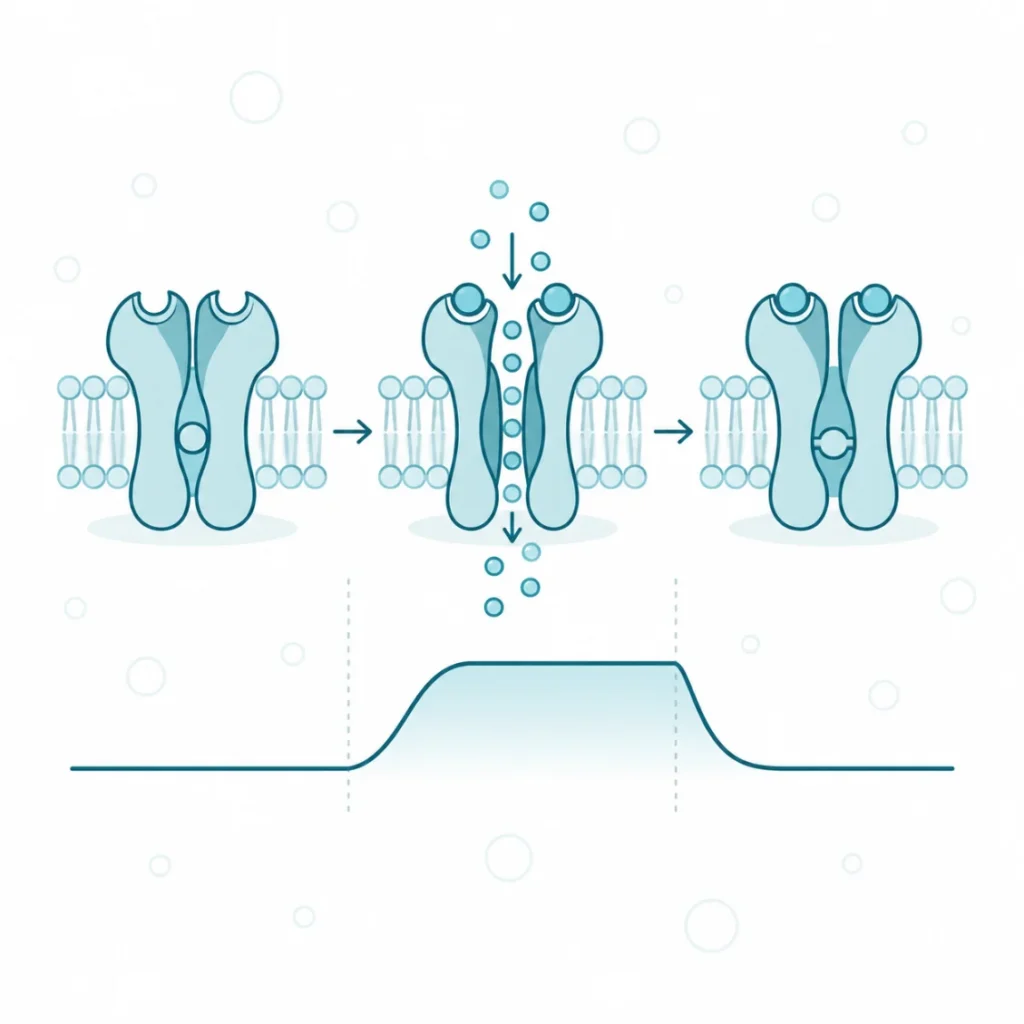
Kaskada po aktywacji receptora nikotynowego jest krótka, bo receptor sam jest kanałem i nie potrzebuje pośredników, aby zmienić stan elektryczny komórki. W spoczynku kanał jest zamknięty, a reszty aminokwasowe wiążące acetylocholinę leżą w podjednostkach α daleko od siebie [9]. Bodźcem jest związanie acetylocholiny, w receptorze mięśniowym w dwóch miejscach naraz. Pętle B i C domykają się wokół cząsteczki przekaźnika, a zmiana ta usuwa odkształcenie podjednostek α i uruchamia obrót ich części błonowych [9]. Obrót poszerza por kanału i otwiera drogę dla kationów. Do komórki napływają jony sodu i wapnia, a wypływa z niej mniej jonów potasu, więc błona ulega depolaryzacji [1, 13].
Dalszy przebieg zależy od tego, gdzie receptor leży. We włóknie mięśniowym depolaryzacja płytki końcowej wyzwala potencjał czynnościowy, który rozchodzi się wzdłuż włókna i uruchamia skurcz [21]. Sygnał kończy acetylocholinoesteraza, która rozkłada acetylocholinę w szczelinie synaptycznej, a receptor wraca do stanu spoczynku. W neuronach ośrodkowych ważnym skutkiem pobudzenia receptorów nikotynowych jest zmiana ilości uwalnianego przekaźnika [27]. Receptory presynaptyczne leżą na zakończeniach neuronów i regulują uwalnianie przekaźnika, na przykład dopaminy w prążkowiu i kwasu γ-aminomasłowego w hipokampie [16, 27, 28]. Wapń może wniknąć do zakończenia bezpośrednio przez kanał receptora, zwłaszcza α7, albo pośrednio przez kanały wapniowe bramkowane napięciem, które otwiera depolaryzacja [2, 13]. Napływ wapnia wpływa na uwalnianie przekaźnika, plastyczność synaptyczną i ruchliwość komórek [13].
Czas trwania odpowiedzi zależy od podtypu, co widać na interneuronach hipokampa szczura, które mają oba główne podtypy mózgowe. Odpowiedzi przenoszone przez receptor α7 trwały krótko, a przenoszone przez receptory podobne do α4β2 utrzymywały się długo [16]. Autorzy wywnioskowali, że wybiórcze pobudzenie receptora α7 może wywoływać fazowe, czyli krótkotrwałe, hamowanie interneuronów pola CA1, a pobudzenie receptora α4β2 hamowanie toniczne, czyli ciągłe [16]. Stan końcowy kaskady to więc nie sama depolaryzacja, lecz zmiana wzorca przekaźnictwa w sieci neuronów, której czas trwania wyznacza podtyp receptora.
2.4. Desensytyzacja i zmienność genetyczna
Desensytyzacja, czyli odczulenie, to odwracalne zmniejszenie odpowiedzi receptora nikotynowego podczas utrzymującej się obecności agonisty [31]. Receptor odczulony ma związany agonistę, ale jego kanał pozostaje zamknięty. W strukturze receptora mięśniowego związanie agonisty karbacholu stabilizowało asymetryczny stan odczulenia z zamkniętym kanałem, a powrót do stanu spoczynku wiązał się ze zmianą położenia obwodowej helisy błonowej [21]. Tempo odczulenia różni się między podtypami i najszybsze jest w receptorze α7 [12]. Odczulenie zmienia skuteczność przekaźnictwa synaptycznego i odpowiedź na leki cholinergiczne, a niektóre naturalne mutacje receptora zmieniają je w dużym stopniu [31]. Dla neuronu oznacza to, że stała obecność agonisty ogranicza przekaźnictwo, zamiast je wzmacniać.
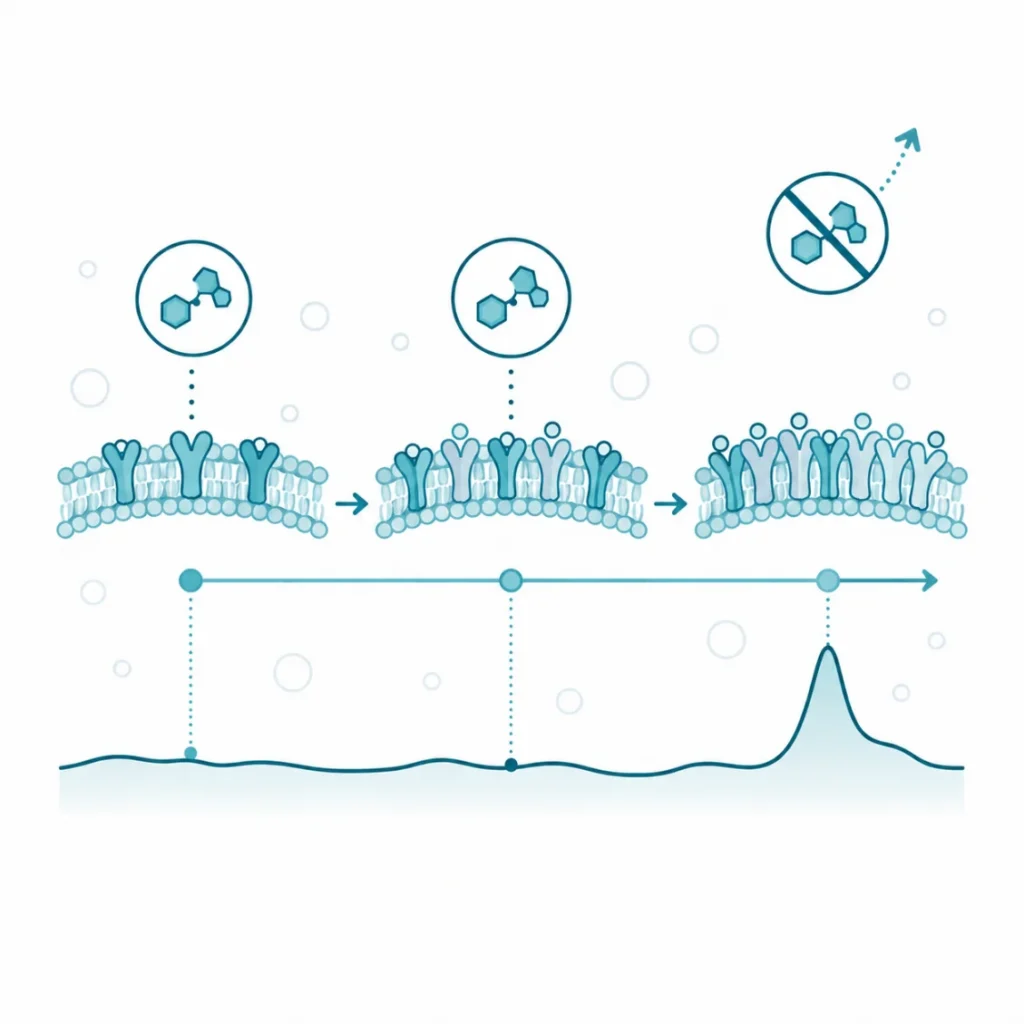
Przewlekła ekspozycja na nikotynę wywołuje zjawisko pozornie sprzeczne z odczuleniem: liczba receptorów α4β2 w błonie nie maleje, lecz rośnie. Tę tak zwaną nadregulację wyjaśniono w ludzkich liniach komórkowych z ekspresją receptora α4β2 [22]. Po 3–24 godzinach ekspozycji na ligand przybywało receptorów głównie dzięki szybszemu składaniu pentamerów z dużej puli wolnych podjednostek, a ponadto czas życia receptora w błonie wydłużał się pięciokrotnie [22]. Nadregulacja nie wymagała przepływu prądu przez kanał, bo zachodziła także w obecności blokera kanału mekamylaminy i w receptorze z mutacją znoszącą niemal całą jego czynność [22]. Nikotyna działa więc w siateczce śródplazmatycznej jak farmakologiczne białko opiekuńcze, czyli cząsteczka stabilizująca składane podjednostki, a agoniści robią to skuteczniej niż antagoniści [22]. U ludzi po około tygodniu abstynencji od palenia tytoniu dostępność receptorów z podjednostką β2 była większa niż u osób niepalących [26]. W obrazowaniu SPECT, czyli tomografii emisyjnej pojedynczego fotonu, przewyższała ją o 26–36% w korze mózgu i o 27% w prążkowiu [26]. Utrzymująca się nadwyżka receptorów, które przestaje pobudzać nikotyna, jest jednym z proponowanych mechanizmów receptorowych zależności od tytoniu [26].
Gęstość i czynność receptorów zależą też od zmienności genów. Wariant rs16969968 genu CHRNA5, kodującego podjednostkę α5, zmienia jeden aminokwas w białku, a jego częstość wynosiła od 0% w populacjach afrykańskich do 37% w populacjach europejskich [32]. W badaniu 2284 osób z 219 rodzin wariant ten wiązał się z nałogowym paleniem, a w badaniu in vitro allel ryzyka zmniejszał odpowiedź receptora na agonistę [32]. W metaanalizie badań asocjacyjnych całego genomu, obejmującej 74 053 osoby, najsilniejszy związek z liczbą papierosów wypalanych dziennie miał polimorfizm w sąsiednim genie CHRNA3 w regionie 15q25 [33]. Mechanizm tego związku badano na zwierzętach. Myszy pozbawione podjednostki α5 przyjmowały znacznie więcej nikotyny, a przywrócenie tej podjednostki w jądrze przyśrodkowym uzdeczki znosiło ten skutek [34]. Z jądra tego biegnie droga do jądra międzykonarowego, którą według autorów płynie sygnał hamujący dalsze przyjmowanie nikotyny [34]. Warianty genów podjednostek opisano jako czynniki ryzyka w badaniach populacyjnych, a mechanizm ich działania poznano w modelach gryzoni [32, 33, 34].
2.5. Farmakologia – agoniści, antagoniści, modulatory
Farmakologia receptorów nikotynowych obejmuje leki działające na receptor mięśniowy, na receptory zwojowe i na receptory mózgowe, a o ich zastosowaniu decyduje wybiórczość wobec podtypu. Najlepiej zbadaną grupą leków ośrodkowych są częściowi agoniści receptora α4β2, czyli wareniklina i cytyzyna. Agonista częściowy wiąże się z receptorem i pobudza go słabiej niż ligand pełny, a zarazem zajmuje miejsce, którego nie może wtedy zająć nikotyna. Według autorów przeglądu Cochrane podtrzymuje on w ten sposób umiarkowane uwalnianie dopaminy, łagodząc objawy odstawienia, i zmniejsza nagradzające działanie nikotyny [7]. W przeglądzie tym, obejmującym 75 badań z randomizacją i 45 049 osób, wareniklina zwiększała odsetek osób, które zaprzestały palenia, w porównaniu z placebo (ryzyko względne, RR, 2,32), a cytyzyna również (RR 1,30) [7]. Osoby przyjmujące wareniklinę częściej zgłaszały poważne zdarzenia niepożądane (RR 1,23), a po cytyzynie ich częstość nie różniła się od placebo [7]. Bezpośrednie porównania warenikliny z cytyzyną były zbyt nieliczne i nieprecyzyjne, aby rozstrzygnąć, która jest skuteczniejsza [7].
Bezpieczeństwo psychiczne warenikliny oceniono w badaniu EAGLES, badaniu z randomizacją i podwójnie ślepą próbą obejmującym 8144 osoby palące, z zaburzeniami psychicznymi i bez nich [35]. Wareniklina i bupropion nie zwiększały istotnie częstości umiarkowanych i ciężkich neuropsychiatrycznych zdarzeń niepożądanych względem plastra nikotynowego i placebo [35]. Odsetek osób utrzymujących abstynencję w 9.–12. tygodniu był w grupie warenikliny wyższy niż po placebo (iloraz szans 3,61), po plastrze nikotynowym (1,68) i po bupropionie (1,75) [35]. Cytyzynę porównano wprost z nikotynową terapią zastępczą w otwartym badaniu z randomizacją obejmującym 1310 osób w Nowej Zelandii [36]. Abstynencję po miesiącu zgłosiło 40% osób w grupie cytyzyny wobec 31% w grupie terapii zastępczej, przy większej częstości zdarzeń niepożądanych, głównie nudności [36].
Druga grupa leków działa na receptor mięśniowy i służy zwiotczeniu mięśni w czasie znieczulenia. Leki niedepolaryzujące, takie jak rokuronium i d-tubokuraryna, są antagonistami kompetycyjnymi: zajmują miejsce wiązania acetylocholiny i nie dopuszczają do pobudzenia płytki końcowej [6]. Sukcynylocholina działa odwrotnie, jako agonista: najpierw pobudza receptor i depolaryzuje płytkę, a następnie utrzymuje trwałe zablokowanie przekaźnictwa, bo w przeciwieństwie do acetylocholiny nie jest szybko rozkładana przez acetylocholinoesterazę [6]. Osobną rolę pełni acetylocholinoesteraza jako pośredni cel leków. W skrawkach hipokampa szczura inhibitory tego enzymu, w tym hupercyna A i takryna, zmieniały odpowiedź receptorów nikotynowych pośrednio, przez zwiększenie ilości i czasu obecności acetylocholiny w synapsie [37]. Galantamina hamuje enzym i zarazem działa jako allosteryczny modulator nasilający odpowiedź receptorów nikotynowych [37]. Mekamylamina, bloker kanału receptorów neuronalnych zarejestrowany jako lek przeciwnadciśnieniowy, osłabia działanie nikotyny i służy też jako narzędzie badawcze [38].
Trzecia grupa to modulatory allosteryczne, badane w chorobach z osłabionym przekaźnictwem cholinergicznym. Cząsteczka PNU-120596 nie otwiera kanału sama, lecz nasila i wydłuża odpowiedź receptora α7 na acetylocholinę [23]. Memantyna, bloker receptora NMDA stosowany w chorobie Alzheimera, hamowała w hodowanych neuronach hipokampa szczura także receptor α7, i to silniej niż receptor NMDA [39]. Wiązała się przy tym z dwoma rodzajami miejsc: jednym w kanale i drugim w części zewnątrzkomórkowej receptora [39]. Autorzy tej pracy zwrócili uwagę, że hamowanie receptora α7 może zmniejszać skuteczność memantyny we wczesnej chorobie Alzheimera [39]. Modulacja allosteryczna receptora α7 pozostaje więc obszarem badań, w którym ta sama cząsteczka może działać na kilka receptorów naraz.
3. Znaczenie kliniczne
3.1. Następstwa zmiany aktywności
Następstwa zmiany aktywności receptorów nikotynowych zależą od tego, który podtyp i w której tkance jest dotknięty, a obraz kliniczny bywa przeciwny przy obniżonej i podwyższonej aktywności. Obniżenie aktywności receptora mięśniowego objawia się nużliwym osłabieniem mięśni, które nasila się przy wysiłku. W miastenii przeciwciała skierowane przeciw receptorowi mięśniowemu zmniejszają liczbę czynnych receptorów w płytce końcowej, przez co pobudzenie z nerwu przestaje wystarczać do skurczu [8]. Przeciwciała przeciw receptorowi acetylocholiny stwierdza się u 80–85% chorych na miastenię, a u części pozostałych występują przeciwciała przeciw innym białkom płytki końcowej [8]. Wrodzone zespoły miasteniczne dają podobny obraz, ale ich przyczyną nie jest odpowiedź odpornościowa, lecz dziedziczne wady białek płytki, najczęściej samego receptora mięśniowego [24].
Obniżenie aktywności receptorów mózgowych wiąże się ze słabszymi funkcjami poznawczymi. W chorobie Alzheimera liczba receptorów nikotynowych w mózgu maleje, a badania obrazowe pokazują, że dzieje się to wcześnie. W badaniu z pozytonową tomografią emisyjną i znacznikiem receptora α4β2 dostępność tych receptorów była zmniejszona w typowo zajętych okolicach mózgu [40]. Ubytek dotyczył zarówno chorych na chorobę Alzheimera, jak i osób z łagodnymi zaburzeniami poznawczymi, a jego stopień korelował z nasileniem zaburzeń [40]. Podwyższenie aktywności receptorów mózgowych daje z kolei obraz przeciwny: nadmierne, napadowe pobudzenie kory. Odziedziczalne postaci nocnej padaczki czołowej wywołują mutacje genów podjednostek receptora neuronalnego, najpierw opisana mutacja CHRNA4 zmieniająca aminokwas w odcinku wyściełającym kanał, potem mutacje CHRNB2 [41, 42]. U chorych występują częste, krótkie napady padaczki płata czołowego w czasie snu [41, 42]. W badaniach czynnościowych zmutowanych receptorów mutacje związane z tą padaczką zwiększały wrażliwość receptora na acetylocholinę, czyli nasilały jego czynność [48].
Obniżenie aktywności receptorów zwojowych upośledza z kolei czynność narządów wewnętrznych sterowanych autonomicznie. U myszy pozbawionych podjednostek β2 i β4 receptory zwojowe nie działały, źrenice były trwale rozszerzone i nie reagowały na światło, a pęcherz moczowy był powiększony z zaleganiem moczu [25]. Obraz ten przypominał u ludzi wrodzonemu zespołowi z powiększeniem pęcherza i zaburzeniami perystaltyki, co wiąże receptor zwojowy z prawidłową czynnością mięśni gładkich [25].
3.2. Udział receptorów nikotynowych w chorobach
Poza chorobami wynikającymi wprost ze zmiany aktywności receptora podtypy nikotynowe uczestniczą w zaburzeniach, w których są jednym z wielu ogniw. Zależność od tytoniu ma podłoże receptorowe. Nikotyna pobudza receptory α4β2 neuronów dopaminergicznych, co zwiększa uwalnianie dopaminy w układzie nagrody, a przewlekła ekspozycja prowadzi do nadregulacji tych receptorów i do odczulenia, które według autorów badań mogą podtrzymywać zależność [26, 29].
Receptor α7 badano w schizofrenii. Deficyt hamowania odpowiedzi słuchowej, cechę spotykaną u chorych i u części ich krewnych, powiązano z locus na chromosomie 15 w miejscu genu receptora α7 [43]. Na tej podstawie postawiono hipotezę, że osłabiona czynność tego receptora bierze udział w patofizjologii choroby [43]. Hipotezę tę testowano, podając agonistów receptora α7 jako leki poprawiające funkcje poznawcze. Enceniklina, częściowy agonista tego receptora, w badaniu 2. fazy z randomizacją poprawiała niektóre miary poznawcze u chorych na schizofrenię [44]. W dalszych badaniach klinicznych agoniści receptora α7, w tym enceniklina, nie wykazali jednak wystarczającej skuteczności, a w badaniu obrazowym u świni zajętość receptora α7 przez enceniklinę była ograniczona [45]. Powiązanie receptora α7 ze schizofrenią nie przełożyło się więc dotąd na skuteczny lek.
3.3. Wsparcie suplementacyjne
Kilka substancji stosowanych jako suplementy lub leki działa bezpośrednio na receptor nikotynowy, a nie tylko na powiązane z nim zjawiska, a ich działanie opisano w badaniach na zwierzętach i in vitro. Wpływ na receptor przyjmuje trzy postaci: pobudzenie, hamowanie i nasilenie odpowiedzi na acetylocholinę bez wiązania w miejscu przekaźnika. Kierunek wpływu dotyczy aktywności samego receptora, a nie jakiegokolwiek objawu klinicznego.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Cholina | agonista wybiórczy receptora α7 | ↑ aktywność | C |
| Kurkuma | pozytywny modulator allosteryczny receptora α7 (przez kurkuminę) | ↑ aktywność | C |
| Memantyna (lek) | hamuje receptor α7 przez miejsce w kanale i poza nim | ↓ aktywność | C |
Cholina, poza rolą prekursora acetylocholiny, sama pobudza wybiórczo receptor α7, co wykazano na interneuronach hipokampa szczura [16]. Kurkumina, czynny składnik kurkumy, nasilała prądy wywołane acetylocholiną w oocytach żaby z ekspresją ludzkiego receptora α7, działając jako pozytywny modulator allosteryczny, a u myszy jej działanie przeciwbólowe zależało od tego receptora [46]. Memantyna hamowała receptor α7 w hodowanych neuronach hipokampa szczura silniej niż receptor NMDA [39]. Wszystkie trzy zależności pochodzą z badań na zwierzętach lub in vitro (siła dowodu C), więc opisują właściwość farmakologiczną substancji, a nie potwierdzone działanie u człowieka. Niektóre popularne substancje zmieniają czynność receptora tylko pośrednio. Hupercyna A, inhibitor acetylocholinoesterazy, zmieniała w skrawkach hipokampa szczura odpowiedź receptorów nikotynowych wyłącznie przez zwiększenie ilości dostępnej acetylocholiny [37].
4. Na co warto zwrócić uwagę
Wokół receptorów nikotynowych narosło kilka przekonań, a dane pozwalają je zweryfikować. Pierwsze głosi, że nikotyna jest środkiem poprawiającym funkcje poznawcze, czyli nootropem. Metaanaliza 41 badań z podwójnie ślepą próbą wykazała, że nikotyna nieznacznie poprawia niektóre miary uwagi, pamięci i sprawności ruchowej [47]. Wielkości efektów mieściły się w zakresie od 0,16 do 0,44, czyli były małe [47]. Autorzy uznali je za rzeczywistą poprawę sprawności, a nie za złagodzenie objawów odstawienia, bo badani byli osobami niepalącymi albo palącymi bez dłuższej przerwy w paleniu [47]. Wynik ten dotyczy izolowanego pomiaru sprawności w warunkach laboratoryjnych. Nie znosi on tego, że przewlekła obecność nikotyny odczula receptory i wywołuje ich nadregulację, opisaną jako mechanizm receptorowy zależności [22, 26]. Drobny i krótkotrwały wpływ na sprawność w badaniu nie jest więc równoznaczny z korzyścią zdrowotną.
Drugie przekonanie zakłada, że receptory nikotynowe działają wyłącznie w mózgu. Receptor mięśniowy leży w płytce końcowej mięśnia szkieletowego, receptor α3β4 w zwojach autonomicznych, a receptor α7 na makrofagach i innych komórkach spoza układu nerwowego [24, 25, 30]. Podtypy zawierające podjednostki α9 i α10 opisano w komórkach rzęsatych ucha wewnętrznego [4]. Rozmieszczenie to tłumaczy, dlaczego leki działające na receptory nikotynowe mają skutki wykraczające poza ośrodkowy układ nerwowy, od zwiotczenia mięśni po wpływ na czynność zwojów.
Samych receptorów nikotynowych nie oznacza się w rutynowej diagnostyce, ponieważ są białkami błonowymi komórek, a nie substancją krążącą we krwi. Znaczniki receptora α4β2 i α7 stosowane w pozytonowej tomografii emisyjnej pozostają narzędziami badawczymi [40, 45]. Wyjątkiem, który dotyczy nie samego receptora, lecz odpowiedzi przeciw niemu, jest oznaczanie przeciwciał przeciw receptorowi acetylocholiny w diagnostyce miastenii [8]. Rozpoznanie chorób związanych z receptorami nikotynowymi i dobór leczenia wymagają konsultacji lekarskiej.

