
1. Charakterystyka białka
1.1. Definicja i klasyfikacja
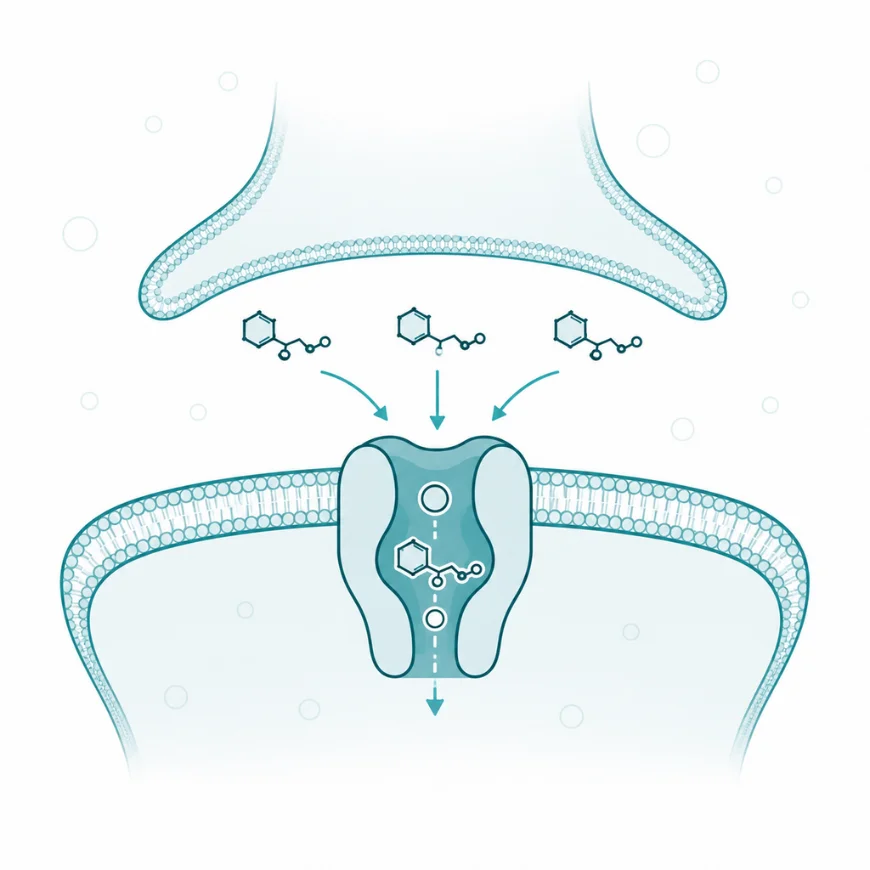
Transporter serotoniny (ang. serotonin transporter, SERT) to białko błonowe przenoszące cząsteczkę serotoniny z przestrzeni zewnątrzkomórkowej do cytoplazmy. Pod względem przynależności jest nośnikiem z rodziny SLC6, zwanej też rodziną symporterów sodowych neuroprzekaźników, a kodujący go gen nosi nazwę SLC6A4 [3]. Do tej samej rodziny należą transportery dopaminy i noradrenaliny oraz nośniki kwasu gamma-aminomasłowego i glicyny, wszystkie zależne od sodu i od chlorku [3]. Rodzinę łączy też sposób działania, ponieważ nośnik nie rozkłada przenoszonej cząsteczki ani jej nie przekształca, tylko przemieszcza ją przez błonę w postaci niezmienionej.
Transporter serotoniny bywa mylony z trzema innymi elementami przekaźnictwa serotoninergicznego. Pierwszym są receptory serotoninowe, które odbierają sygnał i przekładają go na przepływ jonów albo na kaskadę wewnątrzkomórkową [3]. Transporter ten sam sygnał kończy, usuwając przekaźnik z otoczenia receptora. Drugim pojęciem jest pęcherzykowy transporter monoamin, który przenosi serotoninę z cytoplazmy do wnętrza pęcherzyka wydzielniczego, a napędza go gradient protonowy zamiast sodowego. Trzecim jest monoaminooksydaza, czyli enzym rozkładający serotoninę wewnątrz komórki. Transporter dostarcza jej substrat, lecz sam żadnej reakcji nie katalizuje, dlatego zahamowanie wychwytu i zahamowanie rozkładu dają odmienne następstwa.
Zakres pojęcia obejmuje jedno białko kodowane przez jeden gen. Receptory serotoninowe tworzą rodzinę o wielu typach i podtypach, natomiast transporter serotoniny występuje w jednej postaci białkowej. Różnice między osobami dotyczą liczby jego cząsteczek w błonie i wariantów sekwencji, nie zaś odrębnych podtypów [3, 26]. To samo białko pracuje w mózgu, w płytce krwi i w nabłonku jelita, choć w każdym z tych miejsc obsługuje inną pulę przekaźnika [27, 28].
Osobne hasło uzasadnia pozycja tego białka w farmakologii. Transporter serotoniny jest bezpośrednim punktem uchwytu leków hamujących wychwyt zwrotny, leków trójpierścieniowych, kokainy oraz pochodnych amfetaminy [9, 12]. Jego struktura posłużyła ponadto do zaprojektowania nowych klas ligandów [1].
1.2. Budowa SERT
Transporter serotoniny jest białkiem o dwunastu helisach przechodzących przez błonę, a zwój łańcucha odpowiada budowie znanej z bakteryjnego nośnika LeuT [1, 4]. Helisy pierwsza i szósta są przerwane w połowie grubości błony. Odsłonięte w miejscu przerwania grupy szkieletu peptydowego tworzą centralne miejsce wiązania, oznaczane jako miejsce S1. Leży ono między helisami pierwszą, trzecią, szóstą, ósmą i dziesiątą, a wiąże zarówno serotoninę, jak i leki hamujące wychwyt [1]. Oba końce łańcucha leżą w cytoplazmie i przyłączają białka regulujące pracę nośnika [3].
Trzy cechy budowy przekładają się wprost na sposób działania białka. Pierwszą są miejsca wiązania jonów: dwa dla sodu i jedno dla chlorku, położone obok miejsca centralnego. Za sprzęgnięcie chlorku z przenoszeniem przekaźnika odpowiada pojedyncza reszta asparaginy w pierwszej helisie przezbłonowej, a jej podmiana znosi zależność transportu od tego jonu [5]. Drugą cechą jest miejsce allosteryczne S2, leżące w przedsionku zewnątrzkomórkowym, którego zajęcie utrudnia cząsteczce związanej w miejscu centralnym odłączenie się od białka [1]. Trzecią jest otoczenie lipidowe, ponieważ skład błony i szlak izoprenylacji zmieniają wydajność wychwytu niezależnie od samego cholesterolu [10].
Z takiej budowy wynika praktyczna konsekwencja. Leki i przekaźnik zajmują to samo miejsce centralne, więc ich działanie wzajemnie się wyklucza, a różnice powinowactwa między lekami biorą się z dopasowania do tej jednej kieszeni i z otaczających ją jonów [1, 6].
1.3. Rys historyczny
Transporter serotoniny przez dekady opisywano pośrednio, na podstawie pomiarów wychwytu i wiązania znakowanych ligandów, gdyż obrazu samej cząsteczki nie było. Od 2005 roku wiedzę o mechanizmie przenoszenia wyprowadzano ze struktury bakteryjnego homologu z tej samej rodziny, a położenie miejsca wiązania leków w białku ludzkim pozostawało przedmiotem modelowania [3]. Spór dotyczył tego, czy leki blokują miejsce wiązania przekaźnika, czy przyłączają się do przedsionka i działają allosterycznie.
Rozstrzygnięcie przyniosła krystalografia. W 2016 roku Coleman, Green i Gouaux rozwiązali strukturę ludzkiego transportera serotoniny w rozdzielczości 3,15 Å, związanego z (S)-citalopramem i z paroksetyną [1]. Oba leki wchodziły do miejsca centralnego i zatrzymywały białko w postaci otwartej na zewnątrz. Obok znaleziono także miejsce allosteryczne, którego zajęcie spowalnia odłączanie liganda [1]. Trzy lata później ten sam zespół uzyskał obrazy kompleksów z ibogainą metodą mikroskopii krioelektronowej i uchwycił trzy kolejne stany cyklu: otwarty na zewnątrz, zamknięty obustronnie i otwarty do wnętrza komórki [2]. Dzięki temu wiadomo, które fragmenty białka poruszają się przy otwieraniu każdej z bramek.
1.4. Ekspresja i regulacja transportera serotoniny
Liczba cząsteczek transportera serotoniny w błonie zależy od tego, jak intensywnie przepisywany jest gen SLC6A4. W rejonie promotorowym tego genu leży polimorfizm insercyjno-delecyjny, oznaczany jako 5-HTTLPR, występujący w wariancie krótkim i długim. Wariant krótki obniża wydajność transkrypcji, a w limfoblastach osób z tym allelem stwierdzono niższą ekspresję białka i wolniejszy wychwyt serotoniny [21]. Późniejsze prace rozdzieliły allel długi na dwie postaci, różniące się pojedynczym nukleotydem [26]. Jedna z nich pracuje z wydajnością zbliżoną do allelu krótkiego, przez co podział dwualleliczny przestał wystarczać.
Na ekspresję wpływają także mechanizmy niezależne od sekwencji promotora. Metylacja DNA w obrębie genu oraz warianty w regionach nieulegających translacji zmieniają składanie transkryptu i przyłączanie czynników transkrypcyjnych [26]. W badaniu osób uzależnionych od alkoholu allele o wyższej funkcji występowały częściej w grupie kontrolnej [26]. Regulacja transkrypcyjna wyznacza zakres, w jakim porusza się układ, natomiast o liczbie białek pracujących w danej chwili decydują mechanizmy potranslacyjne.
2. Działanie molekularne
2.1. Substrat i mechanizm transportu
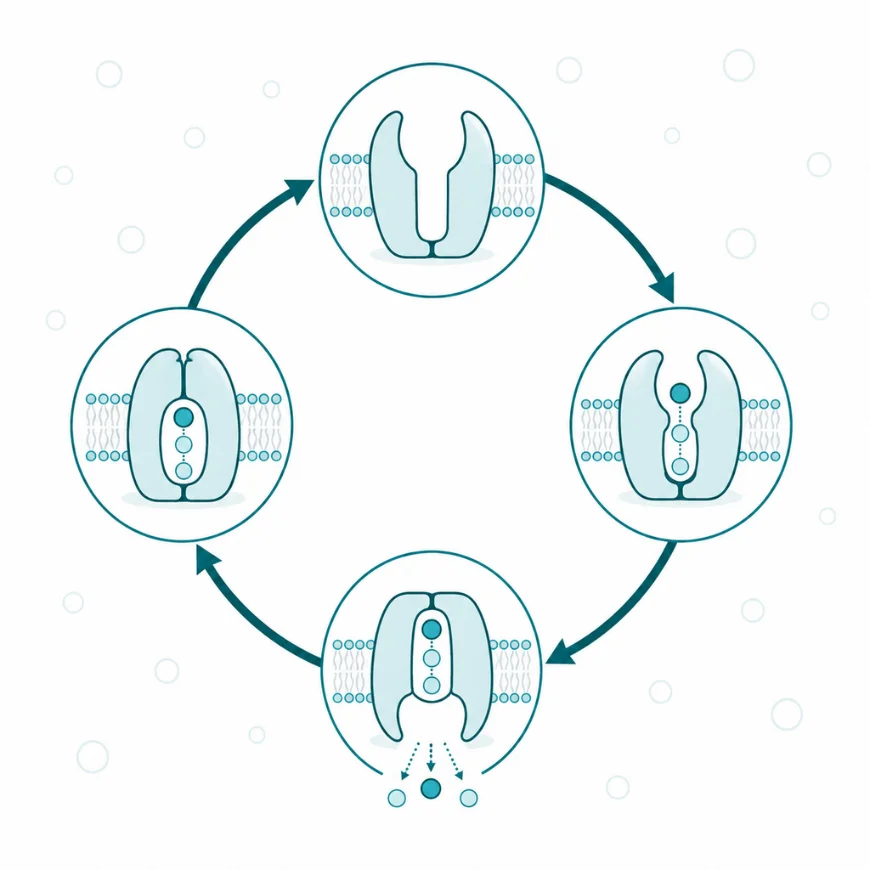
Transporter serotoniny pracuje w rytmie zmiennego dostępu, co oznacza, że jego miejsce wiązania jest w danej chwili dostępne tylko z jednej strony błony. Stanem wyjściowym jest postać otwarta na zewnątrz, z przyłączonymi jonami sodu, w której miejsce centralne pozostaje dostępne dla przekaźnika [1, 4]. Bodźcem uruchamiającym cykl jest związanie serotoniny w tym miejscu [1].
Dalsze kroki są przebudową samego białka. Najpierw zamyka się bramka zewnętrzna, a odpowiadają za to ruchy odcinków helis pierwszej i szóstej, które nasuwają się na związaną cząsteczkę [2]. Powstaje stan zamknięty obustronnie, w którym przekaźnik i jony tkwią wewnątrz białka. Potem otwiera się bramka wewnętrzna: dolny odcinek helisy pierwszej odchyla się na zasadzie zawiasu, a helisa piąta częściowo się rozwija [2]. Między nimi powstaje droga do cytoplazmy, którą serotonina i jony opuszczają białko. Nośnik wraca następnie do postaci wyjściowej przez stan wiążący jon potasu, którego istnienie potwierdzono badaniem inhibitora wiążącego się wybiórczo do postaci skierowanej do wnętrza [8].
Ruch obu bramek ma następstwo, którego nie widać w samym opisie kroków. Miejsce wiązania nigdy nie jest otwarte na obie strony błony jednocześnie, dlatego przez transporter nie przecieka ani sód, ani przekaźnik, a komórka gromadzi serotoninę wbrew jej gradientowi stężeń [3, 4]. Ceną tej szczelności jest tempo. Jeden cykl przenosi jedną cząsteczkę i wymaga pełnej przebudowy białka, więc o szybkości usuwania przekaźnika ze szczeliny decyduje liczba nośników w błonie.
Działanie transportera serotoniny opiera się na cyklu czterech stanów, podczas których neuroprzekaźnik jest przenoszony razem z jonami sodu i chlorku. Sam transporter nie nadaje kierunku – jest on całkowicie wyznaczany przez istniejący gradient stężeń.
2.2. Siła napędowa i stechiometria
Transporter serotoniny nie rozkłada ATP i nie ma miejsca wiążącego nukleotyd, ponieważ energię do przenoszenia przekaźnika czerpie z gradientu sodu [3]. Różnicę stężeń tego jonu po obu stronach błony utrzymuje pompa sodowo-potasowa. W pojedynczym cyklu do wnętrza komórki wędruje cząsteczka serotoniny wraz z jonem sodu i jonem chlorkowym [3]. Powrót białka do postaci wyjściowej wiąże się natomiast z przeniesieniem jonu potasu w kierunku przeciwnym [3, 8]. Sprzęgnięcie z chlorkiem nie jest dodatkiem do transportu sodowego, lecz jego warunkiem, gdyż podmiana reszty asparaginy wiążącej ten jon znosi zdolność białka do zagęszczania przekaźnika w komórce [5].
Z takiego bilansu wynikają dwa następstwa. Pierwsze dotyczy procesów elektrochemicznych: przenoszenie ładunku dodatniego czyni transport procesem elektrogennym, a towarzyszący mu prąd błonowy służy w badaniach do śledzenia kolejnych kroków cyklu [8, 11]. Drugie dotyczy kierunku pracy. Gdy gradient sodu maleje, ubywa siły napędowej i białko zaczyna przenosić serotoninę na zewnątrz komórki [11]. Taki spadek wywołują między innymi substraty transportera, które same wprowadzają sód do wnętrza.
2.3. Rozmieszczenie i role tkankowe
Transporter serotoniny pracuje w kilku tkankach, a w każdej z nich obsługuje inną pulę przekaźnika. W ośrodkowym układzie nerwowym białko leży w błonie neuronów serotoninergicznych, których ciała skupiają się w jądrach szwu pnia mózgu, a zakończenia sięgają kory, prążkowia, wzgórza i ciała migdałowatego. Badania obrazowe pokazują najwyższą gęstość wiązania znacznika w śródmózgowiu i prążkowiu, a najniższą w korze czołowej [19, 20]. Zablokowanie nośnika zmienia zatem przekaźnictwo w całym układzie serotoninergicznym, a nie w pojedynczej okolicy.
Poza mózgiem to samo białko pełni funkcje niezwiązane z przekaźnictwem synaptycznym. Płytka krwi nie wytwarza serotoniny i pobiera ją z osocza właśnie przez transporter, po czym magazynuje w ziarnistościach gęstych. Liczba nośników wystawionych na powierzchnię płytki zależy od integryny beta-3, a wariant promotora genu ITGB3 zwiększający tę ekspozycję wiąże się z wyższym stężeniem serotoniny we krwi [27]. W nabłonku jelita transporter usuwa serotoninę wydzielaną przez komórki enterochromafinowe, a jego ilość spada w czynnym zapaleniu jelit [28]. W łożysku białko przenosi serotoninę matczyną w stronę krążenia płodu, przy czym ekspozycja na opioidy w ciąży zmienia jego postać i ilość [29].
| Umiejscowienie | Skąd pobiera serotoninę | Następstwo spadku aktywności |
| Neurony serotoninergiczne | szczelina synaptyczna po wydzieleniu przekaźnika | dłuższe działanie serotoniny na receptory [1] |
| Płytki krwi | osocze, serotonina pochodzenia jelitowego | mniejsza zawartość przekaźnika w ziarnistościach [27] |
| Nabłonek jelita | wydzielina komórek enterochromafinowych | wyższe stężenie serotoniny w przestrzeni międzykomórkowej [28] |
| Łożysko | krążenie matczyne | zmieniona podaż przekaźnika dla rozwijającego się mózgu [29] |
Zestawienie pokazuje, że o skutkach zmiany aktywności decyduje tkanka, w której zmiana zachodzi. To samo zahamowanie wychwytu wydłuża sygnał w synapsie, a jednocześnie opróżnia płytkę z zapasu przekaźnika, więc następstwa ośrodkowe i obwodowe nie muszą iść w tę samą stronę.
2.4. Regulacja aktywności SERT
Liczba czynnych cząsteczek transportera w błonie zmienia się w ciągu minut i godzin, niezależnie od tempa przepisywania genu. Pobudzenie kinazy białkowej C prowadzi do fosforylacji nośnika i do jego wycofania z błony do przedziału wewnątrzkomórkowego, przez co wychwyt maleje bez zmiany całkowitej ilości białka [3]. Obecność substratu na zewnątrz komórki działa odwrotnie i chroni transporter przed takim wycofaniem [3]. Dzięki temu tempo usuwania przekaźnika pozostaje powiązane z natężeniem jego wydzielania. O tym, jaka część puli wewnątrzkomórkowej wraca na powierzchnię, decydują białka wiążące cytoplazmatyczne końce łańcucha [3].
Drugim poziomem regulacji jest otoczenie lipidowe błony. W hodowanych neuronach serotoninergicznych zahamowanie syntezy lipidów statynami zwiększało wychwyt serotoniny [10]. Efekt ten nie ustępował po uzupełnieniu cholesterolu, a znikał po dodaniu pośredników izoprenylacji [10]. Nośnik reaguje zatem nie na sam cholesterol, lecz na produkty pośrednie szlaku jego syntezy, choć dane te pochodzą z hodowli komórkowych i nie mają odpowiednika u ludzi.
Regulacja potranslacyjna tłumaczy obserwację trudną do pogodzenia z prostym modelem genetycznym. Osoby o tym samym genotypie promotora mogą różnić się wychwytem serotoniny, ponieważ o pracy układu decyduje nie liczba wytworzonych cząsteczek, lecz to, ile z nich stoi w danej chwili w błonie.
2.5. Farmakologia
Transporter serotoniny jest jednym z najlepiej zbadanych farmakologicznie białek błonowych, a substancje działające na niego dzielą się według tego, który stan cyklu wiążą. Leki hamujące wychwyt zwrotny serotoniny wchodzą do miejsca centralnego i zatrzymują białko w postaci otwartej na zewnątrz, przez co przekaźnik traci dostęp do własnego miejsca wiązania [1]. Wybiórczość tych leków wobec nośników dopaminy i noradrenaliny wynika z dopasowania do tej samej kieszeni. W obrębie klasy różni się ona nawet o kilka rzędów wielkości, co zmierzono dla trzydziestu siedmiu leków przeciwdepresyjnych i wszystkich trzech transporterów monoaminowych [12]. Na powinowactwo wpływa ponadto otoczenie jonowe, ponieważ obecność chlorku zwiększa wiązanie imipraminy, citalopramu, sertraliny i fluoksetyny, ale nie kokainy i nie paroksetyny [6].
Substancje wiążące inne stany cyklu mają odmienny profil działania. Ibogaina hamuje transport niekompetycyjnie i wiąże się do postaci otwartej do wnętrza komórki, więc nie konkuruje z przekaźnikiem o dostęp od strony zewnętrznej [2]. Opisano także inhibitor wiążący się wybiórczo do postaci związanej z potasem, którego siła działania rośnie wraz ze stężeniem substratu [8]. Ten sam związek ułatwia przy tym zwinięcie białka z mutacją utrudniającą dojrzewanie [8]. Przeszukanie ponad dwustu milionów związków pod kątem dopasowania do postaci skierowanej do wnętrza dało cząsteczki stabilizujące stan zamknięty od zewnątrz [7]. W testach behawioralnych u myszy działały one przeciwlękowo, natomiast danych u ludzi dla tej grupy brakuje.
Osobną grupę stanowią substraty transportera. Pochodne amfetaminy, w tym metylenodioksymetamfetamina, są przez nośnik przenoszone tak jak serotonina, wywołują jednak napływ sodu i odwracają kierunek transportu [11]. Białko zaczyna wtedy wyrzucać przekaźnik z komórki, a zdolność tych związków do wywoływania wyrzutu jest wyraźnie większa niż pozostałych substratów [11].
| Grupa substancji | Sposób działania na transporter | Wiązany stan białka | Skutek dla serotoniny zewnątrzkomórkowej |
| Leki hamujące wychwyt zwrotny | wiązanie kompetycyjne w miejscu centralnym | otwarty na zewnątrz | wzrost [1, 13] |
| Kokaina | wiązanie kompetycyjne, powinowactwo do trzech nośników monoamin | otwarty na zewnątrz | wzrost [12] |
| Ibogaina | hamowanie niekompetycyjne | otwarty do wnętrza | wzrost [2] |
| Pochodne amfetaminy | transport jako substrat i odwrócenie kierunku pracy | cykl przestawiony na wyrzut | silny wzrost [11] |
Zestawienie tłumaczy, dlaczego samo określenie „substancja zwiększająca stężenie serotoniny” nie wystarcza do przewidzenia skutków. Blokada wychwytu podnosi stężenie przekaźnika tylko tam, gdzie jest on wydzielany, podczas gdy odwrócenie kierunku pracy nośnika opróżnia zapasy komórkowe niezależnie od aktywności neuronu [11].
Najczęstsze pytanie o tę klasę leków dotyczy rozbieżności czasowej. Zablokowanie transportera jest natychmiastowe, a w badaniu z użyciem pozytonowej tomografii emisyjnej u chorych na depresję zajęte było około 80% miejsc wiązania w prążkowiu [13]. Zajęcie nośnika nie rozkłada się przy tym równomiernie: w jądrze szwu grzbietowym było wyższe niż w skorupie, a zależność od stężenia leku w osoczu miała w obu okolicach inny przebieg [14]. Wzrost stężenia serotoniny pobudza autoreceptory 5-HT1A na ciałach komórkowych i 5-HT1B na zakończeniach, przez co maleje częstość wyładowań neuronów szwu i ilość przekaźnika uwalnianego przy każdym impulsie [15]. Dopiero wielotygodniowe leczenie odczula te autoreceptory i przekaźnictwo rośnie [15]. Metaanaliza dwudziestu ośmiu badań z randomizacją pokazała jednak, że poprawa objawowa zaczyna się już pod koniec pierwszego tygodnia [16]. Sprzężenie autoreceptorowe tłumaczy zatem stopniowy charakter poprawy, a nie kilkunastodniowy brak działania.
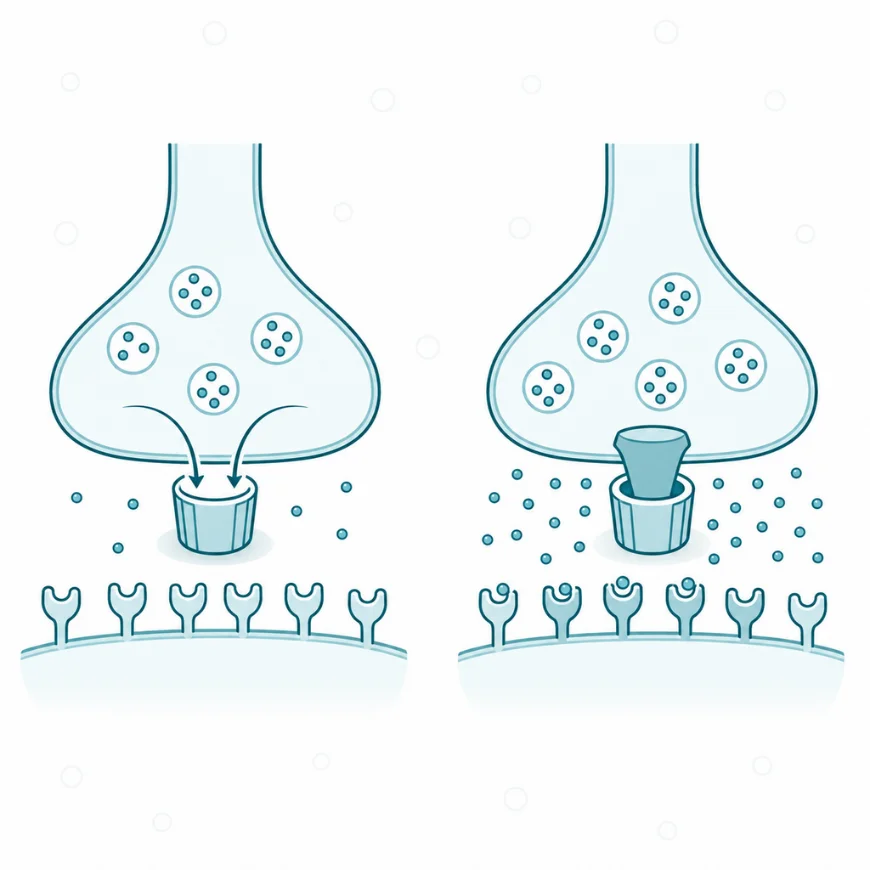
Zablokowanie transportera podnosi stężenie serotoniny w szczelinie w ciągu godzin. Poprawa nastroju pojawia się jednak zwykle po kilku tygodniach.
3. Znaczenie kliniczne
3.1. Skutki obniżonej aktywności
Obniżenie aktywności transportera serotoniny podnosi stężenie przekaźnika w przestrzeni zewnątrzkomórkowej, a skutki tego wzrostu zależą od jego skali. Przy zahamowaniu farmakologicznym mieszczą się w zakresie działania leczniczego, natomiast przy jednoczesnym zablokowaniu wychwytu i rozkładu mogą przybrać postać zespołu serotoninowego. Zespół ten jest stanem nadmiernego pobudzenia receptorów serotoninowych i przebiega z pobudzeniem nerwowo-mięśniowym, zaburzeniami czynności układu autonomicznego i zmianą stanu świadomości [17, 18]. Najcięższe postaci opisano po połączeniu leku hamującego wychwyt z inhibitorem monoaminooksydazy, gdyż przekaźnik nie jest wtedy ani usuwany ze szczeliny, ani rozkładany wewnątrz komórki [17].
Całkowity brak białka poznano dzięki modelom zwierzęcym. Myszy pozbawione genu transportera mają obniżoną aktywność ruchową i nasilone zachowania lękowe, a występują u nich także drżenie i tiki odpowiadające zespołowi serotoninowemu [30]. Odpowiednika całkowitego niedoboru u człowieka nie opisano, więc dane te wyznaczają kierunek zależności, a nie jednostkę kliniczną.
Obniżenie aktywności nośnika ma też następstwa poza układem nerwowym. W czynnej chorobie Leśniowskiego-Crohna i we wrzodziejącym zapaleniu jelita grubego ilość transportera w nabłonku spada, a w hodowlach nabłonka jelitowego sam czynnik martwicy nowotworów alfa wystarcza, żeby wywołać podobny spadek [28]. Wytwarzanie serotoniny przez hydroksylazę tryptofanu pozostaje w tych warunkach niezmienione, dlatego przekaźnik gromadzi się w przestrzeni międzykomórkowej i podtrzymuje odczyn zapalny [28].
3.2. Skutki podwyższonej aktywności
Podwyższona aktywność transportera serotoniny skraca czas działania przekaźnika na receptory, ponieważ każda cząsteczka zostaje szybciej wciągnięta do wnętrza komórki. Najlepiej udokumentowanym przykładem takiej zmiany jest pula płytkowa. U jednej piątej do jednej trzeciej osób ze spektrum autyzmu stwierdza się podwyższone stężenie serotoniny we krwi, a mechanizmem jest nasilony wychwyt płytkowy [27]. Wariant promotora genu ITGB3 zwiększa wystawianie nośnika na powierzchnię płytki i wiąże się zarówno z wyższym stężeniem serotoniny we krwi, jak i z większą ilością integryny beta-3 w błonie [27].
Po stronie ośrodkowej dane są słabsze i pochodzą z badań nad wariantami sekwencji. W grupie osób uzależnionych od alkoholu allele o wyższej funkcji transportera występowały rzadziej niż w grupie kontrolnej, co autorzy wiążą z niższą dostępnością przekaźnika w układzie nagrody [26]. Porównanie częstości genotypów wskazuje jednak na powiązanie, a nie na mechanizm przyczynowy. Wzrost liczby nośników nie zwiększa przy tym ilości serotoniny w tkance, lecz przesuwa ją z przestrzeni zewnątrzkomórkowej do wnętrza komórek magazynujących [27].
3.3. Udział transportera serotoniny w chorobach
Transporter serotoniny bywa opisywany jako ogniwo mechanizmu depresji, a podstawą tego poglądu jest skuteczność leków hamujących wychwyt oraz pomiary dostępności białka w mózgu. Metaanaliza osiemnastu badań obrazowych objęła 364 chorych i 372 osoby zdrowe [20]. Dostępność nośnika była w niej obniżona o około dziesięć procent w śródmózgowiu i ciele migdałowatym, przy niewielkich różnicach w pozostałych okolicach [20]. Szersza metaanaliza pięćdziesięciu badań obrazowych i pośmiertnych potwierdziła obniżenie w prążkowiu, ciele migdałowatym i pniu mózgu, natomiast materiał pośmiertny takiej różnicy nie wykazał [19]. Rozbieżność ta jest istotna, ponieważ znacznik używany w badaniach obrazowych konkuruje z endogenną serotoniną o to samo miejsce wiązania [19].
Odrębnym wątkiem jest udział wariantów genu w podatności na zaburzenia nastroju. W badaniu kohortowym z 2003 roku osoby z jednym lub dwoma krótkimi allelami promotora reagowały na stresujące wydarzenia życiowe silniejszymi objawami depresyjnymi [22]. Wynik ten uruchomił kilkaset prac, lecz kolejne opracowania zbiorcze go nie potwierdziły. Przegląd systematyczny z metaanalizą ocenił efekt główny genotypu i efekt jego współdziałania ze stresem jako znikomy, a większość replikacji nie odtwarzała pierwotnego wyniku [23]. Analiza 31 zbiorów danych obejmująca 38 802 osoby nie znalazła podgrupy ani definicji stresora, dla której współdziałanie byłoby istotne [24]. Efekt samego stresu pozostawał w niej silny i spójny między zbiorami. Badanie osiemnastu najczęściej badanych genów kandydujących objęło próby od 62 138 do 443 264 osób i nie wykazało ich silniejszego związku z depresją niż genów spoza listy kandydatów [25].
Poza psychiatrią transporter jest ogniwem mechanizmów zapalnych i rozwojowych. W chorobach zapalnych jelit spadek jego ilości w nabłonku podtrzymuje wysokie stężenie serotoniny w tkance [28]. Podobnie w łożysku ekspozycja na opioidy w ciąży zmienia postać i ilość białka, a przez to podaż przekaźnika dla rozwijającego się mózgu [29].
3.4. Czynniki wpływające na aktywność SERT
Aktywność transportera serotoniny zmienia się pod wpływem czynników stałych i modyfikowalnych. Czynnikiem stałym jest sekwencja genu, ponieważ warianty promotora i regionów nieulegających translacji wyznaczają zakres, w jakim waha się liczba cząsteczek nośnika w błonie [21, 26]. Warstwą pośrednią jest metylacja DNA w obrębie genu, która przesuwa ekspresję bez zmiany sekwencji [26].
Stan zapalny obniża ilość transportera w tkankach obwodowych. W nabłonku jelitowym czynnik martwicy nowotworów alfa wystarcza do zmniejszenia jego ekspresji, a ten sam spadek występuje w czynnym zapaleniu jelit [28]. Aktywność białka zależy więc od stanu błony śluzowej, a nie wyłącznie od przekaźnictwa nerwowego.
Substancje wpływające na wychwyt dzielą się na dwie grupy. Pierwszą tworzą związki o rozpoznanym punkcie uchwytu na samym białku: leki hamujące wychwyt zwrotny, leki trójpierścieniowe, kokaina i pochodne amfetaminy. Drugą tworzy hyperforyna, główny składnik wyciągów z dziurawca zwyczajnego. Hyperforyna hamuje synaptosomalny wychwyt serotoniny, dopaminy i noradrenaliny z porównywalną siłą, robi to jednak niekompetycyjnie i nie wypiera znakowanej paroksetyny z miejsca wiązania na transporterze [31]. Jej działanie wiąże się ze zwiększeniem przewodnictwa dla sodu i ze zmianą magazynowania monoamin w pęcherzykach [31, 32]. Siła działania preparatów z dziurawca zależy przy tym od zawartości hyperforyny, a sam składnik indukuje enzymy cytochromu P450 i glikoproteinę P [32].
Trzecim czynnikiem są lipidy błonowe. Zahamowanie szlaku izoprenylacji zwiększa wychwyt serotoniny w hodowanych neuronach niezależnie od zawartości cholesterolu, co wskazuje na powiązanie aktywności nośnika z gospodarką lipidową komórki [10]. Danych z badań u ludzi dotyczących tej zależności brakuje.
4. Na co warto zwrócić uwagę
Transporter serotoniny obrósł uproszczeniami, a najbardziej rozpowszechnione dotyczy genotypu promotora. Krótki wariant 5-HTTLPR bywa przedstawiany jako marker podatności na depresję albo jako wskaźnik przewidujący odpowiedź na leczenie, a podstawą tego przekonania jest pojedyncze badanie kohortowe z 2003 roku [22]. Kolejne dwie dekady hipotezy nie potwierdziły. Metaanaliza z 2009 roku oceniła efekt jako znikomy i zgodny z przypadkową zmiennością [23], a analiza konsorcjum na 38 802 osobach nie znalazła istotnego współdziałania genotypu ze stresem w żadnej podgrupie [24]. Badanie osiemnastu genów kandydujących na próbach sięgających kilkuset tysięcy osób nie odróżniło ich od genów spoza listy kandydatów [25]. Wynik oznaczenia 5-HTTLPR u pojedynczej osoby nie niesie zatem informacji o jej ryzyku ani o spodziewanej skuteczności leczenia, choć sam polimorfizm realnie zmienia wydajność transkrypcji genu [21, 26]. Efekt molekularny istnieje, lecz jest zbyt mały i zbyt zależny od pozostałych czynników, żeby rozstrzygać cokolwiek u konkretnego człowieka.
Drugie nieporozumienie dotyczy związku między zablokowaniem nośnika a czasem poprawy. Popularne wyjaśnienie mówi, że serotonina musi się przez kilka tygodni odbudować, zanim lek zadziała. Pomiary obrazowe tego nie potwierdzają, ponieważ zajęcie transportera sięga około 80% i utrzymuje się od początku leczenia [13]. Opóźnienie dotyczy nie stężenia przekaźnika, lecz odpowiedzi układu, w której pobudzone autoreceptory wyhamowują neurony szwu, a ich odczulanie trwa tygodnie [15]. Obraz opóźnienia bywa przy tym przesadzony, bo przewaga leczenia nad placebo jest widoczna już pod koniec pierwszego tygodnia [16]. Regionalne różnice zajęcia nośnika, wyższego w jądrze szwu grzbietowym niż w prążkowiu, wskazują na odmienne umiejscowienie obu zjawisk [14].
Trzecie uproszczenie polega na przenoszeniu wyników obwodowych na mózg. Transporter w płytce krwi jest tym samym białkiem co neuronalny, obsługuje jednak pulę serotoniny pochodzącą z jelita i podlega własnej regulacji, czego dowodzi wpływ wariantów genu integryny beta-3 na stężenie serotoniny we krwi [27]. Podobnie ilość nośnika w nabłonku jelita zmienia się wraz ze stanem zapalnym błony śluzowej [28]. Wynik oznaczenia obwodowego opisuje więc pulę obwodową, a wnioskowanie z niego o przekaźnictwie ośrodkowym wymagałoby danych wiążących oba przedziały u tej samej osoby.
Ograniczenia dowodowe wymagają zaznaczenia w trzech miejscach. Obniżenie dostępności transportera w depresji jest realne, ale niewielkie i opisane jako różnica rzędu dziesięciu procent w wybranych okolicach [19, 20]. Pochodzi ono przy tym z badań przekrojowych, które nie rozstrzygają o kierunku zależności. Znaczna część wiedzy o regulacji białka pochodzi z hodowli komórkowych [10], nowe klasy ligandów przebadano dotąd wyłącznie w modelach zwierzęcych [7], a całkowity brak transportera opisano tylko u myszy [30].
Osobnej uwagi wymaga jedna interakcja o realnym znaczeniu. Jednoczesne działanie kilku substancji podnoszących stężenie serotoniny może wywołać zespół serotoninowy, w szczególności przy połączeniu blokady wychwytu z zahamowaniem monoaminooksydazy [17, 18]. Rozpoznanie opiera się na obrazie klinicznym, nie na badaniu laboratoryjnym [18]. Wyciągi z dziurawca zawierające hyperforynę hamują wychwyt monoamin i jednocześnie indukują enzymy metabolizujące leki, wchodzą zatem w zależności z innymi substancjami na dwóch drogach naraz [31, 32]. Treść hasła ma charakter edukacyjny i nie zastępuje porady medycznej.
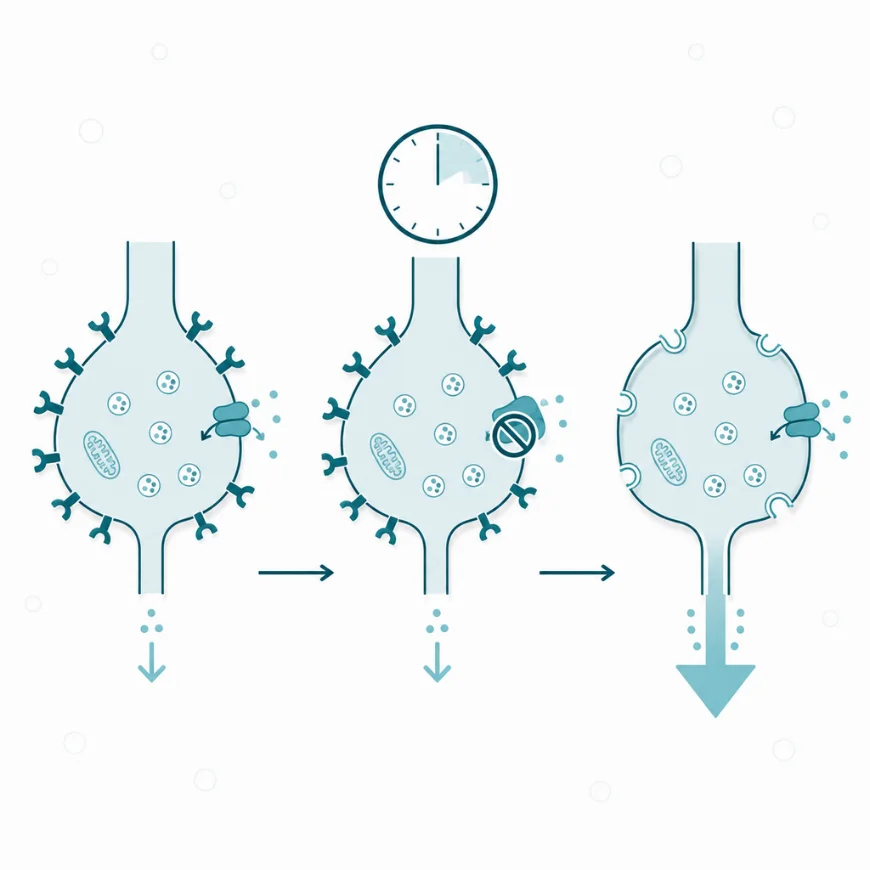
Rozbieżność czasową między zablokowaniem SERT a pojawieniem się efektów stosowania SSRI wyjaśnia proces wycofania z błony (internalizacji) hamujących autoreceptorów. Dopiero po ich zniknięciu dochodzi do realnego, silnego wyrzutu serotoniny w strukturach docelowych mózgu.