
1. Charakterystyka białka
1.1. Definicja i klasyfikacja
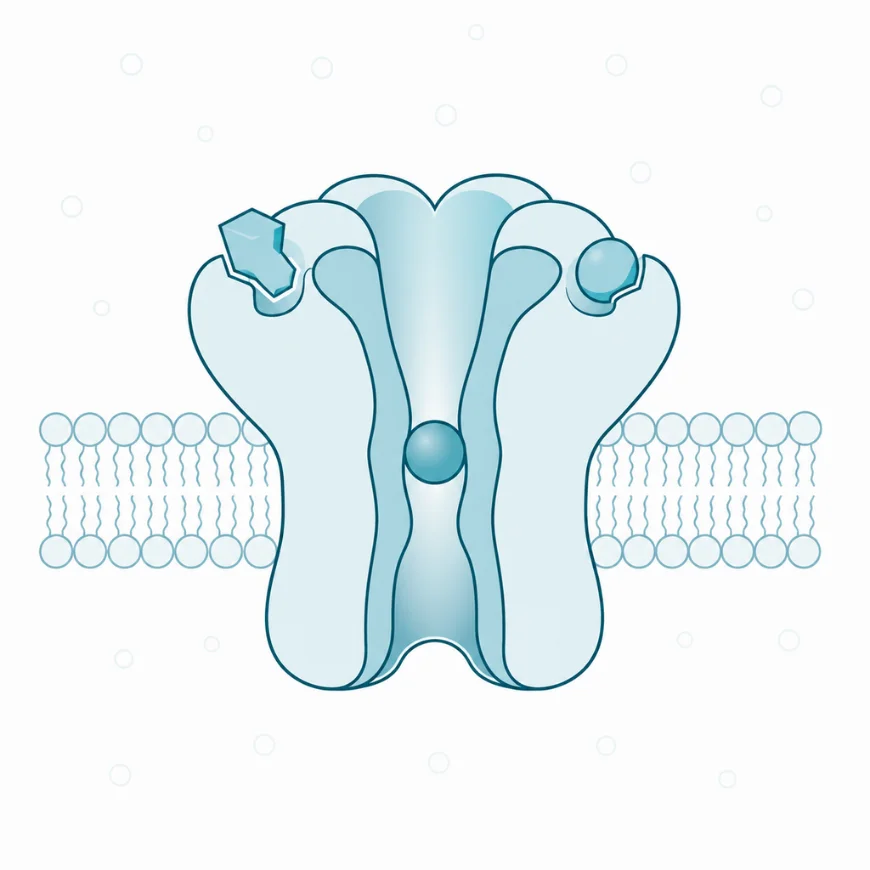
Receptor NMDA (ang. N-methyl-D-aspartate receptor, NMDAR) to receptor jonotropowy, czyli białko błonowe łączące miejsce wiązania przekaźnika z kanałem jonowym. Otwiera go glutaminian, główny przekaźnik pobudzający ośrodkowego układu nerwowego. Nazwa pochodzi od kwasu N-metylo-D-asparaginowego, syntetycznego związku pobudzającego wybiórczo ten receptor [1]. Sam NMDA w organizmie nie występuje, więc nazwa opisuje narzędzie farmakologiczne użyte do wyodrębnienia klasy, a nie ligand fizjologiczny.
Wśród receptorów jonotropowych glutaminianu wyodrębnia się trzy klasy: receptory AMPA, receptory kainianowe i receptory NMDA. Receptor NMDA różni się od dwóch pozostałych czterema cechami naraz [1, 8]. Przepuszcza jony wapnia, a nie tylko sód. W spoczynku ma kanał zatkany jonem magnezu. Otwiera się i zamyka wolniej niż receptor AMPA, a ponadto wymaga przyłączenia drugiej cząsteczki pobudzającej obok glutaminianu. Pierwsza z tych cech sprawia, że pobudzenie zmienia nie tylko potencjał błony, lecz także stężenie przekaźnika wewnątrzkomórkowego.
Receptor NMDA bywa mylony z trzema innymi pojęciami. Nie jest receptorem metabotropowym glutaminianu, ponieważ sam przewodzi jony, podczas gdy receptor metabotropowy działa przez białko G i przez przekaźniki wtórne wytwarzane przez enzym błonowy. Nie jest też odpowiednikiem receptora AMPA, który w tej samej synapsie przewodzi prąd natychmiast po przyłączeniu glutaminianu. Receptor AMPA odpowiada za szybkie przekaźnictwo pobudzające, receptor NMDA za wykrycie zbieżności sygnałów. Nie jest wreszcie pojedynczym białkiem: nazwa obejmuje rodzinę czterocząsteczkowych zespołów o różnym składzie podjednostkowym [2].
Zakres pojęcia obejmuje wszystkie kompleksy zbudowane z dwóch podjednostek GluN1 oraz dwóch podjednostek GluN2 albo GluN3, niezależnie od tkanki i od wieku. Osobne hasło uzasadnia rola tego receptora jako czujnika zbieżności, czyli białka, które przepuszcza prąd tylko wtedy, gdy pobudzenie chemiczne i elektryczne spotykają się w czasie. Na tej właściwości opiera się indukcja trwałych zmian siły synapsy. Jej zaburzenia leżą u podstaw uszkodzenia niedokrwiennego, zapalenia mózgu z autoprzeciwciałami i szybkiego działania przeciwdepresyjnego ketaminy [1, 29].
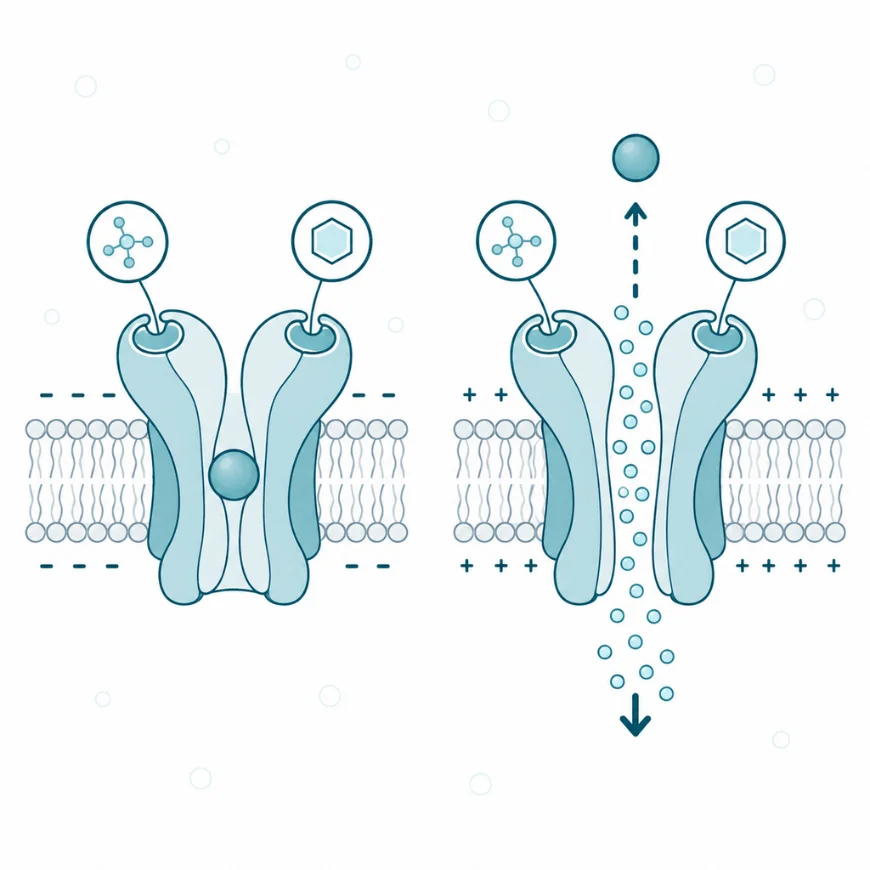
Receptor otwiera się dopiero przy spełnieniu dwóch warunków naraz: związaniu ligandów i depolaryzacji, która usuwa z poru jon magnezu. Stąd jego rola detektora zbieżności.
1.2. Budowa, izoformy i podtypy
Receptor NMDA jest zespołem czterech podjednostek osadzonych w błonie postsynaptycznej, a tworzą go zwykle dwie podjednostki GluN1 i dwie GluN2. Podjednostka GluN1 jest obowiązkowa i powstaje z jednego genu, a podjednostki GluN2A, GluN2B, GluN2C i GluN2D pochodzą z czterech osobnych genów [1]. Podjednostki GluN3A i GluN3B wchodzą w miejsce GluN2 rzadziej i obniżają przewodność wapniową kompleksu [1, 15].
Każda podjednostka ma tę samą budowę czterowarstwową, przy czym warstwy różnią się zadaniem, nie kształtem. Domena aminokońcowa wystaje poza błonę i wiąże modulatory allosteryczne, czyli cząsteczki zmieniające prawdopodobieństwo otwarcia kanału bez zajmowania miejsca przekaźnika [13]. Domena wiążąca ligand chwyta agonistę, a glutaminian łączy się wyłącznie z podjednostką GluN2, natomiast glicyna i D-seryna wyłącznie z GluN1 [8]. Domena przezbłonowa tworzy kanał i wnosi do niego pętlę zawracającą z asparaginą, która decyduje zarazem o przepuszczalności wapniowej i o wiązaniu magnezu [1]. Odcinek wewnątrzkomórkowy jest najdłuższy i wiąże białka rusztowania oraz kinazy, więc przenosi sygnał dalej niezależnie od samego prądu [14].
Zróżnicowanie receptora powstaje na dwóch poziomach, z których pierwszym jest wybór podjednostki GluN2. Drugim jest składanie informacji genetycznej podjednostki GluN1, dające osiem izoform o różnej wrażliwości na protony i na modulatory domeny aminokońcowej [4]. Praca strukturalna nad receptorem z wyciętym eksonem piątym pokazała, że ten krótki odcinek zmienia ułożenie domen zewnątrzkomórkowych, przez co zmienia się tempo zamykania kanału [4]. Budowa receptora nie jest zatem stała dla całego mózgu, lecz stanowi zestaw wariantów dobieranych do potrzeb czasowych komórki.
1.3. Rys historyczny
Rozstrzygnięcia historyczne dotyczące receptora NMDA odpowiadały na pytanie, dlaczego jeden przekaźnik pobudzający daje w tej samej synapsie dwie odpowiedzi o różnym przebiegu. Collingridge, Kehl i McLennan badali w 1983 roku skrawki hipokampa szczura [5]. Stwierdzili, że wybiórczy antagonista AP5 znosi długotrwałe wzmocnienie w drodze kolaterali Schaffera, nie zmieniając zwykłego przekaźnictwa [5]. Odpowiedź szybka i odpowiedź plastyczna okazały się dziełem dwóch różnych receptorów, a nie dwóch faz jednego.
Wynik ten nie tłumaczył jednak milczenia receptora NMDA przy spoczynkowym potencjale błony. Glutaminian bywa do receptora przyłączony, a prąd mimo to nie płynie. Odpowiedź przyniosły dwie niezależne prace opublikowane w 1984 roku. Nowak i współpracownicy badali neurony ośrodkowe myszy, a Mayer, Westbrook i Guthrie neurony rdzenia kręgowego [6, 7]. Obie grupy stwierdziły to samo: jon magnezu blokuje kanał od wnętrza, a blokada ustępuje wraz z depolaryzacją błony [6, 7]. Zależność od napięcia, opisywaną dotąd dla kanałów bramkowanych napięciem, znaleziono w kanale otwieranym przez przekaźnik chemiczny.
Od tych trzech prac pochodzi obowiązujący opis receptora NMDA jako czujnika zbieżności. Dwa warunki, chemiczny i elektryczny, muszą wystąpić razem, a gdy występują osobno, kanał pozostaje zamknięty. Kolejne dekady przyniosły sklonowanie podjednostek, opis miejsca glicynowego i struktury krystaliczne domen zewnątrzkomórkowych. Zasada ustalona w latach osiemdziesiątych pozostała jednak nienaruszona [1].
1.4. Ekspresja i jej regulacja
Podjednostka GluN1 pojawia się wcześnie w rozwoju i występuje w niemal całym układzie nerwowym, natomiast udział podjednostek GluN2 zmienia się w czasie [2, 3]. W okresie płodowym i tuż po urodzeniu przeważają GluN2B oraz GluN2D, a w ciągu kolejnych tygodni rośnie udział GluN2A [3]. Przestawienie to zachodzi w ślad za doświadczeniem zmysłowym i za aktywnością samej synapsy, więc nie jest odliczaniem czasu kalendarzowego.
Następstwo czynnościowe tej zmiany dotyczy czasu. Receptory z podjednostką GluN2B zamykają się wolno i przepuszczają ładunek przez kilkaset milisekund, dzięki czemu sumują sygnały odległe w czasie [2]. Receptory z GluN2A zamykają się szybciej i wymagają ściślejszej zbieżności [2]. Dojrzewająca synapsa zamienia tym samym czułość na precyzję czasową. Przesunięcie to wyznacza koniec okresu wzmożonej neuroplastyczności, w którym obwód daje się łatwo przebudować.
Osobną drogą regulacji jest podjednostka GluN3A, której udział jest wysoki we wczesnym rozwoju i maleje w ciągu dojrzewania. Badania na myszach wykazały, że GluN3A hamuje wbudowywanie receptorów NMDA do synapsy i utrzymuje ich niską zawartość w błonie postsynaptycznej, a jej ubytek przyspieszał dojrzewanie synaps [15]. Danych o przebiegu tego przestawienia u człowieka jest niewiele, a wnioski o jego czasie pochodzą głównie z gryzoni [3, 15]. Regulacja ekspresji ustawia więc stałą czasową synapsy, zanim dojdzie do pojedynczego pobudzenia.
2. Działanie molekularne
2.1. Ligandy endogenne i egzogenne
Receptor NMDA otwiera się dopiero po spełnieniu trzech warunków, z których dwa są chemiczne, a jeden elektryczny. Warunek pierwszy spełnia glutaminian uwolniony z zakończenia presynaptycznego i związany z domeną wiążącą podjednostki GluN2. Warunek drugi spełnia koagonista przyłączony do podjednostki GluN1, czyli glicyna albo D-seryna [8]. Bez tego drugiego ligandu kanał pozostaje zamknięty mimo obecności glutaminianu, co odróżnia receptor NMDA od receptorów AMPA i kainianowych.
Podział ról między dwoma koagonistami zależy od miejsca i od okoliczności. D-seryna działa głównie na receptorach synaptycznych, a glicyna na pozasynaptycznych, przy czym zapas obu uzupełniają komórki glejowe i same neurony [9, 10]. W badaniu na skrawkach hipokampa gryzoni koagonista dostarczany przez astrocyty okazał się różny dla pola CA1 i dla zakrętu zębatego [11]. Dostępność koagonisty jest zatem regulowana lokalnie, a nie ustalona dla całego mózgu. Danych o tym podziale u człowieka brakuje.
Osobną grupę ligandów endogennych wnoszą przemiany tryptofanu. Kwas chinolinowy działa jako agonista receptora NMDA, a kwas kynureninowy blokuje miejsce glicynowe [12]. Te dwa metabolity szlaku kynureninowego działają więc na receptor przeciwstawnie, a ich stężenie rośnie w stanach zapalnych i po urazie mózgu [12]. Receptor NMDA jest zatem punktem, w którym zapalenie przekłada się na przekaźnictwo. Trzeciego warunku, elektrycznego, nie spełnia żaden z tych ligandów, a bez niego ich obecność kanału nie otwiera.
2.2. Podtypy receptora NMDA i ich rozmieszczenie
Podtypem receptora NMDA nazywa się kompleks o określonym składzie podjednostkowym, a nie osobne białko. Ponieważ podjednostka GluN1 jest wspólna dla wszystkich podtypów, o właściwościach podtypu rozstrzyga wybór podjednostki GluN2, która wnosi miejsce wiązania glutaminianu, własną kinetykę zamykania i własny odcinek wewnątrzkomórkowy [2].
Receptory z podjednostką GluN2A przeważają w dojrzałych synapsach kresomózgowia. Zamykają się najszybciej spośród wszystkich podtypów i mają najwyższe prawdopodobieństwo otwarcia, przez co przy krótkim pobudzeniu przepuszczają najwięcej ładunku w jednostce czasu [2]. Domena aminokońcowa tego podtypu wiąże cynk w stężeniach nanomolowych, czego żaden inny podtyp nie robi z podobnym powinowactwem [13].
Receptory z podjednostką GluN2B występują obficie w kresomózgowiu niedojrzałym, a w dojrzałym pozostają głównie poza rdzeniem synapsy. Ich odcinek wewnątrzkomórkowy wiąże kinazę zależną od wapnia i kalmoduliny [14, 18]. Dzięki temu podtyp ten nie tylko przepuszcza wapń, ale też zatrzymuje przy sobie białko odczytujące jego sygnał.
Dwa pozostałe podtypy zmieniają warunek napięciowy. Receptory z podjednostką GluN2C występują głównie w móżdżku, a z GluN2D w interneuronach i strukturach podkorowych [1, 2]. Oba są słabiej blokowane przez magnez i mają niższą przewodność pojedynczego kanału, więc przepuszczają niewielki prąd już przy potencjale spoczynkowym [1, 2]. Czyni to z nich czujniki obecności glutaminianu, a nie czujniki zbieżności. Podjednostki GluN3 obniżają przewodność wapniową i osłabiają blokadę magnezową, więc ich obecność oddala receptor od roli detektora [1, 15].
Pięć najczęstszych składów porównuje zestawienie według umiejscowienia, tempa zamykania kanału i następstwa czynnościowego.
| Podtyp | Główne umiejscowienie | Tempo zamykania | Następstwo czynnościowe |
| GluN1/GluN2A | dojrzałe synapsy kresomózgowia | najszybsze | krótkie, precyzyjne okno wykrywania zbieżności; wysoka wrażliwość na cynk |
| GluN1/GluN2B | kresomózgowie niedojrzałe, obszar okołosynaptyczny | wolne | długie sumowanie w czasie; zakotwiczenie kinazy zależnej od wapnia i kalmoduliny |
| GluN1/GluN2C | móżdżek | pośrednie | słaba blokada magnezowa, niska przewodność, prąd już przy spoczynku |
| GluN1/GluN2D | interneurony, struktury podkorowe | najwolniejsze | najsłabsza blokada magnezowa, długi przepływ ładunku |
| GluN1/GluN3 | wczesny rozwój, wybrane populacje | zmienne | obniżona przewodność wapniowa, osłabiony warunek napięciowy |
Z zestawienia wynika, że skład podjednostkowy rozstrzyga nie o sile receptora. Rozstrzyga o tym, jak długie zdarzenia receptor potrafi połączyć i jak silnej depolaryzacji do tego wymaga.
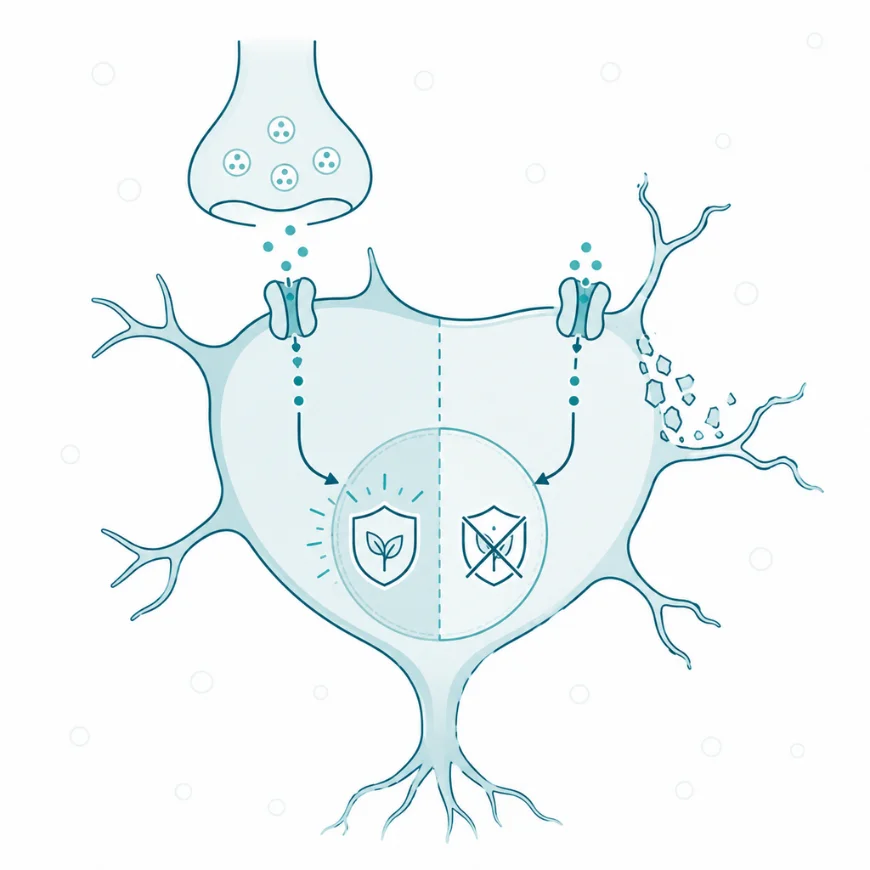
Pobudzenie receptorów synaptycznych sprzyja przeżyciu neuronu, pozasynaptycznych — jego śmierci. Ta sama cząsteczka może działać w różny sposób w zależności od lokalizacji.
2.3. Kaskada po aktywacji receptora NMDA
Kaskada uruchamiana przez receptor NMDA zaczyna się od stanu, w którym kanał jest zamknięty mimo obecności obu agonistów. Przy potencjale spoczynkowym jon magnezu wchodzi do światła kanału i zatyka je od strony zewnętrznej [6, 7]. Magnez występuje w płynie zewnątrzkomórkowym w stężeniu milimolowym, a siła jego wiązania rośnie wraz z ujemnym ładunkiem wnętrza komórki [6, 7]. Glutaminian i koagonista mogą być przyłączone, a prąd i tak nie płynie.
Bodźcem przełamującym ten stan jest depolaryzacja błony postsynaptycznej, powstająca wtedy, gdy uwolnienie glutaminianu jest dostatecznie silne albo powtarzalne. Prąd sodowy płynący przez receptory AMPA w tym samym kolcu dendrytycznym odsuwa wówczas potencjał od wartości spoczynkowej. Magnez opuszcza kanał, światło zostaje udrożnione i receptor przepuszcza jony sodu oraz wapnia [1].
Dalsze kroki rozgrywają się już wewnątrz kolca. Wapń wiąże kalmodulinę, a powstały kompleks aktywuje kinazę zależną od wapnia i kalmoduliny, czyli enzym przenoszący reszty fosforanowe na białka synapsy [16]. Kinaza przemieszcza się do zagęszczenia postsynaptycznego i wiąże się z odcinkiem wewnątrzkomórkowym podjednostki GluN2B, a jej autofosforylacja utrzymuje aktywność enzymu po ustąpieniu sygnału wapniowego [16, 18]. Badania na myszach wskazują przy tym, że o indukcji wzmocnienia rozstrzyga samo wiązanie kinazy z receptorem i przebudowa wywołana tym wiązaniem [17]. Stanem końcowym jest synapsa, w której kinaza pozostaje związana z receptorem i działa dalej, choć stężenie wapnia wróciło do wartości wyjściowej.
O kierunku zmiany rozstrzyga przebieg sygnału wapniowego, nie sam fakt jego wystąpienia. Szybki i wysoki wzrost stężenia wapnia uruchamia kinazy i prowadzi do długotrwałego wzmocnienia synaptycznego. Wzrost powolny i niewielki aktywuje fosfatazy i kieruje synapsę ku długotrwałemu osłabieniu. Receptor NMDA nie przenosi zatem informacji o tym, czy przekaźnik został uwolniony. Przenosi informację o tym, czy uwolnienie zbiegło się w czasie z pobudzeniem komórki odbierającej, a to rozstrzygnięcie uruchamia trwałą zmianę siły połączenia.
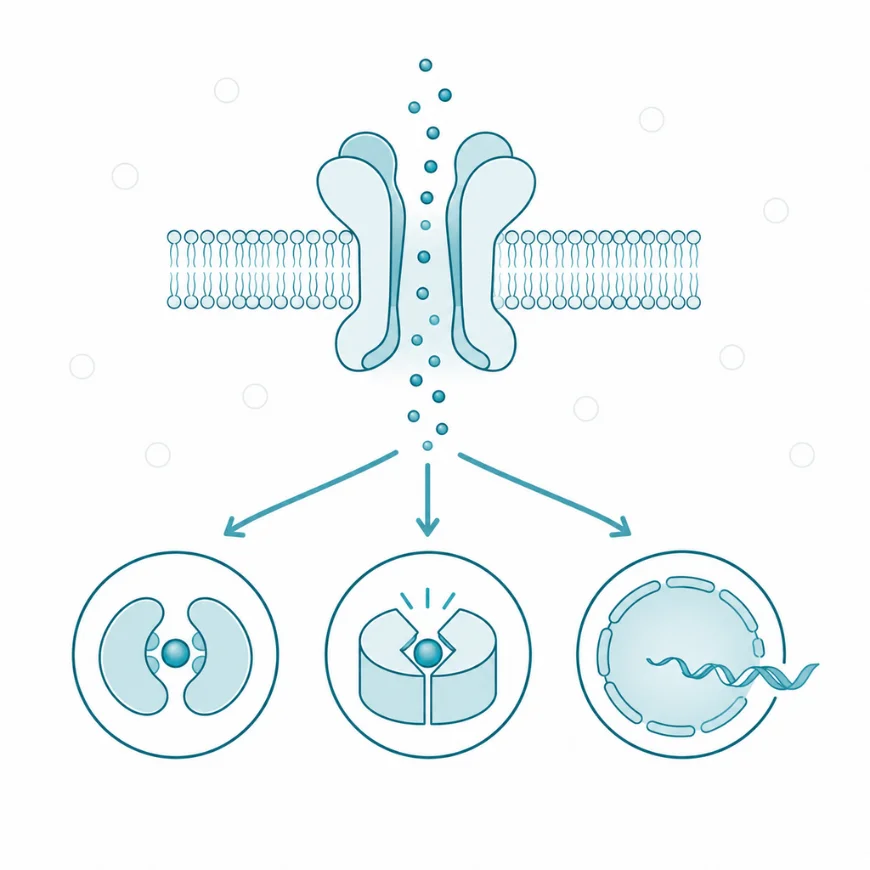
Napływający wapń jest sygnałem — uruchamia kinazy i zmienia ekspresję genów. To podstawa molekularna uczenia się.
2.4. Desensytyzacja i regulacja stężenia
Odpowiedź receptora NMDA słabnie przy utrzymującym się pobudzeniu, choć wolniej niż odpowiedź receptorów AMPA. Wyróżnia się kilka mechanizmów tego osłabienia, a najlepiej opisany opiera się na samym wapniu: jony wpływające przez kanał wiążą kalmodulinę [1]. Kalmodulina przyłącza się następnie do odcinka wewnątrzkomórkowego podjednostki GluN1 i obniża prawdopodobieństwo otwarcia [1]. Receptor ma więc wbudowane hamowanie zwrotne, w którym przewodzony jon ogranicza własny napływ.
Drugą drogą regulacji jest liczba receptorów w błonie. Receptory NMDA przemieszczają się bocznie między rdzeniem synapsy a obszarem okołosynaptycznym [3]. O ich zatrzymaniu w synapsie rozstrzyga wiązanie odcinków wewnątrzkomórkowych z białkami rusztowania zagęszczenia postsynaptycznego [3]. Fosforylacja tych odcinków zmienia powinowactwo do białek rusztowania i przesuwa receptory między pulą synaptyczną a pozasynaptyczną [3]. Wbudowywanie nowych kompleksów podlega osobnej kontroli, w której udział ma podjednostka GluN3A [15].
Trzecim mechanizmem jest usuwanie receptorów z błony przez wchłanianie do wnętrza komórki, co zachodzi fizjologicznie przy przebudowie synaps. W warunkach chorobowych bywa uruchamiany przez autoprzeciwciała wiążące domenę aminokońcową podjednostki GluN1 [29]. Zmiany gęstości zachodzą w skali minut i godzin, a zmiany przewodnictwa w skali milisekund. Te dwa poziomy regulacji odpowiadają zatem na sygnały o zupełnie różnym czasie trwania.
2.5. Farmakologia – agoniści, antagoniści, modulatory
Substancje działające na receptor NMDA wiążą się w czterech różnych miejscach. Miejsce wiązania rozstrzyga o tym, czy działanie znosi całą odpowiedź, czy tylko jej część. Antagoniści kompetycyjni, jak AP5, zajmują miejsce glutaminianu na podjednostce GluN2 [5]. Blokują receptor niezależnie od stanu kanału i znoszą wszystkie odpowiedzi, także fizjologiczne, dlatego ich zastosowanie ogranicza się do badań doświadczalnych.
Odrębną grupę tworzą substancje wchodzące do światła otwartego kanału. Memantyna wchodzi do kanału dopiero wtedy, gdy jest on otwarty, i wiąże się w jego wnętrzu, blokując przepływ jonów [19]. Jej powinowactwo jest słabe, a odłączanie szybkie, więc przy krótkim, fizjologicznym pobudzeniu synapsy zostaje z kanału wyparta i nie przeszkadza w przekazywaniu sygnału [20]. Utrzymuje się natomiast w kanałach otwieranych stale, a taki stan powstaje przy przewlekłym nadmiarze glutaminianu [19]. Stąd bierze się wybiórczość jej działania: hamuje pobudzenie patologiczne, oszczędzając prawidłowe. Memantyna jest lekiem, nie substancją obojętną, a jej stosowanie pozostaje decyzją lekarską.
Ketamina wiąże się w tym samym miejscu kanału i ma zbliżoną siłę działania, a różni ją kinetyka. Badanie na receptorach ludzkich GluN1/GluN2A wykazało, że ketamina odłącza się wolniej i według prostszego przebiegu czasowego niż memantyna [20]. Zostaje przy tym w kanale zamknięta, podczas gdy memantyna wydostaje się z niego częściowo [20]. Ta sama różnica tłumaczy odmienne skutki. Substancja pozostająca w kanale znosi przekaźnictwo także wtedy, gdy jest ono prawidłowe, co daje znieczulenie dysocjacyjne i objawy psychotyczne. Fencyklidyna wiąże się jeszcze silniej i pozostaje w kanale najdłużej. Ketamina ma status lekopodobny i podlega kontroli obrotu, a jej postać S została dopuszczona w depresji lekoopornej [21].
Szybkie działanie przeciwdepresyjne ketaminy nie sprowadza się do samej blokady kanału. Rozważane mechanizmy obejmują wybiórcze zahamowanie receptorów NMDA na interneuronach hamujących oraz blokadę receptorów pozasynaptycznych z podjednostką GluN2B [21, 22]. Wskazywany bywa także metabolit ketaminy, który receptora NMDA nie blokuje [21, 22]. Czwartą grupę stanowią modulatory allosteryczne domeny aminokońcowej, wśród nich cynk działający wybiórczo na podtyp GluN2A i ifenprodyl działający na podtyp GluN2B [13]. Wybiórczość w farmakologii tego receptora bierze się zatem z kinetyki wiązania i z wyboru domeny, a nie z siły blokady.
3. Znaczenie kliniczne
3.1. Skutki obniżonej aktywności
Obniżona aktywność receptora NMDA daje obraz opisany u ludzi najpierw po podaniu substancji blokujących kanał. Fencyklidyna i ketamina odtwarzają u osób zdrowych objawy wytwórcze, ubytkowe i poznawcze przypominające schizofrenię, czego nie dają substancje działające wyłącznie na przekaźnictwo dopaminergiczne [24]. Na tej obserwacji opiera się glutaminianergiczny model schizofrenii, zakładający, że pierwotnym zaburzeniem jest niedoczynność receptora, a nadmiar dopaminy jej następstwem.
Mechanizm proponowany dla tej niedoczynności odwołuje się do rozmieszczenia receptorów. Receptory NMDA na interneuronach hamujących zawierających parwalbuminę są blokowane łatwiej niż receptory na neuronach piramidowych [24]. Zahamowanie przekaźnictwa hamującego przeważa zatem nad zahamowaniem pobudzającego i prowadzi do rozhamowania obwodu korowego [24]. W badaniu na dwudziestu pięciu zdrowych mężczyznach S-ketamina nasiliła spoczynkową aktywność gamma i objawy psychotomimetyczne [23]. Wcześniejsze podanie glicyny nie zniosło tego wpływu po uwzględnieniu porównań wielokrotnych [23]. Model ma zatem oparcie w obserwacji, ale nie w skutecznym odwróceniu zjawiska.
Drugim źródłem danych o niedoczynności są warianty genetyczne. Analiza dwustu czterdziestu ośmiu osób z wariantami genu GRIN2A podzieliła je według umiejscowienia w białku [25]. Warianty znoszące czynność receptora oraz warianty w domenach zewnątrzkomórkowych dawały obraz łagodniejszy, z opóźnieniem mowy i padaczką [25]. Warianty w domenie przezbłonowej, zwiększające czynność receptora, dawały obraz cięższy [25]. Niedobór czynności receptora NMDA nie wyłącza więc obwodu, lecz rozstraja jego równowagę między pobudzeniem a hamowaniem.
3.2. Skutki podwyższonej aktywności
Nadmierne pobudzenie receptora NMDA prowadzi do śmierci neuronu drogą nazywaną ekscytotoksycznością. Przy długo utrzymującym się stężeniu glutaminianu w przestrzeni zewnątrzkomórkowej kanał pozostaje otwarty [1]. Napływ wapnia przekracza wtedy pojemność układów wiążących i usuwających ten jon, czyli białek wiążących wapń, pomp błonowych i mitochondriów [1]. Nadmiar wapnia uruchamia proteazy, uszkadza mitochondria i nasila wytwarzanie tlenku azotu [1, 31]. Ciąg ten kończy się rozpadem komórki, a w tkance objawia się ubytkiem neuronów wokół ogniska niedokrwienia.
Umiejscowienie receptora zmienia kierunek tej samej kaskady. Receptory synaptyczne uruchamiają zależną od wapnia transkrypcję genów wspierających przeżycie komórki [14]. Receptory pozasynaptyczne wiążą się natomiast z białkiem kanałowym TRPM4 i włączają program obumierania [28]. Rozróżnienie to nie jest jednak dychotomią. W hodowli neuronów kory szczura wybiórcze pobudzenie samych receptorów synaptycznych ani samych pozasynaptycznych nie wywoływało śmierci komórki [27]. O nasileniu uszkodzenia rozstrzygały jednoczesność pobudzenia obu pul oraz czas jego trwania [27].
Skutek nadmiernej czynności widać także po stronie genetycznej. Warianty genu GRIN2A umiejscowione w domenie przezbłonowej i w łącznikach zwiększają czynność receptora i dają najcięższe obrazy rozwojowe, z encefalopatią padaczkową [25]. Wapń przepuszczany przez receptor NMDA jest zatem sygnałem, o którego znaczeniu rozstrzyga czas trwania i miejsce powstania, a nie sama obecność.
3.3. Udział receptora NMDA w chorobach
Zapalenie mózgu z przeciwciałami przeciw receptorowi NMDA jest chorobą, w której przeciwciała wiążą domenę aminokońcową podjednostki GluN1, sieciują receptory i doprowadzają do ich usunięcia z synaps [29]. Choroba zaczyna się zwykle objawami psychiatrycznymi. Później pojawiają się napady drgawkowe, ruchy mimowolne i zaburzenia świadomości, a rozpoznanie opiera się na wykryciu przeciwciał w płynie mózgowo-rdzeniowym [29]. Chorują częściej kobiety, w stosunku około ośmiu do dwóch, a około 37% chorych ma w chwili rozpoznania mniej niż osiemnaście lat [29]. Znanymi czynnikami wyzwalającymi są potworniak jajnika i przebyte opryszczkowe zapalenie mózgu [29]. Około 80% chorych poprawia się po immunoterapii i usunięciu guza, choć powrót do zdrowia bywa wolny [29]. W modelu mysim uzyskanym przez czynne uodpornienie przeciwciała obniżyły zawartość receptorów w synapsach i osłabiły plastyczność hipokampa, a podanie dodatniego modulatora allosterycznego odwróciło zaburzenia zachowania [30].
W chorobie Alzheimera udział receptora NMDA polega na przewlekłym, niewielkim pobudzeniu utrzymującym kanały otwarte poza fizjologicznymi wyładowaniami [19]. Stan ten zaciera stosunek sygnału do tła i sprzyja obumieraniu neuronów [19]. Właśnie on jest celem memantyny, której blokada zależna od użycia znosi pobudzenie tła, oszczędzając przekaźnictwo prawidłowe [19, 20]. W stwardnieniu zanikowym bocznym udział przypisuje się receptorom pozasynaptycznym. W modelu mysim wybiórcze rozerwanie połączenia receptora z białkiem TRPM4 zatrzymało ubytek neuronów ruchowych i wydłużyło przeżycie, zachowując przy tym czynność receptorów synaptycznych [28]. Danych z badań u ludzi dla tego punktu uchwytu brakuje.
Udar niedokrwienny jest stanem, w którym ekscytotoksyczność zachodzi najszybciej, a zarazem obszarem najbardziej rozczarowujących wyników badań klinicznych. Przegląd substancji działających na szlaki receptora NMDA wskazuje jako główną przyczynę niepowodzeń wąskie okno czasowe [31]. Skuteczność w modelach uzyskiwano przy podaniu przed niedokrwieniem lub bezpośrednio po nim, a chory trafia do leczenia później [31]. Warianty genów GRIN2A i GRIN2B odpowiadają za odrębną grupę chorób rozwojowych ze spektrum padaczek i zaburzeń mowy [25]. Częsty wariant ludzkiej podjednostki GluN2A zmienia przy tym siłę działania substancji blokujących kanał [26]. W depresji lekoopornej receptor NMDA jest punktem uchwytu ketaminy, której działanie pojawia się w ciągu godzin i utrzymuje kilka dni [21, 22]. Wspólnym mianownikiem tych chorób nie jest kierunek zmiany czynności receptora, lecz utrata zależności między otwarciem kanału a rzeczywistą zbieżnością sygnałów.
3.4. Wsparcie suplementacyjne
Trzy substancje z katalogu platformy mają opisany punkt uchwytu na samym receptorze NMDA, a nie na zjawisku z nim powiązanym. Zestawienie podaje mechanizm wpływu na czynność receptora, kierunek tego wpływu oraz siłę dowodu w skali od A do C.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Memantyna | Nieskompetycyjna blokada otwartego kanału o niskim powinowactwie, szybkim odłączaniu i silnej zależności od napięcia, wybiórcza wobec receptorów otwieranych przewlekle [19, 20]. Substancja o statusie leku | ↓ | C |
| Magnez | Jon blokujący światło kanału od strony zewnętrznej w sposób zależny od napięcia, warunek ciszy receptora przy spoczynkowym potencjale błony [6, 7] | ↓ | C |
| Cynk | Wiązanie w domenie aminokońcowej podjednostki GluN2A w stężeniach nanomolowych, obniżające prawdopodobieństwo otwarcia kanału wybiórczo w tym podtypie [13] | ↓ | C |
Wszystkie trzy wiersze opierają się na danych elektrofizjologicznych i strukturalnych. Żaden nie opiera się na pomiarze czynności receptora u człowieka, stąd jednolita ocena C. Rozbieżność między siłą dowodu mechanistycznego a kliniczną pozycją substancji widać najlepiej przy memantynie. Jej skuteczność objawową badano w próbach z randomizacją, mierząc jednak sprawność poznawczą, a nie czynność receptora [19]. Podobnie w badaniu z randomizacją u 109 zdrowych dorosłych preparat magnezu L-treonianu z fosfatydyloseryną poprawił wyniki testu pamięci, choć czynności receptora w nim nie oceniano [32]. Szczegóły dawkowania, łączenia i interakcji zawierają karty substancji w dziale Suplementy.
4. Na co warto zwrócić uwagę
Najczęstsze nieporozumienie dotyczy określania memantyny i ketaminy mianem blokerów glutaminianu. Żadna z tych substancji nie wiąże glutaminianu ani nie zajmuje jego miejsca na receptorze, natomiast obie wchodzą do światła otwartego kanału i zatykają je mechanicznie [19, 20]. Wynika stąd rozstrzygnięcie ważniejsze niż sama nazwa. Ponieważ obie wymagają otwartego kanału, ich działanie zależy od tego, jak często i jak długo kanał pozostaje otwarty, a nie od stężenia przekaźnika. Różnica między lekiem znoszonym przewlekle a środkiem dysocjacyjnym sprowadza się do tempa odłączania [20]. U memantyny jest ono szybkie i pozwala jej ustąpić przy prawidłowym wyładowaniu, u ketaminy wolne [20]. Obie substancje mają status lekopodobny, a ich stosowanie pozostaje decyzją lekarską.
Drugie nieporozumienie dotyczy wniosku wyciąganego z ekscytotoksyczności. Skoro nadmierne pobudzenie receptora zabija neurony, zablokowanie receptora wydawało się oczywistą osłoną. Badania kliniczne nad antagonistami w udarze niedokrwiennym zakończyły się mimo to niepowodzeniem [31]. Złożyły się na to dwie przyczyny. Pobudzenie receptorów synaptycznych podtrzymuje przeżycie komórki, więc blokada całej populacji odbiera neuronowi sygnał ochronny [14]. Okno czasowe skuteczności kończy się ponadto wcześniej, niż chory trafia do leczenia [31]. Prace późniejsze poszły zatem w stronę rozdzielenia sygnału synaptycznego od pozasynaptycznego zamiast blokowania obu [28].
Podział na receptory synaptyczne i pozasynaptyczne bywa czytany jako sztywna dychotomia dobrego i złego pobudzenia. Dane doświadczalne są ostrożniejsze. W hodowli neuronów kory szczura wybiórcze pobudzenie żadnej z tych pul z osobna nie zabijało komórek, a śmierć wymagała ich współaktywacji utrzymanej w czasie [27]. Rozróżnienie zachowuje wartość jako opis dwóch odmiennych szlaków wewnątrzkomórkowych, ale nie jako reguła przypisująca każdemu receptorowi z góry ustaloną rolę.
Ograniczenia dowodowe dotyczą przede wszystkim pochodzenia danych. Większość wiedzy o kinetyce podtypów, o przestawieniu GluN2B na GluN2A i o roli receptorów pozasynaptycznych pochodzi z receptorów odtworzonych w liniach komórkowych oraz z gryzoni [2, 3]. Dane o składzie podjednostkowym synaps ludzkich są nieliczne [3]. Tam, gdzie porównanie przeprowadzono wprost, wnioski się potwierdziły: kinetyka blokady memantyną i ketaminą na receptorach ludzkich odpowiadała wynikom uzyskanym wcześniej u gryzoni [20]. Osobnym ograniczeniem jest zmienność genetyczna, ponieważ częsty wariant ludzkiej podjednostki GluN2A zmienia siłę działania substancji blokujących kanał [26].
Receptora NMDA nie oznacza się u konkretnej osoby, ponieważ żadne badanie dostępne w praktyce klinicznej nie podaje jego liczby ani czynności. Obrazowanie receptorowe metodą pozytonowej tomografii emisyjnej pozostaje narzędziem badawczym. Rutynowo wykonuje się natomiast wykrywanie autoprzeciwciał przeciw podjednostce GluN1 w płynie mózgowo-rdzeniowym [29]. Badanie to dotyczy przeciwciał, a nie samego receptora, i służy rozpoznaniu jednej choroby, nie ocenie przekaźnictwa glutaminianergicznego. Treść hasła ma charakter edukacyjny i nie zastępuje porady lekarskiej.