
1. Profil substancji
1.1. Definicja i klasyfikacja
Progesteron to hormon steroidowy należący do progestagenów, czyli związków zdolnych przekształcić błonę śluzową macicy w tkankę gotową na przyjęcie zarodka. Chemicznie jest steroidem o 21 atomach węgla, pochodną pregnanu, powstającą z cholesterolu przez pregnenolon [1]. W szlaku hormonów steroidowych zajmuje miejsce wyjściowe, bo jest zarazem hormonem i półproduktem, z którego gruczoły wytwarzają kortykosteroidy, androgeny i estrogeny [1]. Wytwarzają go obie płcie, ponieważ nadnercza syntetyzują go u kobiet i u mężczyzn [2]. Tkanka nerwowa wytwarza progesteron także na miejscu, dlatego zalicza się go również do neurosteroidów [2, 3].
Progesteronu nie utożsamia się z progestynami, czyli syntetycznymi progestagenami stosowanymi w antykoncepcji i w hormonalnej terapii zastępczej (HTZ), która uzupełnia niedobór hormonów jajnika po menopauzie. Wszystkie progestageny pobudzają receptor progesteronowy, ale różnią się budową, metabolizmem i powinowactwem do innych receptorów steroidowych [4]. Część progestyn działa dodatkowo przez receptor androgenowy albo glikokortykoidowy i wywołuje przez to skutki, których sam progesteron nie wywołuje [4]. Wynik badania nad jedną progestyną nie przenosi się więc na progesteron ani na inną progestynę [4].
Od progesteronu odróżnia się też dwa związki o podobnej nazwie. Pregnenolon jest jego bezpośrednim prekursorem [1]. 17-hydroksyprogesteron (17-OHP) powstaje z progesteronu po przyłączeniu grupy hydroksylowej przez enzym 17α-hydroksylazę i prowadzi dalej do kortyzolu oraz androgenów [1]. Nazwa progesteron obejmuje cząsteczkę wytwarzaną w organizmie oraz identyczny chemicznie lek, tak zwany progesteron mikronizowany. Nie obejmuje progestyn ani leków hamujących receptor progesteronowy.
Znaczenie progesteronu wykracza poza rozród. Ten sam hormon decyduje o zagnieżdżeniu zarodka i o spoczynku mięśnia macicy w ciąży, a jego metabolity zmieniają pobudliwość neuronów [5, 6]. Łączy to cykl miesiączkowy z nastrojem i snem. Stąd bierze się miejsce progesteronu w badaniach nad poronieniami, porodem przedwczesnym, zaburzeniami nastroju w fazie lutealnej i bezpieczeństwem terapii hormonalnej.
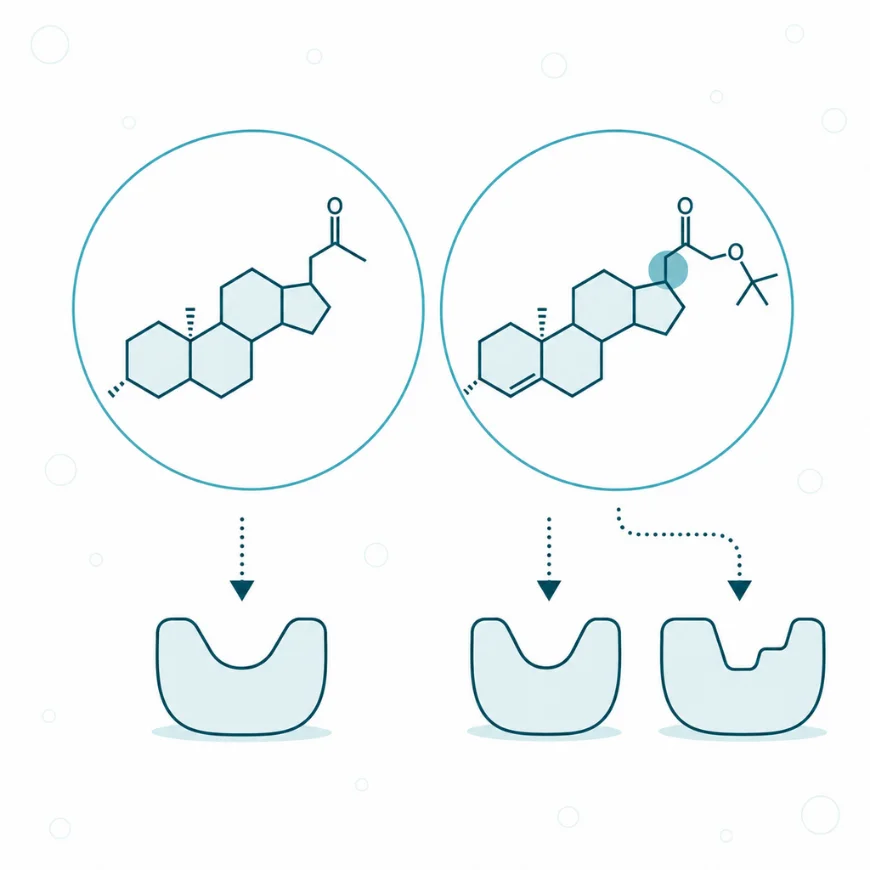
Progesteron to konkretny, naturalny hormon wytwarzany przez ludzki organizm, natomiast progestageny to cała grupa substancji (zarówno naturalnych, jak i sztucznych), które działają w podobny sposób
1.2. Budowa i transport we krwi
Progesteron jest cząsteczką lipofilną, zbudowaną z czterech sprzężonych pierścieni węglowych. Lipofilność pozwala mu przechodzić przez błony komórkowe bez udziału przenośników i docierać do receptorów wewnątrz komórki. Ta sama cecha umożliwia przenikanie przez barierę krew-mózg, dlatego progesteron krążący we krwi działa bezpośrednio na neurony podwzgórza i innych okolic mózgu [2].
Progesteron słabo rozpuszcza się w wodzie, dlatego we krwi krąży głównie w połączeniu z białkami osocza. Większość hormonu wiąże się z albuminą, a mniejsza część z transkortyną, czyli globuliną wiążącą kortykosteroidy (ang. corticosteroid-binding globulin, CBG), która przenosi hormony steroidowe we krwi. W postaci wolnej pozostaje zaledwie kilka procent progesteronu [7]. Oba białka pełnią różne role. Albumina wiąże progesteron słabo, więc hormon łatwo się od niej odłącza i pozostaje dostępny dla tkanek. Transkortyna wiąże go silniej, ale jednocześnie przenosi kortyzol, z którym progesteron konkuruje o miejsca wiązania [7].
Rozkład progesteronu między frakcje zmienia się w ciąży. W modelu Dunna i współpracowników obliczono go osobno dla fazy folikularnej, fazy lutealnej i trzeciego trymestru ciąży, ponieważ w tych stanach różnią się stężenia hormonów i białek wiążących [7]. Przewaga słabego wiązania z albuminą oznacza, że większość progesteronu we krwi pozostaje w zasięgu komórek docelowych.
1.3. Synteza i źródła
Synteza progesteronu zaczyna się w mitochondriach komórek steroidogennych. Enzym P450scc, kodowany przez gen CYP11A1, odcina tam łańcuch boczny cholesterolu i wytwarza pregnenolon. Ten etap ogranicza tempo całej steroidogenezy i podlega ścisłej regulacji ilościowej [1]. Pregnenolon przechodzi następnie do siateczki śródplazmatycznej. Tam dehydrogenaza 3β-hydroksysteroidowa (3β-HSD), enzym utleniający grupę hydroksylową steroidu, przekształca go w progesteron [1].
Głównym źródłem progesteronu u kobiety w wieku rozrodczym jest ciałko żółte, które powstaje z pęcherzyka jajnikowego po owulacji. Komórki ciałka żółtego wytwarzają hormon pod wpływem hormonu luteinizującego (LH), czyli gonadotropiny przysadki pobudzającej steroidogenezę w jajniku [8]. Po zapłodnieniu rolę LH przejmuje gonadotropina kosmówkowa (hCG), wydzielana przez komórki trofoblastu. Z czasem produkcję progesteronu przejmuje łożysko. W ciążach po transferze mrożonych zarodków, w których nie było ciałka żółtego, istotna produkcja progesteronu łożyskowego zaczynała się w 7. tygodniu ciąży [9].
Poza jajnikiem progesteron wytwarzają nadnercza, w których stanowi półprodukt syntezy kortyzolu i aldosteronu, oraz jądra [1, 2]. U mężczyzn i u kobiet po menopauzie te źródła wyznaczają stężenie krążące, które jest wówczas niskie. Osobnym źródłem jest tkanka nerwowa. Enzymy potrzebne do syntezy progesteronu i allopregnanolonu występują w wielu okolicach mózgu i rdzenia kręgowego, a po urazie ich lokalna aktywność wzrasta [3]. Ponieważ hormon pochodzi z kilku źródeł, stężenie progesteronu we krwi odzwierciedla głównie czynność ciałka żółtego albo łożyska, a nie ilość hormonu wytwarzanego w mózgu.
2. Mechanizm działania i funkcje
2.1. Receptory i punkty uchwytu
Progesteron oddziałuje na komórki przez kilka rodzajów białek, które różnią się położeniem w komórce i szybkością odpowiedzi. Klasycznym punktem uchwytu jest jądrowy receptor progesteronowy (PR), czyli czynnik transkrypcyjny aktywowany przez hormon [10]. Receptor PR występuje w dwóch izoformach, PR-A i PR-B, które powstają z jednego genu [10]. Obie wiążą ten sam hormon, ale regulują częściowo różne zestawy genów. Stosunek ich ilości w tkance decyduje o kierunku odpowiedzi, co najlepiej poznano w mięśniu macicy [5, 11]. U myszy pozbawionych genu receptora pojawiają się liczne zaburzenia rozrodu [10].
Drugą grupę tworzą błonowe receptory progesteronu (mPR), należące do rodziny receptorów progestynowo-adiponektynowych (PAQR). Opisano pięć podtypów mPR, oznaczanych literami α, β, γ, δ i ε [12]. Receptory te są związane z białkami G i uruchamiają odpowiedzi niezależne od transkrypcji genów [13]. Z receptorem mPRα współpracuje białko PGRMC1 (ang. progesterone receptor membrane component 1), które ułatwia jego przemieszczenie na powierzchnię komórki [13].
Trzeci punkt uchwytu nie jest cechą samego progesteronu, lecz jego metabolitu. Allopregnanolon nie wiąże się z receptorem PR, ale silnie wzmacnia działanie receptora GABA-A, czyli kanału chlorkowego otwieranego przez kwas γ-aminomasłowy (GABA), główny neuroprzekaźnik hamujący w mózgu [2]. Allopregnanolon wiąże się także z receptorem mPRδ, który spośród podtypów mPR ma do niego największe powinowactwo i jest obficie obecny w mózgu człowieka [12].
Punkty uchwytu progesteronu i jego metabolitu różnią się położeniem, rodzajem sygnału i skutkiem.
| Punkt uchwytu | Położenie | Rodzaj sygnału | Przykładowy skutek |
| PR-A i PR-B | cytoplazma i jądro komórkowe | zmiana transkrypcji genów | przemiana wydzielnicza endometrium |
| mPR (α–ε) | błona komórkowa | aktywacja białek G | szybkie odpowiedzi bez udziału genów |
| PGRMC1 | błony komórkowe i wewnątrzkomórkowe | białko pomocnicze mPRα | transport mPRα na powierzchnię komórki |
| Receptor GABA-A (przez allopregnanolon) | błona neuronu | napływ jonów chlorkowych | zmniejszenie pobudliwości neuronu |
Z powodu tych różnic odpowiedź na progesteron pojawia się w neuronie w ciągu sekund, a w błonie śluzowej macicy narasta przez kilka dni.
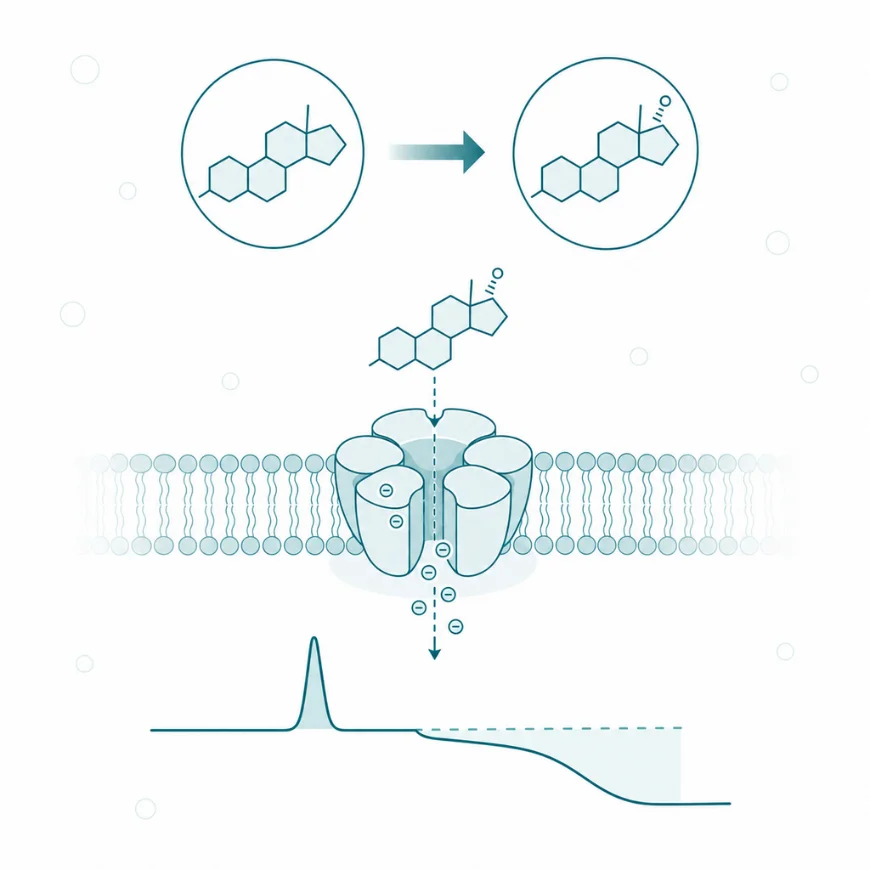
Allopregnanolon powstaje z progesteronu i oddziałuje na receptor GABA-A. Tą drogą hormon płciowy wpływa bezpośrednio na pobudliwość neuronów.
2.2. Kaskada sygnałowa
Genomowe działanie progesteronu zaczyna się od stanu spoczynku, w którym receptor PR pozostaje nieaktywny w cytoplazmie lub w jądrze komórki docelowej. Bodźcem jest wniknięcie progesteronu przez błonę komórkową i związanie się z kieszenią wiążącą receptora. Związanie hormonu zmienia kształt receptora, który tworzy parę z drugą cząsteczką receptora. Taki dimer wiąże się w jądrze z odcinkami DNA zwanymi elementami odpowiedzi na progesteron, położonymi w obszarach regulatorowych genów docelowych [5]. Do dimeru przyłączają się koaktywatory albo korepresory transkrypcji. Ich skład oraz modyfikacje samego receptora po translacji decydują, czy dany gen zostanie pobudzony, czy wyciszony [5].
Przykładem tej drogi jest endometrium. W komórkach podścieliska receptor PR współpracuje z czynnikami transkrypcyjnymi, takimi jak C/EBPβ i STAT3, i razem z nimi uruchamia program genów przygotowujący tkankę do zagnieżdżenia zarodka [14]. Stanem końcowym jest zmiana ilości białek kodowanych przez te geny. Konsekwencją drogi genomowej jest trwała zmiana fenotypu komórki, która wymaga syntezy nowych białek i dlatego narasta stopniowo.
Droga błonowa przebiega szybciej. Progesteron wiąże się z receptorem mPR na powierzchni komórki, a receptor aktywuje białka G i zmienia stężenie przekaźników wtórnych w cytoplazmie [13]. Odpowiedź pojawia się bez udziału transkrypcji. Receptory mPR mogą przy tym zmieniać aktywność innych receptorów hormonalnych w tej samej komórce [13].
Trzecia droga wymaga przemiany progesteronu. Enzym 5α-reduktaza przekształca go w 5α-dihydroprogesteron, a dehydrogenaza 3α-hydroksysteroidowa redukuje ten związek do allopregnanolonu [3]. Allopregnanolon przyłącza się do receptora GABA-A w miejscu innym niż sam neuroprzekaźnik i nasila przepływ jonów chlorkowych wywołany przez GABA [2]. Wnętrze neuronu staje się bardziej ujemne, więc trudniej wywołać w nim potencjał czynnościowy. Trzy drogi przebiegają równolegle, dlatego ten sam wzrost stężenia progesteronu zmienia ekspresję genów w macicy i pobudliwość neuronów w mózgu.
2.3. Funkcje progesteronu
Funkcje progesteronu łączy wspólny kierunek, którym jest przygotowanie organizmu kobiety na ciążę i jej utrzymanie. Wyjątkiem są działania w ośrodkowym układzie nerwowym, które zachodzą u obu płci, ponieważ progesteron powstaje także w nadnerczach i w tkance nerwowej [2].
2.3.1. Endometrium i implantacja zarodka
Endometrium, czyli błona śluzowa macicy, jest głównym narządem docelowym progesteronu. W pierwszej połowie cyklu estrogeny pobudzają podziały komórek endometrium i zwiększają w nich liczbę receptorów progesteronowych. Po owulacji progesteron z ciałka żółtego hamuje podziały komórek nabłonka i przestawia tkankę na wydzielanie [5]. Komórki podścieliska przechodzą przemianę doczesnową, czyli różnicują się w duże komórki zdolne przyjąć zarodek [14].
W modelach mysich geny regulowane przez receptor PR, między innymi Ihh, Bmp2, Hoxa10 i Hand2, okazały się niezbędne do zagnieżdżenia i przemiany doczesnowej [14]. Progesteron zmienia też unaczynienie endometrium i miejscową odpowiedź odpornościową, co pozwala macicy przyjąć zarodek [14]. U człowieka te szlaki bada się głównie w materiale z biopsji, a pełny obraz ich działania pochodzi z modeli zwierzęcych. Konsekwencją jest krótki okres podatności endometrium na zagnieżdżenie, zależny od ekspozycji na progesteron po owulacji.
2.3.2. Ciąża i spoczynek mięśnia macicy
Utrzymanie ciąży wymaga ciągłego działania progesteronu na mięsień macicy, szyjkę i błony płodowe. Progesteron działający przez receptor PR utrzymuje mięsień macicy w spoczynku i przez większość ciąży hamuje uruchomienie porodu [15]. Utrzymuje też zamknięcie szyjki macicy [5]. O kurczliwości mięśnia decyduje przy tym stosunek izoform PR-A do PR-B, który zmienia się w kolejnych okresach ciąży [11].
Przed porodem u człowieka stężenie progesteronu we krwi nie spada wyraźnie. Zachodzi natomiast tak zwane czynnościowe wycofanie progesteronu, czyli utrata jego działania w tkankach macicy [15]. Równocześnie rośnie wpływ estradiolu, oksytocyny i prostaglandyn na mięsień macicy [15]. W wywołaniu tej zmiany uczestniczą mediatory stanu zapalnego w obrębie macicy oraz hormony peptydowe łożyska, w tym łożyskowa kortykoliberyna [15]. Skutkiem jest przejście od spoczynku do skurczów, rozmiękanie szyjki i pęknięcie błon płodowych.
2.3.3. Gruczoł piersiowy
Gruczoł piersiowy reaguje na progesteron inaczej niż endometrium, bo w piersi hormon pobudza podziały komórek. Receptor PR występuje tylko w części komórek nabłonka, nazywanych komórkami czujnikowymi [16]. Komórki te po związaniu progesteronu wydzielają sygnały parakrynne, które pobudzają sąsiednie komórki pozbawione receptora. W okresie dojrzewania i w dorosłości progesteron aktywuje w ten sposób komórki macierzyste i progenitorowe przez białko Wnt4 [16].
W cyklu płciowym i w ciąży progesteron pobudza rozrost nabłonka przez białko RANKL, czyli ligand receptora aktywującego czynnik jądrowy NF-κB, regulator transkrypcji genów podziału komórki [16]. Receptor PR jest genem docelowym receptora estrogenowego α, więc działanie progesteronu w piersi zależy od wcześniejszego działania estrogenów [16]. Większość tych danych pochodzi z modeli mysich, a modele z ludzkiej tkanki poza organizmem wskazują na podobne osie sygnałowe u człowieka [16]. Skutkiem jest przygotowanie gruczołu do laktacji, ale też udział progesteronu w proliferacji, która ma znaczenie dla ryzyka raka piersi.
2.3.4. Oś podwzgórze–przysadka–gonady
Progesteron wpływa na oś podwzgórze–przysadka–gonady, która reguluje czynność jajników przez pulsacyjne wydzielanie gonadoliberyny (GnRH) z podwzgórza. GnRH pobudza przysadkę do wydzielania LH i hormonu folikulotropowego (FSH). Progesteron wywiera na tę oś sprzężenie zwrotne ujemne. W fazie lutealnej częstotliwość pulsów LH stopniowo maleje, w badaniu Filicoriego i współpracowników od 15,2 pulsu na dobę we wczesnej do 8,4 pulsu na dobę w późnej fazie lutealnej [8]. Spadek częstotliwości korelował z czasem ekspozycji na progesteron [8].
Neurony GnRH nie mają receptorów potrzebnych do bezpośredniego odbioru sprzężenia steroidowego, więc progesteron działa na nie pośrednio [17]. W badaniach na owcach częścią sieci pośredniczącej okazały się neurony jądra łukowatego wydzielające orfaninę FQ, peptyd z rodziny opioidów [17]. Dane o tych neuronach pochodzą z badań na zwierzętach, a u człowieka sprzężenie opisano na poziomie pulsacji LH [8]. Wolne pulsy GnRH preferencyjnie pobudzają wydzielanie FSH, a szybkie wydzielanie LH [18]. Zmiana częstotliwości pulsów GnRH jest więc jednym z mechanizmów, przez które hormony jajnika sterują doborem pęcherzyka dominującego i przebiegiem fazy lutealnej [18].
2.3.5. Ośrodkowy układ nerwowy
W ośrodkowym układzie nerwowym (OUN) progesteron działa jako hormon z krwi i jako neurosteroid wytwarzany na miejscu. Receptory PR występują w wielu okolicach mózgu, nie tylko w podwzgórzu związanym z rozrodem [2]. Część działań ośrodkowych wynika z przemiany progesteronu w allopregnanolon, który wzmacnia hamujące przekaźnictwo GABA-ergiczne [2]. W wysokim stężeniu allopregnanolon działa uspokajająco i nasennie, podobnie do innych substancji wzmacniających receptor GABA-A [6].
W badaniu z randomizacją u 10 zdrowych kobiet po menopauzie progesteron mikronizowany skracał czas czuwania w nocy i nie pogarszał sprawności poznawczej w ciągu dnia [19]. Zależność między stężeniem allopregnanolonu a nastrojem ma jednak kształt odwróconej litery U. Niskie i wysokie stężenia mało zmieniają nastrój, a stężenia typowe dla fazy lutealnej mogą go u części kobiet pogarszać [6].
W modelach zwierzęcych urazu rdzenia kręgowego, udaru i urazu mózgu progesteron i allopregnanolon ograniczały uszkodzenie tkanki nerwowej [3]. U ludzi dwa duże badania III fazy z randomizacją nie wykazały korzyści z dożylnego podania progesteronu w ostrym urazie mózgu [20, 21]. Ośrodkowe działanie progesteronu wiąże więc zmienność hormonalną cyklu z jakością snu i nastrojem, ale nie przełożyło się na skuteczne leczenie uszkodzeń mózgu.
2.3.6. Termoregulacja i oddychanie
Progesteron podnosi temperaturę głęboką ciała. Po owulacji temperatura ta jest o 0,3–0,7°C wyższa niż w fazie folikularnej, a różnica najlepiej uwidacznia się we śnie i tuż po przebudzeniu [22]. Mechanizm działania termogennego nie został wyjaśniony [22]. Postulowany mechanizm zakłada wpływ progesteronu na neurony termoregulacyjne podwzgórza, które ustalają docelową temperaturę ciała [22].
Progesteron zwiększa też wentylację płuc. W badaniu MacNutt i współpracowników spoczynkowa wentylacja minutowa była wyższa w środkowej fazie lutealnej, gdy stężenie progesteronu jest największe, niż w fazie folikularnej [23]. Wrażliwość ośrodka oddechowego na dwutlenek węgla i niedotlenienie nie zmieniała się jednak w tym badaniu ponad zmienność samego pomiaru [23]. Przegląd Behan i Wenninger zalicza progesteron do hormonów płciowych wpływających na kontrolę oddychania u zwierząt i ludzi, ale miejsce i mechanizm tego działania pozostają nieustalone [24]. Wyższa temperatura i nieco większa wentylacja w fazie lutealnej są fizjologicznymi śladami działania progesteronu, a nie objawami choroby.
2.4. Regulacja wydzielania i zmienność w cyklu
Wydzielanie progesteronu zmienia się wraz z fazą cyklu miesiączkowego i przebiegiem ciąży. W fazie folikularnej stężenie hormonu jest niskie, a po owulacji wzrasta, gdy komórki pęcherzyka ulegają luteinizacji [25]. Tempo produkcji w ciałku żółtym zależy od LH. W środkowej i późnej fazie lutealnej progesteron jest wydzielany pulsacyjnie, a jego stężenie w osoczu zmieniało się w ciągu doby od 2,3 do 40,1 ng/ml, często w ciągu minut [8].
Wzrosty stężenia progesteronu następowały po pulsach LH z opóźnieniem 25–55 minut [8]. We wczesnej fazie lutealnej wydzielanie było natomiast stabilne i niezależne od pulsów LH [8]. Jeżeli nie dojdzie do zapłodnienia, ciałko żółte zanika pod koniec fazy lutealnej. Stężenie progesteronu spada, a utrata jego działania na endometrium wywołuje miesiączkę [5].
W ciąży hCG podtrzymuje czynność ciałka żółtego, a stopniowo rośnie udział łożyska. W badaniu ciąż bez ciałka żółtego stężenie progesteronu rosło nieliniowo przez cały pierwszy trymestr i było wyższe w ciążach mnogich [9]. Stężenie w fazie lutealnej różni się też znacznie między cyklami tej samej kobiety i między kobietami [26]. Ponieważ ciałko żółte wydziela hormon pulsami, stężenie zmierzone w danej chwili zależy także od momentu pobrania krwi względem ostatniego pulsu LH.
2.5. Inaktywacja i wydalanie progesteronu
Progesteron jest szybko unieczynniany, głównie w wątrobie, która przekształca go w metabolity pozbawione działania hormonalnego. Główna droga rozkładu prowadzi przez redukcję pierścienia steroidowego i grup ketonowych do pregnandiolu. Pregnandiol łączy się następnie z kwasem glukuronowym, co zwiększa jego rozpuszczalność w wodzie i umożliwia wydalenie z moczem. Glukuronian pregnandiolu (PdG) jest głównym metabolitem progesteronu w moczu [27]. W badaniu Gifford i współpracowników mediana wzrostu PdG w fazie lutealnej wyniosła 427% wartości wyjściowej [27].
Część progesteronu przechodzi przez 5α-redukcję. W tkankach, które zawierają oba enzymy tej drogi, jej produktem jest allopregnanolon [3]. Rozkład progesteronu w mózgu nie oznacza więc utraty aktywności, lecz zmianę jej rodzaju. Intensywny metabolizm przy pierwszym przejściu przez wątrobę odróżnia progesteron od wielu progestyn, które zaprojektowano jako związki trwalsze metabolicznie [4]. Ilość PdG w moczu odzwierciedla dzięki temu wydzielanie progesteronu w poprzednich godzinach, a nie jego bieżące stężenie we krwi.
3. Zaburzenia i modyfikacja
3.1. Zaburzenia stężenia
Zaburzenia stężenia progesteronu wynikają ze zmiany czynności ciałka żółtego albo z podania hormonu z zewnątrz. Podstawową przyczyną niskiego stężenia w wieku rozrodczym jest brak owulacji, ponieważ bez owulacji nie powstaje ciałko żółte. Cykl bezowulacyjny może mieć prawidłową długość, więc sam kalendarz miesiączek go nie ujawnia [28].
Osobnym i spornym pojęciem jest niewydolność fazy lutealnej. Amerykańskie Towarzystwo Medycyny Rozrodu (ASRM) opisuje ją jako rozpoznanie kliniczne związane z fazą lutealną trwającą 10 dni lub krócej [29]. Proponowane przyczyny to zbyt krótkie wydzielanie progesteronu, zbyt niskie jego stężenie albo oporność endometrium na jego działanie [29]. Niewydolność fazy lutealnej występuje jednak także u płodnych kobiet z regularnymi cyklami. Nie potwierdzono jej jako samodzielnej przyczyny niepłodności ani nawracających poronień [29].
Stężenie progesteronu fizjologicznie znacznie wzrasta w ciąży. Wysokie stężenia pochodzące z leczenia mają głównie skutki ośrodkowe, związane z przemianą w allopregnanolon. Obejmują senność, a u części kobiet obniżenie nastroju, szczególnie przy dodawaniu progestagenu do leczenia estrogenami [6]. Niedobór progesteronu przejawia się przede wszystkim zmianą przebiegu cyklu, czyli brakiem owulacji albo skróceniem fazy lutealnej.
3.2. Rola progesteronu w patogenezie chorób
Progesteron jest ogniwem kilku chorób, w których jego stężenie bywa prawidłowe, a zaburzenie dotyczy odpowiedzi tkanek. Przedmiesiączkowe zaburzenie dysforyczne (ang. premenstrual dysphoric disorder, PMDD) to ciężka postać dolegliwości przedmiesiączkowych z nawracającymi objawami depresji, drażliwości i lęku w fazie lutealnej. Dotyczy co najmniej 3% kobiet [30]. Kobiety z PMDD nie mają nieprawidłowych stężeń progesteronu, lecz nieprawidłowo reagują na jego prawidłowe zmiany.
W badaniu Schmidta i współpracowników wyłączenie czynności jajników agonistą gonadoliberyny zmniejszało objawy zespołu napięcia przedmiesiączkowego. Dodanie estradiolu albo progesteronu przywracało je u kobiet z tym zespołem, bez wpływu na nastrój kobiet zdrowych [31]. Hipoteza allopregnanolonowa zakłada, że objawy wywołuje paradoksalna reakcja receptora GABA-A na allopregnanolon w stężeniach fazy lutealnej [6, 30]. Kobiety z PMDD różnią się od zdrowych czynnością mózgu i składem podjednostek tego receptora w zależności od stężenia allopregnanolonu [30].
Hipotezę, że niedobór progesteronu powoduje poronienia, sprawdzono w dużych badaniach z randomizacją. W badaniu PROMISE 836 kobiet z niewyjaśnionymi nawracającymi poronieniami otrzymywało w pierwszym trymestrze dopochwowy progesteron mikronizowany albo placebo. Odsetek żywych urodzeń wyniósł 65,8% w grupie progesteronu i 63,3% w grupie placebo, a różnica nie była istotna statystycznie [32]. W badaniu PRISM 4153 kobiety z krwawieniem we wczesnej ciąży urodziły żywe dziecko po co najmniej 34. tygodniu w 75% przy progesteronie i w 72% przy placebo, przy wartości p równej 0,08 [33].
W zaplanowanej analizie podgrup PRISM korzyść była wyraźniejsza u kobiet z krwawieniem i co najmniej trzema wcześniejszymi poronieniami, u których żywe urodzenia wyniosły 72% wobec 57% przy placebo [34]. Przegląd Cochrane z 2021 roku ocenił z wysoką pewnością, że u kobiet z krwawieniem i co najmniej jednym wcześniejszym poronieniem dopochwowy progesteron mikronizowany zwiększa odsetek żywych urodzeń [35]. U kobiet z krwawieniem bez wcześniejszych poronień leczenie prawie go nie zmieniało [35].
Ze względu na udział progesteronu w spoczynku macicy badano go także jako lek zapobiegający porodowi przedwczesnemu. W metaanalizie EPPPIC, obejmującej dane indywidualne 11 644 kobiet z 31 badań, dopochwowy progesteron zmniejszał ryzyko porodu przed 34. tygodniem w ciąży pojedynczej obciążonej wysokim ryzykiem o 22% [36]. Największą korzyść bezwzględną odnosiły kobiety ze skróconą szyjką macicy, a w ciążach bliźniaczych dopochwowy progesteron nie działał [36]. Syntetyczny kapronian 17-hydroksyprogesteronu (17-OHPC) nie zmniejszył częstości nawrotu porodu przedwczesnego w badaniu PROLONG, obejmującym 1708 kobiet [37].
Główne badania nad progestagenami w ciąży różnią się populacją i wynikiem.
| Badanie | Populacja | Porównanie | Wynik główny |
| PROMISE [32] | 836 kobiet z nawracającymi poronieniami | progesteron dopochwowy vs placebo | żywe urodzenia 65,8% vs 63,3%, różnica nieistotna |
| PRISM [33] | 4153 kobiety z krwawieniem we wczesnej ciąży | progesteron dopochwowy vs placebo | żywe urodzenia 75% vs 72%, p = 0,08 |
| PRISM, podgrupa [34] | krwawienie i co najmniej 3 wcześniejsze poronienia | progesteron dopochwowy vs placebo | żywe urodzenia 72% vs 57% |
| EPPPIC [36] | 11 644 kobiety z 31 badań | progestageny vs grupa kontrolna | mniej porodów przed 34. tyg. w ciąży pojedynczej wysokiego ryzyka, brak efektu w bliźniaczej |
| PROLONG [37] | 1708 kobiet po porodzie przedwczesnym | 17-OHPC vs placebo | poród przed 35. tyg. 11,0% vs 11,5% |
Korzyść ograniczona do wybranych grup jest zgodna z założeniem, że niedobór progesteronu nie jest wspólną przyczyną poronień i porodów przedwczesnych, lecz ogniwem ważnym u części kobiet.
Endometrium narażone na estrogeny bez przeciwwagi progesteronu ulega rozrostowi. W badaniu PEPI u kobiet po menopauzie przyjmujących same estrogeny rozrost atypowy endometrium wystąpił u 11,8%, a w grupie placebo u żadnej [38]. Dodanie progestagenu, w tym cyklicznego progesteronu mikronizowanego, obniżyło częstość rozrostu do poziomu grupy placebo [38]. Ochrona endometrium przed rozrostem wynika z przeciwproliferacyjnego działania receptora PR w nabłonku endometrium, który w komórkach raka endometrium działa jak supresor nowotworu [5]. W endometriozie, adenomiozie i rozroście endometrium opisano z kolei oporność na progesteron. Tkanka nie odpowiada wtedy prawidłowo na hormon mimo jego obecności, co utrwala przewagę sygnalizacji estrogenowej [39].
W gruczole piersiowym kierunek działania progesteronu jest odwrotny, bo hormon pobudza proliferację nabłonka. W metaanalizie danych indywidualnych 108 647 kobiet z rakiem piersi terapia estrogenowo-progestagenowa wiązała się z większym ryzykiem niż terapia samymi estrogenami, a ryzyko rosło z czasem stosowania [40]. Przy obecnym stosowaniu trwającym od 5 do 14 lat ryzyko względne wynosiło 2,08 dla preparatów złożonych i 1,33 dla samych estrogenów [40]. We wszystkich opisanych chorobach o skutku decyduje odpowiedź tkanki na progesteron, a nie samo jego stężenie we krwi.
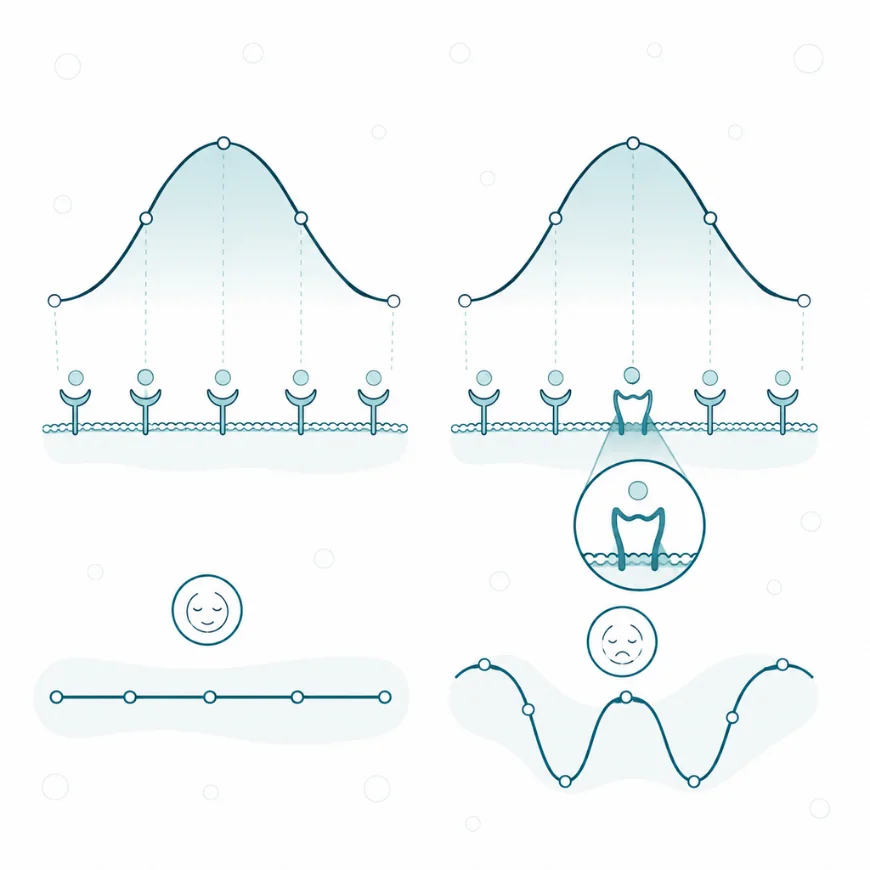
W PMS i PMDD problemem jest wrażliwość na zmianę stężenia progesteronu, nie samo stężenie. Pomiar hormonu niczego tu nie rozstrzyga.
3.3. Punkt uchwytu leków
Receptor progesteronowy jest punktem uchwytu kilku klas leków, które naśladują progesteron, hamują jego działanie albo odtwarzają działanie jego metabolitu. W cyklach wspomaganego rozrodu stężenie progesteronu lub hCG w fazie lutealnej bywa niskie, dlatego fazę tę wspiera się progesteronem, hCG albo agonistą GnRH [41]. W przeglądzie Cochrane progesteron w porównaniu z placebo wiązał się z większą częstością żywych urodzeń lub trwających ciąż, przy bardzo niskiej jakości danych [41]. W HTZ u kobiet z zachowaną macicą progestagen łączy się z estrogenem przede wszystkim po to, aby chronić endometrium [4].
Mifepriston i octan uliprystalu należą do selektywnych modulatorów receptora progesteronowego (ang. selective progesterone receptor modulators, SPRM). Leki te wiążą się z receptorem PR i w większości tkanek hamują działanie progesteronu [42]. Stosuje się je do farmakologicznego przerwania ciąży i do antykoncepcji awaryjnej [42]. Mifepriston blokuje też receptor glikokortykoidowy i dzięki temu znalazł zastosowanie w leczeniu zespołu Cushinga [43, 55]. Dłuższe stosowanie octanu uliprystalu ograniczono po rzadkich, ale ciężkich przypadkach uszkodzenia wątroby [42].
Hamowanie receptora PR sprawdzono także w PMDD. W badaniu z randomizacją u 95 kobiet octan uliprystalu zmniejszył nasilenie objawów przedmiesiączkowych o 41%, wobec 22% w grupie placebo [44]. Wynik ten jest zgodny z hipotezą, że objawy wywołuje zmienny sygnał hormonalny fazy lutealnej. Breksanolon jest dożylną postacią allopregnanolonu. W dwóch badaniach III fazy z randomizacją zmniejszał on nasilenie umiarkowanej i ciężkiej depresji poporodowej silniej niż placebo [45].
Leki działające na szlak progesteronu różnią się punktem uchwytu i zastosowaniem.
| Klasa leku | Przykład | Działanie | Zastosowanie badane lub kliniczne |
| Progesteron | progesteron mikronizowany | agonista PR | wsparcie fazy lutealnej, HTZ, profilaktyka porodu przedwczesnego |
| Progestyny | octan medroksyprogesteronu, 17-OHPC | agoniści PR, część także innych receptorów steroidowych | HTZ, profilaktyka porodu przedwczesnego |
| SPRM | mifepriston, octan uliprystalu | hamowanie PR | przerwanie ciąży, antykoncepcja awaryjna, PMDD w badaniach |
| Analog neurosteroidu | breksanolon | wzmocnienie receptora GABA-A | depresja poporodowa |
Wyniki badań nad tymi lekami są zgodne z mechanizmami opisanymi dla hormonu, ponieważ zmiana sygnału przez receptor PR albo GABA-A zmienia przebieg ciąży i nastrój.
3.4. Modyfikacja behawioralna i dietetyczna
Wydzielanie progesteronu zależy od dostępności energii, ponieważ owulacja i czynność ciałka żółtego wymagają sprawnej osi podwzgórzowo-przysadkowej. U kobiet aktywnych fizycznie zaburzenia fazy lutealnej występują często i zwykle bez zmiany długości cyklu. W badaniu De Souza i współpracowników owulacyjnych było 50% cykli kobiet trenujących, wobec 95,8% cykli kobiet nieaktywnych [28]. Niewydolność fazy lutealnej dotyczyła 29,2% cykli w grupie trenującej [28].
Cykle te cechowało zmniejszone wydalanie metabolitów progesteronu oraz obniżone stężenia trójjodotyroniny, leptyny i insuliny [46]. Taki profil hormonalny odpowiada stanowi oszczędzania energii, podobnemu do obserwowanego u sportsmenek bez miesiączki, choć łagodniejszemu [46].
Nadmierna masa ciała również zmniejsza wydzielanie progesteronu. U kobiet z otyłością wydalanie metabolitu progesteronu z moczem jest mniejsze, niż wynikałoby z samego zahamowania gonadotropin [47]. Hipoteza zakłada, że otyłość bezpośrednio upośledza czynność ciałka żółtego. W modelu małp zielonych u samicy, której masa ciała wzrosła, obserwowano mniejsze wydzielanie progesteronu w środkowej fazie lutealnej i słabszą ekspresję genów steroidogenezy w ciałku żółtym, co autorzy przedstawili jako obserwację wstępną [47]. U ludzi brakuje badań interwencyjnych nad samym ciałkiem żółtym.
W analizie post hoc badania BAMBINI u kobiet z zespołem policystycznych jajników i otyłością każdy 1% utraty masy ciała wiązał się ze wzrostem szansy powrotu owulacji o 5,6% [48]. Czynniki behawioralne wpływają więc na progesteron pośrednio, przez owulację i czynność ciałka żółtego, a nie przez bezpośrednią zmianę syntezy hormonu.
3.5. Czynniki wpływające na stan i czynność
Czynniki wpływające na progesteron dzielą się na niemodyfikowalne i modyfikowalne. Do niemodyfikowalnych należą płeć, faza cyklu, ciąża i wiek. Wyznaczają one, czy w organizmie działa ciałko żółte albo łożysko, czyli dwa główne źródła hormonu. Po menopauzie owulacja ustaje i stężenie progesteronu pozostaje stale niskie.
Do czynników modyfikowalnych należą leki i stany hamujące owulację, ponieważ bez owulacji nie powstaje ciałko żółte. Masa ciała i bilans energetyczny działają tą samą drogą. Wpływ substancji stosowanych jako suplementy jest słabo udokumentowany. Pregnenolon jest bezpośrednim prekursorem progesteronu. W badaniu z randomizacją u mężczyzn doustny pregnenolon podnosił stężenie allopregnanolonu, a zmiany te wiązały się z aktywnością obwodów regulacji emocji w mózgu [49]. Badanie nie oceniało stężenia samego progesteronu ani nie obejmowało kobiet.
Pirydoksyna, czyli witamina B6, nie zmieniała stężenia hormonów, w tym progesteronu, w małym badaniu u kobiet z zespołem napięcia przedmiesiączkowego [50]. Znane czynniki modyfikowalne wpływają więc na progesteron przez owulację i ciałko żółte, a nie przez dostarczenie substratu do syntezy hormonu.
4. Uwagi praktyczne
4.1. Jak to zbadać
Progesteron oznacza się w surowicy krwi przede wszystkim w celu potwierdzenia, że w danym cyklu doszło do owulacji. Badanie ma sens w środkowej fazie lutealnej, gdy działa ciałko żółte. W analizie profili hormonalnych w cyklu za właściwy termin uznano dzień 7. po szczycie objawu śluzu szyjkowego, czyli około tygodnia po owulacji [26]. Pobranie krwi przed owulacją albo tuż po niej daje wynik niski także w prawidłowym cyklu.
W analizie 260 cykli pojedynczy wynik progesteronu w surowicy wynoszący co najmniej 5 ng/ml potwierdzał owulację ze swoistością 98,4% i czułością 89,6% [25]. Laboratoria podają wynik w ng/ml albo w nmol/l. Próg 5 ng/ml odpowiada w przybliżeniu 16 nmol/l, a wartość 16,0 nmol/l przyjęto jako kryterium owulacji w badaniu BAMBINI [48]. Wynik poniżej progu nie przesądza o braku owulacji, jeśli pobranie wypadło za wcześnie albo w okresie niskiego stężenia między pulsami LH.
Na wynik wpływa leczenie hormonalne. W czasie przyjmowania progesteronu wynik obejmuje podany lek i nie odróżnia go od hormonu własnego. Dydrogesteron, progestyna stosowana we wsparciu fazy lutealnej, nie reaguje natomiast krzyżowo w oznaczeniach progesteronu, więc przy jego stosowaniu wynik pokazuje wyłącznie hormon wytwarzany przez organizm [9].
W moczu oznacza się PdG. Seria oznaczeń w kolejnych dniach cyklu pozwala ustalić owulację bez pobierania krwi, a automatyczne oznaczenia progesteronu w moczu osiągały podobną trafność [27]. Pomiar temperatury ciała po przebudzeniu rozpoznaje owulację tylko wstecznie, po wzroście temperatury [22]. Pojedynczy wynik progesteronu potwierdza owulację, ale nie mierzy wydolności ciałka żółtego. Dla niewydolności fazy lutealnej nie ma uzgodnionej metody rozpoznania, więc wynik progesteronu nie stanowi jej diagnozy [29].
4.2. Na co warto zwrócić uwagę
Dane z dużych badań nad ryzykiem terapii hormonalnej dotyczą w większości progestyn, nie progesteronu. Badanie z randomizacją Women’s Health Initiative (WHI) oceniało połączenie skoniugowanych estrogenów końskich z octanem medroksyprogesteronu u 16 608 kobiet po menopauzie [51]. Zakończono je przedwcześnie po średnio 5,2 roku, między innymi z powodu przekroczenia granicy bezpieczeństwa dla inwazyjnego raka piersi [51]. Wyniku WHI nie przenosi się więc wprost na progesteron mikronizowany.
We francuskiej kohorcie E3N, obejmującej 80 377 kobiet, estrogen z progesteronem nie wiązał się ze zwiększonym ryzykiem raka piersi, przy ryzyku względnym 1,00 [52]. Estrogen z innymi progestagenami, poza dydrogesteronem, wiązał się z ryzykiem względnym 1,69 [52]. E3N jest badaniem obserwacyjnym, więc różnica może częściowo wynikać z cech kobiet wybierających dany preparat. Wnioski o szkodliwości progestagenów jako klasy nie mają jednak podstawy, ponieważ poszczególne związki różnią się profilem receptorowym i działaniem klinicznym [4].
Pojęcie „dominacji estrogenowej” funkcjonuje w dwóch znaczeniach. W piśmiennictwie naukowym opisuje stan tkanki, zwłaszcza endometrium w endometriozie, adenomiozie czy mięśniakach macicy, w którym sygnalizacja estrogenowa przeważa z powodu oporności na progesteron [39]. W obiegu popularnym oznacza rzekomy niedobór progesteronu wobec estrogenów, rozpoznawany na podstawie objawów albo pojedynczego stosunku stężeń we krwi. Takie rozpoznanie nie ma oparcia w pomiarze. Stężenie progesteronu w fazie lutealnej zmienia się w ciągu doby wielokrotnie, w rytmie pulsów LH [8].
Kremy z dzikim ignamem (Dioscorea villosa) bywają przedstawiane jako naturalne źródło progesteronu. Zawierają diosgeninę, saponinę steroidową, którą przemysł farmaceutyczny wykorzystuje jako surowiec do wytwarzania steroidów [53]. W badaniu z randomizacją i kontrolą placebo u 23 kobiet po menopauzie krem z ekstraktem dzikiego ignamu nie zmienił stężenia progesteronu w surowicy ani w ślinie [54]. Nie różnił się też od placebo w łagodzeniu objawów menopauzy [54]. Obecność prekursora w surowcu roślinnym nie oznacza więc, że organizm przekształci go w hormon.
Interpretacja niskiego wyniku, skróconej fazy lutealnej czy nawracających objawów przedmiesiączkowych należy do lekarza, ponieważ te same zjawiska mają przyczyny niezwiązane z progesteronem.