

1. Charakterystyka estrogenów
1.1. Definicja i klasyfikacja
Estrogeny to hormony steroidowe o osiemnastu atomach węgla, wyróżnione spośród pozostałych steroidów jedną cechą budowy. Pierwszy pierścień ich szkieletu, oznaczany literą A, jest aromatyczny i nosi grupę hydroksylową przy węglu trzecim. Taki pierścień nie powstaje w organizmie na żadnej innej drodze niż przez przekształcenie androgenu, a reakcję katalizuje pojedynczy enzym siateczki śródplazmatycznej, aromataza, kodowany przez gen CYP19A1 [1].
W klasyfikacji steroidów estrogeny sąsiadują z androgenami i od nich pochodzą. Androgeny mają dziewiętnaście atomów węgla i niearomatyczny pierścień A, estrogeny zaś osiemnaście atomów węgla i pierścień aromatyczny. Różnicę tę tworzy aromataza, odcinając grupę metylową przy węglu dziewiętnastym [1]. Wynika stąd zależność porządkująca całą fizjologię tych hormonów: każdy estrogen jest chemicznym potomkiem androgenu. Tempo jego powstawania zależy zatem od dwóch wielkości naraz: od podaży substratu i od aktywności enzymu w danej tkance.
Trzy pojęcia bywają z estrogenami mylone, a rozgraniczenie ich porządkuje dalszy opis. Estrogeny nie są hormonami wyłącznie żeńskimi, ponieważ krążą u obu płci. U mężczyzny estradiol powstaje z testosteronu w tkance tłuszczowej, kości i mózgu, gdzie ma udokumentowane działanie na mineralizację kośćca i na zawartość tkanki tłuszczowej [3, 11]. Estrogeny nie są też tożsame z progesteronem, który powstaje inną drogą, wiąże się z własnym receptorem i w macicy równoważy działanie estrogenu, zamiast je powtarzać [5]. Estrogenami nie są wreszcie fitoestrogeny, czyli roślinne polifenole wiążące ten sam receptor. Wiążą go z powinowactwem mniejszym o rzędy wielkości, przy czym większość z nich wybiera receptor ERβ [4].
Zakres pojęcia obejmuje cząsteczki wytwarzane przez organizm, nie zaś klasę leków. Skoniugowane estrogeny końskie, etynyloestradiol i estradiol podawany przezskórnie są preparatami o odmiennej farmakokinetyce, a różnice między nimi bywają większe niż różnice między samymi hormonami [13]. Osobne hasło dla estrogenów uzasadnia zasięg ich działania. Ten sam hormon steruje dojrzewaniem i rozrodem, zamykaniem chrząstek wzrostowych oraz przebudową kości, a ponadto wpływa na napięcie naczyń i na plastyczność synaps. Jego wrodzony brak daje zespół obejmujący wszystkie te układy naraz, u kobiet i u mężczyzn [3].
1.2. Budowa i rodzaje estrogenów
Trzy postacie estrogenów mają wspólny szkielet estranu i różnią się wyłącznie tym, co znajduje się przy dwóch atomach węgla ostatniego pierścienia. Estradiol nosi przy węglu siedemnastym grupę hydroksylową w położeniu beta, a estron ma w tym samym miejscu grupę ketonową. Estriol ma dwie grupy hydroksylowe, przy węglu szesnastym i siedemnastym [1]. Różnica jest niewielka chemicznie i duża czynnościowo, ponieważ to właśnie grupa 17β-hydroksylowa dopasowuje cząsteczkę do kieszeni wiążącej receptora.
Estradiol wiąże się z receptorem estrogenowym z powinowactwem odpowiadającym stałej dysocjacji rzędu setnych części nanomola i jest najsilniejszym z trzech estrogenów człowieka [4]. Estron wiąże się słabiej, a jego znaczenie polega głównie na tym, że stanowi zapas. Dehydrogenaza 17β-hydroksysteroidowa typu pierwszego redukuje grupę ketonową do hydroksylowej i przekształca estron w estradiol, podczas gdy izoformy utleniające zawracają tę reakcję [6]. Enzymy te działają w gonadach, gdzie wpływają na stężenie krążące, oraz w tkankach obwodowych, gdzie decydują o tym, ile czynnego hormonu dotrze na miejscu do receptora [6]. Jest to regulacja przedreceptorowa, czyli sterowanie dostępnością ligandu zamiast zmiany liczby receptorów.
Dominacja poszczególnych postaci zmienia się z okresem życia, ponieważ zależy od tego, gdzie i z czego hormon powstaje. U kobiety w wieku rozrodczym przeważa estradiol wytwarzany przez pęcherzyk jajnikowy, a jego stężenie zmienia się w rytmie cyklu [5]. Po wygaśnięciu czynności jajników głównym estrogenem krążącym staje się estron. Powstaje on z androgenów nadnerczowych w tkance tłuszczowej, przez co masa tej tkanki decyduje o wysokości stężenia [8]. W ciąży przeważa estriol wytwarzany przez łożysko, słabszy od estradiolu i wiążący się przede wszystkim z receptorem ERβ [7]. Badano go dlatego jako substancję o działaniu przeciwzapalnym, a nie jako zamiennik hormonu jajnikowego [7].
Z tych obserwacji wynika wniosek porządkujący interpretację wyników laboratoryjnych: pytanie o stężenie estrogenów nie ma jednej odpowiedzi. U kobiety trzydziestoletniej, u kobiety sześćdziesięcioletniej i u ciężarnej mierzy się w praktyce trzy różne cząsteczki o trzech różnych źródłach.
1.3. Rys historyczny
Przez pierwsze dekady dwudziestego wieku mówiono o nieokreślonym „hormonie żeńskim”, którego istnienie wywnioskowano z doświadczeń na zwierzętach, a budowy nie znał nikt. Rozstrzygnięcie przyniósł rok 1929, gdy Edward Doisy w Stanach Zjednoczonych i Adolf Butenandt w Niemczech niemal równocześnie oczyścili i skrystalizowali estron, pierwszy wyodrębniony estrogen [2]. Doisy wyizolował następnie estriol i estradiol, przez co nieokreślona aktywność biologiczna rozpadła się na trzy nazwane cząsteczki o ustalonej budowie. Butenandt otrzymał za tę pracę Nagrodę Nobla, Doisy zaś dopiero później, za oczyszczenie witaminy K [2].
Drugie rozstrzygnięcie dotyczyło pochodzenia estrogenów. Wczesne prace szybko doprowadziły do wniosku, że muszą one powstawać z androgenów, a proces ten późniejsi badacze nazwali aromatyzacją [2]. Enzym odpowiedzialny za tę reakcję scharakteryzowano, ustalono mechanizm jego działania, a strukturę przestrzenną poznano po udanej krystalizacji białka oczyszczonego z ludzkiego łożyska [1, 2]. Trzecie rozstrzygnięcie przyniosły modele zwierzęce z wyłączonym genem oraz opisy osób z wrodzonym brakiem enzymu lub receptora, bo dopiero one pokazały, co estrogen robi u mężczyzny [2, 3].
1.4. Synteza i źródła estrogenów
Aromataza działa zawsze na tym samym substracie i zawsze tak samo, jednak miejsce, w którym działa, zmienia sens całego procesu. W jajniku obowiązuje podział pracy między dwoma rodzajami komórek. Komórki tekalne pod wpływem hormonu luteinizującego wytwarzają androstendion. Sąsiadujące z nimi komórki ziarniste pod wpływem hormonu folikulotropowego wytwarzają aromatazę, która ten androgen przekształca w estradiol [5, 9]. Pęcherzyk staje się więc narządem estrogenowym dopiero wtedy, gdy zgromadzi dość aromatazy. Przejście od pęcherzyka sterowanego androgenami do pęcherzyka sterowanego estrogenami jest kluczowym krokiem dojrzewania komórki jajowej [9]. Opis samego narządu zawiera hasło o czynności endokrynnej jajników.
Poza gonadami aromataza pracuje w tkance tłuszczowej, kości, naczyniach, skórze, łożysku i mózgu, a jej ekspresja w każdej z tych tkanek jest sterowana innym promotorem tego samego genu [4, 10]. Ma to następstwo praktyczne, ponieważ czynniki wzrostu, cytokiny i mediatory zapalne podnoszą aktywność enzymu miejscowo, nie zmieniając jego aktywności w jajniku [10]. Estrogen wytworzony w takiej tkance działa zwykle na miejscu, w sposób para- i autokrynny. Jego stężenie w osoczu bywa wtedy złym wskaźnikiem tego, co dzieje się w samej tkance.
Aromatyzacja jest jedynym źródłem estrogenów u mężczyzny i zasługuje na osobne omówienie, ponieważ przez długi czas traktowano ją jako reakcję uboczną. Testosteron wytworzony w jądrze krąży we krwi, a w tkance tłuszczowej, kości i mózgu aromataza przekształca go w estradiol [3, 11]. Powstały estradiol wiąże się z receptorem estrogenowym tak samo jak u kobiety [3]. Skalę tego zjawiska pokazało badanie z randomizacją u czterystu zdrowych mężczyzn. Wszystkim zahamowano własne wytwarzanie hormonów, a części podawano dodatkowo lek hamujący aromatazę [11]. Rozdzielenie obu niedoborów dało wynik nieoczekiwany. Za przyrost zawartości tłuszczu odpowiadał brak estrogenu, za ubytek masy mięśniowej i siły brak androgenu, a za spadek popędu płciowego oba naraz [11]. Redukcję testosteronu do dihydrotestosteronu opisuje osobne hasło o testosteronie.
Trzecim źródłem jest łożysko, które w ciąży wytwarza estrogeny na skalę nieosiągalną dla jajnika, korzystając z prekursorów dostarczanych przez płód [1]. Wspólną regulację po stronie podwzgórza i przysadki opisuje hasło o osi podwzgórze-przysadka-gonady.
1.5. Transport estrogenów
Estrogeny są cząsteczkami słabo rozpuszczalnymi w wodzie i krążą związane z białkami osocza, przede wszystkim z globuliną wiążącą hormony płciowe i z albuminą. Wolna pozostaje niewielka część puli i to ona wchodzi do komórki oraz wiąże się z receptorem. Zmiana stężenia białka nośnikowego zmienia zatem dostępność hormonu bez zmiany jego stężenia całkowitego [12]. Stężenie tej globuliny rośnie pod wpływem samych estrogenów podawanych doustnie, obniża się natomiast przy otyłości i insulinooporności [12]. Wynik całkowity i wynik dostępny biologicznie prowadzą wtedy do przeciwnych wniosków [12].
Droga podania zmienia los hormonu jeszcze przed jego związaniem z nośnikiem. Estrogen podany doustnie przechodzi najpierw przez wątrobę, gdzie pobudza wytwarzanie lipoprotein o bardzo małej gęstości oraz białek osocza [13]. Estradiol podany przezskórnie omija ten efekt i nie podnosi stężenia triglicerydów [13]. Ta sama cząsteczka daje więc inne następstwa zależnie od tego, którędy dotarła do krwi.
2. Mechanizm działania i funkcje estrogenów
2.1. Receptory i punkty uchwytu
Estrogen jest cząsteczką małą i rozpuszczalną w tłuszczach, więc przenika przez błonę komórkową bez udziału transportera. Swoje białka docelowe znajduje wewnątrz komórki. Receptory estrogenowe występują w trzech postaciach o odrębnych genach i odrębnym rozmieszczeniu: ERα, ERβ oraz receptor błonowy sprzężony z białkiem G, oznaczany skrótem GPER [14, 15]. Dwa pierwsze są czynnikami transkrypcyjnymi, natomiast trzeci uruchamia kinazy, nie wiążąc się z materiałem genetycznym [14].
Podział ról między ERα i ERβ nie jest podziałem funkcji, tylko podziałem terytorium. ERα przeważa w macicy, gruczole piersiowym, wątrobie i kości, ERβ zaś w jajniku, naczyniach, jelicie grubym oraz w części struktur mózgu [15]. Proporcja obu zmienia się z wiekiem i po długim okresie niedoboru hormonu [15]. Ten sam ligand trafia więc na różne receptory w różnych tkankach, przez co jedno stężenie estradiolu we krwi wywołuje w każdym narządzie inną odpowiedź.
Powinowactwo receptora do ligandu jest wysokie i stanowi punkt odniesienia dla oceny substancji obcych. Estradiol wiąże się zarówno z ERα, jak i z ERβ jako pojedynczy składnik wiążący o stałej dysocjacji rzędu setnych części nanomola [4]. Syntetyczne związki o działaniu estrogenowym wiążą się co najmniej tysiąc razy słabiej [4]. Fitoestrogeny zajmują miejsce pośrednie: kumestrol, genisteina i apigenina konkurują z estradiolem skuteczniej o receptor ERβ niż o ERα, a genisteina pobudza transkrypcję już przy stężeniach nanomolowych [4]. Stąd bierze się rozróżnienie między ksenoestrogenem, który receptor zajmuje, a fitoestrogenem, który receptor zajmuje i pobudza.
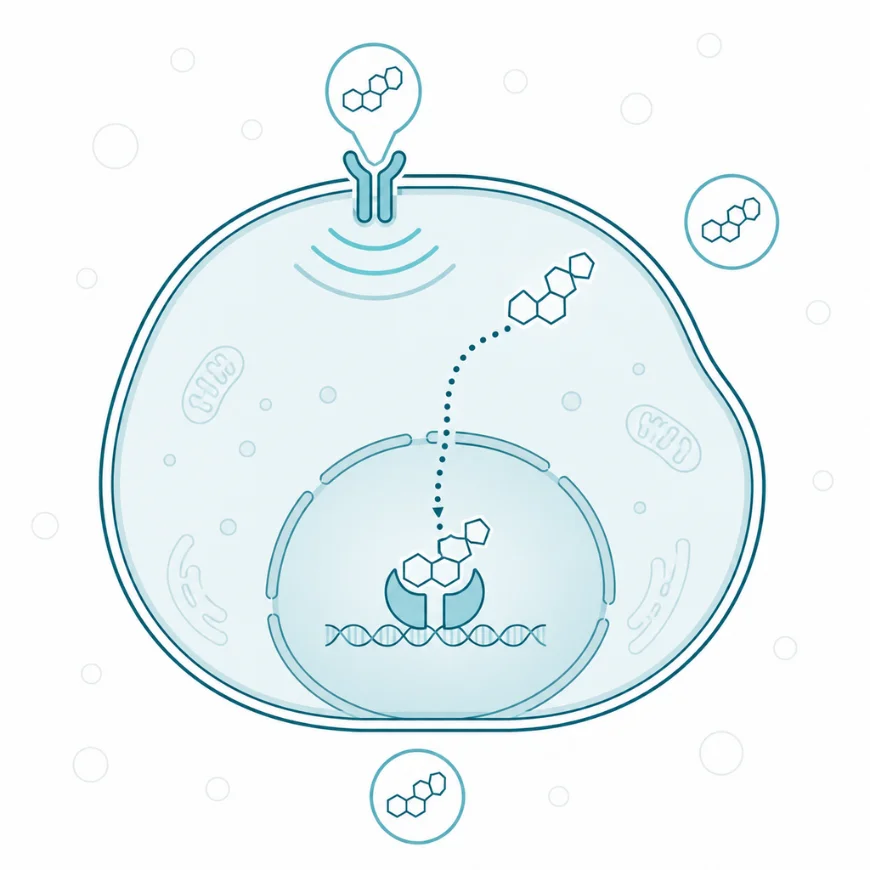
Estrogeny działają dwiema drogami: szybką, przez receptor błonowy, i wolną, przez receptor jądrowy.
2.2. Kaskada sygnałowa
Estrogen uruchamia dwie kaskady o różnej szybkości i różnych następstwach, a ich rozdzielenie tłumaczy większość sprzecznych wyników w piśmiennictwie. Droga wolniejsza zaczyna się od związania hormonu z receptorem jądrowym. Kompleks ulega następnie dimeryzacji i wiąże się z elementami odpowiedzi na estrogen w promotorach genów docelowych, gdzie przy udziale białek pomocniczych zmienia tempo ich odczytu [15]. Efektem jest zmiana ilości białek w komórce, więc odpowiedź pojawia się w ciągu godzin i utrzymuje się długo.
Droga szybsza zaczyna się przy błonie komórkowej. Część receptorów ERα występuje w komórce śródbłonka w skróconej postaci zakotwiczonej w zagłębieniach błonowych. Tworzy tam zespół z kinazą c-Src, kinazą fosfatydyloinozytolu, kinazą Akt i syntazą tlenku azotu [16]. Związanie estradiolu pobudza kolejno te białka. Końcowym krokiem jest fosforylacja syntazy i wytworzenie tlenku azotu, czyli rozkurcz naczynia w ciągu minut, bez udziału jądra komórkowego [16]. Odrębną drogę szybką prowadzi receptor GPER. Jako receptor sprzężony z białkiem G uruchamia on wewnątrzkomórkowe przekaźniki wtórne, a dopiero wtórnie zmienia odczyt genów [14].
Obie drogi zbiegają się w tej samej komórce i wzajemnie na siebie wpływają, ponieważ kinazy uruchomione przy błonie fosforylują receptory jądrowe i zmieniają ich aktywność [15]. Dla obrazu klinicznego oznacza to zależność od stanu samej tkanki. Skutek działania estrogenu zależy nie tylko od jego stężenia, ale też od tego, które z tych dróg są sprawne. Sprawność ta zmienia się z wiekiem i z czasem trwania niedoboru [15].
2.3. Funkcje estrogenów
2.3.1. Układ rozrodczy
Estradiol steruje cyklem jajnikowym i jednocześnie jest jego produktem, co czyni go rzadkim przykładem hormonu regulującego własne wydzielanie w obie strony. W pierwszej fazie cyklu rosnące stężenie estradiolu pobudza podział komórek błony śluzowej macicy i odbudowuje ją po miesiączce, a równocześnie hamuje wydzielanie hormonów przysadkowych [5]. Gdy dojrzewający pęcherzyk osiągnie odpowiednią wielkość, jego wydzielanie przekracza pewien próg. Utrzymanie się powyżej tego progu przez kilkadziesiąt godzin zmienia sprzężenie ujemne w dodatnie [5].
Przełączenie znaku sprzężenia jest zdarzeniem, od którego zależy owulacja. Wysokie stężenie estradiolu działa wtedy na neurony podwzgórza wydzielające kisspeptynę. Neurony te nasilają pulsacyjne wydzielanie gonadoliberyny, co wywołuje gwałtowny wyrzut hormonu luteinizującego i pęknięcie pęcherzyka [5]. Po owulacji ciałko żółte wydziela progesteron, który przekształca rozrośniętą błonę śluzową w nabłonek wydzielniczy zdolny do przyjęcia zarodka [5]. Estrogen buduje więc materiał, a progesteron nadaje mu funkcję, i dopiero oba razem tworzą warunki do zagnieżdżenia.
U mężczyzny estradiol jest potrzebny do prawidłowej spermatogenezy, a jego wrodzony brak albo niewrażliwość receptora daje zaburzenia płodności mimo prawidłowych stężeń testosteronu [3].
2.3.2. Układ kostny
Estrogen jest głównym hamulcem obrotu kostnego u obu płci i działa przez jednoczesne tłumienie resorpcji oraz podtrzymywanie kościotworzenia. Po związaniu z receptorem zwiększa wytwarzanie osteoprotegeryny, białka przechwytującego ligand RANK. Równocześnie obniża wytwarzanie samego liganda, przez co osteoklasty powstają wolniej i krócej żyją [17]. Drugą drogą jest pobudzenie szlaku Wnt oraz białek morfogenetycznych kości, które kierują różnicowanie komórek macierzystych szpiku w stronę osteoblastów, a nie adipocytów [17].
Niedobór estrogenu uruchamia dodatkowo mechanizm odpornościowy, którego długo nie wiązano z kością. Po ustaniu wydzielania jajnikowego limfocyty T nasilają wydzielanie czynnika martwicy nowotworów, limfocyty B wytwarzają ligand RANK, a neutrofile uwalniają utleniacze przyspieszające apoptozę osteoblastów [18]. Przewlekły stan zapalny o niewielkim nasileniu staje się wtedy drugim, niezależnym torem utraty masy kostnej [18].
U mężczyzn rola estrogenu w kości pozostawała nierozpoznana do czasu opisu osób z wrodzonym brakiem aromatazy i z niewrażliwością receptora. Chorzy ci nie zamykali chrząstek wzrostowych, rośli w dorosłości, mieli opóźniony wiek kostny i niedostateczną mineralizację [3, 19]. Podanie estrogenu porządkowało te zaburzenia u osób z brakiem enzymu [3]. Zmiany kostne okresu dojrzewania przypisywano wcześniej androgenom, a okazały się one przynajmniej częściowo estrogenozależne [19].
2.3.3. Układ krążenia
Estrogen działa na naczynie szybciej, niż zdąży zmienić odczyt genów, i na tym opiera się jego wpływ na napięcie ściany. Związanie estradiolu z błonową postacią receptora ERα w komórce śródbłonka uruchamia kaskadę kinaz. Kaskada ta kończy się fosforylacją syntazy tlenku azotu, a powstający gaz rozkurcza mięśniówkę gładką naczynia [16]. Ta sama droga ogranicza przyleganie leukocytów do śródbłonka i sprzyja tworzeniu nowych naczyń [16].
Receptor GPER ma w naczyniu rolę własną, nie zaś pomocniczą wobec receptorów jądrowych. Jego pobudzenie obniża ciśnienie tętnicze, hamuje przerost mięśniówki gładkiej i zmniejsza gromadzenie lipidów w ścianie [14]. Wyniki te opisano w nadciśnieniu tętniczym, w nadciśnieniu płucnym oraz w miażdżycy [14]. Znaczna część tych danych pochodzi z modeli zwierzęcych i z linii komórkowych, a badań u ludzi z użyciem wybiórczych ligandów tego receptora dotąd nie przeprowadzono [14].
Przełożenie mechanizmu naczyniowego na ochronę przed zawałem okazało się zależne od czasu. Korzystne działanie estradiolu obserwowano wtedy, gdy hormon podawano kobietom wkrótce po ustaniu miesiączkowania, a nie po wielu latach niedoboru, co ujęto jako hipotezę okna czasowego [20]. Wyjaśnienie proponowane dla tej rozbieżności odwołuje się do samych receptorów. Długi niedobór hormonu obniża ilość receptora ERα w ścianie naczynia i w tkance nerwowej, przez co bodziec trafia na coraz mniej miejsc wiążących [15].
2.3.4. Ośrodkowy układ nerwowy
Estradiol zmienia budowę synaps, a nie tylko szybkość przekaźnictwa, i wymienia się go wśród najlepiej opisanych modulatorów plastyczności w hipokampie. W modelach zwierzęcych i w hodowlach komórkowych podanie hormonu zwiększa gęstość kolców dendrytycznych oraz liczbę synaps w hipokampie i korze przedczołowej [21]. Efekt ten zależy zarówno od receptorów jądrowych, jak i od kinaz uruchamianych przy błonie [21]. Estradiol wchodzi przy tym w zależności z innymi czynnikami sterującymi plastycznością, takimi jak neurotroficzny czynnik pochodzenia mózgowego i insulinopodobny czynnik wzrostu [21]. Jego działanie sumuje się z ich działaniem, zamiast je powielać [21].
Osobnym zagadnieniem jest pochodzenie hormonu działającego w mózgu, ponieważ neurony przodomózgowia same wytwarzają aromatazę. U myszy z wybiórczo usuniętym genem tego enzymu w neuronach stężenie estradiolu w przodomózgowiu spadło o około trzy czwarte [22]. Pojawiły się wtedy ubytek kolców dendrytycznych, obniżona amplituda długotrwałego wzmocnienia synaptycznego oraz zaburzenia pamięci przestrzennej i rozpoznawczej u obu płci [22]. Podanie estradiolu odwracało te zmiany, a zahamowanie szlaku kinaz ERK znosiło poprawę, co wskazuje na drogę szybką jako pośrednika [22]. Danych o udziale estrogenu wytwarzanego przez neurony u człowieka dotąd nie zebrano.
Działanie ochronne wobec uszkodzenia niedokrwiennego opisano w licznych modelach zwierzęcych, jednak jego przeniesienie na klinikę napotyka tę samą barierę czasową co w naczyniach [15]. Estriol, wiążący się głównie z ERβ, badano osobno jako substancję o działaniu przeciwzapalnym w chorobach demielinizacyjnych, ponieważ przebieg tych chorób łagodnieje w ciąży [7].
2.3.5. Wątroba i tkanka tłuszczowa
Estrogeny sterują tym, gdzie odkłada się tłuszcz i jak wątroba obchodzi się z lipidami, a oba te działania ujawniają się wyraźnie dopiero przy ich braku. W wątrobie ponad tysiąc genów wykazuje odmienną ekspresję zależnie od płci, a wśród szlaków różnicujących przeważają te związane z przemianą kwasów tłuszczowych, triglicerydów i cholesterolu [13]. Estrogen podany doustnie zwiększa wytwarzanie lipoprotein o bardzo małej gęstości. Ten sam hormon podany przezskórnie tego działania nie ma, co wskazuje na pierwszy przepływ przez wątrobę jako miejsce zdarzenia [13].
W tkance tłuszczowej zależność biegnie w drugą stronę, ponieważ tkanka ta jest dla estrogenów zarówno celem, jak i źródłem. Aromataza obecna w adipocytach przekształca androgeny nadnerczowe w estron, przez co im większa masa tkanki tłuszczowej, tym wyższe stężenie estrogenów u kobiety po menopauzie [8]. U mężczyzn zależność ta tłumaczy, dlaczego zahamowanie aromatazy zwiększa zawartość tłuszczu. Estradiol powstający miejscowo ogranicza jego gromadzenie, a jego brak ten hamulec znosi [11]. Powstaje w ten sposób pętla, w której tkanka tłuszczowa wytwarza hormon zmieniający jej własną ilość i rozmieszczenie.
2.4. Regulacja wydzielania i zmienność cykliczna
Wydzielanie estrogenów podlega dwóm nałożonym na siebie regulacjom o różnej skali czasu. Pierwszą jest sprzężenie z podwzgórzem i przysadką, działające w skali godzin i dni. Hormon folikulotropowy pobudza wytwarzanie aromatazy w komórkach ziarnistych, a powstający estradiol hamuje zwrotnie wydzielanie gonadotropin [5, 9]. Po przekroczeniu progu to samo stężenie zaczyna je pobudzać [5]. Istotne jest tu to, że sterowanie odbywa się przez ilość enzymu, nie przez ilość substratu [9].
Drugą regulacją jest miejscowa kontrola ekspresji aromatazy w tkankach pozagonadalnych. Gen CYP19A1 ma kilka promotorów używanych zależnie od tkanki [10]. W jajniku enzym jest sterowany przez gonadotropiny i cykliczny AMP, natomiast w tkance tłuszczowej oraz w guzach sterują nim czynniki wzrostu i mediatory zapalne [10]. Konsekwencją jest niezależność obu układów, bo stan zapalny podnosi wytwarzanie estrogenu miejscowo, nie zmieniając rytmu jajnikowego [10].
Zmienność estrogenów u człowieka ma charakter cykliczny i etapowy, a nie dobowy. W wieku rozrodczym stężenie estradiolu zmienia się w rytmie około miesięcznym, ze szczytem przed owulacją i drugim, niższym, w fazie lutealnej [5]. Po wyczerpaniu puli pęcherzyków rytm ten zanika, stężenie estradiolu spada trwale, a głównym krążącym estrogenem staje się estron pochodzenia pozagonadalnego [8]. Wynika stąd reguła, do której wraca opis badań laboratoryjnych. Wynik oznaczenia estradiolu bez podania fazy cyklu albo stanu menopauzalnego jest liczbą bez odniesienia.

Profil estrogenów w cyklu menstruacyjnym ma dwa szczyty — przedowulacyjny i lutealny. Pojedynczy pomiar bez podania dnia cyklu jest nieinterpretowalny.
2.5. Inaktywacja i wydalanie estrogenów
Organizm nie rozkłada estrogenów od razu do postaci nieczynnych, lecz najpierw je odwracalnie wyłącza. Przyłączenie reszty siarczanowej daje siarczan estronu, cząsteczkę pozbawioną powinowactwa do receptora, która krąży dłużej niż sam hormon i stanowi jego zapas [1]. Sulfataza steroidowa, enzym siateczki śródplazmatycznej obecny między innymi w łożysku, odcina tę resztę i przywraca hormon do postaci czynnej [1]. Tkanka może więc zaopatrywać się w estrogen bez udziału gonad. Ten sam mechanizm obejmuje siarczan dehydroepiandrosteronu, który po odsiarczeniu staje się prekursorem androgenów, a dalej estrogenów [1].
Właściwa inaktywacja odbywa się w wątrobie i polega na sprzęganiu z kwasem glukuronowym oraz z siarczanem [8, 13]. Powstałe połączenia trafiają z żółcią do jelita, gdzie wkracza mikrobiom. Bakterie jelitowe wyposażone w beta-glukuronidazę rozcinają połączenie i uwalniają wolny hormon, umożliwiając jego ponowne wchłonięcie [23]. Zamyka to krążenie jelitowo-wątrobowe estrogenów [23]. Skład tej części mikrobiomu różni się między osobami. W badaniu kliniczno-kontrolnym u kobiet po menopauzie z hormonozależnym rakiem piersi stwierdzono wzbogacenie w bakterie o tej aktywności wobec grupy kontrolnej [23]. Zależność ta pozostaje na etapie obserwacji i nie została potwierdzona w badaniach z interwencją [23].
Reszta hormonu, po utlenieniu i sprzęgnięciu, opuszcza organizm z moczem. Praktyczne następstwo dotyczy oznaczeń, ponieważ w moczu mierzy się głównie metabolity sprzężone, a nie hormon czynny. Wynik odzwierciedla zatem tempo przemiany, nie zaś stężenie działające na receptory.
3. Zaburzenia i modyfikacja
3.1. Przyczyny i następstwa niedoboru estrogenów
Niedobór estrogenów powstaje na trzy różne sposoby i każdy z nich daje nieco inny obraz. Najczęstszą przyczyną jest wyczerpanie puli pęcherzyków jajnikowych, fizjologiczne po pięćdziesiątym roku życia, a przedwczesne wtedy, gdy czynność jajnika ustaje przed czterdziestym [24]. Druga przyczyna to brak enzymu albo receptora uwarunkowany genetycznie, czyli wrodzony niedobór aromatazy oraz niewrażliwość na estrogeny wynikająca z utraty czynności genu ESR1 [3]. Trzecią jest zahamowanie aromatazy przez lek, czyli sytuacja jatrogenna, dobrze nadająca się do badań mechanistycznych [11].
Następstwa układają się w powtarzalny zestaw niezależny od przyczyny. W kości przyspiesza obrót, a przewaga resorpcji nad kościotworzeniem prowadzi do ubytku masy kostnej i wzrostu ryzyka złamań [17, 24]. W naczyniach ustaje ochronne działanie na śródbłonek, a profil lipidowy zmienia się niekorzystnie [24]. W drogach moczowo-płciowych dochodzi do zaniku nabłonka, a w ośrodkowym układzie nerwowym pojawiają się zaburzenia snu, nastroju i ciepłoty ciała [24]. Przedwczesne wygaśnięcie czynności jajników ma wagę odrębną wobec menopauzy o czasie, ponieważ okres niedoboru jest dłuższy o kilkanaście lat, a rozpoznanie bywa stawiane z opóźnieniem [24].
Osobną wartość poznawczą mają przypadki wrodzone u mężczyzn, bo pokazują skutki niedoboru bez towarzyszącego niedoboru androgenów. Chorzy z brakiem aromatazy albo z niewrażliwym receptorem mają prawidłowe lub podwyższone stężenie testosteronu [3, 19]. Mimo to nie zamykają chrząstek wzrostowych, rosną w dorosłości i mają obniżoną gęstość mineralną kości [3, 19]. Warunkiem tych zaburzeń jest więc niedobór estrogenu, nie androgenu.
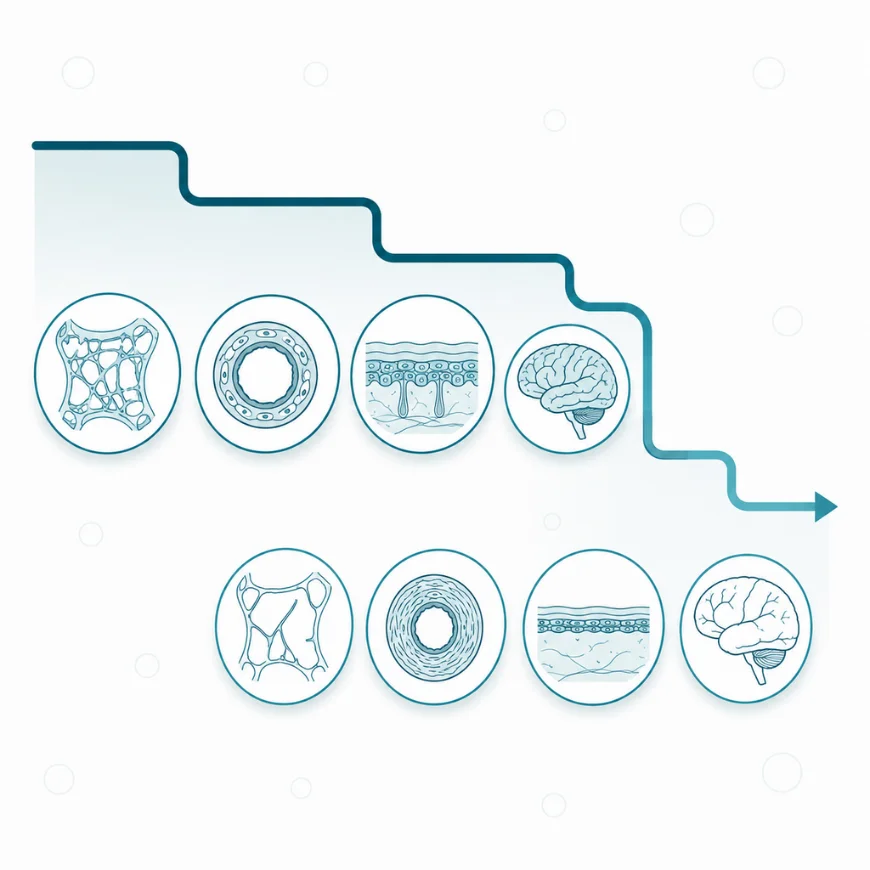
Spadek poziomu estrogenów w menopauzie dotyczy kości, naczyń, skóry i ośrodkowego układu nerwowego jednocześnie. Objawy naczynioruchowe są tylko najbardziej widoczną częścią skutków.
3.2. Przyczyny i następstwa nadmiaru estrogenów
Nadmiar estrogenów rzadko wynika z nadczynności gonady, a znacznie częściej pochodzi z nadmiernej aromatyzacji poza nią. Postacią wrodzoną jest zespół nadmiaru aromatazy, wywołany zmianami genu CYP19A1 zwiększającymi jego ekspresję [3]. U chłopców objawia się ginekomastią, przyspieszonym dojrzewaniem kośćca i niskim wzrostem ostatecznym, którego powodem jest przedwczesne zamknięcie chrząstek wzrostowych [3]. Zespół ten pokazuje, że estrogen działa na kość dwukierunkowo: w stężeniu prawidłowym podtrzymuje mineralizację, a w nadmiarze przedwcześnie kończy wzrost [3].
Postać nabyta wiąże się przede wszystkim z masą tkanki tłuszczowej. Nadmiar tej tkanki zwiększa aromatyzację androgenów nadnerczowych do estronu, a równocześnie obniża stężenie globuliny wiążącej hormony płciowe [8]. Rośnie przez to zarówno pula całkowita, jak i frakcja dostępna [8]. U kobiety po menopauzie taki nadmiar nie jest równoważony przez progesteron, ponieważ ciałko żółte już nie powstaje [8]. To właśnie ta nierównowaga, a nie samo stężenie estrogenu, tłumaczy wzrost ryzyka rozrostu błony śluzowej macicy [8].
Trzecim źródłem nadmiaru jest przemiana miejscowa w samej tkance docelowej. W nabłonku macicy obowiązuje równowaga między enzymami redukującymi estron do estradiolu a enzymami utleniającymi estradiol do estronu. W rozrostach nowotworowych równowaga ta przesuwa się na korzyść postaci silniejszej, przez co komórka ma dostęp do wysokiego stężenia czynnego hormonu mimo prawidłowego stężenia we krwi [25]. Miarą istotną dla tkanki jest więc stężenie miejscowe, a nie wynik oznaczenia w surowicy.
3.3. Rola estrogenów w patogenezie chorób
Estrogeny uczestniczą w mechanizmie chorób na dwa odmienne sposoby, a mieszanie ich prowadzi do sprzecznych wniosków. Pierwszy sposób polega na pobudzaniu podziałów komórek noszących receptor estrogenowy. Hipoteza niezrównoważonego estrogenu ujmuje to w odniesieniu do błony śluzowej macicy: estrogen pobudza jej rozrost, a progesteron ten rozrost powstrzymuje [8]. Gdy progesteronu brakuje z powodu braku owulacji albo z powodu menopauzy, przewlekłe pobudzanie podziałów zwiększa prawdopodobieństwo błędów genetycznych [8]. Ten sam schemat opisuje udział estrogenów w hormonozależnym raku piersi. Dodatkowym czynnikiem jest tam miejscowa aromatyzacja w tkance guza i podścieliska, sterowana czynnikami wzrostu oraz mediatorami odpowiedzi odpornościowej [10].
Do obrazu tego dochodzi przemiana przedreceptorowa, opisana najdokładniej w nowotworach błony śluzowej macicy. W zmianach o niskim stopniu złośliwości, wykazujących obecność receptora ERα, stwierdzono zwiększoną ilość i aktywność dehydrogenazy 17β-hydroksysteroidowej typu pierwszego [25]. Hodowle tkankowe potwierdziły, że enzym ten wytwarza estradiol z estronu i nasila podziały komórek guza [25]. O narażeniu tkanki decyduje więc nie samo stężenie hormonu we krwi, lecz to, ile z krążącej puli zostanie na miejscu przekształcone w postać czynną [25].
Drugi sposób udziału jest odwrotny i polega na tym, że chorobę wywołuje brak hormonu. Osteoporoza pomenopauzalna jest najlepiej udokumentowanym przykładem. Ubytek estrogenu znosi hamowanie osteoklastogenezy przez oś RANK i osteoprotegeryny, a równolegle uruchamia zależny od limfocytów składnik zapalny [17, 18]. Obrót kostny rośnie wskutek tego, a przewagę zyskuje resorpcja [18]. Podobny schemat, choć gorzej udowodniony, odnosi się do naczyń i do tkanki nerwowej. Po długim okresie niedoboru zmniejsza się tam ilość receptora ERα, a zdolność hormonu do działania ochronnego maleje [15].
Rozdzielenie obu mechanizmów wyjaśnia, dlaczego estrogenom przypisuje się jednocześnie rolę czynnika ryzyka i czynnika ochronnego. W tkankach z szybkim obrotem komórkowym, jak błona śluzowa macicy i nabłonek gruczołu piersiowego, przewlekłe pobudzenie receptora zwiększa ryzyko rozrostu [8]. W tkankach o powolnym obrocie, jak kość i ściana naczynia, patologię uruchamia natomiast niedobór hormonu, a nie jego nadmiar [17, 20]. Ta sama cząsteczka jest więc czynnikiem ryzyka w jednym narządzie i czynnikiem ochronnym w innym, a rozstrzyga o tym, co w danej tkance robi jej receptor.
3.4. Modyfikacja behawioralna i dietetyczna
Czynników realnie zmieniających stężenie estrogenów jest niewiele i prawie wszystkie działają przez aromatazę albo przez białko nośnikowe. Najlepiej udokumentowanym jest masa tkanki tłuszczowej, ponieważ to w niej po menopauzie zachodzi większość aromatyzacji androgenów nadnerczowych [8]. Jej nadmiar równocześnie obniża stężenie globuliny wiążącej hormony płciowe i podnosi frakcję dostępną biologicznie [8]. Zmiana masy ciała przesuwa więc obie wielkości naraz i w tym samym kierunku.
Drugim czynnikiem o potwierdzonym działaniu jest spożycie alkoholu. Metaanaliza objęła dane od ponad czterdziestu pięciu tysięcy kobiet przed menopauzą i ponad stu siedemdziesięciu tysięcy po menopauzie [12]. Spożycie alkoholu wiązało się w niej z niewielkim, ale spójnym wzrostem stężenia estradiolu i estronu [12]. Analiza z wykorzystaniem wariantu genu dehydrogenazy alkoholowej wskazała na związek przyczynowy w odniesieniu do testosteronu i globuliny wiążącej hormony płciowe [12]. Skala zmiany jest rzędu kilku procent, przez co jej znaczenie ujawnia się w populacji, a nie u pojedynczej osoby [12].
Trzecim, gorzej poznanym czynnikiem jest skład mikrobiomu jelitowego. Przez aktywność bakteryjnej beta-glukuronidazy decyduje on o tym, jaka część wydzielonych z żółcią estrogenów wraca do krążenia [23]. Dane pochodzą z badań obserwacyjnych i nie wskazują, jaka zmiana składu mikrobiomu miałaby wywołać określony skutek hormonalny [23].
Odrębnego omówienia wymagają fitoestrogeny, ponieważ oczekiwania wobec nich bywają większe niż dowody. W metaanalizie piętnastu badań z randomizacją fitoestrogeny podawane doustnie zmniejszały częstość uderzeń gorąca w porównaniu z placebo [27]. Nie zmieniały natomiast wskaźnika Kuppermana obejmującego szerszy zestaw objawów, a częstość działań niepożądanych była w obu grupach podobna [27]. Wpływ na objaw nie jest przy tym równoznaczny ze zmianą stężenia hormonu. Mechanizm samych uderzeń gorąca prowadzi przez neurony podwzgórza wydzielające kisspeptynę, neurokininę B i dynorfinę [28]. Zniszczenie tych neuronów u szczura znosiło rozszerzenie naczyń skóry i wpływ estradiolu na ciepłotę ciała [28]. Danych o tej drodze u człowieka nie zebrano w postaci umożliwiającej ocenę [28]. Zalecenia dotyczące zmian stylu życia zawiera dział Zaleceń.
3.5. Wsparcie suplementacyjne
Substancje roślinne wiążące receptor estrogenowy tworzą grupę o wspólnym punkcie uchwytu i bardzo zróżnicowanej sile dowodu. Ich zestawienie ma sens tylko wtedy, gdy kolumna mechanizmu opisuje działanie na receptor albo na stężenie hormonu, a nie na objaw. Zestawienie obejmuje substancje mające karty w katalogu platformy, dla których opisano taki punkt uchwytu. Przy każdej podano kierunek działania i siłę dowodów w skali A/B/C.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Genisteina | Izoflawon konkurujący z estradiolem o receptor estrogenowy, z wyraźnie silniejszym powinowactwem do ERβ niż do ERα i pobudzeniem transkrypcji przy stężeniach nanomolowych [4] | ↑ ERβ | C |
| Lukrecja gładka | Liquirytygenina, flawanon korzenia lukrecji, pobudza transkrypcję przez ERβ i nie pobudza jej przez ERα; wyciąg z całego korzenia nie aktywował w układzie reporterowym żadnego z obu receptorów [29, 30] | ↑ ERβ | C |
| Resweratrol | Stilben wiążący receptor estrogenowy i zachowujący się wobec niego jak mieszany agonista i antagonista, zależnie od układu doświadczalnego i stężenia [31] | ~ | C |
| Kozieradka pospolita | Postulowany wpływ na gospodarkę hormonalną; w badaniu z randomizacją u 115 kobiet w okresie okołomenopauzalnym średnie stężenie estradiolu po zakończeniu obserwacji nie różniło się od stężenia w grupie placebo [32] | ~ | B |
| Dzięgiel | Wyciąg zwiększał szesnastokrotnie wzrost komórek linii MCF-7, nie pobudzając transkrypcji ani przez ERα, ani przez ERβ i nie zmieniając masy macicy u myszy, co wskazuje na mechanizm pozareceptorowy [30] | ~ | C |
Z zestawienia wynika wniosek mechanistyczny i ostrzeżenie zarazem. Substancje o najlepiej opisanym punkcie uchwytu, czyli genisteina i liquirytygenina, działają wybiórczo na receptor ERβ, a nie na ERα [4, 29]. Ich działanie z założenia nie odtwarza więc działania estradiolu w macicy ani w gruczole piersiowym [4, 29]. Rozbieżność między liquirytygeniną a całym wyciągiem z lukrecji pokazuje inną rzecz: wynik uzyskany dla wyodrębnionego związku nie przenosi się na preparat złożony [29, 30]. Przypadek dzięgla jest odwrotny, ponieważ pobudzenie wzrostu komórek nowotworowych bez udziału receptora estrogenowego oznacza działanie, którego oznaczenie stężeń hormonów nie wykryje [30]. Dawkowanie, łączenie i przeciwwskazania zawierają karty substancji w dziale Suplementy.
4. Uwagi praktyczne
4.1. Jak to zbadać
Oznaczenie estrogenów wykonuje się najczęściej w surowicy krwi i najczęściej dotyczy estradiolu, bo to on jest postacią czynną u osoby niebędącej w ciąży. Estron oznacza się rzadziej, głównie przy ocenie źródeł hormonu po menopauzie, estriol zaś w położnictwie. Wynik ma sens wyłącznie z podaniem kontekstu. U kobiety miesiączkującej rozstrzyga faza cyklu, ponieważ stężenie estradiolu zmienia się w jego przebiegu wielokrotnie, ze szczytem przed owulacją [5]. U kobiety po menopauzie, u mężczyzny i u dziecka spodziewane wartości są o rząd wielkości niższe, a właśnie w tym zakresie metody oznaczania różnią się najbardziej [34].
Metoda pomiaru bywa źródłem rozbieżności większych niż zmienność biologiczna. Oznaczenia immunochemiczne są wygodne i szeroko dostępne, mają jednak ograniczoną swoistość przy niskich stężeniach, ponieważ przeciwciało wiąże także substancje pokrewne [34]. Chromatografia cieczowa sprzężona ze spektrometrią mas usuwa ten problem i osiąga granicę oznaczalności odpowiadającą kilku pikomolom na litr [33]. Porównanie obu metod wykazało wysoką zgodność przy ujemnym odchyleniu wyników spektrometrycznych wobec immunochemicznych [33]. Towarzystwo endokrynologiczne zwróciło uwagę na ten problem w stanowisku z 2013 roku, a poprawa standaryzacji oznaczeń pozostaje zadaniem otwartym [34].
Interpretacja wymaga zwykle oznaczeń towarzyszących, ponieważ samo stężenie estradiolu rzadko wystarcza. Przy podejrzeniu wygaśnięcia czynności jajników oznacza się równolegle hormon folikulotropowy, którego wzrost poprzedza spadek estradiolu i jest czulszym wskaźnikiem [24]. Przy ocenie dostępności hormonu przydaje się oznaczenie globuliny wiążącej hormony płciowe, której stężenie przesuwa proporcję między pulą całkowitą a frakcją wolną [12]. Ocena wyniku i decyzja o dalszym postępowaniu pozostają w gestii lekarza.
4.2. Na co zwrócić uwagę
Pierwsze nieporozumienie dotyczy przypisania estrogenów jednej płci. Estradiol jest u mężczyzny hormonem czynnym, powstającym z testosteronu w tkance tłuszczowej, kości i mózgu [3]. Jego wrodzony brak daje nadmierny wzrost, niezamknięte chrząstki wzrostowe i osteoporozę mimo prawidłowego stężenia androgenu [3, 19]. Badanie z randomizacją, w którym rozdzielono oba niedobory, potwierdziło to u mężczyzn zdrowych. Brak estrogenu odpowiadał za przyrost tkanki tłuszczowej, a brak androgenu za ubytek masy mięśniowej [11].
Drugie nieporozumienie dotyczy terapii hormonalnej po menopauzie i wymaga rozdzielenia dwóch pytań. Badania Women’s Health Initiative objęły ponad sześćdziesiąt osiem tysięcy kobiet w części eksperymentalnej [26]. Nie potwierdziły, by doustne estrogeny stosowane po menopauzie zapobiegały chorobie sercowo-naczyniowej, otępieniu ani innym chorobom przewlekłym, potwierdziły natomiast ich skuteczność wobec objawów naczynioruchowych [26]. Odrębną kwestią pozostaje czas rozpoczęcia terapii. Korzystne działanie na naczynia obserwowano wtedy, gdy hormon podawano wkrótce po ustaniu miesiączkowania, a nie po latach niedoboru [20, 26]. Hipoteza okna czasowego ma podstawę mechanistyczną w postaci ubytku receptora ERα po długim niedoborze, nie została jednak rozstrzygnięta badaniem zaprojektowanym wprost w tym celu [15, 20].
Trzecie nieporozumienie dotyczy fitoestrogenów traktowanych jako łagodniejszy odpowiednik hormonu. Związki te wiążą receptor estrogenowy tysiąckrotnie słabiej niż estradiol i wybierają receptor ERβ, więc odtwarzają co najwyżej część działania hormonu [4]. Metaanaliza badań z randomizacją wykazała ich wpływ na częstość uderzeń gorąca przy braku wpływu na szerszy wskaźnik objawów, co odpowiada raczej działaniu wybiórczemu niż zastępczemu [27]. Osobnym zastrzeżeniem jest to, że wyciąg roślinny działa niekiedy na komórkę bez udziału receptora estrogenowego. Dzięgiel pobudzał wzrost linii komórkowej raka piersi mimo braku aktywacji obu receptorów [30].
Ograniczenia dowodowe wymagają wskazania wprost. Znaczna część wiedzy o szybkim działaniu estrogenów, o receptorze GPER i o estrogenie wytwarzanym przez neurony pochodzi z modeli zwierzęcych i z hodowli komórkowych, a odpowiadających im danych u ludzi brakuje [14, 22]. Dotyczy to również mechanizmu uderzeń gorąca, opisanego u szczura na poziomie neuronów podwzgórza i nie potwierdzonego u człowieka pomiarem bezpośrednim [28]. Samo oznaczenie stężenia hormonu we krwi nie odzwierciedla wreszcie tego, co dzieje się w tkance. Miejscowa aromatyzacja i przemiana estronu w estradiol zmieniają narażenie tkanki niezależnie od wartości krążącej [10, 25]. Treść hasła ma charakter edukacyjny i nie zastępuje porady lekarskiej.