
1. Profil substancji
1.1. Definicja i klasyfikacja
Hormon wzrostu (ang. growth hormone, GH), nazywany też somatotropiną, to hormon białkowy wydzielany przez komórki somatotropowe przedniego płata przysadki mózgowej. Jego podstawowa postać to pojedynczy łańcuch 191 aminokwasów z dwoma mostkami disiarczkowymi [1]. Masa tej cząsteczki wynosi około 22 kDa, a w osoczu towarzyszy jej mniejsza izoforma 20 kDa [2, 3]. Hormon wzrostu działa przez własny receptor błonowy, który należy do rodziny receptorów cytokin klasy 1, tej samej co receptory prolaktyny i erytropoetyny [4].
W układzie hormonalnym hormon wzrostu zajmuje ogniwo środkowe osi podwzgórze–przysadka–tkanki docelowe. Nad nim stoją dwa peptydy podwzgórza: somatoliberyna, czyli hormon uwalniający hormon wzrostu (ang. growth hormone-releasing hormone, GHRH), oraz somatostatyna, która jego wydzielanie hamuje [5]. Pod nim leżą tkanki, które odpowiadają na hormon bezpośrednio albo przez wytwarzany pod jego wpływem insulinopodobny czynnik wzrostu 1 (ang. insulin-like growth factor 1, IGF-1) [6].
Hormon wzrostu bywa mylony z kilkoma cząsteczkami tej osi, a kryterium różnicującym jest miejsce powstania i rola w pętli regulacyjnej. IGF-1 powstaje głównie w wątrobie w odpowiedzi na hormon wzrostu i przenosi znaczną część jego działania anabolicznego, ale jest odrębnym hormonem z własnym receptorem [6]. GHRH jest sygnałem podwzgórza skierowanym do przysadki, a nie hormonem działającym na tkanki [5]. Grelina to peptyd żołądka, który pobudza wydzielanie hormonu wzrostu przez odrębny receptor [7]. Łożyskowy wariant hormonu wzrostu (GH-V) powstaje w łożysku na podstawie innego genu i w drugiej połowie ciąży zastępuje w krwi matki hormon przysadkowy [8]. Określenie „hormon młodości” nie jest nazwą naukową, tylko hasłem marketingowym klinik oferujących hormon wzrostu jako środek przeciw starzeniu [9].
Pojęcie hormonu wzrostu obejmuje rodzinę cząsteczek przysadkowych, a także postać rekombinowaną, wytwarzaną w bakteriach i identyczną w sekwencji z izoformą 22 kDa [1, 2]. Znaczenie hormonu wzrostu wykracza poza wzrastanie dziecka. U dorosłego steruje on proporcją tkanki tłuszczowej i mięśniowej, gospodarką glukozą i wodą oraz przebudową kości [10, 11]. Jego niedobór i nadmiar są odrębnymi jednostkami klinicznymi, a pomiar wymaga testów czynnościowych, bo pojedyncze oznaczenie mało mówi [12, 13]. Hormon wzrostu jest też lekiem i substancją nadużywaną w sporcie, co stawia pytanie, które jego działania mają oparcie w badaniach u ludzi [12].
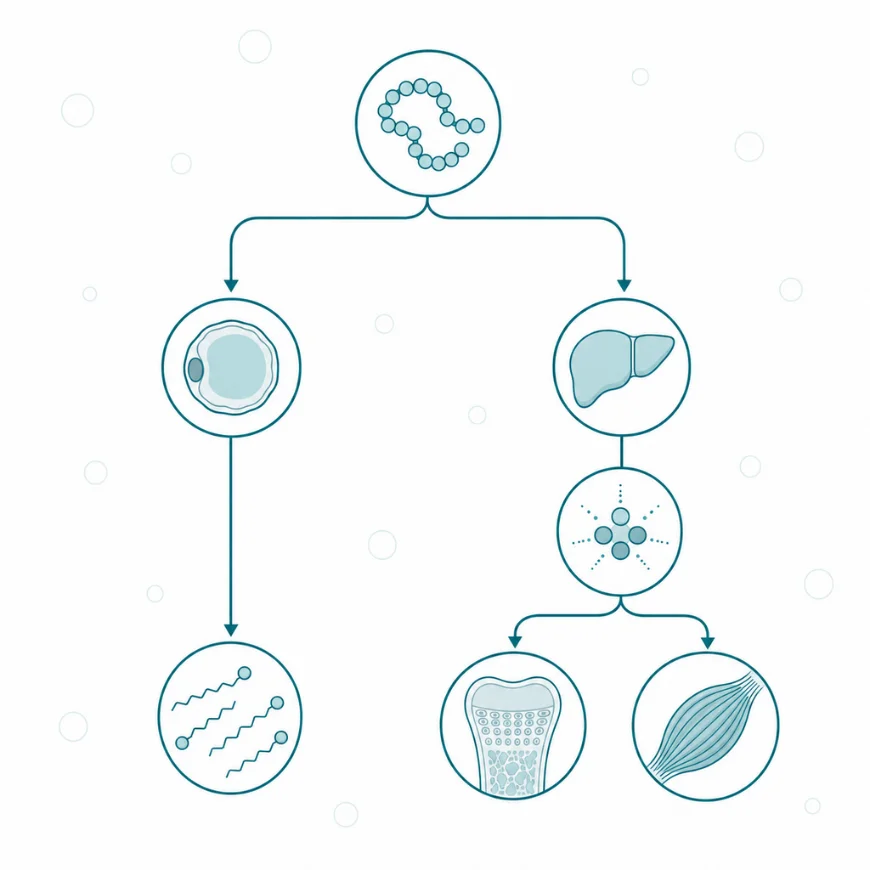
Część działania hormon wywiera bezpośrednio, a część przez wątrobowy hormon IGF-1. Rozdzielenie tych dróg tłumaczy różnice w skutkach tkankowych.
1.2. Budowa hormonu wzrostu
Cząsteczka hormonu wzrostu ma postać wiązki czterech helis, czyli czterech skręconych odcinków łańcucha ułożonych równolegle obok siebie [14]. Na jej powierzchni leżą dwa miejsca wiązania receptora, które nie są do siebie podobne pod względem budowy [14]. W krysztale kompleksu jedna cząsteczka hormonu łączyła się z dwiema cząsteczkami receptora, a układ powierzchni styku wskazywał, że receptory przyłączają się kolejno [14]. Ta asymetria jest warunkiem działania: hormon musi zetknąć ze sobą dwie podjednostki receptora w określonym ułożeniu, żeby uruchomić sygnał [4].
Z budowy wynika też różnorodność krążących postaci. Izoforma 20 kDa powstaje z tego samego genu przez alternatywne składanie informacyjnego RNA, czyli pominięcie fragmentu sekwencji przy obróbce transkryptu [3]. W osoczu krąży ponad sto odmian hormonu wzrostu, w tym jego fragmenty i kompleksy z białkami wiążącymi [2]. Wolny monomer 22 kDa, który zwykle rozumie się jako „hormon wzrostu we krwi”, odpowiadał według tego przeglądu tylko za 21% całej immunoreaktywności osocza [2].
Ta mieszanina ma dwa następstwa praktyczne. Testy immunologiczne różnych producentów rozpoznają różne odmiany, więc wyników z dwóch laboratoriów nie da się porównywać wprost [3]. Hormon rekombinowany zawiera natomiast wyłącznie izoformę 22 kDa, a przewaga tej jednej postaci we krwi sportowca jest podstawą tak zwanej metody izoform w wykrywaniu dopingu [12].
1.3. Rys historyczny
Związek przysadki ze wzrostem ustalano przez kilkadziesiąt lat, a źródło hormonu leczniczego zmieniało się dwukrotnie. W 1887 roku zauważono, że u większości chorych na akromegalię w przysadce rośnie guz, lecz jeszcze na początku dwudziestego wieku związek zaburzeń wzrostu z przysadką kwestionowano [15]. W 1922 roku wstrzyknięcie wyciągu z przysadki wywołało u zwierząt nadmierny wzrost, a wkrótce potem usunięcie gruczołu dało zahamowanie wzrostu [15]. Próby leczenia ludzi hormonem zwierzęcym długo zawodziły, bo nie dostrzegano swoistości gatunkowej hormonu wzrostu [15]. Dopiero po wyjaśnieniu tej kwestii w 1957 roku hormon pozyskiwany z przysadek ludzkich okazał się skuteczny [15]. Strukturę hormonu ludzkiego ustalono w 1971 roku [15].
Hormon z przysadek zwłok miał jednak wadę, której nie przewidziano. W 1985 roku okazało się, że może on przenosić chorobę Creutzfeldta-Jakoba, czyli śmiertelną chorobę prionową mózgu [15]. W tym czasie dostępny był już hormon rekombinowany, bo w 1979 roku zespół Goeddela uzyskał ekspresję ludzkiego hormonu wzrostu w bakterii Escherichia coli [15, 16]. Późniejsza analiza 24 francuskich partii hormonu z lat 1974–1988 wykryła w 17 z nich także zanieczyszczenie amyloidem β [17]. Wymiana źródła hormonu zamknęła więc drogę zakażeń, której do 1985 roku nie rozpoznano.
1.4. Synteza i źródła
Człowiek ma dwa geny hormonu wzrostu [8]. Gen GH1, oznaczany też GH-N, ulega ekspresji w komórkach somatotropowych przedniego płata przysadki [3, 8]. Gen GH2 koduje wariant łożyskowy GH-V, wytwarzany przez syncytiotrofoblast i komórki trofoblastu pozakosmówkowego [8]. W połowie ciąży i później GH-V zastępuje hormon przysadkowy jako główna krążąca postać hormonu wzrostu u matki [8]. Wariant łożyskowy powiązano ze wzrostem płodu, ale jego rola w powikłaniach ciąży pozostaje słabo poznana, bo brakuje łatwo dostępnych i wiarygodnych testów [8].
W komórce somatotropowej transkrypt genu GH1 jest obrabiany na dwa sposoby, z których jeden daje izoformę 22 kDa, a drugi izoformę 20 kDa [3]. Po syntezie część cząsteczek 22 kDa ulega jeszcze acetylacji na końcu aminowym, deamidacji lub łączeniu w oligomery [3]. Gotowy hormon komórka uwalnia do krwi pulsacyjnie, a moment i wielkość wyrzutu zależą od sygnałów podwzgórza i składu krwi [5]. Tempo syntezy ustala więc przysadka, lecz o jej wykorzystaniu decyduje regulacja wydzielania.
Drugim źródłem hormonu wzrostu jest produkcja przemysłowa. Niewielki rozmiar cząsteczki i tylko dwa mostki disiarczkowe sprawiają, że hormon daje się wytwarzać w bakteriach Escherichia coli [1]. Otrzymany w ten sposób hormon ma sekwencję postaci 22 kDa i pobudza podziały komórek w teście biologicznym [1]. Hormon rekombinowany odtwarza zatem jedną izoformę spośród mieszaniny, którą wydziela przysadka.
1.5. Transport i frakcja aktywna
Hormon wzrostu krąży we krwi częściowo w postaci wolnej, a częściowo związanej z białkiem wiążącym hormon wzrostu (ang. growth hormone-binding protein, GHBP). U człowieka GHBP powstaje przez odcięcie zewnątrzkomórkowej części receptora hormonu wzrostu od błony komórkowej [18]. Cięcie wykonuje metaloproteaza nazywana enzymem przekształcającym czynnik martwicy nowotworów alfa (ang. TNF-α converting enzyme, TACE) [18]. Białko wiążące jest więc odciętym fragmentem tego samego receptora, na który hormon działa w tkankach.
W warunkach podstawowych GHBP wiąże około połowy krążącego hormonu wzrostu, ale przy wysokim stężeniu hormonu szybko się wysyca [18]. Hormon związany tworzy we krwi rezerwę, z której uzupełniana jest pula wolna, a samo wiązanie wydłuża okres półtrwania hormonu [18]. GHBP konkuruje ponadto z receptorami tkankowymi o hormon i prawdopodobnie tworzy z receptorem nieaktywne pary [18]. Część tych skutków wzmacnia, a część osłabia działanie hormonu, więc ich wypadkowa u człowieka pozostaje trudna do oszacowania [18].
Stężenie GHBP zmienia się zwykle równolegle z liczbą receptorów, zwłaszcza w wątrobie [18]. Niskie wartości towarzyszą stanom oporności na hormon wzrostu, takim jak niedożywienie, niewyrównana cukrzyca, niewydolność nerek i niedoczynność tarczycy [18]. W zespole Larona, czyli wrodzonym defekcie receptora, GHBP jest niskie lub niewykrywalne u 75–80% chorych [18]. Pomiar białka wiążącego mówi więc więcej o wrażliwości tkanek niż o samym stężeniu hormonu.
2. Mechanizm działania i funkcje
2.1. Receptory hormonu wzrostu
Receptor hormonu wzrostu (ang. growth hormone receptor, GHR) jest białkiem błonowym, które przekazuje sygnał przez związaną z nim kinazę JAK2 [19]. Kiedyś sądzono, że występuje tylko w wątrobie, mięśniach i tkance tłuszczowej, a obecnie wiadomo, że jest rozmieszczony w niemal wszystkich tkankach [19]. Szerokie rozmieszczenie tłumaczy, dlaczego hormon wpływa na przemianę materii, wzrost, czynność nerek, serca, jelit i układu odpornościowego [19].
Starszy model zakładał, że hormon łączy dwa luźne receptory w parę [19]. Według modelu opisanego przez Brooksa i Watersa receptor istnieje w błonie jako gotowy dimer, czyli para cząsteczek połączona jeszcze przed związaniem hormonu [4]. Hormon nie tworzy więc pary, tylko zmienia ułożenie jej członów. Dwa niepodobne miejsca wiązania na cząsteczce hormonu obracają podjednostki względem siebie i zbliżają je tuż nad błoną [4, 19]. Ten obrót przenosi się przez błonę na część wewnątrzkomórkową i uruchamia sygnał.
Hormon wzrostu wiąże też GHBP, czyli zewnątrzkomórkowy fragment tego samego receptora krążący we krwi [18]. Receptor jest ponadto punktem uchwytu pegwisomantu, antagonisty stosowanego w akromegalii [20]. Liczba i sprawność receptorów wyznaczają zatem, jak silnie tkanka odpowie na hormon przy danym stężeniu we krwi.
2.2. Kaskada sygnałowa
Po stronie cytoplazmatycznej do każdej podjednostki receptora przyczepiona jest kinaza tyrozynowa JAK2, czyli enzym przenoszący reszty fosforanowe na tyrozynę w białkach [4]. W stanie spoczynku kinazy obu podjednostek są ułożone tak, że domena hamująca jednej zasłania domenę katalityczną drugiej [19]. Związanie hormonu obraca podjednostki i rozsuwa dolne końce odcinków przezbłonowych [19]. Domeny hamujące odsuwają się, a domeny katalityczne dwóch kinaz JAK2 znajdują się naprzeciw siebie [4, 19].
Kinazy fosforylują się wtedy nawzajem, a następnie przenoszą fosforan na reszty tyrozyny w ogonie receptora [4]. Ufosforylowane tyrozyny stają się miejscami przyłączenia białek przekaźnikowych. Najważniejsze z nich to czynniki transkrypcyjne STAT, czyli białka przekazujące sygnał i aktywujące transkrypcję (ang. signal transducers and activators of transcription) [21]. Hormon wzrostu aktywuje przez JAK2 białka STAT1, STAT3 i STAT5, a STAT5 odpowiada za większość jego działań na geny [19, 21]. Ufosforylowany STAT5 tworzy dimer, przechodzi do jądra i włącza geny docelowe, wśród nich w wątrobie gen IGF-1 [6, 19].
Receptor uruchamia też drogi niezależne od STAT, które przenoszą sygnały podziału komórki i przemian energetycznych. Przez białko adaptorowe SHC pobudza szlak kinaz aktywowanych mitogenami (MAPK) [22]. Przez substraty receptora insuliny (IRS) uruchamia kinazę fosfatydyloinozytolu 3 (PI3K), a za nią kinazę Akt [22]. Kinazy tyrozynowe z rodziny Src przyłączają się do receptora bez udziału JAK2 i przewodzą niewielką grupę sygnałów [19, 21]. Te same szlaki wykorzystuje receptor insuliny, dlatego oba hormony wpływają nawzajem na swoje działanie wewnątrz komórki [22].
Sygnał wygasa między innymi dzięki białkom supresorowym sygnalizacji cytokin (ang. suppressors of cytokine signaling, SOCS), które hamują szlak JAK2–STAT [21, 22]. Znaczenie STAT5 potwierdza obserwacja kliniczna: homozygotyczna mutacja genu białka STAT5b u nastoletniej pacjentki wywołała oporność na hormon wzrostu [23]. Konsekwencja jest taka, że o odpowiedzi tkanki decydują stan kinazy JAK2 i białek SOCS, a nie wyłącznie ilość hormonu we krwi.
2.3. Funkcje
2.3.1. Chrząstka wzrostowa i kość
Wzrost kości na długość zachodzi w płytkach wzrostowych, czyli pasmach chrząstki między trzonem a nasadą kości długiej. Pierwotna hipoteza somatomedynowa zakładała, że hormon wzrostu działa na nie wyłącznie pośrednio, przez IGF-1 z wątroby [6]. Hipotezę zmodyfikowano, gdy okazało się, że IGF-1 wytwarzają niemal wszystkie tkanki [6]. U myszy z wyłączonym genem IGF-1 w wątrobie wzrost po urodzeniu był prawidłowy, choć krążący IGF-1 spadł wyraźnie [6]. Wynik pochodzi z modelu zwierzęcego, a według autorów przeglądu udział IGF-1 wytwarzanego miejscowo pozostaje nieustalony [6].
Hormon wzrostu może działać na komórki kości bezpośrednio, lecz większość jego wpływu na szkielet przenosi IGF-1, zarówno krążący, jak i wytwarzany w samej kości [11]. IGF-1 nasila czynność osteoblastów, czyli komórek budujących kość, i tworzenie nowej tkanki kostnej [11]. Po zakończeniu wzrastania hormon wzrostu i IGF-1 pozostają regulatorami obrotu kostnego, czyli ciągłej wymiany starej tkanki kostnej na nową [11]. Oś ta decyduje także o masie kostnej osiąganej w młodości [11]. Wzrost liniowy dziecka zależy więc od hormonu wzrostu i IGF-1 łącznie, z przewagą działania przenoszonego przez IGF-1.
2.3.2. Tkanka tłuszczowa
Tkanka tłuszczowa jest miejscem, w którym działanie hormonu wzrostu na przemianę materii jest najsilniejsze. W przeglądzie badań u ludzi najwyraźniejszym metabolicznym skutkiem hormonu wzrostu był wyraźny wzrost lipolizy i stężenia wolnych kwasów tłuszczowych we krwi [10]. Lipoliza to rozkład trójglicerydów zmagazynowanych w adipocytach na glicerol i kwasy tłuszczowe, które mogą posłużyć innym tkankom jako paliwo.
Znaczenie tej funkcji zależy od stanu odżywienia. W głodzeniu i stresie hormon wzrostu kieruje organizm na spalanie tłuszczu, dzięki czemu oszczędza glukozę i białka mięśni [10]. Przegląd opisuje go dlatego jako główny hormon anaboliczny okresów głodu, podczas gdy insulina dominuje po posiłku [10]. Po posiłku hormon wzrostu pobudza raczej magazynowanie, także przez IGF-1 i insulinę [10].
Uwolnione kwasy tłuszczowe są ogniwem łączącym działanie na tłuszcz z działaniem na glukozę i białka. Tkanki, które spalają kwasy tłuszczowe, zużywają mniej glukozy i mniej aminokwasów [10]. Lipoliza jest więc nie tylko skutkiem hormonu wzrostu, lecz także pośrednikiem jego pozostałych działań metabolicznych.
2.3.3. Wątroba
Wątroba jest dla hormonu wzrostu zarówno głównym źródłem IGF-1, jak i narządem, w którym hormon przeciwdziała insulinie. Synteza IGF-1 pod wpływem hormonu wzrostu zachodzi głównie w hepatocytach, przez szlak JAK2–STAT5 [6, 19]. Budowę i białka wiążące samego IGF-1 opisuje odrębne hasło.
Drugą rolę hormon pełni jako hormon przeciwstawny insulinie. Hormon wzrostu osłabia działanie insuliny w wątrobie i w tkankach obwodowych, a pośredniczy w tym zwiększony napływ wolnych kwasów tłuszczowych [10]. Przy dużym napływie kwasów tłuszczowych insulina słabiej hamuje wytwarzanie glukozy w wątrobie, więc stężenie glukozy we krwi rośnie. Ta zdolność do wywoływania oporności na insulinę chroni przed hipoglikemią w głodzeniu [10]. Ten sam mechanizm tłumaczy tak zwaną cukrzycę stresową w głodzeniu i ciężkiej chorobie [10].
Kierunek działania na glukozę jest więc przeciwny kierunkowi działania na wzrost. Hormon wzrostu buduje tkanki, ale jednocześnie podnosi stężenie glukozy we krwi. U chorych na akromegalię oporność na insulinę utrzymuje się mimo większej masy mięśni i mniejszej masy tłuszczu, a ustępuje po skutecznym leczeniu [10]. U dorosłych z niedoborem hormonu wzrostu oporność na insulinę przejściowo nasila się na początku leczenia substytucyjnego [10].
2.3.4. Mięsień szkieletowy
Mięsień szkieletowy jest największym magazynem białka w organizmie i głównym celem działania anabolicznego hormonu wzrostu. W warunkach podstawowych hormon wzrostu umiarkowanie zwiększa syntezę białek i zmniejsza ich rozpad, zarówno w całym ciele, jak i w samym mięśniu [10]. Jednocześnie ogranicza rozkład aminokwasów i wytwarzanie mocznika w wątrobie, co oznacza mniejszą utratę azotu [10].
Działanie to nasila się w głodzeniu i stresie. Brak hormonu wzrostu w czasie głodzenia zwiększał utratę białka i wytwarzanie mocznika o około 50%, podobnie jak rozpad białek mięśniowych [10]. Hormon wzrostu działa tu pośrednio: dostarczone kwasy tłuszczowe stają się paliwem, więc aminokwasy nie muszą być spalane [10].
Przyrost masy beztłuszczowej po podaniu hormonu wzrostu tylko częściowo jest przyrostem białka. W badaniu z randomizacją u 96 sportowców rekreacyjnych hormon wzrostu zwiększył masę beztłuszczową przez zwiększenie ilości wody pozakomórkowej [24]. Pomiar masy beztłuszczowej obejmuje także wodę, więc jej wzrost nie jest równoznaczny z przyrostem białka kurczliwego mięśni.
2.3.5. Nerki i gospodarka wodna
Nerki należą do narządów, w których receptor hormonu wzrostu jest obecny, a hormon wzrostu i IGF-1 wpływają w nich na rozwój nerki, przesączanie kłębuszkowe i transport jonów w kanalikach [19, 25]. Hormon wzrostu i IGF-1 regulują kanalikowe wchłanianie zwrotne sodu, wapnia, fosforanów i glukozy [25]. Zatrzymanie sodu pociąga za sobą zatrzymanie wody, bo woda podąża w nerce za przesuniętymi jonami.
Skutki tej funkcji są najlepiej widoczne w stanach skrajnych. W akromegalii nadmiar hormonu wzrostu prowadzi do zatrzymania płynów w organizmie i do zmian w gospodarce wapniowo-fosforanowej [25]. W niedoborze hormonu wzrostu zmiany w gospodarce sodem, wapniem i fosforanami przebiegają w kierunku odwrotnym [25]. Kierunek zmian w obu stanach wskazuje, że hormon wzrostu w warunkach prawidłowych podtrzymuje wchłanianie zwrotne sodu i objętość płynu pozakomórkowego. Działanie nerkowe tłumaczy też część zmian masy ciała, które przypisuje się działaniu anabolicznemu hormonu.
2.4. Regulacja wydzielania i zmienność dobowa
Wydzielanie hormonu wzrostu ma charakter pulsacyjny, czyli przebiega w postaci krótkich wyrzutów rozdzielonych okresami niskiego stężenia [5]. Tempo i wielkość wyrzutów ustala równowaga między dwoma sygnałami podwzgórza. GHRH pobudza syntezę i wydzielanie hormonu, a somatostatyna je hamuje [5, 26]. Wyrzut pojawia się wtedy, gdy przewaga przesuwa się na stronę GHRH.
Trzecim regulatorem jest grelina, peptyd złożony z 28 aminokwasów, zidentyfikowany w 1999 roku w żołądku szczura [7]. Grelina działa tylko wtedy, gdy na serynie w pozycji trzeciej niesie resztę kwasu oktanowego [7]. Acylowana grelina wiąże się z receptorem sprzężonym z białkami G, co podnosi stężenie wapnia w komórce somatotropowej i uwalnia hormon wzrostu [26]. Grelina działa też w podwzgórzu, gdzie hamuje wydzielanie somatostatyny i wzmacnia działanie GHRH [26]. Pętlę zamyka IGF-1, który hamuje wydzielanie hormonu wzrostu na zasadzie ujemnego sprzężenia zwrotnego [26].
Wydzielanie hormonu wzrostu jest ściśle powiązane ze snem. W badaniu z 1968 roku u młodych dorosłych główny nocny szczyt hormonu pojawiał się wraz z początkiem snu głębokiego i trwał 1,5–3,5 godziny [27]. Opóźnienie zaśnięcia przesuwało szczyt, a ponowne zaśnięcie po wybudzeniu wywoływało kolejny wyrzut [27]. Wyrzut zależy więc od samego snu, a nie od pory zegarowej. W zbiorczej analizie 149 zdrowych mężczyzn ilość wydzielanego hormonu wzrostu wiązała się z ilością snu wolnofalowego niezależnie od wieku [28].
Wydzielanie reaguje też na stężenie glukozy we krwi. Hipoglikemia wywołana insuliną jest bodźcem tak silnym, że służy jako wzorcowy test pobudzenia przysadki [29]. Wzrost stężenia glukozy działa odwrotnie i u osób zdrowych hamuje wydzielanie hormonu wzrostu [30].
Wydzielanie hormonu wzrostu zmienia się też w ciągu życia. W badaniu 21 zdrowych mężczyzn w wieku 21–71 lat każda kolejna dekada życia zmniejszała dobowe wytwarzanie hormonu średnio o 14% [31]. Spadek wynikał z rzadszych wyrzutów, a nie z mniejszej ilości hormonu w jednym wyrzucie [31]. Ten związany z wiekiem spadek nazywa się somatopauzą [9]. Stężenie greliny w żołądku maleje z wiekiem równolegle ze spadkiem hormonu wzrostu [26].
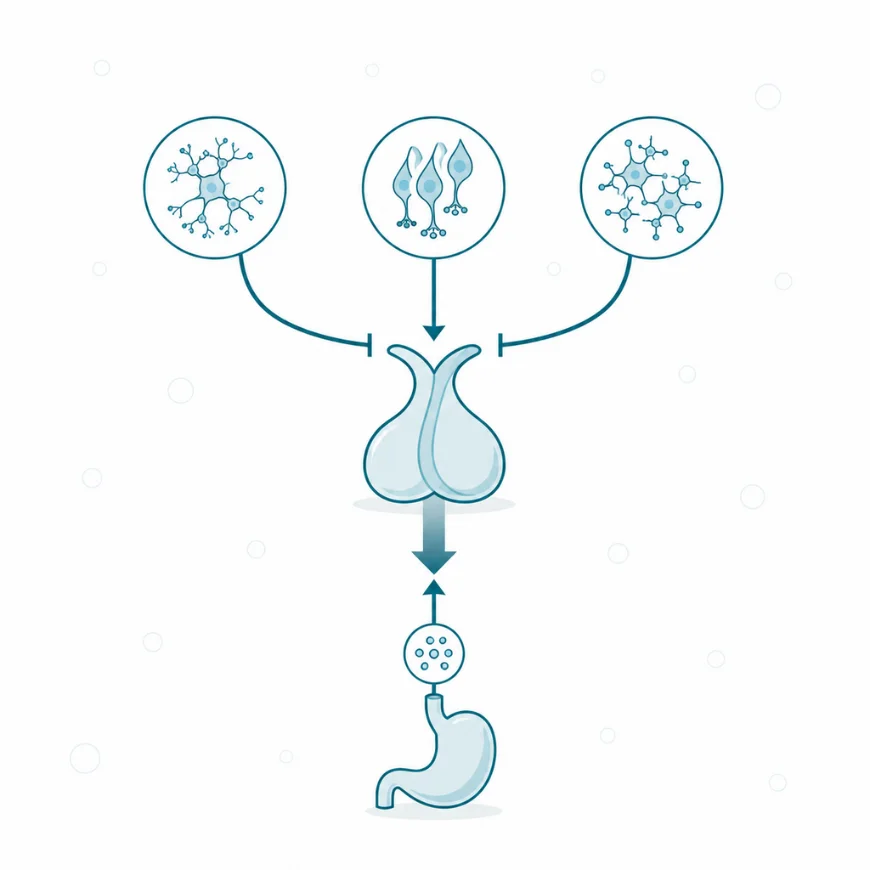
Kontrola hormonu wzrostu opiera się na złożonym mechanizmie: na układ wpływają dwa hamulce, jeden bodziec z podwzgórza oraz sygnał z żołądka. Ostateczna wypadkowa tych bodźców wyznacza wysokość i rytm pulsacyjnego wydzielania.
2.5. Inaktywacja i wydalanie hormonu wzrostu
Hormon wzrostu jest usuwany z krwi szybko, a tempo usuwania wpływa na jego stężenie tak samo jak tempo wydzielania. W badaniu z analizą dekonwolucyjną, czyli matematycznym rozdzieleniem wydzielania i usuwania z profilu stężeń, okres półtrwania hormonu u mężczyzn o prawidłowej masie ciała wynosił 15,5 minuty [32]. U mężczyzn z otyłością był krótszy i wynosił 11,7 minuty [32]. Przyspieszenie usuwania nie wynikało z mniejszej ilości białka wiążącego, bo odsetek hormonu związanego z GHBP był w obu grupach podobny [32].
Wiązanie z GHBP spowalnia usuwanie hormonu z krwi [18]. Nerki są ważną drogą eliminacji hormonu wzrostu, a w przewlekłej niewydolności nerek utrata zdolności do jego wydalania zmienia kinetykę krążącego hormonu [33]. Okres półtrwania skraca się też z wiekiem, średnio o 6% na każdą dekadę życia [31].
Krótki okres półtrwania ma konsekwencję diagnostyczną. Pulsacyjne wydzielanie i szybkie usuwanie sprawiają, że stężenie hormonu wzrostu szybko rośnie i równie szybko opada [12]. Z tego powodu stężenie zmierzone w jednej próbce odzwierciedla tylko chwilę, w której ją pobrano, a nie wydzielanie całodobowe.
3. Zaburzenia i modyfikacja
3.1. Niedobór – przyczyny i następstwa
Niedobór hormonu wzrostu może być wrodzony albo nabyty i może dotyczyć samego hormonu wzrostu albo kilku hormonów przysadki [34]. Izolowany niedobór hormonu wzrostu jest najczęstszym niedoborem hormonu przysadki, a u większości chorych jego przyczyny nie udaje się ustalić [34]. Wśród znanych przyczyn genetycznych są mutacje genu GH1, genu receptora GHRH i czynnika transkrypcyjnego SOX3 [34]. U nosicieli mutacji GH1 mogą z czasem dołączyć niedobory innych hormonów przysadki [34]. U dorosłych niedobór może utrzymywać się od dzieciństwa albo pojawić się po raz pierwszy w wieku dorosłym [13].
Następstwa zależą od wieku, w którym niedobór się ujawnia. U dziecka głównym objawem jest zaburzenie wzrastania, a wytyczne pediatryczne dotyczą właśnie dzieci z zaburzeniem wzrastania [35]. U dorosłego niedobór zmienia skład ciała i obniża wydolność fizyczną oraz jakość życia [13]. W kości daje osteoporozę o niskim obrocie z podwyższonym ryzykiem złamań kręgów i innych kości [11]. Dorośli z niedoborem hormonu wzrostu mają też oporność na insulinę, wiązaną z większą masą tkanki tłuszczowej i mniejszą masą mięśni [10].
Osobną grupę tworzą stany, w których hormonu jest dość, ale tkanki na niego nie odpowiadają. Zespół Larona, czyli niewrażliwość na hormon wzrostu, może wynikać z mutacji genu jego receptora [4]. Chorych leczy się rekombinowanym IGF-1, który nie zastępuje jednak w pełni bezpośrednich działań hormonu wzrostu [4]. Podobną oporność wywołuje rzadka mutacja białka STAT5b [23]. Niskie stężenie hormonu wzrostu i niedostateczne działanie hormonu wzrostu nie są więc tym samym.
3.2. Nadmiar – przyczyny i następstwa
Przewlekły nadmiar hormonu wzrostu u dorosłego prowadzi do akromegalii, a jego najczęstszą przyczyną jest gruczolak przysadki wydzielający ten hormon [36]. Choroba jest rzadka. W przeglądzie badań populacyjnych chorobowość wynosiła 2,8–13,7 przypadku na 100 tysięcy osób, a zapadalność 0,2–1,1 przypadku na 100 tysięcy osób rocznie [37]. Mediana wieku przy rozpoznaniu przypada na piątą dekadę życia, a mediana opóźnienia rozpoznania wynosi 4,5–5 lat [37]. Z powodu tego opóźnienia większość guzów w chwili rozpoznania to makrogruczolaki, czyli duże gruczolaki [37].
Gdy nadmiar hormonu zaczyna się w dzieciństwie, przed zamknięciem płytek wzrostowych, kości rosną nadmiernie na długość i powstaje gigantyzm [4]. U dorosłego płytki są już zamknięte, dlatego rosną głównie kości dłoni, stóp i twarzy oraz tkanki miękkie. Powiększenie dłoni i stóp oraz zgrubienie rysów twarzy są najczęściej opisywanymi objawami akromegalii [37]. Obraz kliniczny obejmuje ponadto zmiany ogólnoustrojowe, które zwiększają śmiertelność [36].
Mechanizmy tych zmian wynikają z opisanych wcześniej funkcji hormonu. Oporność na insulinę utrzymuje się w akromegalii mimo większej masy mięśni i mniejszej masy tłuszczu [10]. Nerki zatrzymują sód i wodę [25]. Kość ma zwiększony obrót, co może prowadzić do utraty masy kostnej i złamań kręgów, zwłaszcza przy współistniejącym niedoborze hormonów płciowych [11]. Optymalne leczenie może obniżyć śmiertelność chorych do poziomu populacji ogólnej [36].
Nadmiar hormonu wzrostu może też pochodzić z zewnątrz. U zdrowych starszych osób przyjmujących hormon wzrostu częściej występowały obrzęki, bóle stawów, zespół cieśni nadgarstka i ginekomastia, a nieco częściej także cukrzyca i nieprawidłowa glikemia na czczo [38]. U młodych sportowców najczęstsze były obrzęki tkanek miękkich i zmęczenie [39].
3.3. Rola hormonu wzrostu w patogenezie chorób
Hormon wzrostu bywa ogniwem chorób także wtedy, gdy przysadka jest zdrowa, a zmienia się jego działanie lub otoczenie metaboliczne. Najlepiej opisanym przykładem jest oporność na insulinę w stanach stresu. Hormon wzrostu przeciwdziała insulinie przez nasilenie napływu wolnych kwasów tłuszczowych, a w głodzeniu i ostrej chorobie zapalnej sprzyja przez to cukrzycy stresowej [10]. Autorzy przeglądu postulują, że ten sam mechanizm odpowiada za tak zwane zjawisko brzasku, czyli poranny wzrost zapotrzebowania na insulinę u chorych na cukrzycę [10].
Drugim przykładem jest otyłość, w której wydzielanie hormonu wzrostu jest wyraźnie zmniejszone. U mężczyzn z otyłością liczba wyrzutów hormonu wynosiła 3,2 na dobę wobec 9,7 u osób z prawidłową masą ciała, a dobowe wytwarzanie spadało do jednej czwartej [32]. Stopień upośledzenia wydzielania był proporcjonalny do stopnia otyłości [32]. Niskie wydzielanie hormonu wzrostu jest więc w otyłości następstwem nadmiaru tkanki tłuszczowej. Hipoteza zakłada, że słabsza lipoliza przy niskim hormonie wzrostu sprzyja z kolei utrzymaniu tej tkanki.
Trzecim przykładem jest przewlekła niewydolność nerek u dzieci, która upośledza wzrastanie. Hormon wzrostu krąży wtedy w wysokim stężeniu, ale IGF-1 i wzrastanie są obniżone, co wskazuje na oporność tkanek na hormon [33]. Obniżone stężenie GHBP sugeruje, że oporność wynika z mniejszej liczby receptorów [33]. Oporność tę udaje się pokonać wyższymi niż fizjologiczne ilościami hormonu podawanego z zewnątrz [33].
Czwartym obszarem są nowotwory. Według przeglądu Brooksa i Watersa autokrynna aktywacja receptora hormonu wzrostu, czyli pobudzenie komórki przez hormon wytwarzany przez nią samą, może prowadzić do transformacji nowotworowej [4]. Rola osi hormon wzrostu–IGF-1 w nowotworach i w długości życia człowieka wiąże się przede wszystkim z IGF-1 i należy do opisu tego czynnika.
3.4. Punkt uchwytu leków
Hormon wzrostu jest jednocześnie lekiem i celem leków. Rekombinowany hormon wzrostu zastępuje hormon endogenny w udokumentowanym niedoborze. Wytyczne pediatryczne obejmują niedobór hormonu wzrostu, idiopatyczny niski wzrost, określony w nich jako wskazanie sporne, oraz pierwotny niedobór IGF-1, przy którym omawiają leczenie rekombinowanym IGF-1 [35]. U dorosłych z niedoborem leczenie poprawia skład ciała, wydolność wysiłkową, stan kości i jakość życia, a ryzyko działań niepożądanych jest niskie [13].
Analogi długodziałające podaje się raz w tygodniu zamiast codziennie. W sieciowej metaanalizie badań u dzieci somapacytan, somatrogon i lonapegsomatropina nie różniły się od codziennego hormonu wzrostu pod względem wskaźników wzrastania [40]. W metaanalizie badań u dorosłych przestawionych na somapacytan ryzyko wszystkich działań niepożądanych było wyższe niż przy leczeniu codziennym, ze współczynnikiem ryzyka 1,31, ale ryzyko ciężkich działań niepożądanych nie różniło się [41]. W tej samej analizie somapacytan mniej zaburzał gospodarkę glukozą niż hormon codzienny [41].
W akromegalii leczenie ma obniżyć wydzielanie hormonu wzrostu albo zablokować jego działanie. Analogi somatostatyny, czyli oktreotyd, lanreotyd i pasyreotyd, wiążą się z receptorami somatostatyny na komórkach gruczolaka i hamują wydzielanie hormonu [36]. Konsensus terapeutyczny z 2025 roku obejmuje także kabergolinę, agonistę receptora dopaminy [42]. Pegwisomant jest zmodyfikowaną cząsteczką hormonu wzrostu, która wiąże receptor, ale go nie aktywuje [20]. W badaniu z randomizacją u 112 chorych stężenie IGF-1 normalizowało się przy najwyższej badanej dawce u 89% chorych wobec 10% w grupie placebo [20]. Pegwisomant blokuje więc działanie hormonu w tkankach, a nie jego wydzielanie przez gruczolak [20].
3.5. Modyfikacja behawioralna i dietetyczna
Wydzielanie hormonu wzrostu zmienia się pod wpływem zachowań, które zmieniają sen, bilans energii i skład ciała. Sen i wysiłek fizyczny są najsilniejszymi niefarmakologicznymi bodźcami do wydzielania hormonu wzrostu [43]. Działanie snu wiąże się z jego fazą głęboką. U zdrowych mężczyzn między 16. a 25. rokiem życia sen wolnofalowy zajmował średnio 18,9% czasu snu, a między 36. a 50. rokiem już tylko 3,4% [28]. W tym samym przedziale wieku wydzielanie hormonu wzrostu malało równolegle ze snem wolnofalowym [28].
Wysiłek fizyczny pobudza wydzielanie hormonu wzrostu, a wielkość odpowiedzi rośnie z intensywnością. Według przeglądu największy wyrzut wywołuje wysiłek o intensywności przekraczającej próg mleczanowy, czyli punkt, w którym mleczan zaczyna gromadzić się we krwi [43]. U osób wytrenowanych wytrzymałościowo spoczynkowe stężenie hormonu i odpowiedź na wysiłek bywają niższe, co autorzy łączą z większą wrażliwością tkanek na hormon [43].
Głodzenie zwiększa wydzielanie hormonu wzrostu. W badaniu sześciu zdrowych mężczyzn kilkudniowe głodzenie zwiększyło liczbę wyrzutów z 5,8 do 9,9 na dobę, a całkowite dobowe stężenie hormonu około trzykrotnie [44]. W tym samym czasie stężenie IGF-1 spadało, a stężenie wolnych kwasów tłuszczowych rosło [44]. Organizm głodzony wydziela więc więcej hormonu wzrostu, ale wytwarza mniej IGF-1, a działanie hormonu przesuwa się z budowania tkanek na uwalnianie tłuszczu [10].
Masa ciała działa w kierunku przeciwnym. U mężczyzn w tym samym wieku każda kolejna jednostka wskaźnika masy ciała zmniejszała dobowe wydzielanie hormonu wzrostu średnio o 6% [31]. Zmiany zachowania wpływają zatem na wydzielanie hormonu wzrostu, a przełożenie tych zmian na skład ciała i zdrowie wymaga osobnych badań.
3.6. Wsparcie suplementacyjne
Kilka substancji mających karty w dziale Suplementy badano pod kątem wpływu na wydzielanie hormonu wzrostu. Większość tych badań mierzyła stężenie hormonu krótko po jednorazowym podaniu, w małych grupach zdrowych osób. Melatonina podana doustnie słabo podnosiła podstawowe stężenie hormonu wzrostu i mniej więcej podwajała odpowiedź na GHRH, prawdopodobnie przez hamowanie somatostatyny [45, 46]. Kwas γ-aminomasłowy (GABA) podniósł w badaniu z randomizacją szczytowe stężenie hormonu wzrostu u 11 mężczyzn o około 400% [47].
L-glutamina i kreatyna zwiększały stężenie hormonu wzrostu w pojedynczych badaniach bez randomizacji, obejmujących 9 i 6 osób [48, 49]. Alfosceran choliny (Alpha-GPC) wzmacniał odpowiedź hormonu wzrostu na GHRH, szczególnie u osób starszych, ale w nowszym badaniu z randomizacją nie zmienił stężenia hormonu po wysiłku oporowym [50, 51]. Lizyna podawana wraz z argininą przez wiele dni nie zmieniła wydzielania hormonu wzrostu ani stężenia IGF-1 u starszych mężczyzn [52]. Kofeina przyjęta przed wysiłkiem oporowym osłabiła odpowiedź hormonu wzrostu, czego przyczyny autorzy upatrywali we wzroście stężenia wolnych kwasów tłuszczowych [53]. L-DOPA, czyli prekursor dopaminy, jest stosowana klinicznie jako bodziec w teście pobudzenia wydzielania hormonu wzrostu u dzieci [54].
Zestawienie obejmuje osiem substancji, a kolumna kierunku opisuje wpływ na stężenie lub wydzielanie hormonu wzrostu, nie na skład ciała.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Melatonina | prawdopodobne hamowanie somatostatyny, wzmocnienie odpowiedzi na GHRH | ↑ | B |
| GABA | pobudzenie wydzielania, mechanizm niewyjaśniony | ↑ | B |
| L-glutamina | wzrost stężenia po jednorazowym podaniu, mechanizm niewyjaśniony | ↑ | B |
| Kreatyna | wzrost stężenia po jednorazowym podaniu, duża zmienność osobnicza | ↑ | B |
| Alpha-GPC | wzmocnienie odpowiedzi na GHRH przez napięcie cholinergiczne, brak efektu po wysiłku | ~ | B |
| Lizyna | z argininą bez wpływu na wydzielanie spontaniczne i po GHRH | ~ | B |
| Kofeina | osłabienie odpowiedzi na wysiłek, prawdopodobnie przez wolne kwasy tłuszczowe | ↓ | B |
| L-DOPA | pobudzenie wydzielania, stosowana jako lek w teście diagnostycznym (status lekopodobny) | ↑ | B |
W opisanych badaniach nie mierzono skutków dla składu ciała, siły ani zdrowia, więc wzrost stężenia hormonu wzrostu po substancji nie jest równoznaczny z działaniem anabolicznym. Dawkowanie i interakcje opisują karty tych substancji w dziale Suplementy.
4. Uwagi praktyczne
4.1. Jak to zbadać
Oznaczenie hormonu wzrostu wykonuje się w surowicy krwi żylnej, a wynik podaje się w ng/ml, co liczbowo odpowiada jednostce µg/l używanej w wytycznych. Pojedyncze losowe oznaczenie ma małą wartość, bo pulsacyjne wydzielanie i szybkie usuwanie zmieniają stężenie wielokrotnie w ciągu doby [12]. U osób zdrowych po posiłku stężenie między wyrzutami bywa niewykrywalne [44]. Różne testy rozpoznają ponadto różne odmiany hormonu, a wytyczne zwracają uwagę na ostrożność w porównywaniu wyników z różnych laboratoriów [3, 55].
W podejrzeniu niedoboru hormonu wzrostu oznacza się go w teście stymulacyjnym, czyli po podaniu bodźca, który u osoby zdrowej wywołuje wyrzut hormonu. U dorosłych test jest zwykle potrzebny, chyba że niedobór wynika z potwierdzonego defektu genetycznego lub strukturalnego obecnego od dzieciństwa [13]. Wzorcem jest test tolerancji insuliny, w którym bodźcem jest hipoglikemia. Test ten jest pracochłonny, może wywołać ciężką hipoglikemię i jest przeciwwskazany u części chorych [29]. Alternatywą jest test z glukagonem [55].
Nowszą możliwością jest test z makimoreliną, doustnym lekiem pobudzającym wydzielanie hormonu wzrostu [29]. W badaniu z randomizacją w układzie naprzemiennym test z makimoreliną dał wynik możliwy do oceny u 99% badanych, a test tolerancji insuliny u 82% [29]. W analizie post hoc, przy wspólnym dla obu testów progu 5,1 ng/ml (5,1 µg/l), czułość testu z makimoreliną wynosiła 92%, a swoistość 96% [29]. Powtórzony test z makimoreliną dał ten sam wynik u 97% badanych [29]. U dzieci stosuje się także test z L-DOPA, w którym szczyt hormonu wzrostu przypadał najczęściej około 60 minut po podaniu [54].
W podejrzeniu akromegalii podstawą rozpoznania biochemicznego jest stężenie IGF-1, a wartość przekraczająca 1,3-krotność górnej granicy normy dla wieku potwierdza rozpoznanie u chorego z typowymi objawami [56]. Oznaczenie IGF-1 i jego normy zależne od wieku opisuje odrębne hasło. Przy wyniku niejednoznacznym wykonuje się test hamowania hormonu wzrostu glukozą podaną doustnie [56]. Test wykorzystuje to, że u osoby zdrowej glukoza hamuje wydzielanie hormonu wzrostu, a w akromegalii to hamowanie nie następuje [30]. W badaniu 525 zdrowych dorosłych najniższe stężenie w teście zależało od wskaźnika masy ciała, płci i przyjmowania antykoncepcji zawierającej etynyloestradiol [30]. Przy nowoczesnych testach było ono wyraźnie niższe niż progi stosowane w dawnych wytycznych [30].
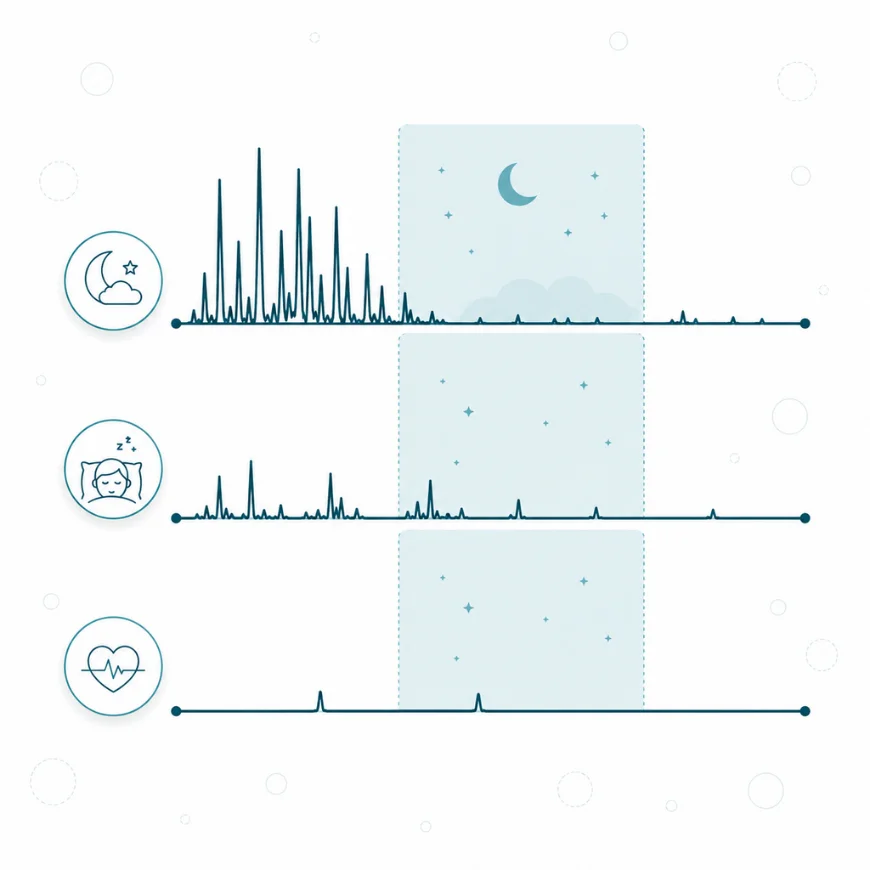
Wyrzuty następują w nocy i zanikają z wiekiem. Sam wynik pojedynczego oznaczenia niewiele mówi bez testu dynamicznego.
4.2. Na co warto zwrócić uwagę
Hormon wzrostu bywa przedstawiany jako środek odmładzający, a dane z badań u ludzi tego nie potwierdzają. W metaanalizie badań z randomizacją u zdrowych osób w średnim wieku 69 lat hormon wzrostu zmniejszył masę tłuszczu o 2,1 kg i zwiększył masę beztłuszczową o 2,1 kg, ale masa ciała i gęstość kości się nie zmieniły [38]. Przegląd z 2026 roku stwierdza, że leczenie somatopauzy hormonem wzrostu daje niewielkie zmiany składu ciała bez klinicznie istotnej poprawy zdrowia [9]. Autorzy tego przeglądu traktują spadek wydzielania z wiekiem jako etap rozwoju, a nie chorobę, i nie widzą podstaw do leczenia go hormonem wzrostu bez nowych badań [9].
Podobne rozstrzygnięcie dotyczy sportu. Światowa Agencja Antydopingowa (WADA) zakazuje stosowania hormonu wzrostu jako środka anabolicznego [12]. W przeglądzie systematycznym badań u młodych, sprawnych osób hormon wzrostu zwiększył masę beztłuszczową średnio o 2,1 kg, ale nie poprawił siły ani wydolności, a stężenie mleczanu w czasie wysiłku było wyższe w dwóch z trzech badań [39]. W badaniu z randomizacją u sportowców rekreacyjnych hormon wzrostu zwiększył zdolność do krótkiego sprintu o 3,9%, ale efekt zniknął po odstawieniu, a siła, moc i maksymalny pobór tlenu się nie zmieniły [24]. Hormon wzrostu działa więc na skład ciała, ale jego działanie na sprawność jest wąskie i przemijające.
Brak korzyści u osób zdrowych nie przekreśla działania leczniczego hormonu wzrostu w niedoborze. U dorosłych z potwierdzonym niedoborem leczenie poprawia skład ciała, wydolność wysiłkową, stan kości i jakość życia [13]. U dzieci z niedoborem codzienny hormon wzrostu i jego analogi długodziałające zwiększały tempo wzrastania w porównywalnym stopniu [40]. Ta sama substancja ma więc udokumentowane działanie lecznicze w niedoborze i brak udokumentowanego pożytku u osób zdrowych.
Suplementy reklamowane jako „podnoszące hormon wzrostu” zwiększały jego stężenie w badaniach krótkotrwale i w małych grupach. Przy wielodniowym przyjmowaniu argininy z lizyną u starszych mężczyzn wydzielanie hormonu wzrostu się nie zmieniło [52]. Żadne z tych badań nie mierzyło skutków dla składu ciała ani zdrowia, więc chwilowy wzrost stężenia nie świadczy o korzyści.
Związek hormonu wzrostu ze snem jest dobrze udokumentowany, ale nie przesądza o kierunku przyczynowym. Ilość wydzielanego hormonu wiąże się z ilością snu wolnofalowego niezależnie od wieku [28]. Badanie ma jednak charakter przekrojowy i nie rozstrzyga, czy pogłębienie snu u osoby dorosłej zwiększy wydzielanie hormonu wzrostu. Rozpoznanie niedoboru lub nadmiaru hormonu wzrostu i decyzja o leczeniu należą do lekarza, który interpretuje wynik badania w kontekście objawów.