1. Charakterystyka cholesterolu
1.1. Definicja i klasyfikacja
Testosteron to hormon steroidowy należący do androgenów, czyli grupy pochodnych cholesterolu wiążących się z receptorem androgenowym i kierujących rozwojem męskich cech płciowych. W ustroju człowieka jest androgenem najsilniejszym spośród krążących we krwi i zarazem wydzielanym najobficiej. U mężczyzn powstaje przede wszystkim w komórkach śródmiąższowych jądra, u kobiet w jajniku, a u obu płci w korze nadnerczy [2]. Pod względem chemicznym jest steroidem o dziewiętnastu atomach węgla, zbudowanym na szkielecie androstanu, co odróżnia go od osiemnastowęglowych estrogenów oraz od dwudziestojednowęglowych progestagenów i kortykosteroidów.
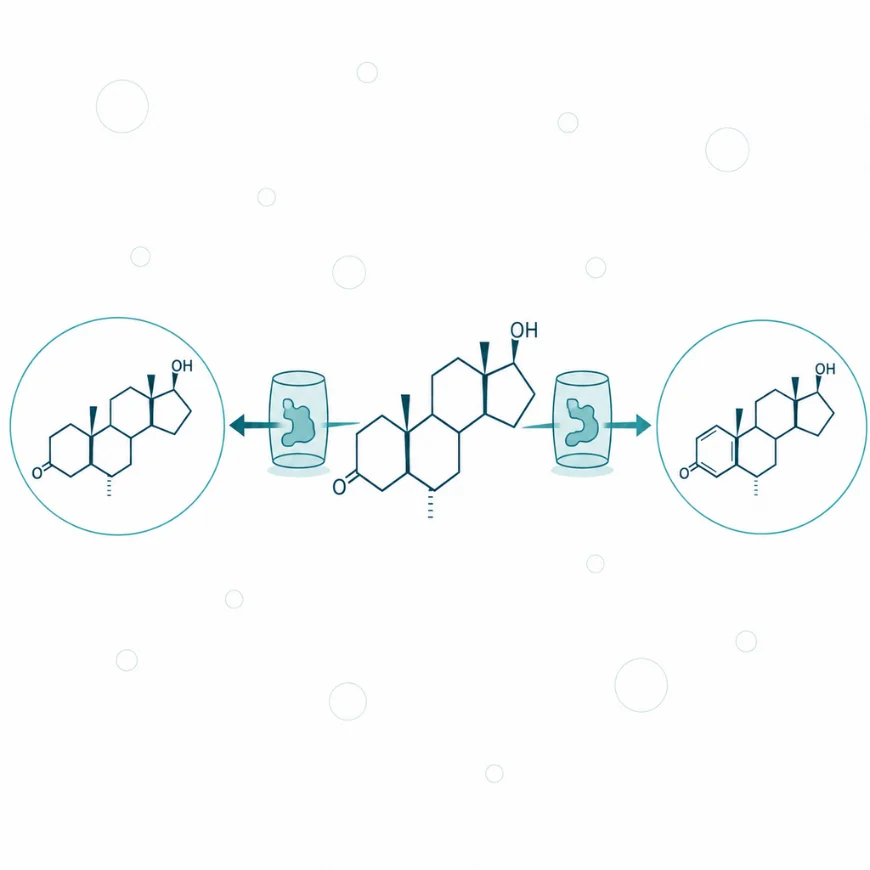
Testosteron pełni dwie role naraz i ich pomylenie stoi u źródła większości nieporozumień wokół tego hormonu. Jest hormonem czynnym, ponieważ sam wiąże receptor androgenowy, a zarazem prekursorem, ponieważ w tkankach docelowych powstają z niego dwie cząsteczki o odmiennym działaniu. Pierwszą jest dihydrotestosteron, silniejszy agonista tego samego receptora, drugą estradiol, ligand receptorów estrogenowych [10, 17]. Część skutków przypisywanych testosteronowi jest zatem dziełem jego pochodnych, a nie jego samego.
Od pojęć sąsiednich testosteron odróżnia się w sposób mający następstwa kliniczne. Nie jest tożsamy z dihydrotestosteronem, który powstaje z niego dopiero w tkankach wyposażonych w 5α-reduktazę [10]. Nie jest tożsamy z androgenami nadnerczowymi, czyli z dehydroepiandrosteronem i androstendionem, wiążącymi receptor słabo i działającymi głównie po obwodowej przemianie w testosteron. Od syntetycznych steroidów anaboliczno-androgennych różni się pochodzeniem, bo tamte są modyfikacjami tej samej cząsteczki, dobranymi tak, aby opierała się rozkładowi [1, 24]. Nie jest wreszcie hormonem obecnym wyłącznie u mężczyzn, ponieważ krąży u obu płci, a różnica między nimi jest ilościowa.
Zakres pojęcia obejmuje więc jedną cząsteczkę o określonym wzorze i określonych losach metabolicznych, a nie całą aktywność androgenną ustroju, na którą składają się także jej pochodne i androgeny nadnerczowe. Osobne hasło uzasadnia zasięg działania. Od tego jednego hormonu zależą płodność, skład ciała, gęstość kości i wytwarzanie krwinek czerwonych, a jego cząsteczka jest punktem wyjścia dla całej klasy substancji stosowanych w sporcie poza wskazaniami lekarskimi [3, 24].
Testosteron działa również przez swoje pochodne: silniejszy dihydrotestosteron i estradiol. Część objawów jego niedoboru wynika z braku tej drugiej drogi.
1.2. Budowa i właściwości testosteronu
Cząsteczka testosteronu ma dwa miejsca, od których zależy prawie wszystko, co dzieje się z hormonem po wydzieleniu. Pierwszym jest grupa ketonowa przy węglu trzecim, sąsiadująca z wiązaniem podwójnym w pierścieniu A. Drugim jest grupa hydroksylowa w pozycji 17β. Obie są rozpoznawane przez kieszeń wiążącą receptora androgenowego, więc każda ich zmiana przesuwa powinowactwo [7].
Reszta cząsteczki jest niepolarna, przez co testosteron rozpuszcza się w tłuszczach, a nie w wodzie. Wynikają z tego trzy właściwości. Hormon przechodzi przez błony komórkowe biernie, bez udziału transportera, dlatego nie jest magazynowany w pęcherzykach i wydzielany jest na bieżąco, w tempie odpowiadającym syntezie [2]. We krwi musi być niesiony przez białka, bo w samym osoczu rozpuszcza się śladowo. Przenika też barierę krew-mózg i dociera do komórek nerwowych, co stanowi warunek działania ośrodkowego.
Trzecim następstwem budowy jest podatność na szybki rozkład. Grupa 17β-hydroksylowa jest miejscem sprzęgania z kwasem glukuronowym, czyli reakcji kończącej życie cząsteczki [11]. Z tego powodu testosteron przyjęty doustnie zostaje w znacznej części unieczynniony w wątrobie, zanim dotrze do krążenia ogólnego. Przez kilkadziesiąt lat farmakologia hormonu polegała na omijaniu tej przeszkody: na postaciach podawanych pozajelitowo oraz na modyfikacjach cząsteczki spowalniających jej rozkład [1]. Ta sama grupa hydroksylowa jest zresztą miejscem estryfikacji, dzięki której powstają estry hormonu uwalniane powoli.
1.3. Rys historyczny
Zanim testosteron został wyodrębniony, wewnętrzne wydzielanie jąder pozostawało hipotezą, którą próbowano potwierdzać leczeniem. Wyciągi z jąder zwierzęcych, a później przeszczepy tkanki jądrowej, stosowano na dużą skalę w objawach niedoboru androgenów i przypisywano im działanie odmładzające. Skuteczność tych zabiegów okazała się pozorna i mieściła się w granicach efektu placebo [1]. Poszukiwanie męskiego hormonu przeniosło się wtedy z kliniki do chemii steroidów.
Rozstrzygnięcie przyniósł rok 1935. Zespół Ernsta Laqueura w Amsterdamie wyodrębnił z tkanki jądrowej czystą substancję o działaniu androgennym i nadał jej nazwę testosteron. W tym samym roku Adolf Butenandt w Gdańsku i Leopold Ruzicka w Zurychu niezależnie od siebie opracowali jej syntezę chemiczną [1]. Znaczenie tej pary wydarzeń polegało na tym, że nieokreślona substancja jąder stała się cząsteczką o znanym wzorze, dostępną w ilościach wystarczających do badań fizjologicznych.
Synteza otworzyła zarazem problem, którego wcześniej nie było. Testosteron podany doustnie okazał się nieskuteczny, ponieważ ulega rozkładowi w wątrobie, więc kolejne dekady zeszły na opracowywaniu postaci pozajelitowych i pochodnych opornych na ten rozkład [1]. Ta sama chemia, która umożliwiła leczenie niedoboru, dała też podstawę steroidom anaboliczno-androgennym używanym poza medycyną [24].
1.4. Synteza i źródła testosteronu
Miejscem wytwarzania testosteronu u mężczyzny są komórki śródmiąższowe jądra, zwane komórkami Leydiga, leżące w tkance łącznej między kanalikami nasiennymi [2]. Czynność wydzielniczą jądra jako narządu opisuje hasło o czynności endokrynnej jąder. Droga, którą cholesterol staje się w tych komórkach testosteronem, jest ciągiem reakcji o ustalonej kolejności i o jednym kroku ograniczającym tempo.
Punktem wyjścia jest cholesterol, a tempo całej syntezy wyznacza nie reakcja chemiczna, tylko transport. Hormon luteinizujący wiąże się z receptorem na powierzchni komórki Leydiga i podnosi wewnątrzkomórkowe stężenie cyklicznego AMP. Ten przekaźnik drugiego rzędu uruchamia kinazę białkową A, a ona aktywuje białko StAR (ang. steroidogenic acute regulatory protein). StAR działa wspólnie z białkiem translokatorowym i kanałem VDAC, przenosząc cholesterol przez błony mitochondrium na jego stronę wewnętrzną [2]. Ponieważ cholesterol dociera tam wolniej, niż zdążyłyby go przerobić enzymy, właśnie ten krok ogranicza szybkość wytwarzania hormonu.
Dalej reakcje idą po kolei. Na wewnętrznej błonie mitochondrialnej enzym CYP11A1, nazywany też enzymem rozszczepiającym łańcuch boczny cholesterolu, odcina fragment cząsteczki i wytwarza pregnenolon [2]. Pregnenolon przechodzi do gładkiej siateczki śródplazmatycznej, gdzie kolejne enzymy przekształcają go w 17α-hydroksypregnenolon, dehydroepiandrosteron i androstendion, a ostatni krok, katalizowany przez dehydrogenazę 17β-hydroksysteroidową, daje testosteron. Udział dehydrogenazy 3β-hydroksysteroidowej i enzymu rozszczepiającego łańcuch boczny w tym ciągu potwierdzono także w komórkach Leydiga myszy, u których niedobór cynku obniżał ekspresję obu enzymów [32].
`cholesterol → pregnenolon → 17α-hydroksypregnenolon → dehydroepiandrosteron → androstendion → testosteron`
Górny pułap wydzielania jest ograniczony osobno. Białka adaptorowe 14-3-3γ i 14-3-3ε działają w komórce Leydiga jako regulatory ujemne i wyznaczają największą ilość steroidu, jaką komórka wytworzy w odpowiedzi na pobudzenie [2]. Dlatego silniejszy sygnał z przysadki nie przekłada się na dowolnie wysokie stężenie hormonu, a kontrola wydzielania nie sprowadza się do siły bodźca.
Źródła pozajądrowe dokładają do puli krążącej niewiele u mężczyzn i rozstrzygająco dużo u kobiet. Kora nadnerczy wydziela dehydroepiandrosteron i androstendion, które przechodzą w testosteron dopiero w tkankach obwodowych, natomiast jajnik wytwarza go bezpośrednio [2].
1.5. Transport i frakcja aktywna testosteronu
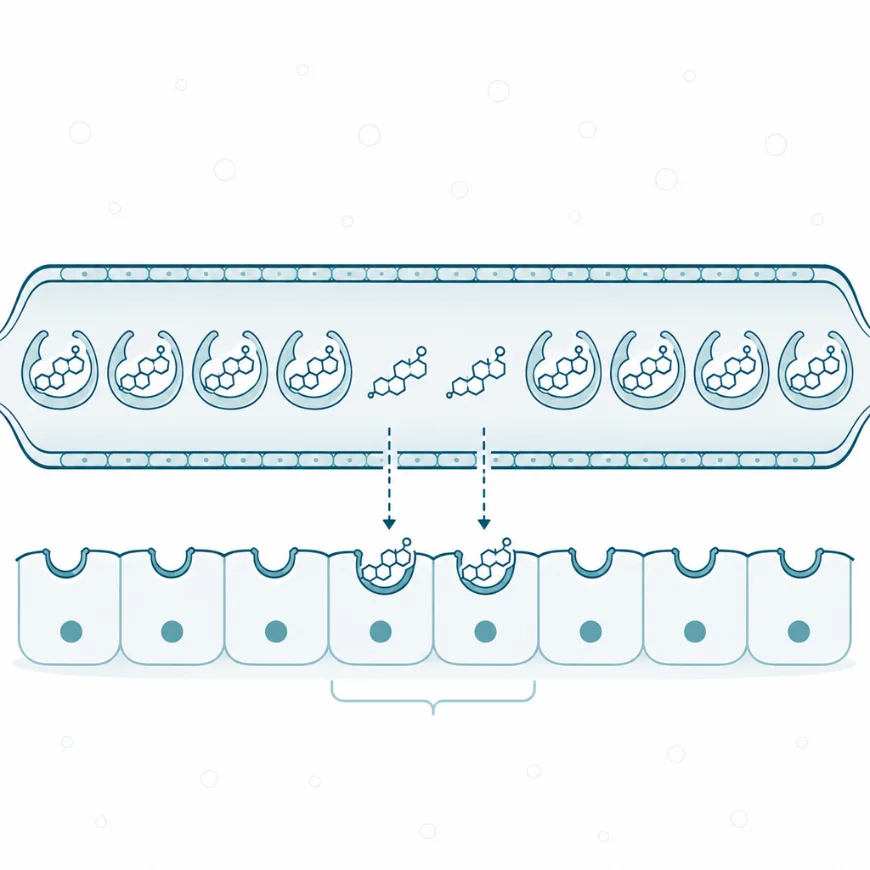
Testosteron opuszcza jądro i trafia do osocza, w którym sam się nie rozpuszcza, dlatego musi być związany z białkami. Trzy frakcje hormonu różnią się siłą tego wiązania, a przez to dostępnością dla receptora.
| Frakcja | Nośnik | Siła wiązania | Dostępność dla receptora |
| wolna | brak | nie dotyczy | pełna |
| związana z albuminą | albumina | słaba, łatwo odwracalna | częściowa |
| związana z SHBG | globulina wiążąca hormony płciowe | silna | znikoma |
Frakcja wolna stanowi drobny ułamek całości. U zdrowych mężczyzn bez otyłości mediana stężenia wolnego testosteronu, zmierzona znormalizowaną dializą równowagową, wyniosła 141 pg/ml, a u mężczyzn w wieku 19–39 lat 190 pg/ml [6]. W tym samym badaniu stężenie frakcji wolnej malało wraz z wiekiem, ze wskaźnikiem masy ciała i ze stężeniem globuliny wiążącej hormony płciowe. U mężczyzn starszych spadał przy tym również sam odsetek hormonu niezwiązanego [6].
Stężenie białka wiążącego nie jest wielkością stałą i zmienia się w chorobach oraz pod wpływem leków [3, 4]. Z tego powodu ta sama wartość testosteronu całkowitego oznacza u dwóch mężczyzn różną ilość hormonu dostępnego dla tkanek, a wynik całkowity przestaje wtedy odpowiadać na pytanie, o które chodzi.
Wolnego testosteronu nie da się jednak zmierzyć równie łatwo, co całkowitego. Metodą odniesienia pozostaje dializa równowagowa, zbyt złożona dla laboratorium rutynowego, a oznaczenia nie są zharmonizowane, więc wspólne zakresy referencyjne nie istnieją [5]. Wzory obliczeniowe opierają się na uproszczonym modelu wiązania z globuliną i bywają niedokładne, choć ich wyniki pozostają klinicznie użyteczne, natomiast wskaźnik wolnych androgenów u mężczyzn nie jest metodą wiarygodną [5].
Do tkanki wchodzi tylko frakcja wolna. Stężenie całkowite bywa prawidłowe przy realnym niedoborze, jeśli stężenie białka wiążącego jest podwyższone.
2. Mechanizm działania i funkcje testosteronu
2.1. Receptory i punkty uchwytu
Testosteron działa przez receptor androgenowy, czyli białko z rodziny receptorów jądrowych, którego gen leży na chromosomie płciowym X człowieka. Receptor składa się z trzech części o odrębnych zadaniach: domeny N-końcowej pobudzającej transkrypcję, domeny wiążącej DNA z dwoma palcami cynkowymi oraz domeny wiążącej ligand [7]. Ten sam receptor rozpoznaje dwa androgeny ustrojowe, co odróżnia go od receptorów obsługujących pojedynczy ligand.
Drugim ligandem jest dihydrotestosteron, powstający z testosteronu w reakcji katalizowanej przez 5α-reduktazę. Enzym występuje w dwóch izoformach, a izoforma typu 2 działa w skórze, mieszku włosowym, najądrzu i gruczole krokowym [10]. Dihydrotestosteron wiąże receptor mocniej i dysocjuje wolniej, więc w tkankach wyposażonych w ten enzym to samo stężenie testosteronu daje silniejszy sygnał androgenny. Skalę wzmocnienia pokazuje wrodzony niedobór 5α-reduktazy typu 2. Osoby o kariotypie 46,XY z mutacją tego enzymu rodzą się często z zewnętrznymi narządami płciowymi o budowie żeńskiej. Przewody Müllera zanikają u nich prawidłowo, a wewnętrzny układ moczowo-płciowy jest męski, natomiast wirylizacja następuje dopiero w okresie dojrzewania [10]. Rozwój zewnętrznych narządów płciowych jest zatem dziełem dihydrotestosteronu, nie testosteronu.
Trzeci punkt uchwytu leży poza receptorem jądrowym. W liniach komórkowych pozbawionych tego receptora testosteron wywołuje odpowiedzi w ciągu sekund i minut. Jako ich pośredniki opisano cztery białka błonowe: transporter cynku ZIP9, receptor GPRC6A sprzężony z białkiem G, kanał wapniowy TRPM8 oraz receptor kwasu oksoeikozatetraenowego OXER1 [8]. Żadne z nich nie spełnia dotąd wszystkich kryteriów receptora androgenowego błonowego, a udział tej drogi w fizjologii człowieka pozostaje nierozstrzygnięty [8].
2.2. Kaskada sygnałowa
W komórce niepobudzonej receptor androgenowy znajduje się w cytoplazmie, związany z białkami opiekuńczymi z rodziny białek szoku cieplnego. Utrzymują go one w postaci zdolnej do przyjęcia hormonu, a jednocześnie nie dopuszczają do jądra komórkowego [7]. Bodźcem uruchamiającym kaskadę jest sam testosteron, który przenika przez błonę biernie.
Dalej zdarzenia następują w ustalonej kolejności. Hormon wiąże się z domeną ligandową, co zmienia ułożenie ostatniego odcinka receptora i odsłania sygnał kierujący białko do jądra. Białka opiekuńcze odłączają się, dwie cząsteczki receptora łączą się w dimer i przechodzą przez pory jądrowe. W jądrze dimer siada na krótkich odcinkach DNA zwanych elementami odpowiedzi androgenowej, leżących w okolicach regulatorowych genów docelowych, i przyciąga koaktywatory rozluźniające chromatynę [7]. Stanem końcowym jest zmieniony zestaw białek wytwarzanych przez komórkę, a w mięśniu szkieletowym są to czynniki transkrypcyjne swoiste dla miocytu, enzymy, białka strukturalne oraz cząsteczki mikroRNA [9].
Konsekwencja tego przebiegu tłumaczy obraz kliniczny niedoboru. Skoro sygnał androgenny działa przez transkrypcję, jego skutki narastają w ciągu godzin i dni, a nie minut, i równie wolno ustępują. Objawy hipogonadyzmu narastają więc skrycie, a wyrównanie niedoboru nie daje poprawy natychmiastowej [3].
Obok drogi transkrypcyjnej biegnie druga, znacznie szybsza. Androgeny zwiększają napływ wapnia do komórki i pobudzają kinazy szlaku Akt oraz kinazy aktywowane mitogenami, a w mięśniu wchodzą w zależności z miostatyną, insulinopodobnym czynnikiem wzrostu oraz szlakiem Notch [9]. Ta część odpowiedzi rozgrywa się w sekundach i minutach, więc obie drogi razem dają hormonowi dwie skale czasowe działania [8, 9].
2.3. Funkcje testosteronu
Receptor androgenowy występuje w większości tkanek człowieka, dlatego działanie testosteronu nie ogranicza się do układu rozrodczego [7, 35]. Wspólnym mianownikiem pozostaje zmiana odczytu genów w komórce mającej ten receptor, a różnica między tkankami bierze się z tego, które geny są w nich dostępne.
2.3.1. Układ rozrodczy
Testosteron kieruje różnicowaniem płciowym już w życiu płodowym. Płodowe komórki Leydiga wytwarzają androgeny w stężeniach potrzebnych do rozwoju męskich narządów płciowych oraz do maskulinizacji mózgu, a po urodzeniu ich wydzielanie zanika i sięga najniższych wartości w okresie poporodowym [2]. Podział pracy między hormonem a jego pochodną jest tu ostry. Przewód najądrza, nasieniowód i pęcherzyk nasienny powstają pod wpływem samego testosteronu, natomiast zewnętrzne narządy płciowe wymagają dihydrotestosteronu, co widać u osób z niedoborem 5α-reduktazy typu 2 [10].
W wieku dorosłym hormon utrzymuje to, co wcześniej zbudował, i warunkuje wytwarzanie plemników. Wewnątrz jądra jego stężenie jest wielokrotnie wyższe niż we krwi, a taki lokalny nadmiar stanowi warunek dojrzewania komórek płciowych. Stąd bierze się zależność odwrotna do intuicji: podawanie testosteronu z zewnątrz wyłącza wydzielanie hormonu luteinizującego, obniża stężenie wewnątrzjądrowe i hamuje spermatogenezę, więc leczenie niedoboru pogarsza płodność zamiast ją poprawiać [3].
Popęd płciowy jest tą funkcją, dla której zależność od stężenia hormonu udokumentowano najlepiej. W badaniu z randomizacją u mężczyzn w wieku 65 lat i starszych, z objawami niedoboru i niskim stężeniem wyjściowym, roczne leczenie zwiększyło aktywność seksualną, popęd oraz sprawność wzwodu [14]. W badaniu z kontrolowanym stopniowaniem dawek u mężczyzn w wieku 60–75 lat ogólna sprawność seksualna i wzwody poranne zmieniały się wraz z dawką. Zmiana popędu wystąpiła natomiast tylko u mężczyzn aktywnych seksualnie przed badaniem [13].
2.3.2. Układ mięśniowo-szkieletowy
Testosteron zwiększa masę i siłę mięśnia szkieletowego, a mechanizm tego działania łączy kilka dróg. Pobudzony receptor androgenowy w miocycie zmienia transkrypcję genów kodujących białka strukturalne i enzymy oraz wpływa na proliferację i różnicowanie komórek mięśniowych. Przesuwa przy tym bilans między syntezą a rozpadem białka, wchodząc w zależności z miostatyną i z insulinopodobnym czynnikiem wzrostu [9]. Efekt jest stopniowalny. W badaniu z randomizacją u 54 zdrowych młodych mężczyzn zahamowano własne wydzielanie hormonu agonistą gonadoliberyny i podawano pięć różnych dawek testosteronu. Przyrost masy beztłuszczowej zależał od dawki na tyle regularnie, że dawka wraz z wiekiem i wyjściowym stężeniem swoistego antygenu sterczowego tłumaczyła 67% zmienności odpowiedzi [12].
W kości zależność jest mniej bezpośrednia. W dwuletnim badaniu z randomizacją u mężczyzn po pięćdziesiątym roku życia objętościowa gęstość mineralna warstwy korowej piszczeli wzrosła o 3,1%. Wzrosły też pole i grubość kory na kości piszczelowej i promieniowej [16]. Za utrzymanie masy kostnej u mężczyzny odpowiada jednak w dużej mierze estradiol powstający z testosteronu. To właśnie stężenie estradiolu, a nie testosteronu, wiąże się ściślej z gęstością kości, tempem jej ubytku i ryzykiem złamania [17].
Poprawa gęstości nie przełożyła się przy tym na mniejszą liczbę złamań. W badaniu z randomizacją obejmującym 5204 mężczyzn z hipogonadyzmem złamanie kliniczne wystąpiło u 3,50% leczonych testosteronem i u 2,46% otrzymujących placebo [15]. Odpowiada to współczynnikowi ryzyka 1,43 przy przedziale ufności od 1,04 do 1,97 [15]. Gęstość mineralna kości jest więc dla tego hormonu wskaźnikiem zastępczym, który nie przewiduje wyniku klinicznego.
2.3.3. Układ krwiotwórczy
Testosteron pobudza wytwarzanie krwinek czerwonych i robi to dwiema drogami naraz. W badaniu z randomizacją u starszych mężczyzn z ograniczoną sprawnością ruchową sześciomiesięczne leczenie podniosło stężenie hemoglobiny o 7% i hematokryt o 10%. Towarzyszył temu wzrost stężenia erytropoetyny oraz spadek stężenia ferrytyny i hepcydyny [18]. Hepcydyna zatrzymuje żelazo w komórkach, które je magazynują, więc jej obniżenie udostępnia szpikowi pulę wcześniej niedostępną. Zgodnie z tym w tym samym badaniu wzrosło stężenie rozpuszczalnego receptora transferyny, czyli wskaźnika zużycia żelaza przez erytroblasty [18].
Sam wzrost stężenia erytropoetyny okazał się przy tym przejściowy, natomiast punkt, w którym erytropoetyna przestaje być hamowana przez rosnącą hemoglobinę, przesunął się trwale [18]. Niezależny mechanizm hepcydynowy potwierdzono w badaniu z randomizacją u osób w deficycie energetycznym, gdzie podanie testosteronu obniżyło stężenie hepcydyny i zwiększyło dostępność żelaza dla erytropoezy [19].
Skutkiem tego działania jest wzrost hematokrytu przy każdej postaci leczenia. W metaanalizie sieciowej 29 badań z randomizacją, obejmującej 3393 mężczyzn, wzrost hematokrytu wobec placebo stwierdzono dla wszystkich dróg podania, a największy był przy iniekcyjnych estrach testosteronu [20]. Erytrocytoza jest zatem nie powikłaniem przypadkowym, lecz przedłużeniem fizjologicznej funkcji hormonu.
2.3.4. Ośrodkowy układ nerwowy
Testosteron przenika barierę krew-mózg, a receptor androgenowy występuje w ośrodkowym układzie nerwowym, więc warunki działania ośrodkowego są spełnione [7]. Pierwsze takie działanie zachodzi przed urodzeniem, gdy androgeny płodowe kierują maskulinizacją mózgu, czyli trwałym ukształtowaniem różnic płciowych w jego budowie [2]. Działania późniejsze mają charakter modulacyjny i są znacznie trudniejsze do zmierzenia.
Dane z badań z randomizacją są tu skromniejsze, niż sugeruje potoczny obraz hormonu. W badaniu u mężczyzn w wieku 65 lat i starszych roczne leczenie wiązało się z nieco lepszym nastrojem i mniejszym nasileniem objawów depresyjnych, natomiast nie poprawiło witalności mierzonej skalą zmęczenia [14]. W badaniu ze stopniowaniem dawek zależności od dawki nie stwierdzono ani dla nastroju, ani dla sprawności wzrokowo-przestrzennej, mimo że dla funkcji seksualnych taka zależność wystąpiła [13]. Obniżony nastrój bywa objawem hipogonadyzmu, ale związek między stężeniem hormonu a rozpoznaniem depresji pozostaje niejednoznaczny.
Obraz dopełniają dane o stężeniach ponadfizjologicznych. Przy długotrwałym stosowaniu steroidów anaboliczno-androgennych opisywano drażliwość, agresję i zachowania gwałtowne, jednak reakcje te dotyczą mniejszości użytkowników i mają charakter osobniczy, a odstawienie preparatów bywa z kolei związane z depresją [24]. Popularne równanie wysokiego stężenia testosteronu z agresją nie wytrzymuje więc zestawienia z danymi, bo opisuje rzadką odpowiedź osobniczą na dawki ponadfizjologiczne, a nie regułę fizjologiczną.
2.3.5. Układ metaboliczny
Testosteron kształtuje skład ciała, przesuwając równowagę między masą beztłuszczową a tkanką tłuszczową. U mężczyzn z niedoborem hormonu jego wyrównanie zwiększa masę mięśniową, zmniejsza masę tłuszczową i poprawia insulinowrażliwość [22]. Hormon działa tu dwutorowo: bezpośrednio na miocyt przez receptor androgenowy [9] oraz pośrednio, przez zmianę ilości tkanki tłuszczowej.
Drugim wymiarem tej funkcji jest jej zmiana w czasie. Stężenie testosteronu obniża się powoli po czterdziestym roku życia, a spadkowi temu towarzyszy ubytek masy i jakości mięśni opisywany jako sarkopenia [35]. Ponieważ mięsień szkieletowy jest największym odbiorcą glukozy zależnym od insuliny, ubytek jego masy zmienia gospodarkę węglowodanową całego ustroju.
2.4. Regulacja wydzielania i zmienność dobowa
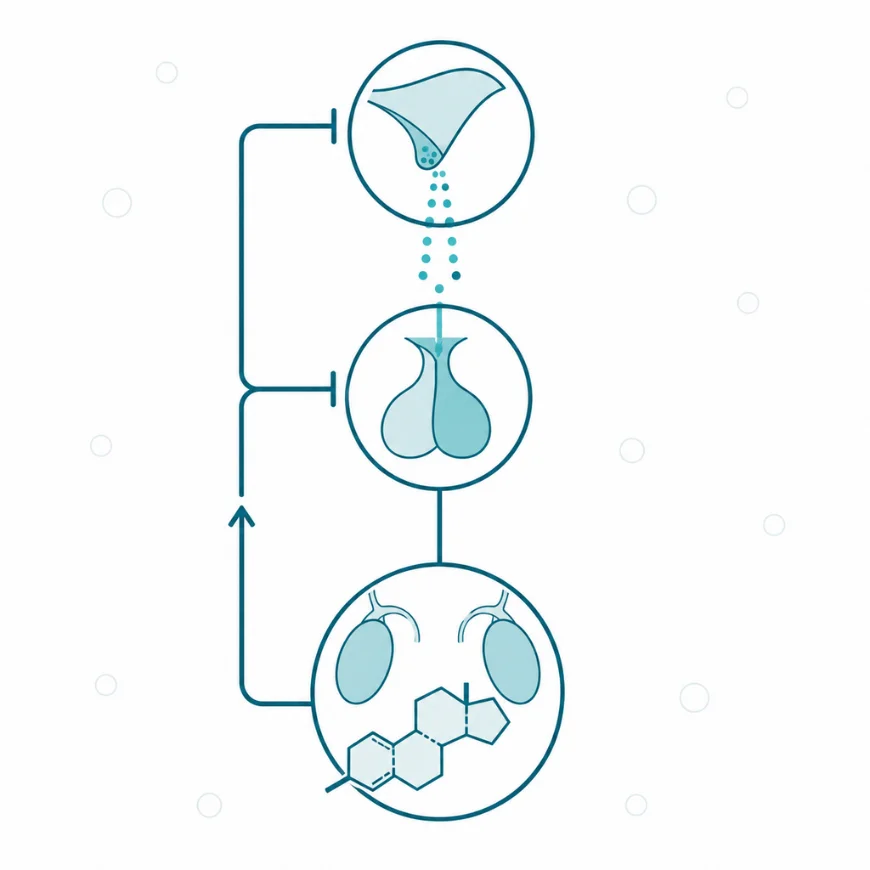
Wydzielanie testosteronu jest sterowane pętlą ujemnego sprzężenia zwrotnego, w której hormon hamuje własne piętra nadrzędne. Podwzgórze uwalnia gonadoliberynę w krótkich rzutach, przysadka odpowiada wyrzutami hormonu luteinizującego, a komórka Leydiga wydziela testosteron. Rosnące stężenie hormonu tłumi z powrotem zarówno rzuty gonadoliberyny, jak i odpowiedź przysadki [3]. Budowę całej osi i jej powiązania z pozostałymi hormonami płciowymi opisuje hasło o osi podwzgórze-przysadka-gonady.
Ponieważ bodziec nadrzędny jest rzutowy, stężenie hormonu waha się w ciągu doby i osiąga wartości najwyższe rano, co stanowi podstawę wymogu porannego pobrania krwi w rozpoznawaniu niedoboru [3, 4]. Amplituda tego rytmu dobowego maleje z wiekiem.
Na tempo wydzielania wpływa też sen. W badaniu obserwacyjnym u dwunastu zdrowych mężczyzn w wieku 64–74 lat zmierzono ilość snu nocnego polisomnograficznie i potwierdzono ją wielodniowym zapisem aktygraficznym. Ilość ta okazała się niezależnym czynnikiem przewidującym poranne stężenie testosteronu całkowitego i wolnego [23].
Oś podlega wreszcie hamowaniu przez czynniki zewnętrzne wobec niej samej. Tłumi ją nadmiar prolaktyny, a także przewlekłe zapalenie towarzyszące chorobie ogólnoustrojowej [3, 22]. Stężenie testosteronu jest zatem wielkością zmienną w skali godzin, dni i miesięcy, a nie stałą cechą osoby.
2.5. Inaktywacja i wydalanie testosteronu
Testosteron kończy działanie w wątrobie, gdzie najpierw zostaje uwodorniony w pierścieniu A i przekształcony w słabo czynne androstanodiole, a następnie sprzężony z kwasem glukuronowym. Reakcję sprzęgania katalizują trzy glukuronozylotransferazy: UGT2B17, UGT2B15 i UGT2B7 [11]. Produkt sprzęgania jest bardziej polarny i lepiej rozpuszczalny w wodzie od hormonu wyjściowego, przez co daje się wydalić z moczem, a ta sama zmiana czyni go nieczynnym wobec receptora androgenowego.
Wydajność tej drogi różni się dziedzicznie i ma następstwa wykraczające poza fizjologię. Delecja genu UGT2B17 zmniejsza wydalanie glukuronidu testosteronu, a przez to obniża stosunek testosteronu do epitestosteronu w moczu [11]. Wartość tego parametru powyżej 4,0 służy w kontroli antydopingowej jako sygnał podania hormonu z zewnątrz [11]. Nosiciele delecji mogą więc mieć wynik prawidłowy mimo podania preparatu.
Nie każda przemiana testosteronu jest jednak jego unieczynnieniem. Aromataza przekształca część puli hormonu w estradiol, co nie kończy sygnału, tylko przenosi go z receptora androgenowego na receptory estrogenowe. U mężczyzny właśnie ten sygnał odpowiada za znaczną część ochrony kości [17]. Reakcję aromatyzacji wraz z jej następstwami dla gospodarki estrogenowej opisuje hasło o estrogenach.
3. Zaburzenia i modyfikacja poziomu testosteronu
3.1. Niedobór – przyczyny i następstwa
Hipogonadyzm męski to stan, w którym jądra nie wytwarzają dość testosteronu, a rozpoznanie wymaga jednoczesnego wystąpienia objawów niedoboru i jednoznacznie niskiego stężenia hormonu [3]. Samo niskie stężenie w jednym oznaczeniu rozpoznania nie stanowi. Podział przyczyn opiera się na tym, które piętro osi zawiodło, a rozstrzyga o tym stężenie hormonu luteinizującego i folikulotropowego.
| Postać | Miejsce zaburzenia | LH i FSH | Przykłady przyczyn | Odwracalność |
| pierwotna | jądro | podwyższone | zespół Klinefeltera, uszkodzenie pourazowe, chemioterapia, orchidektomia | zwykle trwała |
| wtórna | podwzgórze lub przysadka | niskie albo prawidłowe | guz przysadki, hiperprolaktynemia, leczenie opioidami | zależna od przyczyny |
| czynnościowa | podwzgórze | niskie albo prawidłowe | otyłość, cukrzyca typu 2, choroba przewlekła, ostra choroba | z reguły odwracalna |
Rozdzielenie postaci czynnościowej od dwóch pozostałych ma największe znaczenie praktyczne, ponieważ tylko ona cofa się bez podawania hormonu [22]. Pozostałe dwie wymagają rozpoznania przyczyny strukturalnej, a przy niskich gonadotropinach obrazowania okolicy podwzgórzowo-przysadkowej [4].
Następstwa niedoboru odpowiadają funkcjom hormonu i pojawiają się z opóźnieniem właściwym dla sygnału transkrypcyjnego. Obejmują zmniejszenie masy i siły mięśni, przyrost tkanki tłuszczowej, ubytek gęstości mineralnej kości, niedokrwistość, przerzedzenie owłosienia płciowego, ginekomastię, obniżenie popędu płciowego, zaburzenia wzwodu oraz obniżony nastrój [3, 35].
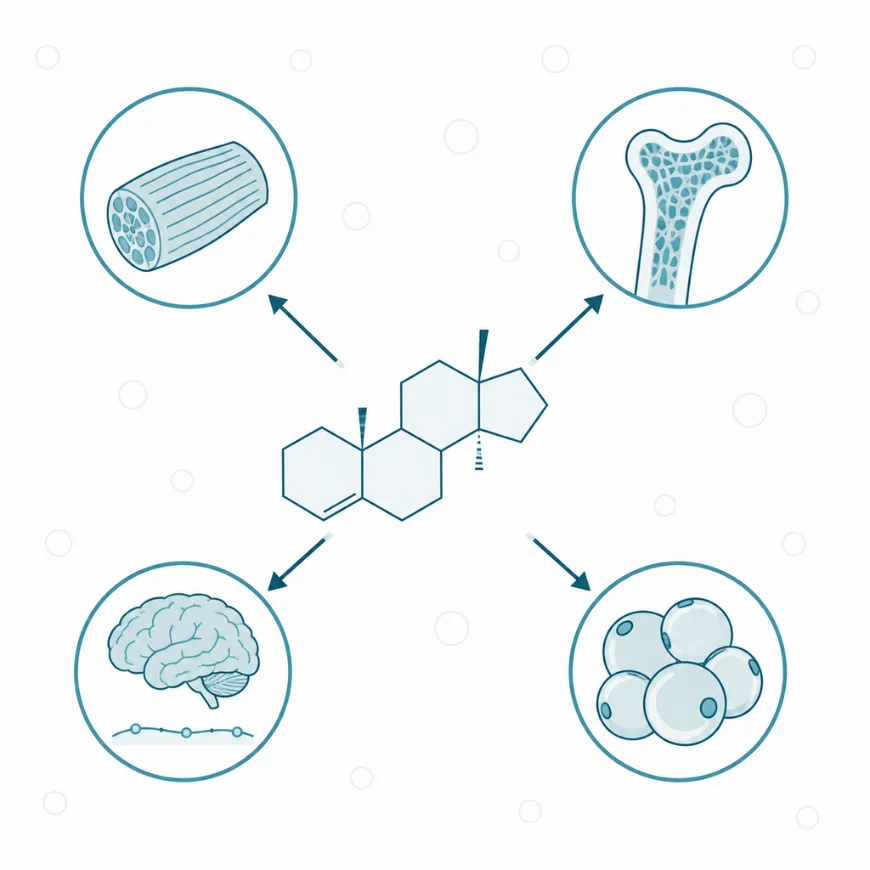
Niedobór daje objawy w czterech układach naraz — mięśniowym, kostnym, metabolicznym i ośrodkowym — żaden z nich nie jest swoisty.
3.2. Nadmiar – przyczyny i następstwa
Nadmiar testosteronu u dorosłego mężczyzny jest niemal zawsze pochodzenia zewnętrznego, a jego głównym źródłem pozostaje stosowanie steroidów anaboliczno-androgennych. Zjawisko ma skalę populacyjną i obejmuje dziesiątki milionów osób, z czego około 98% stanowią mężczyźni, w większości dotąd przed pięćdziesiątym rokiem życia [24]. Odległe skutki tej ekspozycji są dopiero opisywane.
Pierwszym następstwem jest wyłączenie własnej osi hormonalnej. Stałe wysokie stężenie androgenu tłumi wydzielanie gonadoliberyny i hormonu luteinizującego, a po odstawieniu preparatów hipogonadyzm bywa długotrwały i niekiedy nieodwracalny [24]. Do tego dochodzi toksyczność narządowa. Przy długotrwałej ekspozycji na dawki ponadfizjologiczne opisano kardiomiopatię i przyspieszony rozwój miażdżycy, a także uszkodzenie wątroby i nerek oraz niekorzystne zmiany w układzie mięśniowo-szkieletowym [24]. Osobno badana jest neurotoksyczność, z której wynikałoby wyższe ryzyko otępienia u starzejących się użytkowników, jednak dane w tym zakresie pozostają wstępne [24].
Nadmiar jatrogenny ma węższy zakres i inny obraz. Najczęstszym jego wykładnikiem jest wzrost hematokrytu, występujący przy każdej postaci leczenia i najsilniej wyrażony przy iniekcyjnych estrach hormonu [20]. Część testosteronu podanego z zewnątrz ulega ponadto aromatyzacji do estradiolu, co tłumaczy ginekomastię pojawiającą się mimo działania androgennego.
U kobiet nadmiar androgenów daje obraz odmienny, obejmujący hirsutyzm, trądzik i zaburzenia miesiączkowania, a jego przyczyny jajnikowe opisuje hasło o czynności endokrynnej jajników.
3.3. Rola testosteronu w patogenezie chorób
Testosteron bywa ogniwem mechanizmu chorobowego także wtedy, gdy jego stężenie mieści się w zakresie prawidłowym. Rozstrzyga wtedy nie ilość hormonu, lecz wrażliwość tkanki albo lokalna przemiana cząsteczki.
Najlepiej udokumentowanym przykładem takiego mechanizmu jest udział dihydrotestosteronu w chorobach gruczołu krokowego i mieszka włosowego. Osoby z wrodzonym niedoborem 5α-reduktazy typu 2 nie rozwijają rozrostu stercza ani łysienia typu męskiego, mimo prawidłowego stężenia testosteronu [10]. Czynnikiem sprawczym jest zatem pochodna hormonu, a nie hormon wyjściowy. Hamowanie tego enzymu lekami obniża stężenie dihydrotestosteronu bez istotnej zmiany testosteronu i właśnie na tym opiera się leczenie obu stanów.
Drugim przykładem jest sprzężenie z otyłością i zaburzeniami gospodarki węglowodanowej. Otyłość i dysglikemia hamują oś hormonalną głównie na piętrze podwzgórza, a pośrednikami tego hamowania są cytokiny prozapalne wywołujące zapalenie podwzgórza oraz zaburzona sygnalizacja leptyny i insuliny [22]. Obniżony testosteron sprzyja dalszemu przyrostowi tłuszczu trzewnego, przez co insulinooporność i hipogonadyzm nasilają się wzajemnie. W zespole metabolicznym niskie stężenie testosteronu jest więc równocześnie skutkiem i czynnikiem podtrzymującym, a nie osobną chorobą.
Trzeci przykład dotyczy kości. Osteoporoza u mężczyzn wiąże się ściślej ze stężeniem estradiolu niż testosteronu, ponieważ resorpcję kostną hamuje przede wszystkim sygnał estrogenowy. Poniżej pewnego progu stężenia estradiolu tempo ubytku masy kostnej i ryzyko złamania rosną [17]. Testosteron uczestniczy w tym mechanizmie jako substrat aromatazy, nie jako czynnik działający bezpośrednio.
Osobnym zagadnieniem pozostaje bezpieczeństwo sercowo-naczyniowe samego hormonu. W badaniu z randomizacją i podwójnie ślepą próbą wzięło udział 5246 mężczyzn w wieku 45–80 lat z hipogonadyzmem oraz chorobą sercowo-naczyniową lub wysokim jej ryzykiem. Leczenie testosteronem nie okazało się w nim gorsze od placebo pod względem częstości zgonu z przyczyn sercowo-naczyniowych, zawału serca i udaru niezakończonych zgonem [21]. Wynik ten rozstrzyga pytanie o istotny wzrost ryzyka, a nie o korzyść sercowo-naczyniową.
3.4. Modyfikacja behawioralna i dietetyczna
Stężenie testosteronu zmienia się pod wpływem czynników opisywalnych niezależnie od jakichkolwiek zaleceń, a ich wspólną cechą jest to, że działają na oś hormonalną, nie na sam gruczoł.
Czynnikiem o najlepiej udokumentowanym wpływie jest masa ciała. Redukcja masy ciała u mężczyzn z otyłością przywraca czynność osi hormonalnej i podnosi stężenie testosteronu, a wyrównanie cukrzycy działa w tym samym kierunku [22]. Wśród częstych przyczyn hipogonadyzmu jest to jedyna, która cofa się bez leczenia hormonalnego.
Drugim czynnikiem jest sen. W badaniu obserwacyjnym u starszych mężczyzn ilość snu nocnego okazała się niezależnym czynnikiem przewidującym poranne stężenie hormonu, a różnice w długości snu tłumaczyły część zmienności międzyosobniczej dotąd przypisywanej samemu wiekowi [23].
Trzecią grupę tworzą leki. Opioidy oraz duże dawki glikokortykosteroidów o działaniu zbliżonym do kortyzolu obniżają stężenie testosteronu, hamując wydzielanie gonadoliberyny i hormonu luteinizującego [3, 4]. Zmiana jest tu następstwem leczenia innej choroby, więc różni się od pozostałych czynników tym, że nie podlega wyborowi chorego.
Czwartym czynnikiem jest wiek, którego zmienić się nie da. Powolny spadek stężenia hormonu po czterdziestym roku życia jest zjawiskiem fizjologicznym i towarzyszy mu ubytek masy oraz jakości mięśni [35]. Tempo tego spadku różni się między osobami znacznie bardziej niż sam jego kierunek. Powiązane opracowania działu Zaleceń opisują postępowanie wynikające z tych zależności.
3.5. Wsparcie suplementacyjne
Testosteron jest jednym z najczęstszych celów reklamy suplementów, a ocena tych preparatów wymaga oddzielenia mechanizmu od deklaracji producenta. W analizie pięciu najpopularniejszych preparatów sprzedawanych w serwisie internetowym jako podnoszące testosteron znaleziono 19 różnych składników [25]. W piśmiennictwie dotyczącym dziesięciu najczęstszych z nich jedynie 19% prac dotyczyło ludzi, wobec 53% badań na zwierzętach i 15% badań in vitro [25]. Spośród 37 badań u ludzi wzrost stężenia hormonu opisano w 30%, a spadek w 3% [25]. Zestawienie obejmuje substancje mające karty w katalogu platformy, dla których opisano punkt uchwytu na wytwarzanie albo dostępność testosteronu.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Cynk | W komórkach Leydiga myszy dieta ubogocynkowa obniżała ekspresję transportera ZnT7, białka StAR oraz enzymów steroidogenezy i stężenie testosteronu w surowicy [32]. W metaanalizie badań z randomizacją u mężczyzn o obniżonej płodności cynk podawany z kwasem foliowym nie zmienił stężenia testosteronu [31] | ~ | A |
| Cholekalcyferol | Badany jako czynnik wpływający na steroidogenezę jądrową. W badaniu z randomizacją u 98 zdrowych mężczyzn z prawidłowym stężeniem wyjściowym nie zmienił stężenia testosteronu całkowitego [28] | ~ | B |
| Ashwagandha | Wyciąg z korzenia badany jako modulator osi hormonalnej. W badaniu z randomizacją i układem naprzemiennym u mężczyzn z nadwagą w wieku 40–70 lat stężenie testosteronu w ślinie wzrosło o 14,7% wobec placebo, bez różnicy w nasileniu zmęczenia i witalności [27] | ↑ | B |
| Kozieradka pospolita | Nasiona zawierające saponiny steroidowe. W przeglądzie piśmiennictwa dane o wzroście stężenia testosteronu całkowitego oceniono jako umiarkowane [26] | ↑ | B |
| Tongkat ali | Wyciąg z korzenia Eurycoma longifolia. W tym samym przeglądzie zaliczony do substancji o umiarkowanie udokumentowanym wpływie na stężenie testosteronu całkowitego [26] | ↑ | B |
| Buzdyganek | Wyciąg z Tribulus terrestris zawierający saponiny steroidowe. W przeglądzie piśmiennictwa działanie podnoszące stężenie testosteronu u mężczyzn uznano za niepotwierdzone [26] | ~ | B |
| Kwas D-asparaginowy | Aminokwas badany jako czynnik pobudzający wydzielanie hormonu luteinizującego. W badaniu z randomizacją u mężczyzn trenujących oporowo wyższa podaż obniżyła stężenie testosteronu całkowitego i wolnego [29], a w trzymiesięcznym badaniu z randomizacją stężenia hormonu nie zmieniła [30] | ↓ | B |
| DHEA | Androgen nadnerczowy przekształcany obwodowo w androstendion i testosteron. W rocznym badaniu z randomizacją u 225 osób w wieku 55–85 lat stężenie testosteronu wzrosło u kobiet, a u mężczyzn pozostało bez zmian [33] | ~ | B |
Z zestawienia wynika prawidłowość mechanistyczna. Substancje zmieniają stężenie testosteronu wtedy, gdy uzupełniają realny brak albo przesuwają sygnał w osi hormonalnej, a nie wtedy, gdy podaje się je osobie z prawidłową gospodarką androgenną. Dwa wiersze pokazują to najostrzej: witamina D nie zmieniła stężenia hormonu u zdrowych mężczyzn z prawidłową wartością wyjściową [28], a kwas D-asparaginowy przy wyższej podaży je obniżył zamiast podnieść [29]. Dawkowanie, łączenie i przeciwwskazania pozostają treścią kart w dziale Suplementy.
4. Uwagi praktyczne
4.1. Jak to zbadać
Testosteron oznacza się w surowicy krwi żylnej, a wynik zależy od warunków pobrania silniej niż w przypadku większości hormonów. Badaniem pierwszego rzutu jest stężenie testosteronu całkowitego w próbce pobranej rano i na czczo, oznaczone metodą o potwierdzonej dokładności, a rozpoznanie niedoboru wymaga powtórzenia tego pomiaru w drugiej porannej próbce [3, 4]. Wymóg powtórzenia wynika z rytmu dobowego oraz z wahań międzydobowych, przez które pojedynczy niski wynik nie rozstrzyga niczego.
Frakcję wolną oznacza się w dwóch sytuacjach: gdy stężenie całkowite leży blisko dolnej granicy zakresu prawidłowego oraz gdy istnieje stan zmieniający stężenie globuliny wiążącej hormony płciowe [3, 4]. Metodą odniesienia jest dializa równowagowa, a przy jej braku stosuje się wartość obliczoną ze stężenia całkowitego i stężenia globuliny, pamiętając o ograniczeniach takich wzorów [5]. Wskaźnik wolnych androgenów u mężczyzn nie jest metodą wiarygodną i wyniku nie zastępuje [5].
O podziale na postać pierwotną i wtórną rozstrzyga oznaczenie hormonu luteinizującego i folikulotropowego, wykonane razem z testosteronem [4]. Ten sam niedobór hormonu przy wysokich i przy niskich gonadotropinach oznacza bowiem dwie różne przyczyny. W wytycznych za próg rozpoznania przyjmowane są dla testosteronu całkowitego wartości rzędu 2,5–3,5 ng/ml, czyli 8,7–12,1 nmol/l [34]. Poszczególne dokumenty różnią się przy tym między sobą [34].
Wyniku nie interpretuje się w oderwaniu od stanu badanego. Ostra choroba, głodzenie i niedawna znaczna utrata masy ciała przejściowo obniżają stężenie hormonu, więc oznaczenie wykonane w takich warunkach opisuje sytuację chwilową, a nie stan podstawowy [3, 4, 22]. Zakresy referencyjne dla frakcji wolnej różnią się ponadto między laboratoriami, ponieważ oznaczenia nie zostały zharmonizowane [5, 6].
4.2. Na co zwrócić uwagę
Testosteron ma status lekopodobny. Jest substancją czynną produktów leczniczych wydawanych z przepisu lekarza, a jednocześnie figuruje w wykazach substancji zakazanych w sporcie [24]. Jego podanie wykrywa się tam pośrednio, przez stosunek testosteronu do epitestosteronu w moczu [11]. Decyzja o jego stosowaniu należy do lekarza, a nie do osoby oceniającej u siebie objawy.
Pierwsze nieporozumienie dotyczy związku hormonu z nastrojem i witalnością. W badaniu z randomizacją u mężczyzn po 65 roku życia roczne leczenie poprawiło nastrój w stopniu niewielkim i nie poprawiło witalności [14]. W badaniu ze stopniowaniem dawek zależności dawka-odpowiedź nie stwierdzono ani dla nastroju, ani dla sprawności wzrokowo-przestrzennej [13]. Obraz testosteronu jako hormonu energii i pewności siebie opiera się zatem na wnioskowaniu z dawek ponadfizjologicznych, przy których opisywane zmiany zachowania dotyczą mniejszości osób i mają charakter osobniczy [24].
Drugie nieporozumienie dotyczy założenia, że więcej znaczy lepiej. Wzrost stężenia hormonu podnosi hematokryt niezależnie od drogi podania [20]. Poprawa gęstości mineralnej kości nie przełożyła się zaś na mniejszą liczbę złamań, których w dużym badaniu z randomizacją było w grupie leczonej więcej niż w grupie placebo [15, 16]. Gęstość kości jest tu wskaźnikiem zastępczym, który dla tego hormonu okazał się zawodny.
Trzecie nieporozumienie dotyczy suplementów podnoszących testosteron. Wspólnym mianownikiem badań z randomizacją nad witaminą D, kwasem D-asparaginowym i dehydroepiandrosteronem jest brak wzrostu stężenia hormonu u mężczyzn, u których było ono prawidłowe, a przy wyższej podaży aminokwasu stężenie spadło [28, 29, 30, 33]. Najwyraźniej rozchodzą się mechanizm i klinika przy cynku, którego udział w steroidogenezie opisano w modelu zwierzęcym, a u ludzi zmiany stężenia testosteronu nie stwierdzono [31, 32]. Podaż substancji przesuwa stężenie hormonu tam, gdzie istnieje realny niedobór albo jawny punkt uchwytu w osi, a nie u osoby zdrowej [25, 26, 27].
Czwartym punktem jest różnica między stężeniem całkowitym a dostępnym. Ta sama wartość testosteronu całkowitego oznacza różną ilość hormonu czynnego, jeśli stężenie globuliny wiążącej jest odmienne, a metody oznaczania frakcji wolnej nie są zharmonizowane [5, 6].
Ograniczenia dowodowe wymagają osobnego zaznaczenia. Dane o receptorach błonowych i o szybkich odpowiedziach niegenomowych pochodzą w większości z linii komórkowych i nie zostały potwierdzone u człowieka [8]. Część mechanizmów działania androgenów w mięśniu, w tym udział komórek satelitowych i zależności ze szlakiem Notch, opisano w modelach zwierzęcych i komórkowych [9]. Bezpieczeństwo sercowo-naczyniowe leczenia oceniono w badaniu zaprojektowanym jako badanie nie mniejszej skuteczności, którego wynik wyklucza istotny wzrost ryzyka, a nie wykazuje korzyści [21]. Odległych następstw stosowania steroidów anaboliczno-androgennych nie znamy w pełni, ponieważ większość użytkowników nie osiągnęła jeszcze wieku, w którym ujawniałyby się skutki najpóźniejsze [24].
Treść hasła ma charakter edukacyjny i nie zastępuje porady lekarskiej ani nie stanowi zalecenia stosowania jakiejkolwiek substancji.