
1. Charakterystyka i anatomia
1.1. Definicja i nazewnictwo
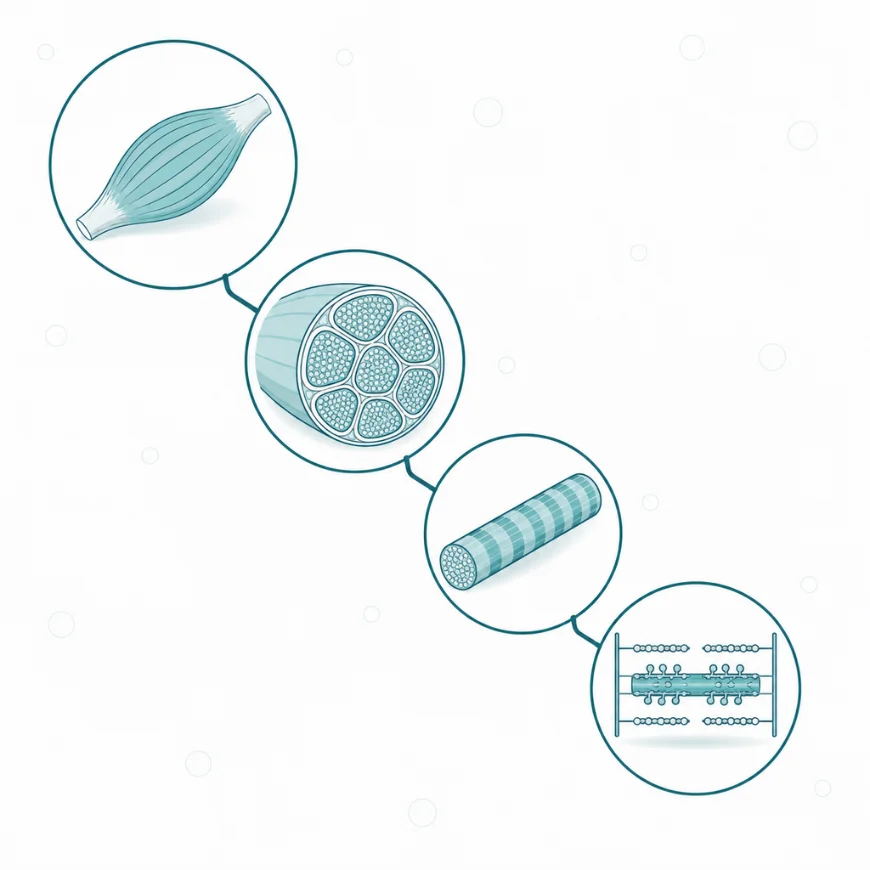
Mięsień szkieletowy (łac. musculus, ang. skeletal muscle) to narząd zbudowany z tkanki mięśniowej poprzecznie prążkowanej, należący do czynnej części układu ruchu. Jego podstawową jednostką jest włókno mięśniowe, czyli wydłużona komórka o wielu jądrach, powstała z połączenia wielu komórek prekursorowych. Włókna układają się równolegle w pęczki, a pęczki tworzą brzusiec, który przez ścięgna łączy się z kośćmi. Skurcz włókien przesuwa więc elementy szkieletu względem siebie albo utrzymuje je w stałym położeniu.
W klasyfikacji tkanek mięśnie szkieletowe stanowią jedną z trzech odmian tkanki mięśniowej, obok mięśnia sercowego i mięśni gładkich. Prążkowanie, czyli naprzemienne jasne i ciemne pasma widoczne w mikroskopie, wynika z regularnego ułożenia białek kurczliwych w powtarzalnych odcinkach zwanych sarkomerami. W 1954 roku dwa niezależne zespoły opisały ślizgowy model skurczu, w którym siłę wytwarza przesuwanie się nitek białkowych względem siebie [1, 2]. Model ten, uzupełniony później o budowę mostków poprzecznych, stanowi podstawę współczesnego opisu skurczu.
Mięsień szkieletowy bywa mylony z mięśniem sercowym, ponieważ oba są poprzecznie prążkowane. Różni je budowa komórki i sposób sterowania skurczem. Komórka mięśnia sercowego ma zwykle jedno lub dwa jądra i łączy się z sąsiednimi komórkami wstawkami, które przewodzą pobudzenie. Serce kurczy się dzięki temu rytmicznie i bez udziału woli. Włókno szkieletowe ma wiele jąder ułożonych tuż pod błoną komórkową i w zdrowym mięśniu kurczy się tylko wtedy, gdy pobudzi je neuron ruchowy. Mięśnie gładkie różnią się od obu brakiem prążkowania i wrzecionowatym kształtem komórek, a budują ściany naczyń, jelit i oskrzeli pod kontrolą autonomicznego układu nerwowego.
Nazwa obejmuje zarówno pojedynczy mięsień jako narząd anatomiczny, na przykład mięsień dwugłowy ramienia, jak i całą masę mięśni szkieletowych traktowaną jako jeden układ czynnościowy. W znaczeniu drugim mięsień szkieletowy jest największą tkanką organizmu. W badaniu rezonansem magnetycznym 468 dorosłych stanowił średnio 38% masy ciała u mężczyzn i 31% u kobiet [3]. Pojęcie nie obejmuje mięśnia sercowego ani mięśni gładkich, choć wszystkie trzy tkanki korzystają z tych samych rodzin białek kurczliwych.
Znaczenie mięśnia szkieletowego wykracza poza ruch. Mięśnie są obok wątroby i jelit głównym odbiorcą glukozy z posiłku [53], stanowią główny magazyn aminokwasów organizmu [5] i wydzielają cząsteczki sygnałowe nazywane miokinami [6]. Słabsza siła mięśni wiąże się z wyższą umieralnością niezależnie od innych czynników ryzyka [7]. Stan mięśni szkieletowych jest więc w medycynie wskaźnikiem zdrowia metabolicznego i sprawności, a nie tylko cechą narządu ruchu.
1.2. Rozmieszczenie i masa
Mięśnie szkieletowe nie tworzą jednego narządu w jednym miejscu, lecz rozproszony układ wielu odrębnych mięśni obecnych w każdej okolicy ciała. Większość z nich łączy się obu końcami z kośćmi i przerzuca się nad stawem, który porusza. Część mięśni ma jednak przyczepy nietypowe. Mięśnie mimiczne twarzy kończą się w skórze, a mięśnie języka i zewnętrzne mięśnie oka poruszają narządy niezwiązane ze szkieletem kończyn.
Przyczep początkowy leży zwykle bliżej osi ciała, a przyczep końcowy dalej od niej. Podczas ruchu nieruchomy może jednak pozostawać każdy z nich. Przy podciąganiu się na drążku ręce pozostają w miejscu, a ku nim przesuwa się tułów. Mięśnie grzbietu i brzucha stabilizują tułów, mięśnie kończyn wykonują ruchy lokomocyjne i chwytne, a przepona i mięśnie międzyżebrowe wentylują płuca. Oddychanie zależy więc od tej samej tkanki co chodzenie.
Masa mięśni szkieletowych różni się między płciami i zmienia się z wiekiem. W badaniu całego ciała rezonansem magnetycznym mężczyźni mieli średnio 33 kg mięśni, a kobiety 21 kg [3]. Różnica między płciami była większa w górnej połowie ciała (40%) niż w dolnej (33%). Względna masa mięśni zaczynała się zmniejszać już w trzeciej dekadzie życia, natomiast wyraźny spadek masy bezwzględnej pojawiał się dopiero pod koniec piątej dekady. Ubytek dotyczył głównie mięśni kończyn dolnych [3].
Masa ciała i wzrost wyjaśniały w tym samym badaniu około połowy zmienności masy mięśniowej. Zależność od masy ciała nie była liniowa, ponieważ u osób cięższych przyrost wagi coraz słabiej wynikał z przyrostu mięśni [3]. Z tego powodu sama masa ciała nie mówi, ile w organizmie jest tkanki mięśniowej.
1.3. Budowa makroskopowa i podział na części
Pojedynczy mięsień szkieletowy ma część kurczliwą, czyli brzusiec, oraz części przenoszące siłę, czyli ścięgna. Ścięgno zbudowane jest z gęstej tkanki łącznej bogatej w kolagen i nie kurczy się. Gdy ścięgno ma postać płaskiej blachy, nazywa się rozcięgnem.
Tkanka łączna tworzy w mięśniu trzy warstwy osłonek. Namięsna otacza cały mięsień, omięsna dzieli go na pęczki, a śródmięsna otula każde pojedyncze włókno. Osłonki te przechodzą płynnie w ścięgno, dlatego siła wytworzona w głębi brzuśca trafia do kości bez utraty ciągłości struktury. W omięsnej biegną naczynia krwionośne i nerwy, które docierają stamtąd do poszczególnych włókien. Całą grupę mięśni otacza dodatkowo powięź, która oddziela ją od sąsiednich grup i tworzy przedziały powięziowe.
Siłę i szybkość mięśnia wyznacza w dużej mierze ułożenie włókien względem osi ścięgna. W mięśniu wrzecionowatym włókna biegną równolegle do kierunku pociągania i są długie. Taki mięsień skraca się na dużym odcinku i szybko, ale jego przekrój poprzeczny jest ograniczony. W mięśniu pierzastym krótkie włókna przyczepiają się skośnie do ścięgna biegnącego przez środek brzuśca. W tej samej objętości mieści się wtedy więcej włókien, więc mięsień rozwija większą siłę kosztem zakresu skracania.
Mięśnie rzadko pracują pojedynczo. Mięśnie działające w tym samym kierunku nazywa się synergistami, a mięśnie o działaniu przeciwnym antagonistami. Precyzyjny ruch wymaga jednoczesnego skurczu jednych i kontrolowanego rozluźnienia drugich. O kształcie ruchu decyduje zatem nie pojedynczy mięsień, lecz układ mięśni sterowany wspólnie przez rdzeń kręgowy i mózg.
1.4. Budowa mikroskopowa
Włókno mięśniowe jest jedną komórką o długości sięgającej wielu centymetrów, otoczoną błoną zwaną sarkolemą i leżącą na niej blaszką podstawną. Jądra włókna leżą na obwodzie, tuż pod sarkolemą, a środek komórki wypełniają miofibryle. Między miofibrylami znajdują się mitochondria, ziarna glikogenu i mioglobina, czyli białko magazynujące tlen.
Miofibryla składa się z szeregu sarkomerów, odcinków ograniczonych z obu stron liniami Z. Od linii Z odchodzą nitki cienkie, zbudowane z aktyny oraz białek regulacyjnych tropomiozyny i troponiny. W środku sarkomeru leżą nitki grube z miozyny, której główki wystają na boki i mogą wiązać się z aktyną. Obszar nitek grubych tworzy ciemny prążek A, a obszar samych nitek cienkich jasny prążek I. Powtarzanie się tych prążków w tysiącach sarkomerów daje obraz poprzecznego prążkowania.
Trzecim układem nitek jest tytyna, olbrzymie białko sprężyste. Jedna cząsteczka tytyny rozciąga się od linii Z do środka sarkomeru i utrzymuje nitki grube w osi [8]. Podczas rozciągania mięśnia tytyna wytwarza napięcie bierne, które chroni sarkomer przed nadmiernym rozciągnięciem. Część badaczy przypisuje jej także udział w wytwarzaniu siły czynnej, lecz ta rola pozostaje przedmiotem dyskusji [8].
Skurcz wymaga szybkiego przekazania sygnału z powierzchni komórki do wszystkich miofibryli. Służą temu kanaliki poprzeczne, czyli kanaliki T, będące wpukleniami sarkolemy w głąb włókna. Każdy kanalik T przylega do dwóch zbiorników siateczki sarkoplazmatycznej, magazynu jonów wapnia, i tworzy z nimi triadę. W triadzie białko czujnikowe w błonie kanalika styka się bezpośrednio z kanałem uwalniającym wapń w błonie siateczki [9].
Sarkolemę łączy z wnętrzem komórki i z macierzą zewnątrzkomórkową zespół białek, którego kluczowym składnikiem jest dystrofina. Dystrofina stanowi około 0,002% białek mięśnia poprzecznie prążkowanego [10]. Mimo tak małej ilości jej brak czyni włókno podatnym na uszkodzenie przy każdym skurczu [11]. Pod blaszką podstawną, lecz na zewnątrz sarkolemy, leżą komórki satelitarne, spoczynkowe komórki macierzyste mięśnia opisane w 1961 roku [12, 13]. Komórki satelitarne mięśnia to inna populacja niż komórki satelitarne zwojów nerwowych, które należą do gleju i mają jedynie wspólną nazwę wynikającą z położenia przy innej komórce.
1.5. Typy włókien mięśniowych
Włókna jednego mięśnia nie są jednakowe. Różnią się szybkością skurczu, sposobem pozyskiwania energii i odpornością na zmęczenie. Najlepszym markerem typu włókna jest izoforma łańcucha ciężkiego miozyny, czyli wariant białka, od którego zależy tempo rozkładu adenozynotrifosforanu (ATP), głównego nośnika energii w komórce, w główce miozyny [14].
W mięśniach tułowia i kończyn człowieka występują trzy główne typy włókien. Włókna typu I kurczą się wolno, mają dużo mitochondriów i mioglobiny oraz gęstą sieć naczyń włosowatych, więc pracują długo na przemianach tlenowych. Włókna typu IIx kurczą się najszybciej i czerpią energię głównie z glikolizy beztlenowej, dlatego szybko się męczą. Włókna typu IIa zajmują położenie pośrednie. Czwarty typ, IIb, obecny w mięśniach gryzoni, w mięśniach kończyn człowieka praktycznie nie występuje [14]. Różnice obejmują nie tylko miozynę, lecz wszystkie układy włókna: pobudliwość błony, uwalnianie wapnia i zaopatrzenie energetyczne [14].
Trzy typy włókien różnią się szybkością skurczu, źródłem energii, wyposażeniem w mitochondria i męczliwością.
| Cecha | Typ I | Typ IIa | Typ IIx |
| Szybkość skurczu | wolna | szybka | najszybsza |
| Główne źródło energii | przemiany tlenowe | tlenowe i glikoliza | glikoliza beztlenowa |
| Mitochondria i mioglobina | dużo | średnio | mało |
| Odporność na zmęczenie | wysoka | pośrednia | niska |
Proporcja typów włókien różni się między mięśniami i między ludźmi. Tożsamość włókna ustala się w rozwoju zarodkowym, a potem modyfikują ją aktywność nerwu ruchowego i hormony [14]. Wzorzec pobudzeń nerwowych jest głównym czynnikiem przestawiającym typ włókna, na przykład w kierunku bardziej tlenowym przy długotrwałej pracy. Mięsień nie ma zatem stałego składu, lecz dostosowuje go do zadań, jakie wykonuje.

Włókna wolne i szybkie różnią się liczbą mitochondriów, ukrwieniem i źródłem energii.
1.6. Unaczynienie i unerwienie
Tętnice wchodzą do mięśnia zwykle w jednym lub kilku miejscach i rozgałęziają się w omięsnej. Każde włókno otacza sieć naczyń włosowatych biegnących w śródmięsnej, gęstsza wokół włókien typu I [14]. Podczas pracy naczynia mięśnia rozszerzają się, dzięki czemu przepływ krwi rośnie wielokrotnie w stosunku do spoczynku.
Unerwienie ruchowe pochodzi od neuronów ruchowych, których ciała leżą w rogach przednich rdzenia kręgowego albo w jądrach nerwów czaszkowych. Akson jednego neuronu rozgałęzia się i unerwia wiele włókien rozproszonych w obrębie mięśnia. Neuron wraz ze wszystkimi unerwianymi przez siebie włóknami tworzy jednostkę motoryczną, której włókna należą do tego samego typu. W mięśniach wykonujących precyzyjne ruchy, na przykład w mięśniach gałki ocznej, jednostki są małe. W dużych mięśniach kończyn dolnych jeden neuron steruje znacznie większą liczbą włókien.
Neuron przekazuje pobudzenie na włókno w złączu nerwowo-mięśniowym, gdzie uwalnia acetylocholinę działającą na receptory w błonie włókna. Przeciwciała przeciw tym receptorom są przyczyną miastenii. Mięsień ma również unerwienie czuciowe. Wrzeciona mięśniowe mierzą długość mięśnia, narządy ścięgniste mierzą napięcie ścięgna, a wolne zakończenia nerwowe reagują na metabolity i ucisk. Włókna współczulne unerwiają naczynia mięśnia i regulują ich średnicę.
1.7. Rozwój komórek mięśni szkieletowych
Mięśnie szkieletowe tułowia i kończyn wywodzą się z somitów, parzystych odcinków mezodermy leżących po obu stronach zawiązka kręgosłupa. Z części somitu zwanej miotomem powstają komórki prekursorowe mięśni. Część z nich wędruje do zawiązków kończyn i tam tworzy mięśnie kończyn.
O tym, że komórka stanie się mięśniową, decydują miogenne czynniki regulacyjne: Myf5, MyoD, miogenina i MRF4 [15]. Są to czynniki transkrypcyjne, czyli białka włączające geny swoiste dla mięśnia. Rolę nadrzędną MyoD ujawniło doświadczenie z 1987 roku, w którym wprowadzenie jednego genu MyoD do fibroblastów przekształciło je w mioblasty [16]. Mioblasty przestają się dzielić, ustawiają się w szereg i zlewają błonami w wielojądrowe cewki mięśniowe. Z cewek dojrzewają włókna, a ich wielojądrowość jest bezpośrednim śladem tej fuzji.
Część komórek prekursorowych nie wchodzi do włókien i pozostaje pod blaszką podstawną jako komórki satelitarne. Rozpoznaje się je po obecności czynnika transkrypcyjnego Pax7 [13]. W spoczynku komórki satelitarne nie dzielą się. Po uszkodzeniu włókna aktywują się, namnażają, a następnie zlewają z uszkodzonym włóknem albo tworzą nowe. Komórki satelitarne są niezbędne do regeneracji mięśnia szkieletowego [17]. Mięsień dorosłego człowieka zachowuje więc zdolność odbudowy, której mięsień sercowy w podobnym zakresie nie ma.
2. Funkcje mięśni szkieletowych
2.1. Funkcje podstawowe
2.1.1. Skurcz i ruch
W spoczynku stężenie wolnych jonów wapnia wewnątrz włókna jest niskie, a tropomiozyna zasłania na aktynie miejsca, z którymi mogłyby się związać główki miozyny. Włókno pozostaje rozluźnione, choć zawiera cały aparat potrzebny do skurczu. Bodźcem do skurczu jest potencjał czynnościowy przekazany z neuronu ruchowego w złączu nerwowo-mięśniowym.
Potencjał czynnościowy rozchodzi się po sarkolemie i wnika w głąb włókna kanalikami T. W błonie kanalika wyczuwa go receptor dihydropirydynowy, czyli kanał wapniowy działający w mięśniu szkieletowym jako czujnik napięcia. Receptor ten jest mechanicznie sprzężony z receptorem rianodynowym RyR1, kanałem w błonie siateczki sarkoplazmatycznej [18]. Zmiana kształtu czujnika otwiera kanał RyR1 i jony wapnia wypływają z siateczki do cytoplazmy. Uwolniony wapń wiąże się z troponiną C na nitkach cienkich [9]. Troponina zmienia wtedy położenie tropomiozyny i odsłania miejsca wiązania na aktynie.
Główki miozyny przyłączają się do odsłoniętej aktyny i tworzą tak zwane mostki poprzeczne. Każda główka wykonuje ruch wiosłowy, który przesuwa nitkę cienką o niewielki odcinek w stronę środka sarkomeru. Następnie nowa cząsteczka ATP odłącza główkę od aktyny, a rozkład ATP napina główkę do kolejnego cyklu. Cykl powtarza się, dopóki w cytoplazmie utrzymuje się wysokie stężenie wapnia. Nitki nie zmieniają długości, tylko wsuwają się między siebie, więc linie Z zbliżają się i sarkomer się skraca [1, 2].
Rozkurcz również wymaga energii. Pompa wapniowa siateczki sarkoplazmatycznej, zwana SERCA, przenosi jony wapnia z powrotem do zbiorników kosztem ATP [19]. Gdy stężenie wapnia spada, tropomiozyna ponownie zasłania aktynę i mostki przestają się tworzyć. Mięsień zużywa zatem ATP zarówno do wytworzenia siły, jak i do jej wyłączenia.
Siła całego mięśnia zależy od liczby pobudzonych jednostek motorycznych i od częstotliwości ich pobudzeń. Przy słabym wysiłku układ nerwowy włącza najpierw małe jednostki złożone z włókien typu I, a przy rosnącym oporze dołącza jednostki coraz większe. Szybkie pobudzenia jednej jednostki nakładają się na siebie, bo kolejny impuls przychodzi, zanim wapń zdąży wrócić do siateczki. Dzięki temu ten sam mięsień może wykonać zarówno delikatny ruch palców, jak i skurcz unoszący cały ciężar ciała.
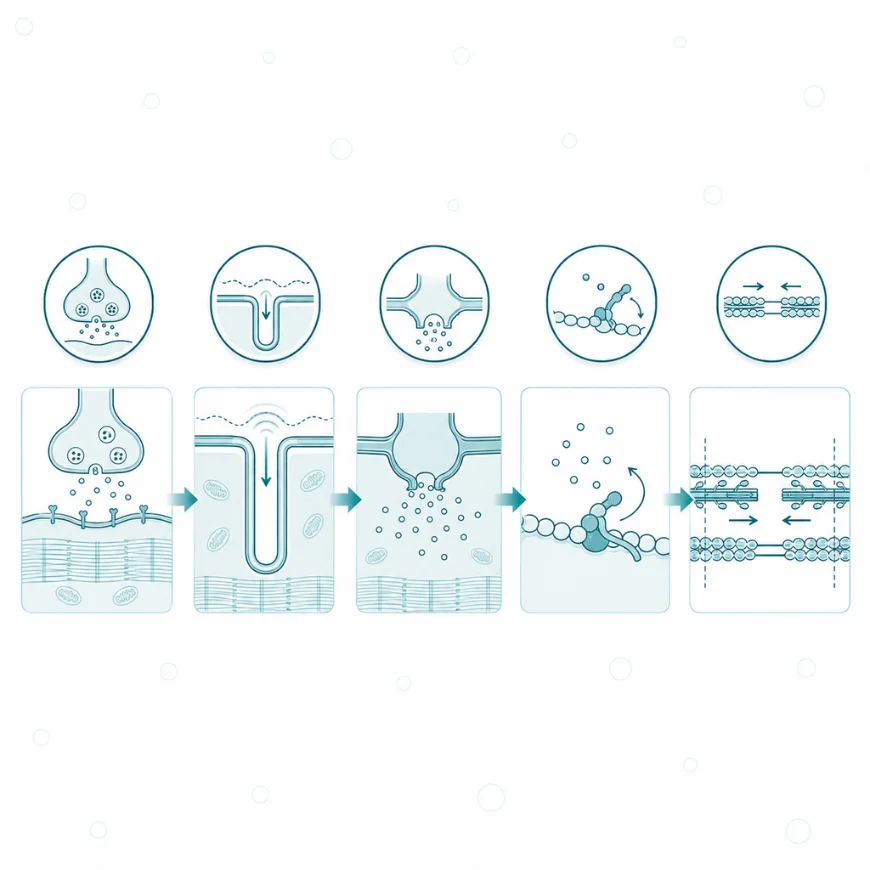
Sprzężenie elektromechaniczne przekłada potencjał czynnościowy na skurcz w pięciu krokach. Kluczowy jest wyrzut wapnia z magazynu wewnątrzkomórkowego.
2.1.2. Utrzymanie postawy
Utrzymanie wyprostowanej postawy wymaga stałej, niskiej aktywności mięśni przeciwdziałających sile ciężkości. Pracują przy tym głównie mięśnie grzbietu, pośladków, ud i łydek. Mięśnie te zawierają dużo włókien typu I, które długo utrzymują napięcie bez zmęczenia [14].
Stan wyjściowy to równowaga, w której środek ciężkości ciała leży nad podstawą stóp. Każde odchylenie tułowia rozciąga mięśnie po jednej stronie ciała. Rozciągnięcie pobudza wrzeciona mięśniowe, a sygnał z nich trafia włóknami czuciowymi do rdzenia kręgowego. Tam zakończenia czuciowe pobudzają bezpośrednio neurony ruchowe tego samego mięśnia, bez udziału mózgu. Mięsień kurczy się i przywraca położenie ciała. Ten łuk odruchowy działa w ułamku sekundy i nie wymaga świadomej uwagi.
Nad odruchami rdzeniowymi pracuje sterowanie ośrodkowe. Informacje z narządu równowagi, wzroku i czucia głębokiego zbiegają się w pniu mózgu i móżdżku, które dostosowują napięcie mięśni do położenia ciała. Postawa jest więc stanem czynnym, a nie biernym oparciem na kościach.
2.1.3. Wytwarzanie ciepła
Mięsień szkieletowy zamienia na pracę mechaniczną tylko część energii zużytego ATP. Reszta rozprasza się jako ciepło, dlatego wysiłek fizyczny podnosi temperaturę ciała. Przy dużej masie mięśni ten uboczny produkt pracy staje się ważnym źródłem ciepła dla całego organizmu.
W zimnie mięśnie wytwarzają ciepło celowo. Drżenie mięśniowe to szybkie, niezsynchronizowane skurcze włókien, które nie przesuwają kości, lecz zużywają ATP i uwalniają energię w postaci ciepła. Drugi sposób nie wymaga skurczu. Białko sarkolipina wiąże się z pompą SERCA i sprawia, że pompa rozkłada ATP bez pełnego przeniesienia jonów wapnia. Wapń wraca do cytoplazmy przez kanał RyR1, więc powstaje tak zwany cykl jałowy: pompa wielokrotnie przenosi te same jony, a energia ATP uwalnia się jako ciepło [19].
Myszy pozbawione sarkolipiny nie utrzymywały temperatury ciała 37 °C w temperaturze otoczenia 4 °C i szybciej przybierały na wadze na diecie wysokotłuszczowej [19]. Dane te pochodzą z modeli mysich, a udział sarkolipiny w termogenezie bez drżenia u człowieka pozostaje przedmiotem badań. Z danych zwierzęcych wynika hipoteza, że mięsień szkieletowy może regulować wydatek energetyczny także w spoczynku.
2.1.4. Wychwyt i magazynowanie glukozy
Mięsień szkieletowy jest największym narządem organizmu pod względem masy i głównym regulatorem stężenia glukozy we krwi [4]. W badaniu z cewnikowaniem naczyń mięśnie całego ciała pobrały w ciągu 5 godzin po posiłku mieszanym około 30% spożytych węglowodanów, a narządy jamy brzusznej około 39% [53]. Glukoza wnika do włókna przez transporter glukozy typu 4 (GLUT4), białko błonowe przechowywane w spoczynku w pęcherzykach wewnątrz komórki [20]. Wychwyt zależy więc od tego, ile transportera znajduje się w danej chwili na powierzchni włókna.
Po posiłku rośnie stężenie insuliny we krwi. Insulina wiąże się z receptorem na sarkolemie i uruchamia szlak sygnałowy, który przesuwa pęcherzyki z GLUT4 do błony komórkowej i kanalików T. Transporter wpuszcza glukozę do włókna, gdzie zostaje ona zużyta albo zmagazynowana jako glikogen. Stężenie glukozy we krwi wraca w ten sposób do wartości wyjściowej.
Skurcz mięśnia przemieszcza GLUT4 do błony niezależnie od insuliny. Sygnałem są zmiany towarzyszące pracy: wzrost stężenia wapnia, aktywacja kinazy aktywowanej przez AMP (AMPK), która wyczuwa niedobór energii oraz tlenek azotu [20]. Regularny wysiłek zwiększa ponadto ilość GLUT4 w mięśniu i jego zapasy glikogenu [20]. Pracujący mięsień pobiera więc glukozę nawet wtedy, gdy odpowiedź na insulinę jest osłabiona. Oporność mięśni na insulinę pozostaje jednak jednym z głównych ogniw insulinooporności całego organizmu [4].
2.1.5. Rezerwuar aminokwasów
Białka mięśni szkieletowych stanowią największy zasób białka w organizmie. Białko to nie jest nieruchomym magazynem, bo w każdej chwili część cząsteczek powstaje, a część ulega rozkładowi. Taka ciągła wymiana pozwala mięśniowi oddawać aminokwasy innym narządom, gdy ich podaż z przewodu pokarmowego ustaje.
Mięsień jest głównym rezerwuarem aminokwasów, który podtrzymuje syntezę białek w narządach niezbędnych do życia w okresach bez wchłaniania aminokwasów z jelit [5]. W czasie głodu, ciężkiej choroby albo urazu rozpad białek mięśniowych przeważa nad ich syntezą. Uwolnione aminokwasy trafiają z krwią do wątroby, która wykorzystuje je jako substraty glukoneogenezy, czyli wytwarzania glukozy z substancji niecukrowych [5].
Rozpad białek mięśniowych podtrzymuje więc czynność narządów życiowych kosztem masy mięśni. Ta sama cecha ma też skutek niekorzystny. Mała masa mięśniowa oznacza mniejszą rezerwę na wypadek choroby, a przewlekły katabolizm prowadzi do wyniszczenia opisanego w chorobach nowotworowych i przewlekłych [5].
2.2. Czynność wydzielnicza i endokrynna
Mięsień szkieletowy jest także narządem wydzielniczym. Cytokiny i inne peptydy wytwarzane i uwalniane przez włókna mięśniowe, działające na sam mięsień, na tkanki sąsiednie albo przez krew na odległe narządy, nazwano miokinami [6]. Wydzielina mięśnia obejmuje kilkaset peptydów, a wydzielanie wielu z nich zależy od skurczu [6].
Najlepiej poznaną miokiną jest interleukina 6, czyli IL-6, cytokina znana wcześniej głównie jako mediator stanu zapalnego. W badaniu, w którym zdrowi mężczyźni przez 5 godzin pracowali jedną nogą, stężenie IL-6 we krwi tętniczej wzrosło 19-krotnie [21]. Pracująca noga uwalniała IL-6, a spoczywająca nie, więc źródłem cytokiny był sam kurczący się mięsień. IL-6 z mięśnia nasila utlenianie tłuszczów i działa na wątrobę, tkankę tłuszczową i układ odpornościowy [6]. Autorzy badania łączą jej wydzielanie z utrzymaniem stężenia glukozy podczas długiego wysiłku [21].
Irysyna jest fragmentem białka błonowego FNDC5, odcinanym i uwalnianym do krwi. U myszy wysiłek zwiększał jej wydzielanie, a irysyna przekształcała białą tkankę tłuszczową w tkankę o cechach brunatnej i zwiększała wydatek energetyczny [22]. U ludzi dane są sporne. Przeciwciała z komercyjnych testów immunoenzymatycznych (ELISA) wiązały w surowicy białka niespecyficzne, co podważyło wcześniejsze pomiary irysyny [23]. Metoda spektrometrii mas wykazała natomiast obecność irysyny we krwi człowieka w stężeniu około 3,6 ng/ml, rosnącym do około 4,3 ng/ml po treningu interwałowym [24]. Rola irysyny w fizjologii człowieka pozostaje więc nieustalona.
Miostatyna hamuje wzrost samego mięśnia, czyli ogranicza masę narządu, który ją wytwarza. Myszy pozbawione genu miostatyny miały mięśnie 2–3 razy cięższe niż zwierzęta prawidłowe, co wynikało zarówno z przerostu, jak i ze zwiększenia liczby włókien [25]. U człowieka mutację genu miostatyny opisano u dziecka z wyraźnym przerostem mięśni [26]. Mięsień wytwarza też czynnik neurotroficzny pochodzenia mózgowego, czyli BDNF, białko wspierające przeżycie neuronów. Po wysiłku ilość BDNF w mięśniu człowieka rosła, lecz białko nie przedostawało się do krwi, a w samym mięśniu nasilało spalanie tłuszczów [27].
Cztery najlepiej opisane miokiny różnią się bodźcem wydzielania, działaniem i jakością danych u ludzi.
| Miokina | Bodziec wydzielania | Działanie główne | Dane u ludzi |
| IL-6 | skurcz, długi wysiłek | utlenianie tłuszczów, działanie na wątrobę i tkankę tłuszczową | pomiary bezpośrednie w mięśniu i krwi |
| Irysyna | wysiłek (u myszy) | brunatnienie tkanki tłuszczowej (u myszy) | sporne, zależne od metody pomiaru |
| Miostatyna | stała ekspresja w mięśniu | hamowanie wzrostu mięśnia | mutacja u człowieka z przerostem |
| BDNF | skurcz | utlenianie tłuszczów w samym mięśniu | nie przechodzi do krwi |
Pojęcie miokiny obejmuje więc cząsteczki o bardzo różnym zasięgu, od działających tylko miejscowo po krążące we krwi. Wydzielanie wielu miokin zależy od skurczu, dlatego mała aktywność fizyczna zmienia profil wydzielniczy mięśnia. Autorzy przeglądu przedstawiają to jako hipotetyczne ogniwo między siedzącym trybem życia a chorobami przewlekłymi [6].
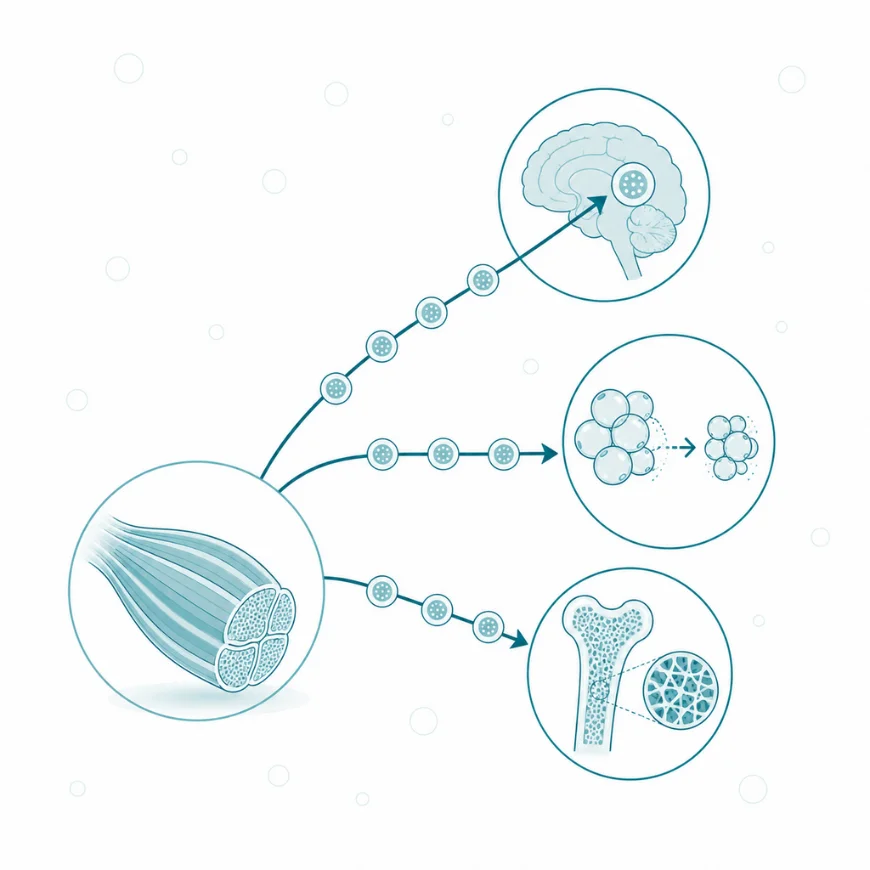
Kurczący się mięsień wydziela miokiny działające na mózg, tkankę tłuszczową i kość. Ruch jest sygnałem o charakterze endokrynnym.
2.3. Regulacja czynności narządu
Masa i siła mięśnia szkieletowego wynikają z bilansu dwóch stale zachodzących procesów: syntezy i rozpadu białek. Gdy synteza przeważa, mięsień rośnie, a gdy przeważa rozpad, zanika. Na ten bilans wpływają sygnały nerwowe, obciążenie mechaniczne, dostępność aminokwasów i hormony.
Sygnał nerwowy steruje nie tylko skurczem, lecz także charakterem włókien. Wzorzec pobudzeń docierających z neuronu ruchowego uruchamia we włóknie szlaki sygnałowe, które zmieniają ekspresję izoform miozyny i enzymów metabolicznych [14]. Mięsień pozbawiony unerwienia traci więc nie tylko zdolność skurczu, ale też swoją strukturę.
Obciążenie mechaniczne, aminokwasy z posiłku i insulina pobudzają syntezę białek mięśniowych. Sygnały te zbiegają się we włóknie na kompleksie mTORC1, kinazie, która uruchamia produkcję białek w rybosomach [28]. Rozpad białek zachodzi głównie w układzie ubikwityna-proteasom. W tym szlaku białko przeznaczone do rozkładu zostaje oznaczone łańcuchem ubikwityny i trawione przez proteasom. W wielu modelach zaniku mięśni u zwierząt wzrastała ekspresja dwóch ligaz ubikwitynowych, MuRF1 i MAFbx, a myszy pozbawione którejkolwiek z nich były odporne na zanik [29]. Obie ligazy uznaje się za wspólne ogniwo różnych postaci zaniku, choć dane pochodzą głównie z badań na zwierzętach.
Cztery hormony o największym wpływie na mięsień różnią się działaniem, kierunkiem i podstawą dowodową.
| Hormon | Główne działanie na mięsień | Kierunek | Podstawa |
| Insulina | przemieszczenie GLUT4 do błony, wychwyt glukozy | ↑ wychwyt glukozy | przegląd [4, 20] |
| Testosteron | wzrost przekroju i siły mięśni | ↑ masa i siła | badanie z randomizacją [30] |
| IGF-1 | hamowanie czynnika FOXO i genów zaniku | ↑ masa | przegląd [31] |
| Kortyzol | nasilenie rozpadu, hamowanie syntezy białek | ↓ masa | przegląd [28] |
W badaniu z randomizacją wysokie, ponadfizjologiczne dawki testosteronu zwiększały przekrój i siłę mięśni zdrowych mężczyzn nawet bez treningu, a w połączeniu z treningiem efekt był największy [30]. Insulinopodobny czynnik wzrostu 1, czyli IGF-1, pośredniczy w dużej części w działaniu hormonu wzrostu. IGF-1 hamuje czynnik transkrypcyjny FOXO, który włącza geny zaniku, i w ten sposób przeciwdziała katabolicznemu działaniu glikokortykoidów [31]. Kortyzol i inne glikokortykoidy nasilają rozpad w układzie ubikwityna-proteasom i hamują syntezę białek, a zanik obejmuje przede wszystkim szybkie włókna typu II [28]. Masa mięśnia jest więc wypadkową sygnałów anabolicznych i katabolicznych, a ich przewaga w jedną stronę zmienia ją w ciągu dni lub tygodni.
2.4. Oś mięsień-mózg
Mięsień i mózg wymieniają informacje dwiema drogami: nerwową i krwionośną. Droga nerwowa przekazuje do ośrodkowego układu nerwowego stan mięśnia w czasie rzeczywistym. Droga krwionośna przenosi cząsteczki wydzielane przez mięsień, które docierają do mózgu wolniej, ale działają dłużej.
Wolne zakończenia nerwowe w mięśniu wysyłają sygnały włóknami czuciowymi grupy III i IV, czyli cienkimi włóknami reagującymi na metabolity i odkształcenie. Sygnały te nasilają oddychanie i pracę serca, dostosowując dostawę tlenu do pracującego mięśnia [32]. Jednocześnie hamują pobudzenie neuronów ruchowych w rdzeniu kręgowym, co ogranicza wysiłek i składa się na zmęczenie pochodzenia ośrodkowego [32]. Sygnały z mięśnia wpływają więc na to, jak długo ośrodkowy układ nerwowy podtrzymuje intensywny wysiłek.
Droga krwionośna łączy mięsień z hipokampem, strukturą mózgu ważną dla pamięci. Przegląd badań opisuje katepsynę B, enzym wydzielany przez mięsień, który przenika przez barierę krew-mózg i zwiększa wytwarzanie BDNF w mózgu [33]. Wzrost BDNF sprzyja neurogenezie i uczeniu się, przy czym dowody pochodzą głównie z badań na zwierzętach. Mięsień wpływa więc na BDNF w mózgu pośrednio, przez inne wydzielane cząsteczki. IL-6 wydzielana przez mięsień może dodatkowo hamować ośrodkowe mechanizmy łaknienia [33].
Trzecia droga dotyczy kynureniny, metabolitu tryptofanu, który przenika do mózgu i w nadmiarze sprzyja zmianom typowym dla depresji. U myszy trenowany mięsień zwiększał ilość enzymów przekształcających kynureninę w kwas kynureninowy, który nie przechodzi przez barierę krew-mózg [34]. Zwierzęta z takim mięśniem były odporne na zmiany podobne do depresji wywołane przewlekłym stresem. Dane te pochodzą z modeli mysich, a u ludzi mechanizm opisywany jest jako jeden z możliwych szlaków działania wysiłku na nastrój [33].
3. Uszkodzenie i patologia
3.1. Następstwa uszkodzenia
Mięsień szkieletowy może zostać uszkodzony mechanicznie, metabolicznie albo przez utratę unerwienia. Skutek zależy od tego, czy zniszczeniu ulega samo włókno, czy jego źródło sterowania i odbudowy. Odpowiedzią na uszkodzenie jest regeneracja, zanik albo, przy rozległym rozpadzie, zaburzenia ogólnoustrojowe.
Drobne uszkodzenie włókna uruchamia regenerację. Do miejsca urazu napływają komórki odpornościowe, które usuwają martwe fragmenty i wydzielają sygnały pobudzające komórki satelitarne [17]. Komórki satelitarne namnażają się, różnicują w mioblasty i zlewają z uszkodzonym włóknem. Przy braku komórek satelitarnych regeneracja nie zachodzi [17].
Rozległy rozpad włókien nazywa się rabdomiolizą. Z rozerwanych komórek do krwi przechodzą mioglobina, potas i enzymy mięśniowe, w tym kinaza kreatynowa [35]. Mioglobina uszkadza kanaliki nerkowe i może wywołać ostre uszkodzenie nerek, a nagły wzrost potasu grozi zaburzeniami rytmu serca [35]. Przyczyną bywają zmiażdżenia, długie unieruchomienie w jednej pozycji, skrajny wysiłek, niektóre leki i zatrucia [35].
Utrata unerwienia prowadzi do szybkiego zaniku, ponieważ włókno bez sygnału nerwowego nie utrzymuje syntezy białek na dawnym poziomie. W stwardnieniu zanikowym bocznym obumieranie neuronów ruchowych powoduje postępujący zanik i osłabienie mięśni. Pierwotna przyczyna nie leży wtedy w samym mięśniu, lecz w utracie źródła sterowania.
Zanik z bezczynności pojawia się szybko. Nawet krótkie okresy zmniejszonej aktywności obniżają masę i siłę mięśni, tempo syntezy białek mięśniowych oraz wrażliwość na insulinę [36]. Podczas unieruchomienia rozpad białek przyspiesza, a synteza zwalnia, przy czym udział w rozpadzie mają kalpainy i autofagia związane ze stresem oksydacyjnym [37]. W metaanalizie badań z randomizacją dodatkowa podaż białka lub aminokwasów nie chroniła przed zanikiem mięśni wywołanym unieruchomieniem [38]. Wynik ten jest zgodny z hipotezą, że o zaniku decyduje głównie brak skurczu, a nie niedobór substratu.
3.2. Choroby mięśni szkieletowych
Choroby mięśni szkieletowych dzielą się na pierwotne, w których wada leży w samym włóknie, i wtórne, w których mięsień cierpi z powodu choroby innego narządu lub leczenia. Wspólnym obrazem jest osłabienie i ubytek masy, lecz mechanizm i przebieg są różne.
Sarkopenia według konsensusu Europejskiej Grupy Roboczej ds. Sarkopenii u Osób Starszych (EWGSOP2) jest chorobą mięśni, czyli niewydolnością mięśniową narastającą w ciągu życia [39]. Podstawowym kryterium jest mała siła mięśni. Rozpoznanie potwierdza mała ilość lub jakość tkanki mięśniowej, a słaba sprawność fizyczna oznacza postać ciężką [39]. Sarkopenia występuje najczęściej u osób starszych, lecz może pojawić się wcześniej, na przykład w przebiegu chorób przewlekłych.
Kacheksja nowotworowa to zespół z postępującą utratą masy mięśni szkieletowych, z utratą tkanki tłuszczowej lub bez niej, której nie da się w pełni odwrócić standardowym leczeniem żywieniowym [40]. Kryterium rozpoznania jest utrata ponad 5% masy ciała albo ponad 2% u osób ze wskaźnikiem masy ciała poniżej 20 kg/m² lub z sarkopenią [40]. Mechanizmem jest ujemny bilans białkowo-energetyczny, łączący zmniejszone spożycie z zaburzonym metabolizmem.
Dystrofia mięśniowa Duchenne’a jest chorobą genetyczną wywołaną mutacjami genu dystrofiny, które znoszą wytwarzanie tego białka w mięśniu [11]. W 1987 roku zidentyfikowano dystrofinę jako produkt genu odpowiedzialnego za tę chorobę i wykazano jej brak w mięśniach chorych chłopców [10]. Włókna bez dystrofiny łatwiej ulegają uszkodzeniu przy skurczu. Stopniowo zastępuje je tkanka łączna i tłuszczowa, co prowadzi do utraty chodzenia, niewydolności oddechowej i kardiomiopatii [11].
Miopatie polekowe najczęściej wiążą się z glikokortykoidami i statynami. Miopatia posteroidowa obejmuje głównie szybkie włókna typu II i wynika z nasilonego rozpadu i zahamowanej syntezy białek [28]. Ciężka miopatia statynowa ze znacznym wzrostem kinazy kreatynowej dotyczy od 1 na 1000 do 1 na 10 000 osób przyjmujących standardowe dawki [41]. Bóle mięśni zgłasza wprawdzie 7–29% pacjentów w rejestrach i badaniach obserwacyjnych [41], ale w metaanalizie badań z podwójnie ślepą próbą tylko jedno na 15 takich zgłoszeń w pierwszym roku leczenia wynikało z działania statyny [42]. Pozostałe dolegliwości występowały równie często w grupie placebo.
Mięsień szkieletowy uczestniczy też w chorobach metabolicznych. Oporność mięśni na insulinę jest wczesnym ogniwem cukrzycy typu 2, bo narząd będący głównym regulatorem stężenia glukozy przestaje skutecznie reagować na hormon [4]. W miastenii zaburzenie dotyczy złącza nerwowo-mięśniowego, a nie samego włókna. Przekazywanie pobudzenia słabnie przy kolejnych impulsach, dlatego osłabienie narasta w trakcie powtarzanych skurczów.
3.3. Wsparcie suplementacyjne
Kilka substancji dostępnych jako suplementy zmienia skład chemiczny włókna mięśniowego, a niektóre także siłę mięśnia. Punkt uchwytu tych substancji leży w samym mięśniu: zmieniają zawartość fosfokreatyny lub karnozyny we włóknie albo siłę skurczu, a nie tylko wynik sportowy.
Kreatyna trafia do mięśnia i odkłada się w nim jako fosfokreatyna, rezerwa pozwalająca szybko odtwarzać ATP. W badaniu klinicznym suplementacja podniosła całkowitą zawartość kreatyny w mięśniu czworogłowym, u niektórych osób nawet o 50%, a około 20% pobranej kreatyny występowało jako fosfokreatyna [43]. W metaanalizie badań z udziałem starszych dorosłych kreatyna łączona z treningiem oporowym zwiększała beztłuszczową masę ciała i siłę bardziej niż placebo [44]. Bezpośrednie pomiary przerostu mięśni wykazały jednak efekt bardzo mały [45].
Beta-alanina jest substratem do syntezy karnozyny, dipeptydu buforującego jony wodorowe we włóknie. Przegląd systematyczny wykazał, że suplementacja beta-alaniną zwiększa zawartość karnozyny w mięśniu praktycznie u wszystkich badanych, a stosowane schematy nie wysycają mięśnia karnozyną [46]. Cholekalcyferol, czyli witamina D3, w metaanalizie 30 badań z randomizacją dał mały wzrost siły mięśni bez wpływu na ich masę, wyraźniejszy przy niedoborze witaminy D i u osób po 65. roku życia [47]. Kwasy tłuszczowe omega-3 w metaanalizie dały bardzo mały wzrost siły, także bez wpływu na masę mięśni [48].
Cztery substancje różnią się punktem uchwytu w mięśniu, kierunkiem działania i siłą dowodu.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Kreatyna | wzrost zawartości fosfokreatyny, większy przyrost masy beztłuszczowej przy treningu oporowym | ↑ fosfokreatyna, ↑ masa beztłuszczowa | A [44, 45], B [43] |
| Beta-alanina | substrat syntezy karnozyny w mięśniu | ↑ zawartość karnozyny | A [46] |
| Cholekalcyferol | mały wzrost siły, wyraźniejszy przy niedoborze | ↑ siła, ~ masa | A [47] |
| Kwasy omega-3 | bardzo mały wzrost siły | ↑ siła, ~ masa | A [48] |
Silny i spójny wpływ na samą tkankę mięśniową mają kreatyna i beta-alanina, natomiast witamina D i kwasy omega-3 zmieniają siłę w stopniu niewielkim. Dawkowanie, interakcje i przeciwwskazania opisują karty poszczególnych substancji w dziale Suplementy.
4. Uwagi praktyczne
4.1. Jak to zbadać
Stan mięśni szkieletowych ocenia się badaniami krwi, pomiarami siły i masy, badaniami elektrofizjologicznymi i obrazowymi oraz biopsją. Każda z tych metod odpowiada na inne pytanie, a wybór zależy od podejrzewanego problemu.
Kinaza kreatynowa, czyli CK, to enzym włókien mięśniowych, który przechodzi do krwi przy uszkodzeniu błony komórkowej. Jej aktywność w surowicy podaje się w jednostkach na litr (U/l). Wynik zależy od wieku, płci, pochodzenia etnicznego, masy mięśniowej i aktywności fizycznej [49, 50]. Wysiłek, zwłaszcza nieprzywykły, podnosi aktywność CK nawet u zdrowych osób, dlatego górne granice normy ustalone dla populacji ogólnej nie pasują do osób trenujących [50]. Utrzymująca się wysoka aktywność CK po odpoczynku, bez innych wyjaśnień, jest wskazaniem do pełnej diagnostyki [49].
Siłę mięśni mierzy się najprościej dynamometrem ręcznym. Według kryteriów EWGSOP2 na małą siłę wskazuje siła chwytu poniżej 27 kg u mężczyzn i poniżej 16 kg u kobiet [39]. W prospektywnym badaniu PURE (ang. Prospective Urban Rural Epidemiology), obejmującym 139 691 osób z 17 krajów, każde 5 kg mniejszej siły chwytu wiązało się z 16% większym ryzykiem zgonu z dowolnej przyczyny [7]. Siła chwytu przewidywała umieralność lepiej niż skurczowe ciśnienie tętnicze [7].
Masę mięśni ocenia się densytometrią rentgenowską (DXA) albo bioimpedancją elektryczną (BIA). DXA mierzy masę beztłuszczową kończyn na podstawie pochłaniania promieniowania, a BIA szacuje ją z oporu elektrycznego tkanek. Konsensus EWGSOP2 przyjmuje jako próg małej masy mięśni kończyn wartość poniżej 20 kg u mężczyzn i 15 kg u kobiet albo poniżej 7,0 i 5,5 kg/m² po przeliczeniu na kwadrat wzrostu [39]. Najdokładniej masę mięśni określa rezonans magnetyczny całego ciała, stosowany głównie w badaniach naukowych [3].
Elektromiografia (EMG) rejestruje czynność elektryczną mięśnia elektrodą igłową lub powierzchniową. Badanie odróżnia osłabienie wynikające z choroby samego mięśnia od osłabienia spowodowanego uszkodzeniem nerwu lub złącza nerwowo-mięśniowego. Biopsja mięśnia pozwala ocenić pod mikroskopem budowę włókien, udział typów włókien i obecność białek takich jak dystrofina [11, 14]. Metody te różnią się przedmiotem pomiaru i badanym materiałem.
| Metoda | Co mierzy | Materiał lub warunki |
| Kinaza kreatynowa | uszkodzenie błony włókien | surowica, najlepiej po kilku dniach bez intensywnego wysiłku |
| Siła chwytu | siłę mięśni | dynamometr ręczny |
| DXA, BIA | masę mięśni kończyn | badanie całego ciała |
| EMG | czynność elektryczną mięśnia i nerwu | elektroda igłowa lub powierzchniowa |
| Biopsja | budowę i skład włókien | wycinek mięśnia |
Żadne pojedyncze badanie nie opisuje stanu mięśni w całości. Siła, masa i marker uszkodzenia mogą zmieniać się niezależnie, dlatego ocena opiera się na zestawieniu kilku wyników z obrazem klinicznym.
4.2. Na co warto zwrócić uwagę
Zakwasy nie są wynikiem zalegania kwasu mlekowego w mięśniu. Potoczna nazwa dotyczy opóźnionej bolesności mięśni, którą wywołują skurcze ekscentryczne, czyli praca mięśnia podczas jego wydłużania, oraz nieprzywykły wysiłek [51]. Za główny mechanizm uznaje się obecnie drobne uszkodzenia struktury włókien, po których następują rozpad białek i miejscowy odczyn zapalny [51]. Ból osiąga szczyt 48–72 godziny po wysiłku [51]. Hipoteza kwasu mlekowego była tylko jedną z sześciu proponowanych teorii [52], a obecny model wiąże objawy z uszkodzeniem i zapaleniem rozwijającymi się przez kolejne dni [51].
Podwyższona kinaza kreatynowa nie oznacza sama w sobie choroby mięśni. Aktywność CK rośnie po wysiłku u zdrowych osób, a jej wartość zależy od masy mięśniowej i pochodzenia etnicznego [50]. Interpretacja wymaga więc informacji o wysiłku z ostatnich dni. Jednocześnie bardzo wysoka CK z ciemnym moczem i osłabieniem po wysiłku może oznaczać rabdomiolizę, która grozi uszkodzeniem nerek [35].
Masa mięśni i siła mięśni to dwie różne cechy. Konsensus EWGSOP2 uznał małą siłę za podstawową cechę sarkopenii właśnie dlatego, że lepiej niż masa przewiduje niekorzystne następstwa [39]. Wynik DXA lub BIA w normie nie wyklucza więc osłabienia mięśni. Masa beztłuszczowa obejmuje ponadto wodę, kości i narządy wewnętrzne, dlatego jej zmiana nie jest równoznaczna ze zmianą ilości włókien mięśniowych.
Działanie miokin na mózg i odległe narządy opisano w dużej części na modelach zwierzęcych [33]. Korzystny wpływ wysiłku przekazywany przez miokiny jest więc mechanizmem prawdopodobnym, ale u ludzi zmierzonym tylko dla części cząsteczek, takich jak IL-6.
Nagłe osłabienie mięśni, ciemne zabarwienie moczu po wysiłku albo zanik mięśni bez uchwytnej przyczyny są objawami wymagającymi oceny lekarskiej.