1. Charakterystyka
1.1. Definicja i nazewnictwo
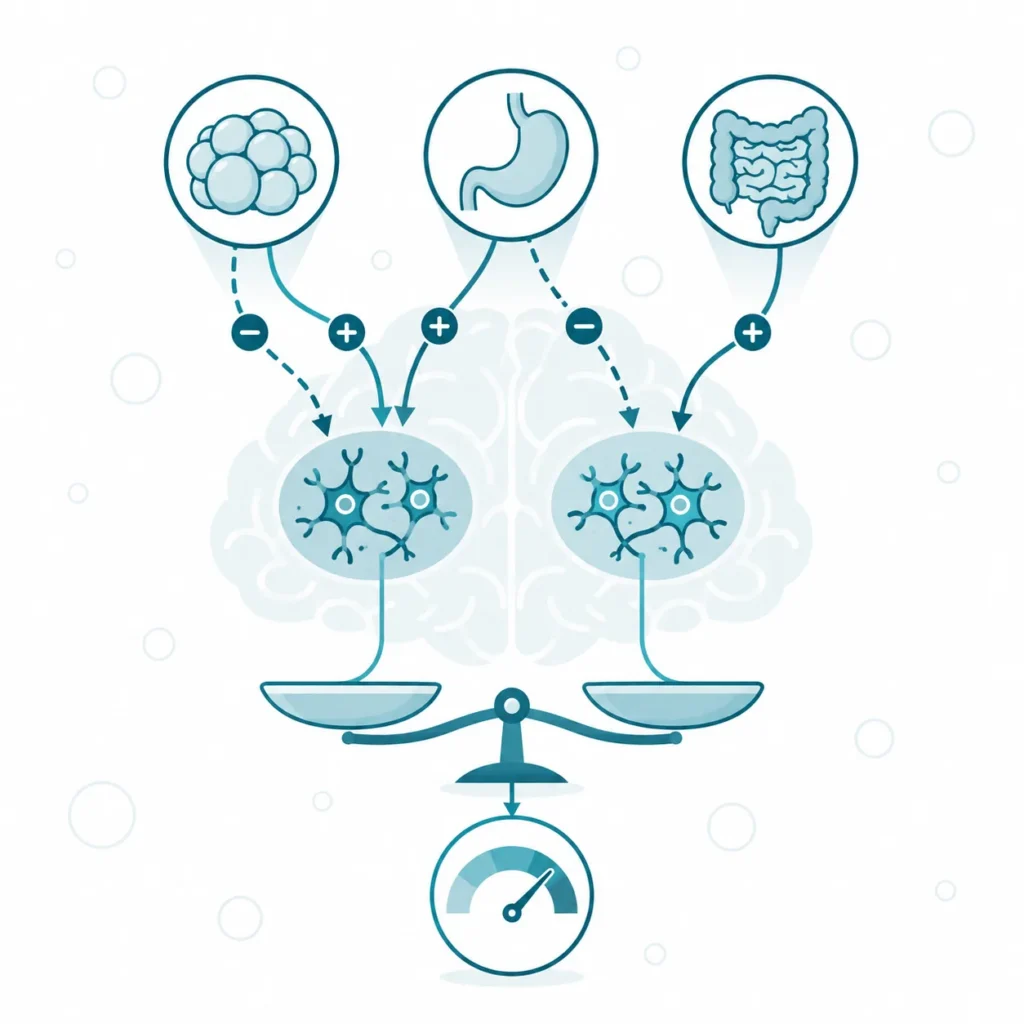
Jądro łukowate to skupisko neuronów podstawno-przyśrodkowej części podwzgórza, którego dwie główne populacje wytwarzają proopiomelanokortynę (ang. proopiomelanocortin, POMC) i białko podobne do agouti (ang. agouti-related peptide, AgRP) [1]. POMC jest białkiem-prekursorem, z którego powstają peptydy hamujące łaknienie, a AgRP jest neuropeptydem łaknienie nasilającym [1]. Obie grupy komórek działają przeciwstawnie i razem tworzą obwód, który dopasowuje przyjmowanie pokarmu i wydatek energii do zapasów organizmu [1]. Nazwa łacińska brzmi nucleus arcuatus, a w opisach mózgu człowieka używa się też nazwy jądro lejkowate, czyli nucleus infundibularis [2, 3]. Obie nazwy oznaczają tę samą strukturę, leżącą u podstawy lejka przysadki.
Jądro łukowate należy do podwzgórza, czyli części międzymózgowia sterującej czynnością gruczołów dokrewnych i zachowaniami podtrzymującymi życie. Razem z wyniosłością pośrodkową tworzy jednostkę morfologiczną i czynnościową [4]. Wyniosłość pośrodkowa nie jest jednak jądrem, tylko narządem okołokomorowym, w którym kończą się aksony neuronów podwzgórza i zaczynają naczynia wrotne przysadki [4]. Kryterium różnicującym jest więc obecność ciał neuronów: leżą one w jądrze łukowatym, a w wyniosłości pośrodkowej znajdują się ich zakończenia. Sąsiednie jądro brzuszno-przyśrodkowe również uczestniczy w kontroli łaknienia i wydatku energii [5]. W hodowli ludzkich komórek macierzystych oba jądra powstawały jednak z różnych komórek progenitorowych guza popielatego, tylnych dla jądra łukowatego i przednich dla jądra brzuszno-przyśrodkowego [5].
Pojęcie jądra łukowatego obejmuje kilka populacji neuronów, które sterują wydzielaniem prolaktyny, przyjmowaniem pokarmu, metabolizmem, rozrodem i początkiem dojrzewania płciowego [4]. Poza neuronami POMC i AgRP należą do nich neurony kisspeptynowe, dopaminergiczne i wydzielające hormon uwalniający hormon wzrostu [4, 5]. Pojęcie to nie obejmuje tanycytów, czyli komórek glejowych wyściełających dno trzeciej komory, choć ich wypustki wnikają w jądro [3]. Znaczenie jądra łukowatego wynika z miejsca, w którym sygnały krążące we krwi trafiają na neurony sterujące zachowaniem i przysadką. Uszkodzenie szlaku zaczynającego się w neuronach POMC wywołuje u ludzi ciężką otyłość o wczesnym początku [6, 7]. Ten sam szlak jest punktem uchwytu leków stosowanych w rzadkich postaciach otyłości genetycznej [8].
1.2. Położenie i granice
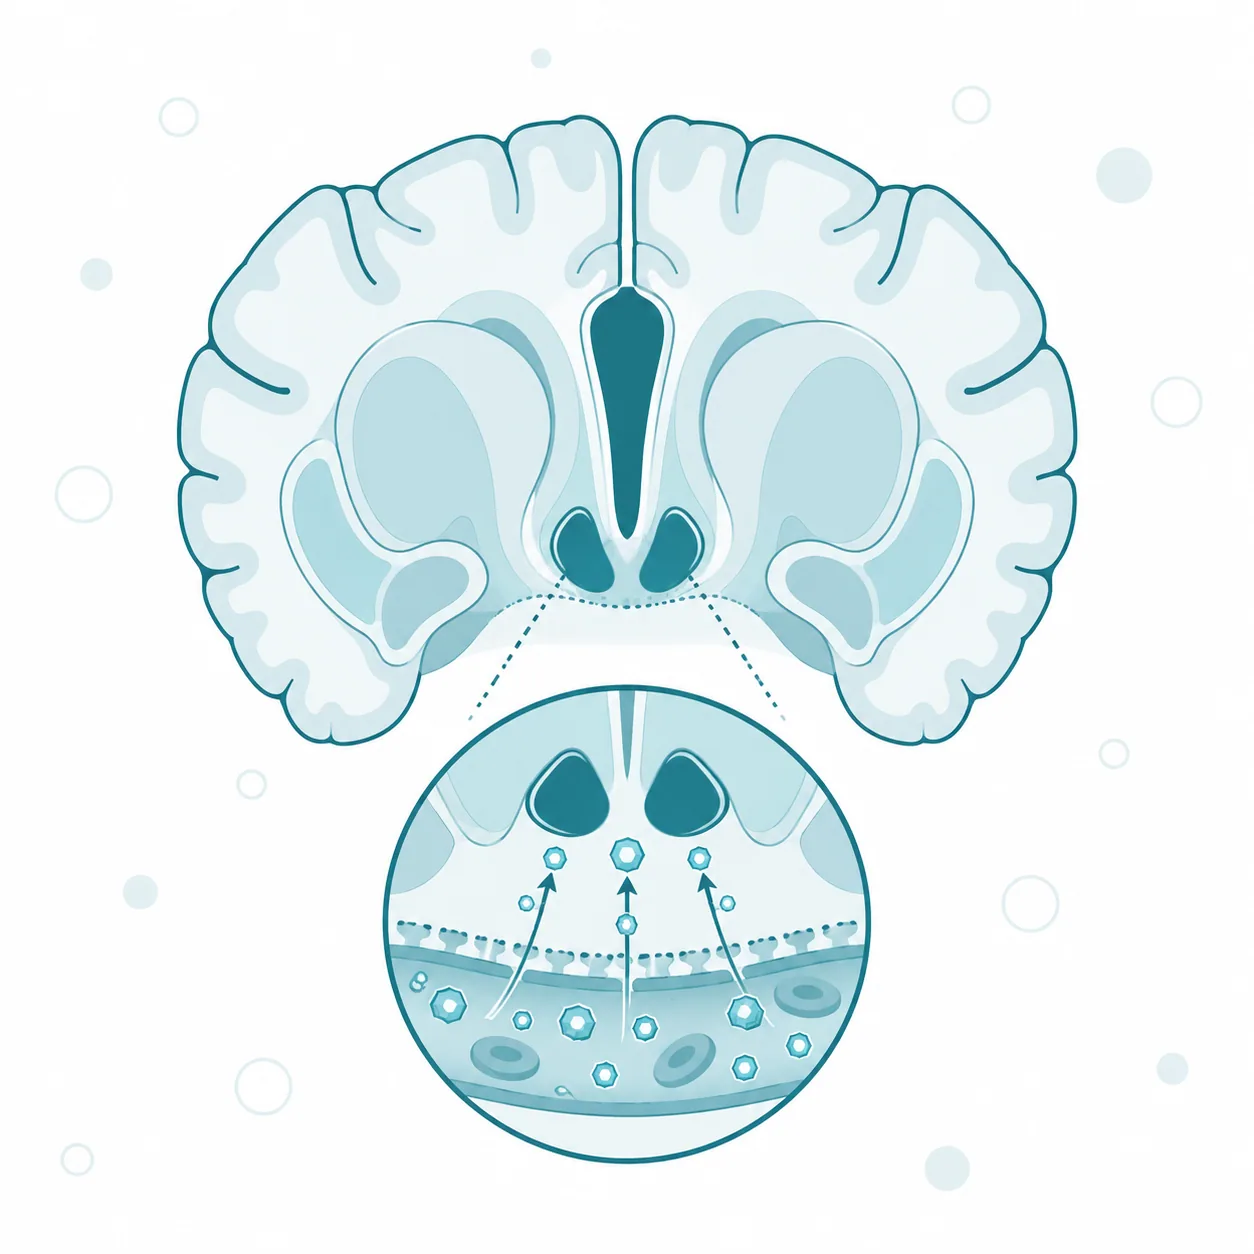
Jądro łukowate leży w podstawno-przyśrodkowej części podwzgórza, w dnie trzeciej komory mózgu [4]. Jego neurony przylegają do ściany komory, co ułatwia wymianę sygnałów między tkanką nerwową a płynem mózgowo-rdzeniowym [4]. Od dołu jądro graniczy z wyniosłością pośrodkową, w której kończą się aksony części jego neuronów [4]. Do wyniosłości przylega część guzowa przysadki, połączona z naczyniami wrotnymi przysadki [4].
Położenie to ma następstwo czynnościowe, bo wyniosłość pośrodkowa nie ma typowej bariery krew-mózg [4]. Przez jej ściany do jądra łukowatego dostają się z krwi składniki odżywcze oraz hormony, takie jak leptyna i grelina [4]. Barierę między tym obszarem a resztą mózgu przejmują tanycyty, czyli komórki ependymoglejowe tworzące ścianę trzeciej komory [3]. Tanycyty wysyłają długie wypustki w głąb tkanki, gdzie stykają się z naczyniami krwionośnymi i z neuronami podwzgórza [3]. Kontrolują one transport hormonów i metabolitów do podwzgórza i z niego, a zarazem działają jako czujniki stanu metabolicznego organizmu [3].
Neurony POMC i neurony AgRP leżą w bliskim sąsiedztwie wyniosłości pośrodkowej, czyli narządu okołokomorowego [9]. Dzięki temu docierają do nich sygnały krwi niedostępne dla większości neuronów mózgu, chronionych pełną barierą. Bliskość krwi daje więc neuronom jądra stały dostęp do informacji o stanie organizmu, a zarazem wystawia je na zmiany składu krwi, które w modelach zwierzęcych wywoływały w tym obszarze odczyn zapalny [10].
1.3. Populacje neuronów
Jądro łukowate nie ma podziału na części widoczne makroskopowo, a jego budowę opisuje się przez populacje neuronów różniące się wytwarzanymi przekaźnikami. Komórki te są ze sobą przemieszane, dlatego badanie ich czynności wymagało znakowania genetycznego poszczególnych typów [11, 12]. Dwie z tych populacji mają działanie przeciwstawne i są związane z gospodarką energetyczną [1]. Pozostałe populacje sterują przysadką i osią rozrodczą [4].
Pierwszą populację tworzą neurony POMC, które wytwarzają także transkrypt regulowany przez kokainę i amfetaminę (ang. cocaine- and amphetamine-regulated transcript, CART), czyli neuropeptyd hamujący łaknienie [13, 14]. Z POMC powstaje hormon α-melanotropowy (α-MSH), który pobudza receptor melanokortynowy typu 4 (MC4R), czyli receptor neuronów mózgu przekazujący sygnał zmniejszający spożycie pokarmu [6]. Drugą tworzą neurony AgRP, które wytwarzają również neuropeptyd Y (NPY), czyli silny peptyd pobudzający łaknienie, oraz kwas γ-aminomasłowy [1, 11]. Kwas γ-aminomasłowy, czyli GABA, jest głównym przekaźnikiem hamującym mózgu. Neurony AgRP wykorzystują go do bezpośredniego hamowania sąsiednich neuronów POMC [11]. Trzecią grupę tworzą neurony KNDy, nazwane od trzech wytwarzanych peptydów: kisspeptyny, neurokininy B i dynorfiny [15]. Neurony te pobudzają neurony wydzielające gonadoliberynę i nadają rytm jej pulsacyjnemu uwalnianiu [9].
Czwartą populację stanowią neurony guzowo-lejkowe dopaminergiczne (ang. tuberoinfundibular dopamine, TIDA), których ciała leżą w jądrze łukowatym [16]. Uwalniana przez nie dopamina hamuje wydzielanie prolaktyny przez przysadkę [16]. Piątą populację tworzą neurony wydzielające hormon uwalniający hormon wzrostu (ang. growth hormone-releasing hormone, GHRH), czyli neurohormon pobudzający przysadkę do wydzielania hormonu wzrostu [5]. W ludzkich hodowlach różnicowanych w kierunku jądra łukowatego powstawały też neurony wytwarzające tyreoliberynę i prepronocyceptynę [5]. Pięć głównych populacji zestawiono według przekaźnika, kierunku działania i celu.
| Populacja | Główne przekaźniki | Działanie | Cel |
| Neurony POMC | α-MSH (z POMC), CART | hamowanie łaknienia, wzrost wydatku energii | receptor MC4R w jądrze przykomorowym i innych okolicach |
| Neurony AgRP | AgRP, NPY, GABA | pobudzenie łaknienia, hamowanie neuronów POMC | receptor MC4R, neurony POMC |
| Neurony KNDy | kisspeptyna, neurokinina B, dynorfina | rytm pulsacyjnego wydzielania gonadoliberyny | neurony gonadoliberyny, okolica przedwzrokowa |
| Neurony TIDA | dopamina | hamowanie wydzielania prolaktyny | receptor D2 komórek laktotropowych przysadki |
| Neurony GHRH | GHRH | pobudzenie wydzielania hormonu wzrostu | komórki somatotropowe przysadki |
Zestawienie pokazuje, że populacje jądra łukowatego dzielą się na dwie grupy: dwie z nich działają na inne neurony mózgu, a trzy na przysadkę albo na neurony ją sterujące. Ta sama struktura łączy więc kontrolę zachowania z kontrolą wydzielania hormonów.
1.4. Neurogeneza i różnicowanie komórkowe
Według badania na ludzkich komórkach macierzystych jądro łukowate wywodzi się z części guzowej zawiązka podwzgórza [5]. Neurony kisspeptynowe, neurony POMC i neurony AgRP wywodzą się według przeglądu Stincic i Kelly ze wspólnej puli komórek progenitorowych [17]. W badaniu na ludzkich pluripotencjalnych komórkach macierzystych źródłem typów komórkowych jądra łukowatego okazały się tylne progenitory guzowe [5]. Dawały one neurony AgRP, neurony GHRH, neurony wytwarzające tyreoliberynę oraz jeden z typów tanycytów [5]. Hodowle te reagowały na leptynę, grelinę i glukagonopodobny peptyd 1, czyli na te same hormony, które działają na jądro łukowate w organizmie [5].
W tym samym badaniu wyodrębniono dwie odmienne transkrypcyjnie subpopulacje neuronów POMC [5]. Jedna odpowiadała położeniem jądru łukowatemu, druga jądru brzuszno-przyśrodkowemu [5]. Neuron POMC nie jest więc jednorodnym typem komórki, a jego pochodzenie rozwojowe zależy od miejsca w podwzgórzu. Dane te pochodzą z hodowli komórkowych, więc wymagają potwierdzenia na tkance mózgu człowieka.
Okres rozwoju różni się od dorosłości także zdolnością obwodu do kompensacji. U myszy usunięcie neuronów AgRP w okresie noworodkowym prawie nie zmieniało przyjmowania pokarmu, podczas gdy usunięcie ich u zwierząt dorosłych prowadziło do szybkiego zagłodzenia [18]. Autorzy wnioskują, że w rozwijającym się mózgu w sieci neuronów wykształcają się mechanizmy zastępcze, które u zwierząt dorosłych nie pojawiają się łatwo [18].
1.5. Rys historyczny
Rolę podstawy podwzgórza w gospodarce energetycznej wskazały doświadczenia z uszkodzeniami tej okolicy [19]. W 1940 roku Hetherington i Ranson opisali otłuszczenie szczurów po uszkodzeniu podwzgórza [19]. Doświadczenia te wskazywały okolicę mózgu, a sygnał z tkanki tłuszczowej, na który ta okolica odpowiada, zidentyfikowano w 1994 roku, gdy zespół Friedmana sklonował gen ob, a jego produkt opisał jako możliwe ogniwo szlaku regulującego wielkość zapasów tłuszczu [20]. W 1997 roku Ollmann i współpracownicy wykazali, że AgRP, białko wytwarzane w podwzgórzu, blokuje receptory melanokortynowe MC3R i MC4R i działa za receptorem leptyny [21]. Rok później Krude i współpracownicy opisali u dwóch chorych mutacje genu POMC z ciężką otyłością o wczesnym początku [6].
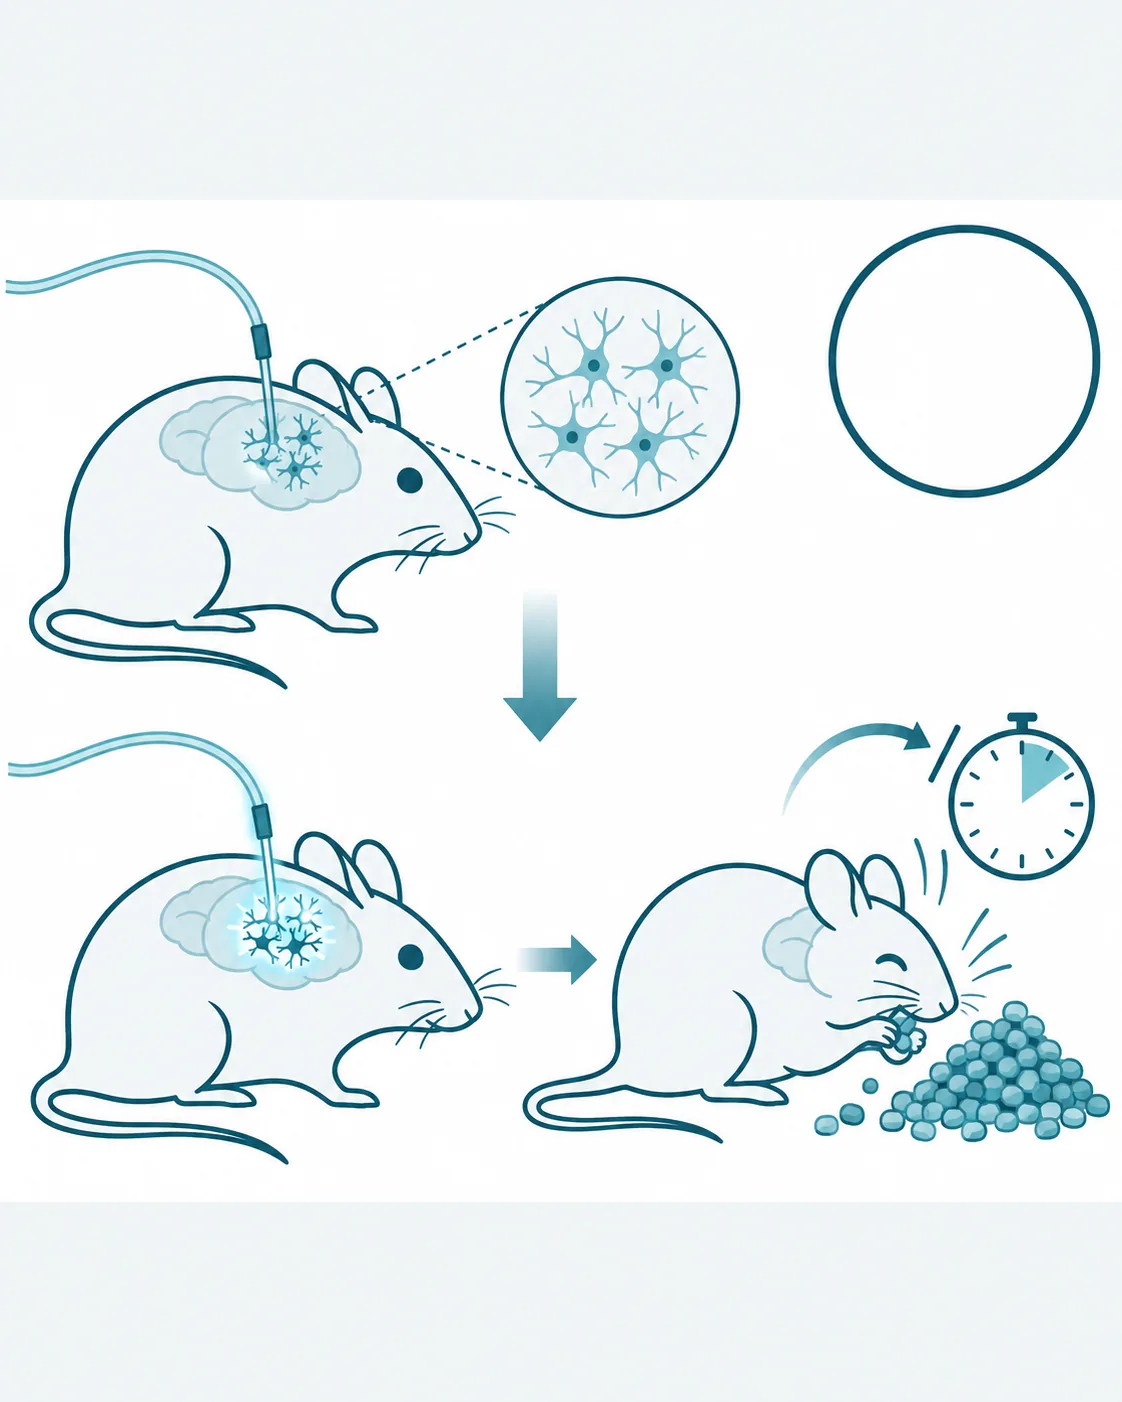
Neurony AgRP uważano wówczas za kluczowe dla łaknienia, ale nie wiadomo było, czy są do niego niezbędne i czy same wystarczają [12, 18]. W 2005 roku zespół Palmitera wykazał u myszy, że ich usunięcie u zwierzęcia dorosłego prowadzi do zagłodzenia [18]. W 2011 roku Aponte, Atasoy i Sternson pobudzili światłem około 800 neuronów AgRP i wywołali u myszy żarłoczne jedzenie w ciągu minut [12]. Przypuszczano, że neurony AgRP działają głównie przez blokowanie szlaku melanokortynowego [12]. Pobudzone neurony wywoływały jednak jedzenie także bez tłumienia tego szlaku, czyli przez bezpośredni wpływ na obwody karmienia [12].
2. Połączenia i mechanizm działania
2.1. Połączenia wejściowe
Jądro łukowate otrzymuje informacje dwiema drogami: z krwi, przez wyniosłość pośrodkową, oraz z innych części mózgu, przez połączenia nerwowe [4]. Droga krwionośna niesie sygnały o stanie zapasów energii i o bieżącym posiłku. Droga nerwowa niesie między innymi informację o pokarmie wykrywanym zmysłami [22].
Sygnałem długoterminowym jest leptyna, hormon tkanki tłuszczowej uczestniczący w regulacji wielkości zapasów tłuszczu [20]. U myszy leptyna zwiększała częstość wyładowań neuronów POMC, a jednocześnie osłabiała ich hamowanie przez sąsiednie neurony NPY/GABA [11]. Podobnie działa insulina podana do komór mózgu, która w modelach zwierzęcych zmniejszała ekspresję AgRP i NPY oraz zwiększała ekspresję POMC i CART [14]. Neurony POMC i neurony AgRP reagują przeciwstawnie także na stężenie glukozy [9]. Sygnał głodu niesie grelina, hormon żołądka, który również dociera do jądra łukowatego przez wyniosłość pośrodkową [1, 4]. Do jądra łukowatego docierają też estrogeny, na które najsilniej reagują neurony kisspeptynowe [17]. Liraglutyd, czyli lek naśladujący glukagonopodobny peptyd 1 (ang. glucagon-like peptide-1, GLP-1), hormon jelitowy wydzielany po posiłku, docierał u myszy z krwi do narządów okołokomorowych i wiązał się z neuronami jądra łukowatego [13].
Połączenia nerwowe jądra łukowatego są w dużej części dwukierunkowe i obejmują inne jądra podwzgórza, pień mózgu oraz drogi układu nagrody [4]. Sygnały z przewodu pokarmowego związane z posiłkiem tworzą według przeglądu Andermanna i Lowella odrębny, równoległy tor kontroli łaknienia [23]. U myszy samo wykrycie pokarmu zmysłami szybko odwracało stan aktywności neuronów AgRP i POMC wywołany głodem, zanim zwierzę zaczęło jeść [22]. Wejścia jądra łukowatego obejmują więc zarówno sygnały o zapasach energii, jak i sygnały zapowiadające ich uzupełnienie.
2.2. Połączenia wyjściowe
Jądro łukowate wysyła aksony w dwóch kierunkach: do naczyń wrotnych przysadki oraz do innych ośrodków mózgu [4]. W pierwszym przypadku sygnał płynie dalej krwią, w drugim przechodzi przez synapsy.
Droga do przysadki biegnie w pasmie guzowo-lejkowym, którego aksony kończą się w wyniosłości pośrodkowej na naczyniach wrotnych przysadki [4]. Tą drogą neurony TIDA przekazują dopaminę do strefy zewnętrznej wyniosłości pośrodkowej [16]. Dopamina płynie następnie krwią wrotną do przedniego płata przysadki, gdzie przez receptory D2 hamuje komórki wydzielające prolaktynę [16]. Połączenie to jest jedną z dróg nerwowo-humoralnych łączących podwzgórze z przysadką [4].
Druga droga prowadzi do innych jąder podwzgórza, pnia mózgu i dróg układu nagrody [4]. Wspólnym celem sygnału neuronów POMC i neuronów AgRP jest receptor MC4R [6, 21], obecny w wielu okolicach mózgu [24]. Jedną z nich jest jądro przykomorowe podwzgórza, a inną część neuronów ciała migdałowatego [24]. Neurony KNDy wysyłają aksony do neuronów wydzielających gonadoliberynę [9]. U szczurów docierają też do okolic przedwzrokowych zawierających receptor neurokininy 3, które uczestniczą w regulacji temperatury ciała [15].
Rozkład połączeń wyjściowych sprawia, że jedna okolica podwzgórza wysyła sygnały jednocześnie do przysadki, do ośrodków łaknienia, do neuronów sterujących rozrodem i do ośrodków termoregulacji. Zaburzenie czynności jądra łukowatego może więc ujawniać się w kilku układach naraz.
2.3. Neurochemia jądra łukowatego
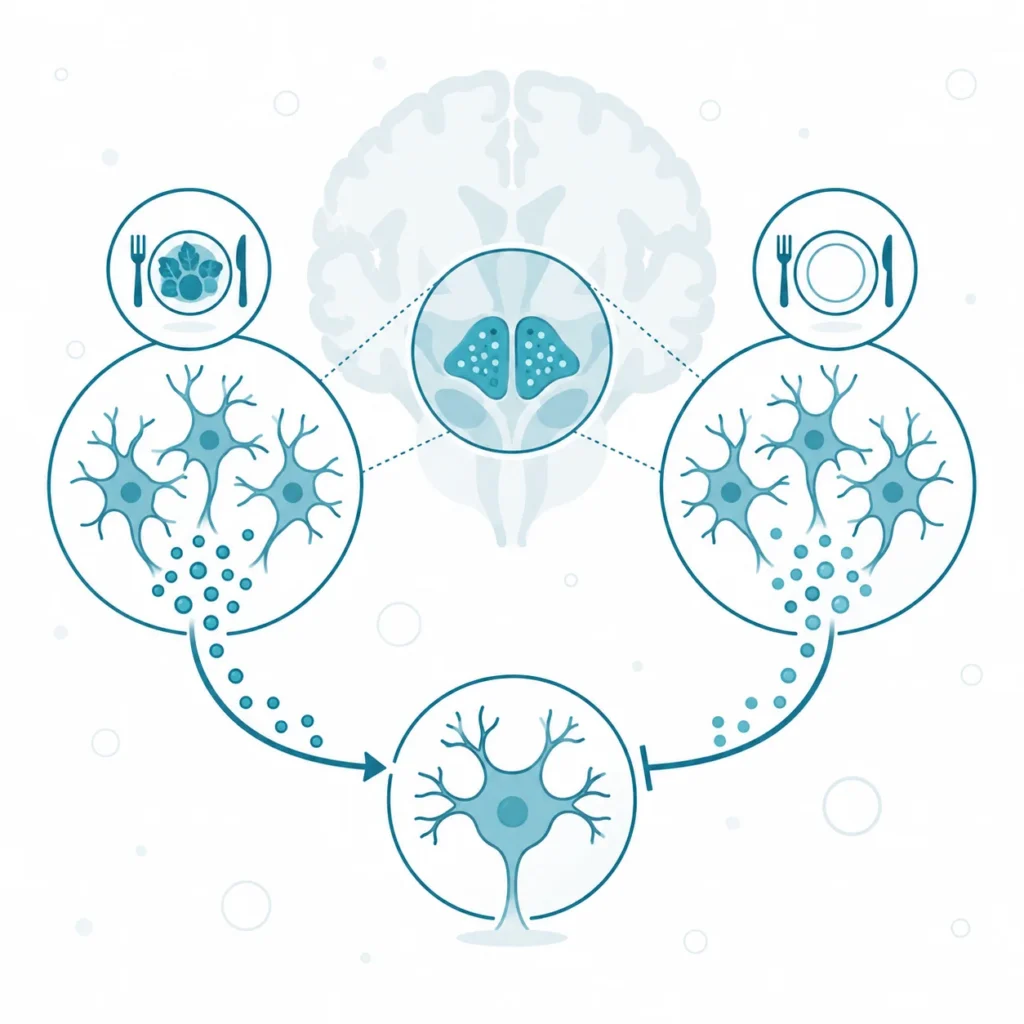
Neurochemię jądra łukowatego wyznacza układ melanokortynowy, czyli zespół peptydów pochodzących z POMC i receptorów, na które te peptydy działają. Neurony POMC i neurony AgRP konkurują w nim o ten sam receptor, a wynik tej konkurencji przekłada się na łaknienie [6, 21]. Obok peptydów działają klasyczne przekaźniki, przede wszystkim GABA, które pozwalają neuronom jądra hamować się wzajemnie [11].
Proopiomelanokortyna jest białkiem-prekursorem, które enzymy tną na krótsze peptydy w kolejnych etapach [6]. Powstają z niej hormon adrenokortykotropowy, trzy hormony melanotropowe (α, β i γ) oraz β-endorfina, czyli ligand receptorów opioidowych [6]. W neuronach jądra łukowatego dla kontroli łaknienia najważniejszy jest α-MSH, który pobudza receptor MC4R [6]. Pobudzenie MC4R zmniejsza spożycie pokarmu i zwiększa wydatek energii, przez co zapasy tłuszczu maleją [24]. AgRP działa na ten sam receptor odwrotnie. Jest silnym i wybiórczym antagonistą receptorów MC3R i MC4R, a jego ekspresja w podwzgórzu myszy pozbawionych leptyny była ośmiokrotnie wyższa niż u zwierząt kontrolnych [21].
Sygnał melanokortynowy zależy więc od proporcji dwóch peptydów uwalnianych do tego samego receptora. Gdy zapasy energii są duże, przeważa α-MSH i łaknienie słabnie. Gdy maleją, rośnie udział AgRP, który blokuje receptor i znosi hamowanie łaknienia [1, 21]. Na poziomie samego jądra działa drugi mechanizm: neurony NPY/GABA hamują sąsiednie neurony POMC, a peptydy melanokortynowe hamują zwrotnie własny obwód [11]. Neurony AgRP mają przy tym drogę działania niezależną od receptora MC4R. U myszy ich pobudzenie wywoływało jedzenie także wtedy, gdy szlak melanokortynowy nie był tłumiony [12].
Ten sam układ stanowi punkt uchwytu leków. W badaniach na skrawkach mózgu myszy GLP-1 bezpośrednio pobudzał neurony POMC/CART, a neurony NPY/AgRP hamował pośrednio, przez przekaźnictwo GABA [13]. Neurochemia jądra łukowatego opiera się więc na przeciwstawnych sygnałach zbiegających się na jednym receptorze, co pozwala jednemu hormonowi przesunąć równowagę całego obwodu.
2.4. Funkcje
2.4.1. Kontrola przyjmowania pokarmu
Kontrolę przyjmowania pokarmu niesie w jądrze łukowatym para neuronów AgRP i neuronów POMC. Według przeglądu Vohry i współpracowników neurony AgRP/NPY sygnalizują głód i pobudzają jedzenie, a neurony POMC sygnalizują sytość i jedzenie ograniczają [1]. U myszy pobudzenie światłem neuronów POMC zmniejszało spożycie pokarmu i masę ciała, a efekt wymagał działania receptorów melanokortynowych [12]. Pobudzenie neuronów AgRP wywoływało natomiast jedzenie w ciągu minut, bez wcześniejszego treningu i wybiórczo wobec picia [12]. Siła odpowiedzi rosła z liczbą pobudzonych neuronów oraz z parametrami pobudzenia światłem [12].
Badania rejestrujące naturalną aktywność tych neuronów zmieniły obraz ich roli. U głodnych myszy neurony AgRP były aktywne, ale ich aktywność szybko spadała, gdy zwierzę wykryło pokarm zmysłami, zanim zaczęło jeść [22]. Spadek ten zależał od smakowitości pokarmu i od stanu odżywienia zwierzęcia [22]. Myszy unikały przy tym sztucznego pobudzania neuronów AgRP, a ich hamowanie wytwarzało preferencję smaków i miejsc [25]. Autorzy uznali, że aktywność neuronów AgRP działa jak sygnał o ujemnym znaku, którego wygaszenie przy jedzeniu uczy zwierzę, co zaspokaja głód [25]. Według autorów obu prac wyniki te sugerują, że neurony AgRP uczestniczą przede wszystkim w kontroli zachowań prowadzących do pokarmu, takich jak jego poszukiwanie, oraz w uczeniu się sygnałów, które pokarm zapowiadają [22, 25]. Wszystkie te wyniki pochodzą z badań na myszach, a dla człowieka wniosek o roli tych neuronów opiera się głównie na skutkach mutacji w szlaku melanokortynowym [6, 7].
2.4.2. Wydatek energetyczny i gospodarka glukozą
Wydatek energetyczny jest drugą stroną bilansu, który kontroluje jądro łukowate. Pobudzenie receptora MC4R przez peptydy z POMC zmniejsza zapasy tłuszczu, bo ogranicza jedzenie i zwiększa zużycie energii [24]. Obie te drogi są u myszy częściowo rozdzielone anatomicznie. U myszy pozbawionych receptora MC4R przywrócenie go w jądrze przykomorowym podwzgórza i w części neuronów ciała migdałowatego zapobiegło 60% otyłości [24]. Nadmierne jedzenie ustąpiło całkowicie, ale obniżony wydatek energii pozostał bez zmian [24]. Autorzy wywnioskowali, że te receptory MC4R kontrolują spożycie pokarmu, a wydatek energii zależy od receptorów MC4R w innych okolicach mózgu [24]. Przegląd Vohry i współpracowników opisuje neurony jądra łukowatego jako miejsce, w którym leptyna, insulina i grelina łączą wpływ na łaknienie i na wydatek energii [1].
Jądro łukowate uczestniczy też w gospodarce glukozą. Neurony POMC i neurony AgRP są regulowane przeciwstawnie przez glukozę, insulinę i leptynę [9]. Insulina podana do komór mózgu zmniejszała w modelach zwierzęcych spożycie pokarmu i masę ciała w badaniach długotrwałych, podczas gdy insulina podana obwodowo często zwiększa masę ciała [14]. Tanycyty uczestniczą w tej regulacji jako czujniki stanu metabolicznego i przekaźnik metabolitów z krwi [3]. Większość tych danych pochodzi z badań na gryzoniach, a ich przeniesienie na człowieka opiera się głównie na skutkach mutacji genetycznych.
2.4.3. Sterowanie osią rozrodczą
Sterowanie osią rozrodczą jest funkcją neuronów KNDy, które wytwarzają kisspeptynę, neurokininę B i dynorfinę [15]. Neurony wydzielające gonadoliberynę nie mają wielu receptorów hormonów metabolicznych, więc informację o zapasach energii muszą otrzymywać od innych komórek [9]. Neurony kisspeptynowe jądra łukowatego są według przeglądu Rønnekleiv i współpracowników neuronami nadającymi rytm pulsacyjnemu wydzielaniu gonadoliberyny [9]. Mają receptory hormonów płciowych, a podobnie jak neurony POMC są pobudzane przez insulinę i leptynę [9].
Neurony KNDy łączą więc oś podwzgórze–przysadka–gonady z gospodarką energetyczną. W modelach zwierzęcych pod wpływem 17β-estradiolu neurony kisspeptynowe razem z neuronami POMC hamują neurony AgRP i zmniejszają motywację do jedzenia [17]. Działanie to łączy dostępność energii z płodnością, bo ciąża wymaga dużych zapasów energii [17].
2.4.4. Wydzielanie prolaktyny i hormonu wzrostu
Wydzielanie prolaktyny jest pod przeważająco hamującym wpływem neuronów TIDA, których ciała leżą w jądrze łukowatym [16]. Dopamina z tych neuronów hamuje komórki laktotropowe przysadki i jest głównym czynnikiem regulującym wydzielanie prolaktyny [16]. Kontrola ta różni się od kontroli innych hormonów przedniego płata przysadki, bo jest przede wszystkim hamująca [26]. Prolaktyna nie ma też gruczołu docelowego, który wysyłałby klasyczny sygnał zwrotny [26]. Jej wydzielanie reguluje więc krótka pętla zwrotna: prolaktyna działa w mózgu, pobudza wytwarzanie dopaminy przez neurony TIDA i w ten sposób hamuje własne wydzielanie [26].
Aktywność neuronów TIDA zależy od płci i od hormonów płciowych [16]. Mechanizm ten utrzymuje wydzielanie prolaktyny zwykle na niskim poziomie, a jego przestawienie umożliwia długotrwałą hiperprolaktynemię w okresie karmienia piersią [26]. W jądrze łukowatym leżą też neurony GHRH, które przez naczynia wrotne pobudzają przysadkę do wydzielania hormonu wzrostu [4, 5]. Jądro łukowate steruje więc dwoma hormonami przysadki odmiennymi drogami: prolaktyną przez hamowanie dopaminą, a hormonem wzrostu przez pobudzenie neurohormonem.
3. Uszkodzenie i patologia
3.1. Następstwa uszkodzenia
Następstwa uszkodzenia jądra łukowatego u człowieka poznano głównie dzięki dwóm źródłom: mutacjom genów szlaku melanokortynowego i uszkodzeniom podwzgórza przez guzy oraz ich leczenie. Mutacje wyłączają jedno ogniwo obwodu w całym organizmie, a uszkodzenia niszczą tkankę wraz z sąsiednimi strukturami [6, 27]. Oba rodzaje zaburzeń prowadzą do ciężkiej otyłości, ale różnią się zakresem pozostałych objawów.
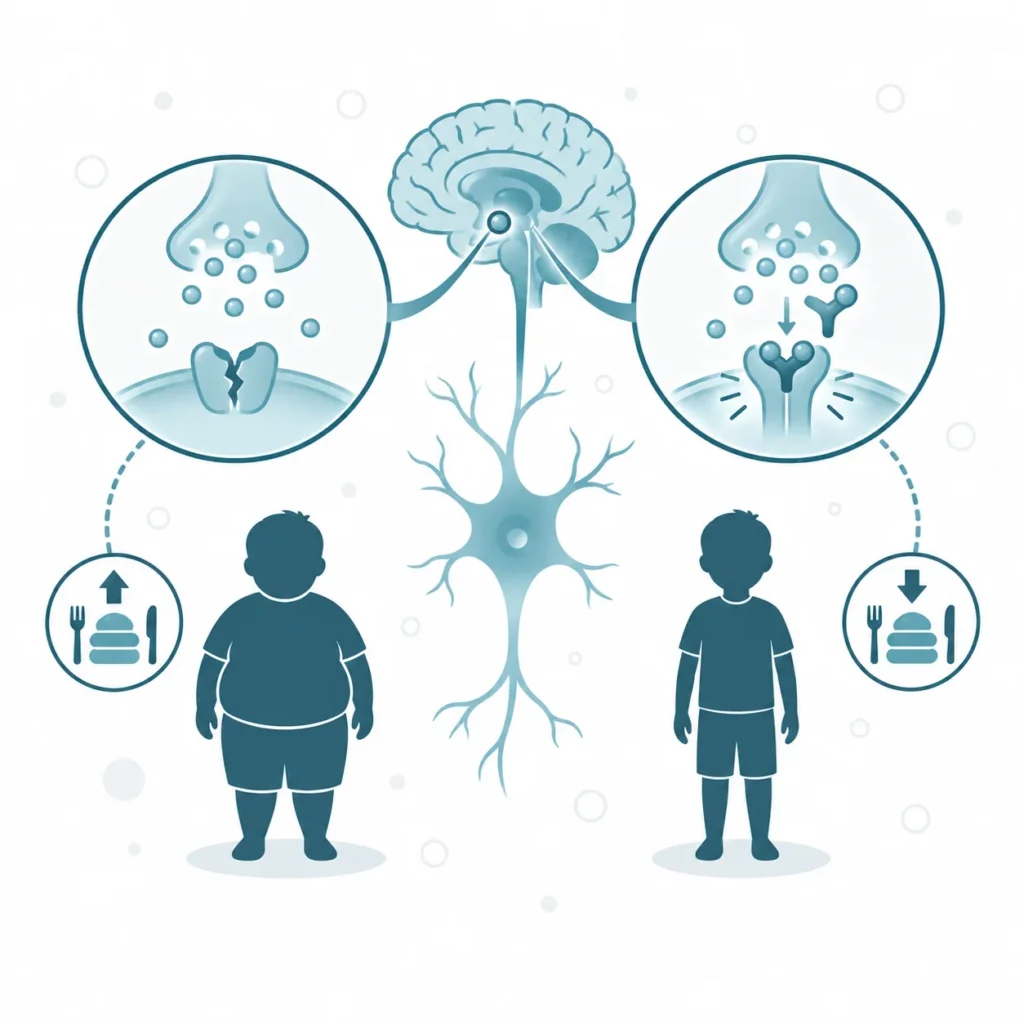
Niedobór POMC opisany przez Krudego i współpracowników łączył ciężką otyłość o wczesnym początku z niewydolnością kory nadnerczy i rudym zabarwieniem włosów [6]. Każdy z tych objawów wynika z braku innego peptydu pochodzącego z POMC. Brak α-MSH znosi pobudzenie receptora MC4R i hamowanie łaknienia, a zarazem zmienia barwnik włosów [6]. Brak hormonu adrenokortykotropowego, czyli ACTH, wyłącza pobudzanie kory nadnerczy [6]. Objawy te pokazują, że ten sam prekursor zaopatruje zarówno obwód łaknienia, jak i przysadkę oraz skórę.
Częstsze są mutacje receptora MC4R, czyli receptora docelowego neuronów POMC i AgRP [7]. W badaniu Farooqi i współpracowników mutacje genu MC4R stwierdzono u 29 z 500 osób z ciężką otyłością rozpoczętą w dzieciństwie, czyli u 5,8% [7]. Autorzy określili niedobór MC4R jako najczęstszą jednogenową postać otyłości, ale odsetek 5,8% dotyczy wyłącznie probantów z ciężką otyłością dziecięcą, a nie populacji ogólnej [7]. Nosiciele mutacji mieli nasilone łaknienie, zwiększoną beztłuszczową masę ciała, przyspieszony wzrost i ciężką hiperinsulinemię [7]. Homozygoty chorowały ciężej niż heterozygoty, a mutacje zachowujące część aktywności receptora dawały łagodniejszy przebieg [7]. Ten sam szlak przerywają dwuallelowe warianty genu receptora leptyny, prowadzące do ciężkiej otyłości o wczesnym początku [8].
Uszkodzenie podwzgórza przez guz lub jego leczenie wywołuje zespół podwzgórzowy [27]. Najczęstszymi przyczynami są rzadkie zmiany okolicy przysiodłowej: czaszkogardlaki, guzy germinalne, glejaki, torbiele kieszonki Rathkego i histiocytoza z komórek Langerhansa [27]. Zespół towarzyszy też niektórym zespołom genetycznym, takim jak zespół Pradera-Williego [27]. Zespół obejmuje niepoddający się leczeniu przyrost masy ciała, liczne zaburzenia hormonalne oraz zaburzenia pamięci, uwagi i kontroli impulsów [27]. Zespół podwzgórzowy nie jest więc odpowiednikiem wybiórczego uszkodzenia jądra łukowatego, lecz następstwem uszkodzenia podwzgórza jako całości [27].
3.2. Udział jądra łukowatego w chorobach
Jądro łukowate uczestniczy w chorobach, w których nie jest uszkodzone strukturalnie, lecz zmienia się jego wrażliwość na sygnały albo aktywność jednej z jego populacji. Dotyczy to dwóch stanów: otyłość z towarzyszącą jej opornością na leptynę oraz objawy naczynioruchowe okresu menopauzy [10, 15].
W otyłości stężenie leptyny we krwi jest podwyższone, co sugeruje oporność na ten hormon [11]. Neurony POMC i neurony NPY jądra łukowatego należą do głównych miejsc występowania receptora leptyny [11]. Jednym z badanych mechanizmów oporności jest miejscowy stan zapalny podwzgórza [10]. W pracy Thalera i współpracowników zapalenie i reaktywna glioza, czyli rozrost i aktywacja komórek glejowych, obejmowały u gryzoni jądro łukowate, a u ludzi z otyłością obrazowanie wykazało cechy gliozy w podstawno-przyśrodkowej części podwzgórza [10]. Związek ten opisuje współwystępowanie, a nie udowodnioną przyczynę oporności na leptynę u człowieka.
Drugim stanem są uderzenia gorąca w okresie menopauzy. U kobiet po menopauzie neurony KNDy jądra lejkowatego ulegają przerostowi [2, 15]. U szczurów neurony te wysyłają aksony do okolic przedwzrokowych z receptorem neurokininy 3, a pobudzenie tego receptora w jądrze przedwzrokowym przyśrodkowym obniża temperaturę ciała [15]. Usunięcie neuronów KNDy zmniejszało u szczurów rozszerzenie naczyń skóry [15]. Na tej podstawie Rance i współpracownicy sformułowali hipotezę, że neurony KNDy przekazują sygnał niedoboru estrogenów do ośrodków odprowadzania ciepła i uczestniczą w powstawaniu uderzeń gorąca [15].
Z hipotezą tą zgodne są wyniki leku blokującego receptor neurokininy 3. W badaniu SKYLIGHT 1 kobiety w wieku 40–65 lat z co najmniej siedmioma umiarkowanymi lub ciężkimi uderzeniami gorąca na dobę przydzielono losowo do fezolinetantu albo placebo [28]. Po 12 tygodniach fezolinetant zmniejszał częstość objawów naczynioruchowych bardziej niż placebo, o 2,39 albo 2,55 epizodu na dobę więcej niż placebo, w dwóch ramionach z lekiem [28]. Poprawa pojawiała się po pierwszym tygodniu i utrzymywała się do 52. tygodnia, a działania niepożądane w pierwszych 12 tygodniach występowały nie częściej niż w grupie placebo. Podwyższenie aktywności enzymów wątrobowych notowano rzadko [28]. Fezolinetant jest lekiem niehormonalnym, który blokuje receptor dla neurokininy B, peptydu wytwarzanego przez neurony KNDy [15, 28].
3.3. Ocena i obrazowanie
Ocena jądra łukowatego u żyjącego człowieka jest pośrednia, bo jego populacje neuronów są rozproszone i przemieszane [11, 12]. Bezpośredni opis budowy i liczby neuronów pochodzi z badań tkanki pobranej pośmiertnie, w których mierzono wielkość i liczbę komórek wytwarzających określone peptydy [2]. W badaniach u ludzi stosuje się zatem dwie drogi pośrednie: obrazowanie podwzgórza i badanie genów szlaku melanokortynowego.
Obrazowanie rezonansem magnetycznym obejmuje całą podstawno-przyśrodkową część podwzgórza, a nie samo jądro łukowate. W pracy Thalera i współpracowników ten obszar wykazywał u osób z otyłością cechy nasilonej gliozy [10]. Pomiar ten ma charakter badawczy i opisuje grupę osób, a nie stan neuronów konkretnego pacjenta. W zespole podwzgórzowym obrazowanie służy ocenie guza i rozległości uszkodzenia podwzgórza, a kryteria rozpoznania samego zespołu nie są w pełni ustalone [27].
Badanie genetyczne pozwala wykryć wyłączenie konkretnego ogniwa szlaku. W pracy Farooqi i współpracowników sekwencjonowano gen MC4R u 500 osób z ciężką otyłością rozpoczętą w dzieciństwie, a następnie badano rodziny nosicieli [7]. Do badań setmelanotydu włączano osoby z dwuallelowymi wariantami genów POMC albo receptora leptyny [8]. Wynik badania genetycznego opisuje więc stan szlaku sygnałowego, a nie stan samego jądra łukowatego.
3.4. Czynniki wpływające na stan struktury
Stan i czynność jądra łukowatego zależą od czynników niemodyfikowalnych, takich jak geny, płeć i wiek, oraz od czynników zmiennych, takich jak skład diety i leki działające na jego obwody. Część tych czynników opisano u ludzi, a część wyłącznie w modelach zwierzęcych. Od tego zależy siła wniosków, jakie można z nich wyprowadzić dla człowieka.
Do czynników niemodyfikowalnych należą warianty genów szlaku melanokortynowego, które w postaci dwuallelowej albo przy całkowitej utracie funkcji receptora dają ciężką otyłość [7, 8]. Czynność jądra zależy też od hormonów płciowych. Estradiol reguluje pobudliwość neuronów kisspeptynowych, POMC i AgRP, a najsilniej działa na neurony kisspeptynowe [17]. Aktywność neuronów TIDA różni się między płciami [16]. U kobiet po menopauzie neuronów z mRNA prodynorfiny było w jądrze lejkowatym mniej niż przed menopauzą, a zmiany te według autorów wynikają z wygaśnięcia czynności jajników [2].
Czynnikiem zmiennym jest skład diety, ale dane o jego wpływie na samo jądro pochodzą głównie z badań na gryzoniach. U szczurów i myszy dieta wysokotłuszczowa wywoływała sygnalizację zapalną w podwzgórzu po 1–3 dniach, zanim masa ciała istotnie wzrosła, a w pierwszym tygodniu gliozę i cechy uszkodzenia neuronów w jądrze łukowatym [10]. Zmiany te początkowo ustępowały, a przy dalszym karmieniu tą dietą zapalenie i glioza wracały na stałe [10]. U ludzi odpowiadają temu jedynie obrazowe cechy gliozy w badaniu przekrojowym, które nie pozwalają ustalić kierunku zależności [10].
Na obwody jądra łukowatego działają też leki. Setmelanotyd jest agonistą receptora MC4R, więc zastępuje brakujący sygnał α-MSH tam, gdzie uszkodzenie leży przed receptorem [8]. W jednoramiennych, otwartych badaniach fazy 3 co najmniej 10-procentowy spadek masy ciała po około roku osiągnęło 8 z 10 chorych z niedoborem POMC i 5 z 11 chorych z niedoborem receptora leptyny [8]. Najczęstszymi działaniami niepożądanymi były odczyny w miejscu wstrzyknięcia (u wszystkich chorych w obu badaniach) oraz przebarwienia skóry w badaniu POMC [8]. Przebarwienia są zgodne z mechanizmem działania leku, bo peptydy melanokortynowe wpływają także na barwnik [6].
Agoniści receptora GLP-1 działają w tym obwodzie wcześniej niż setmelanotyd, bo w modelach gryzoni liraglutyd trafiał do samych neuronów jądra łukowatego [13]. U szczurów spadek masy ciała po liraglutydzie nie zależał od receptorów GLP-1 w nerwie błędnym, polu najdalszym ani jądrze przykomorowym [13]. U myszy lek trafiał do neuronów POMC/CART jądra łukowatego, a autorzy uznali receptor GLP-1 na tych neuronach za prawdopodobne miejsce jego działania [13]. W badaniach klinicznych u ludzi mierzono skutki leczenia, takie jak zmiana masy ciała, a nie czynność jądra łukowatego [29]. W badaniu STEP 1 u 1961 dorosłych bez cukrzycy masa ciała zmniejszyła się po 68 tygodniach średnio o 14,9% przy semaglutydzie i o 2,4% przy placebo [29]. Najczęstszymi działaniami niepożądanymi były nudności i biegunka, zwykle przemijające [29]. Udział jądra łukowatego w tym efekcie u człowieka pozostaje wnioskiem z badań na zwierzętach.
4. Na co warto zwrócić uwagę
Jądro łukowate bywa przedstawiane jako „ośrodek głodu i sytości”, czyli pojedyncze miejsce w mózgu, które samo decyduje o tym, czy organizm je. Przeglądy obwodów łaknienia opisują jednak kontrolę jedzenia jako pracę kilku równoległych obwodów [23, 30]. Sternson i Eiselt opisali trzy główne obwody nerwowe, które silnie i szybko wpływają na łaknienie, a każdy z nich ma inne właściwości [30]. Andermann i Lowell wyróżnili obok obwodów jądra łukowatego kontrolę łaknienia przez sygnały z przewodu pokarmowego podczas posiłku oraz procesy układu limbicznego i poznawcze, które zmieniają wartość nagrody i postrzeganie pokarmu [23]. Na rozproszenie kontroli wskazują też wyniki doświadczeń. Po usunięciu neuronów AgRP u noworodków myszy ich rolę według autorów przejmowały inne elementy sieci [18]. Receptory MC4R w różnych okolicach mózgu odpowiadają osobno za spożycie pokarmu i za wydatek energii [24]. Jądro łukowate jest więc ważnym węzłem rozproszonej sieci, a nie samodzielnym ośrodkiem.
Drugie nieporozumienie dotyczy tego, co mierzą neurony AgRP. Opis „neuronów głodu” sugeruje prosty wskaźnik niedoboru energii, który maleje dopiero po zjedzeniu posiłku. U myszy aktywność tych neuronów spadała jednak już po wykryciu pokarmu zmysłami, zanim zwierzę zaczęło jeść [22]. Neurony AgRP reagują więc także na sygnały zapowiadające uzupełnienie zapasów, a nie tylko na samo uzupełnienie [22, 23]. Dla interpretacji ma to jedno następstwo: wysoka lub niska aktywność tych neuronów w danej chwili nie odpowiada wprost wielkości zapasów tłuszczu.
Trzecie zastrzeżenie dotyczy przenoszenia danych ze zwierząt na człowieka. Mechanizmy działania neuronów POMC, AgRP i KNDy opisano głównie u myszy i szczurów [11, 12, 15]. U ludzi bezpośrednie dane pochodzą z mutacji genetycznych, z badań tkanki pobranej pośmiertnie i z obrazowania całej podstawno-przyśrodkowej części podwzgórza, a nie samego jądra [2, 7, 10]. Wnioski o działaniu agonistów receptora GLP-1 przez neurony jądra łukowatego opierają się na badaniach liraglutydu u gryzoni [13]. Wyniki setmelanotydu dotyczą rzadkich postaci otyłości genetycznej i pochodzą z dwóch badań jednoramiennych, obejmujących łącznie 21 chorych [8]. Rozpoznanie zaburzeń hormonalnych i otyłości oraz decyzja o leczeniu należą do lekarza, a opisane wyniki badań nie zastępują porady medycznej.