1. Charakterystyka
1.1. Definicja i nazewnictwo
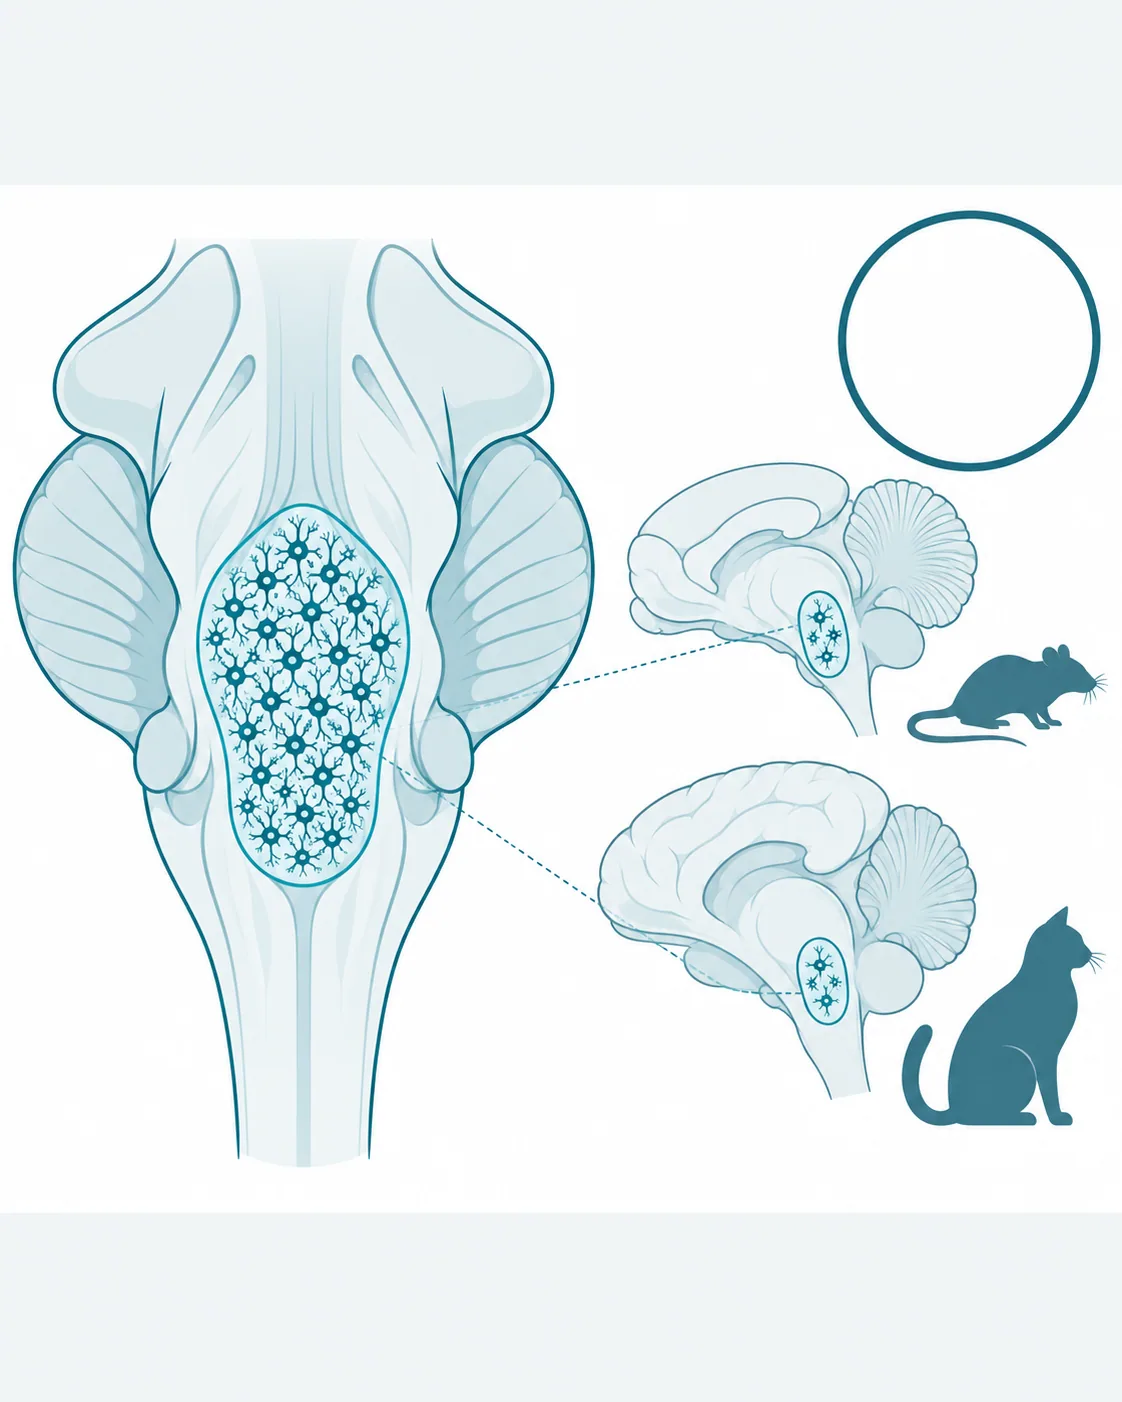
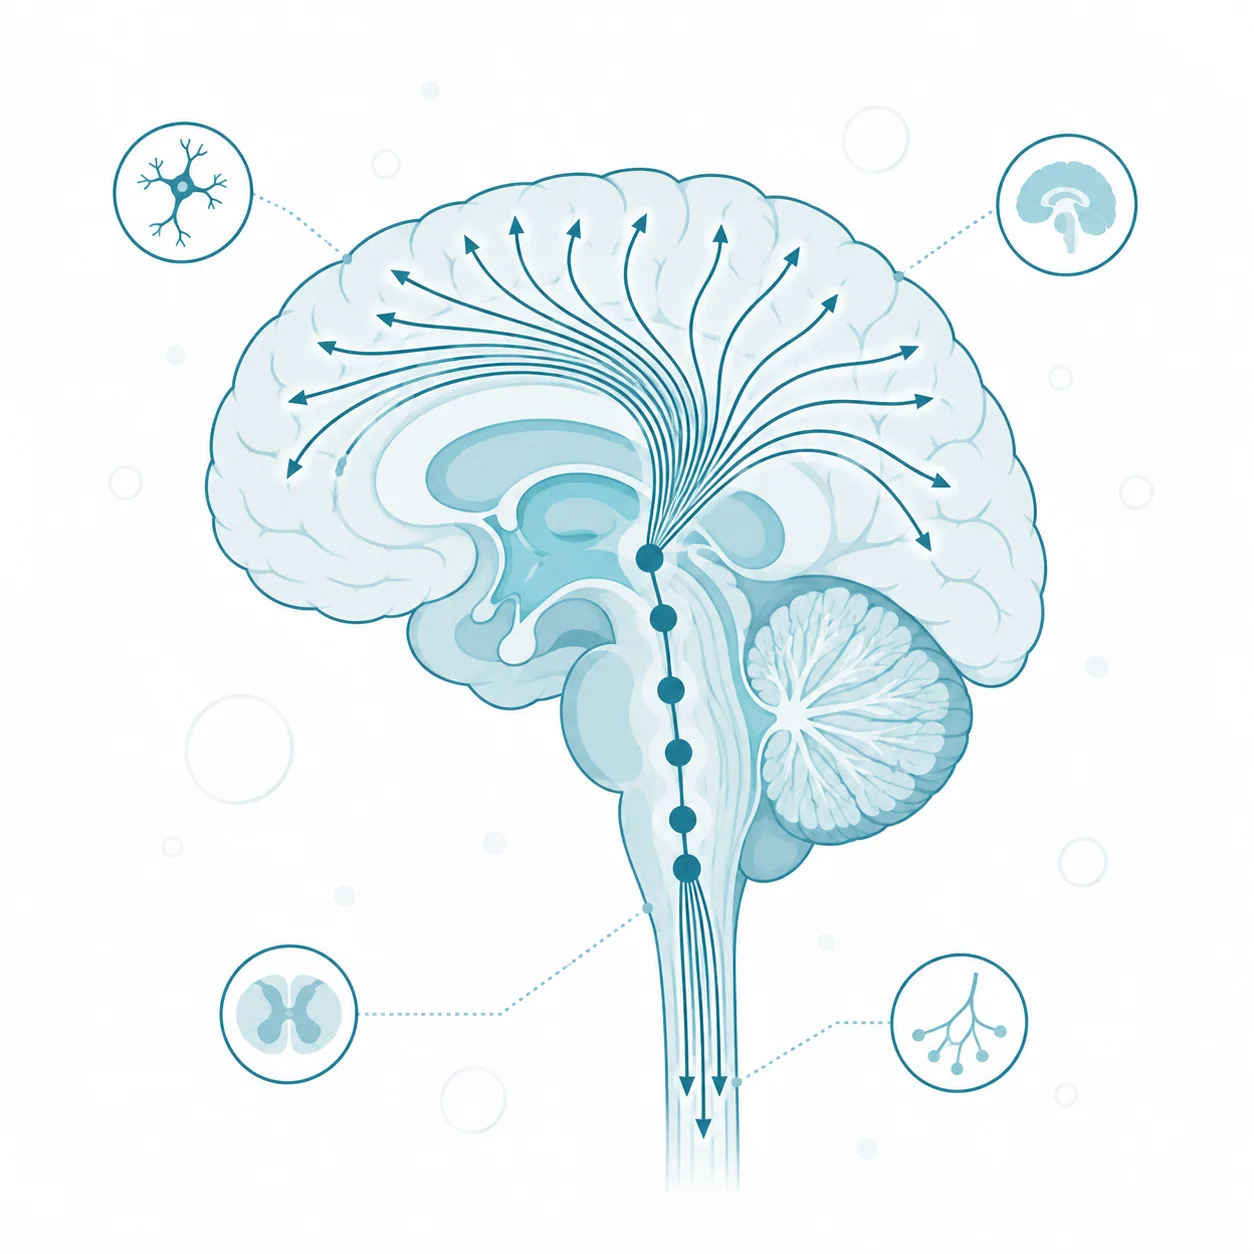
Jądra szwu (łac. nuclei raphes) to zespół skupisk neuronów leżących przy linii pośrodkowej pnia mózgu na całej jego długości [1]. Nazwa pochodzi od szwu, czyli pośrodkowego pasma tkanki, wzdłuż którego jądra te układają się po obu stronach. Głównym składnikiem jąder szwu są neurony wytwarzające serotoninę [1]. Grupy tych neuronów oznacza się w tyłomózgowiu symbolami od B1 do B9 [2].
W obrębie zespołu wyróżnia się dwie części o odmiennym położeniu i odmiennym celu projekcji. Część dziobowa leży w śródmózgowiu i górnym moście, a jej aksony biegną głównie do przodomózgowia [1]. Część ogonowa zajmuje dolny most i rdzeń przedłużony, a jej neurony unerwiają pień mózgu i rdzeń kręgowy [1]. Podział ten utrzymuje się od okresu zarodkowego, bo obie części powstają z odrębnych zawiązków [1].
Jądra szwu nie są tożsame z układem serotoninergicznym. Układ ten obejmuje wszystkie neurony serotoninowe wraz z ich aksonami i receptorami w strukturach docelowych. Część neuronów serotoninowych leży przy tym poza jądrami szwu, w bocznych odcinkach tworu siatkowatego [1]. Odwrotnie, nie wszystkie neurony jąder szwu wytwarzają serotoninę. W jądrze grzbietowym szwu myszy wyodrębniono na podstawie profilu genów co najmniej 18 podtypów neuronów oraz 5 podtypów neuronów serotoninowych [3]. Kryterium różnicującym jest więc położenie w linii pośrodkowej pnia, a nie rodzaj wydzielanego przekaźnika.
Zakres pojęcia obejmuje zatem wszystkie komórki leżące w granicach tych jąder, także nieserotoninowe. W jądrze grzbietowym szwu dorosłego człowieka policzono w barwieniu ogólnym około 235 000 neuronów wszystkich typów w objętości 71,3 mm³ [4]. Z jąder szwu pochodzi unerwienie serotoninowe ośrodkowego układu nerwowego [2]. Zaburzenia w tych jądrach opisano w depresji, w zespole nagłej śmierci niemowląt i w chorobach zwyrodnieniowych mózgu [5–7].
1.2. Lokalizacja
Jądra szwu rozciągają się wzdłuż linii pośrodkowej pnia mózgu od śródmózgowia po rdzeń przedłużony [1]. Ich położenie najłatwiej opisać według pięter pnia, bo na każdym z nich leżą inne jądra. Granice poszczególnych jąder wyznacza się w preparatach pośmiertnych na podstawie kształtu, wielkości i gęstości neuronów [4].
W śródmózgowiu i górnej części mostu leżą jądra części dziobowej: jądro linijne ogonowe, jądro grzbietowe szwu i jądro środkowe szwu [1]. Jądro grzbietowe szwu zajmuje istotę szarą środkową śródmózgowia i mostu, czyli pasmo istoty szarej otaczające wodociąg mózgu [4]. Jądro środkowe szwu leży niżej, w nakrywce mostu [8]. W tej samej okolicy neurony serotoninowe tworzą też dwa skupiska poza linią pośrodkową: w jądrze siatkowatym mostu i w okolicy nadwstęgowej, oznaczanej jako grupa B9 [8].
W dolnym moście i w rdzeniu przedłużonym leżą jądra części ogonowej: jądro wielkie szwu, jądro ciemne szwu i jądro blade szwu [1]. Do tej części zalicza się także neurony serotoninowe przyległych odcinków bocznego tworu siatkowatego [1]. Z położenia wynika kierunek projekcji: jądra leżące wyżej unerwiają przodomózgowie, a jądra leżące niżej pień mózgu i rdzeń kręgowy [1].
1.3. Budowa i podział na części
Każde z jąder szwu ma własną budowę wewnętrzną, a najdokładniej opisano ją u człowieka w jądrze grzbietowym. W seryjnych przekrojach mózgów czterech dorosłych wyodrębniono w nim pięć podjąder: międzypęczkowe, brzuszne, brzuszno-boczne, grzbietowe i ogonowe [4]. Podjądro grzbietowe było największe i zawierało najwięcej neuronów, ale miało najmniejszą gęstość komórek [4]. Największą gęstość neuronów stwierdzono w podjądrze brzuszno-bocznym [4].
Neurony jądra grzbietowego człowieka różnią się kształtem ciała komórkowego. Autorzy pomiaru opisali cztery typy: okrągłe, owalne, wrzecionowate i trójkątne, przy czym każde podjądro miało przewagę określonych typów [4]. Podział na podjądra okazał się podobny do opisanego u innych ssaków [4]. Według autorów pozwala to przewidywać położenie neuronów o określonych projekcjach w jądrze człowieka na podstawie danych zwierzęcych [4].
Jądro środkowe szwu człowieka zawiera duże skupiska neuronów serotoninowych. Zliczano je na podstawie barwienia enzymu biorącego udział w syntezie serotoniny [8]. W nakrywce mostu policzono w ten sposób około 125 000 takich neuronów, z czego 64 400 w jądrze środkowym szwu, 30 700 w jądrze siatkowatym mostu i 29 000 w grupie B9 [8]. U szczura i kota neuronów serotoninowych w tej okolicy jest znacznie mniej [8]. Wnioski o liczebności i rozmieszczeniu tych neuronów nie przenoszą się więc wprost z gryzoni na człowieka.
U myszy grupom komórek serotoninowych przypisano konkretne jądra. Jądro grzbietowe szwu odpowiada grupie B7, z częściami grzbietową, brzuszną i boczną, a jego ogonowy odcinek grupie B6 [2]. Dziobowa część jądra środkowego szwu odpowiada grupie B8, a ogonowa grupie B5 [2]. Grupy od B5 do B9 tworzą część dziobową zespołu [2]. Pozostałe grupy tyłomózgowia, od B1 do B4, należą do części ogonowej.
Jądra szwu różnią się położeniem, oznaczeniem grupy komórek i głównym celem projekcji [1, 2, 8].
| Jądro lub grupa | Położenie | Oznaczenie grupy | Główny cel projekcji |
| jądro grzbietowe szwu | istota szara środkowa śródmózgowia i mostu | B7, odcinek ogonowy B6 | przodomózgowie, w tym kora i ciało migdałowate |
| jądro środkowe szwu | nakrywka mostu | B8 i B5 | hipokamp, przegroda, jądra nakrywki |
| okolica nadwstęgowa | nakrywka mostu poza linią pośrodkową | B9 | jądro ogoniaste, kora przedczołowa, istota czarna |
| jądra wielkie, ciemne i blade szwu | dolny most i rdzeń przedłużony | B1–B4 łącznie | pień mózgu i rdzeń kręgowy |
Zestawienie pokazuje, że oznaczenia grup B pochodzą z badań na zwierzętach, a granice jąder z badań anatomicznych mózgu człowieka. Przypisanie grup do jąder człowieka jest więc przybliżeniem opartym na podobieństwie podziału.
1.4. Rys historyczny
W 1964 roku A. Dahlström i K. Fuxe opisali obecność monoamin w ciałach neuronów pnia mózgu [9]. Tytuł pracy przedstawia ją jako dowód istnienia neuronów zawierających monoaminy w ośrodkowym układzie nerwowym [9].
Najdłuższy spór dotyczył roli jąder szwu w śnie. Wczesne badania przypisywały serotoninie działanie sprzyjające zasypianiu [10]. W 1976 roku D. J. McGinty i R. M. Harper opisali u kotów spadek częstości wyładowań neuronów jądra grzbietowego szwu w czasie snu [11]. Obowiązujący pogląd przesunął się następnie w stronę roli jąder szwu w podtrzymywaniu czuwania [10].
W 2019 roku G. Oikonomou i współpracownicy opisali u danio pręgowanego i u myszy wyniki przeciwne temu poglądowi [10]. Zniszczenie jąder szwu zmniejszało ilość snu, a ich stałe pobudzanie z częstością zbliżoną do spoczynkowej wywoływało sen [10]. Autorzy uznali, że jądra szwu są potrzebne do zapoczątkowania i podtrzymania snu, a rola serotoniny w śnie była dotąd przedmiotem sporu [10].
2. Połączenia i funkcjonowanie
2.1. Połączenia wejściowe
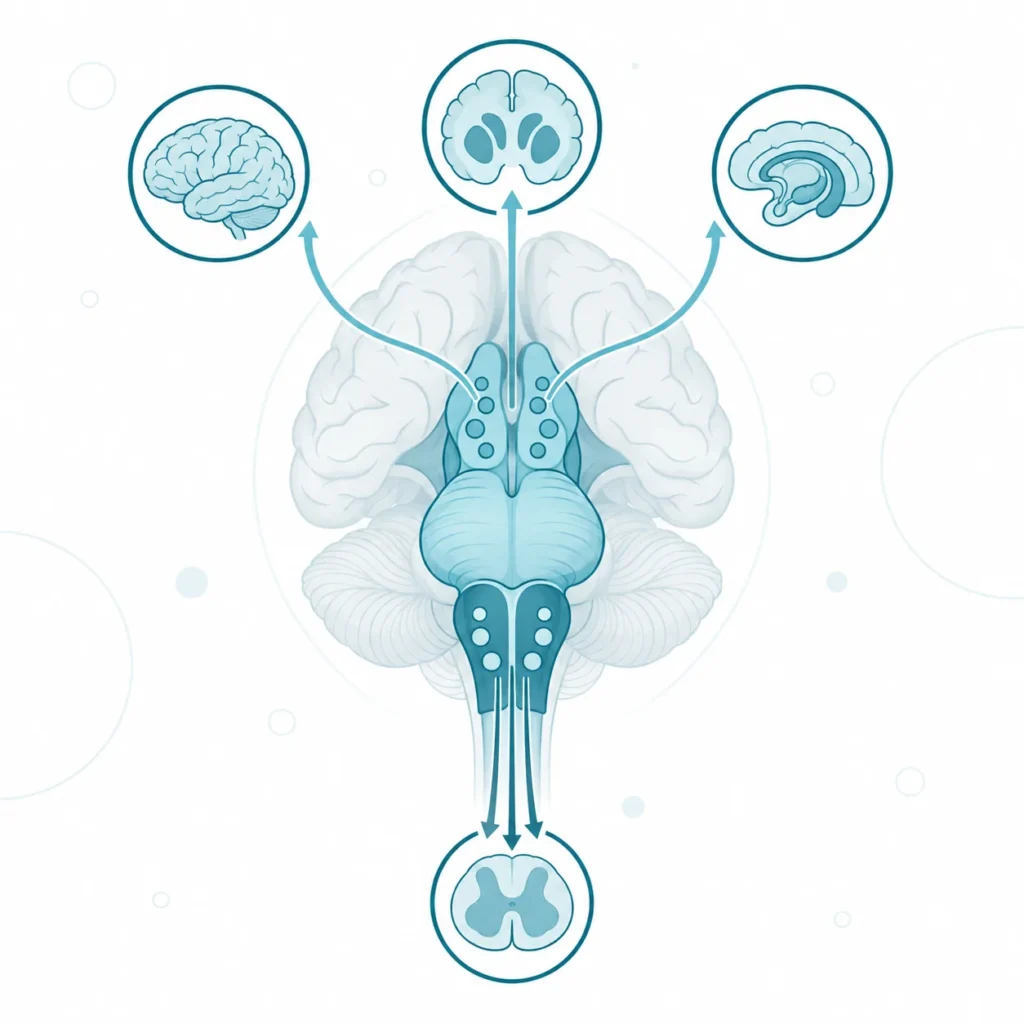
Neurony serotoninowe jąder szwu odbierają sygnały z wielu pięter mózgu, od kory po pień. Pełną mapę bezpośrednich wejść do neuronów serotoninowych jądra grzbietowego i środkowego szwu, wysyłających aksony do przodomózgowia, sporządzono u myszy metodą wstecznego śledzenia połączeń przez jedną synapsę [12]. Wejścia pochodziły z podwzgórza, z kory, z jąder podstawy i ze śródmózgowia [12]. Ich układ okazał się bardziej złożony i bardziej swoisty dla typów komórek, niż zakładano [12].
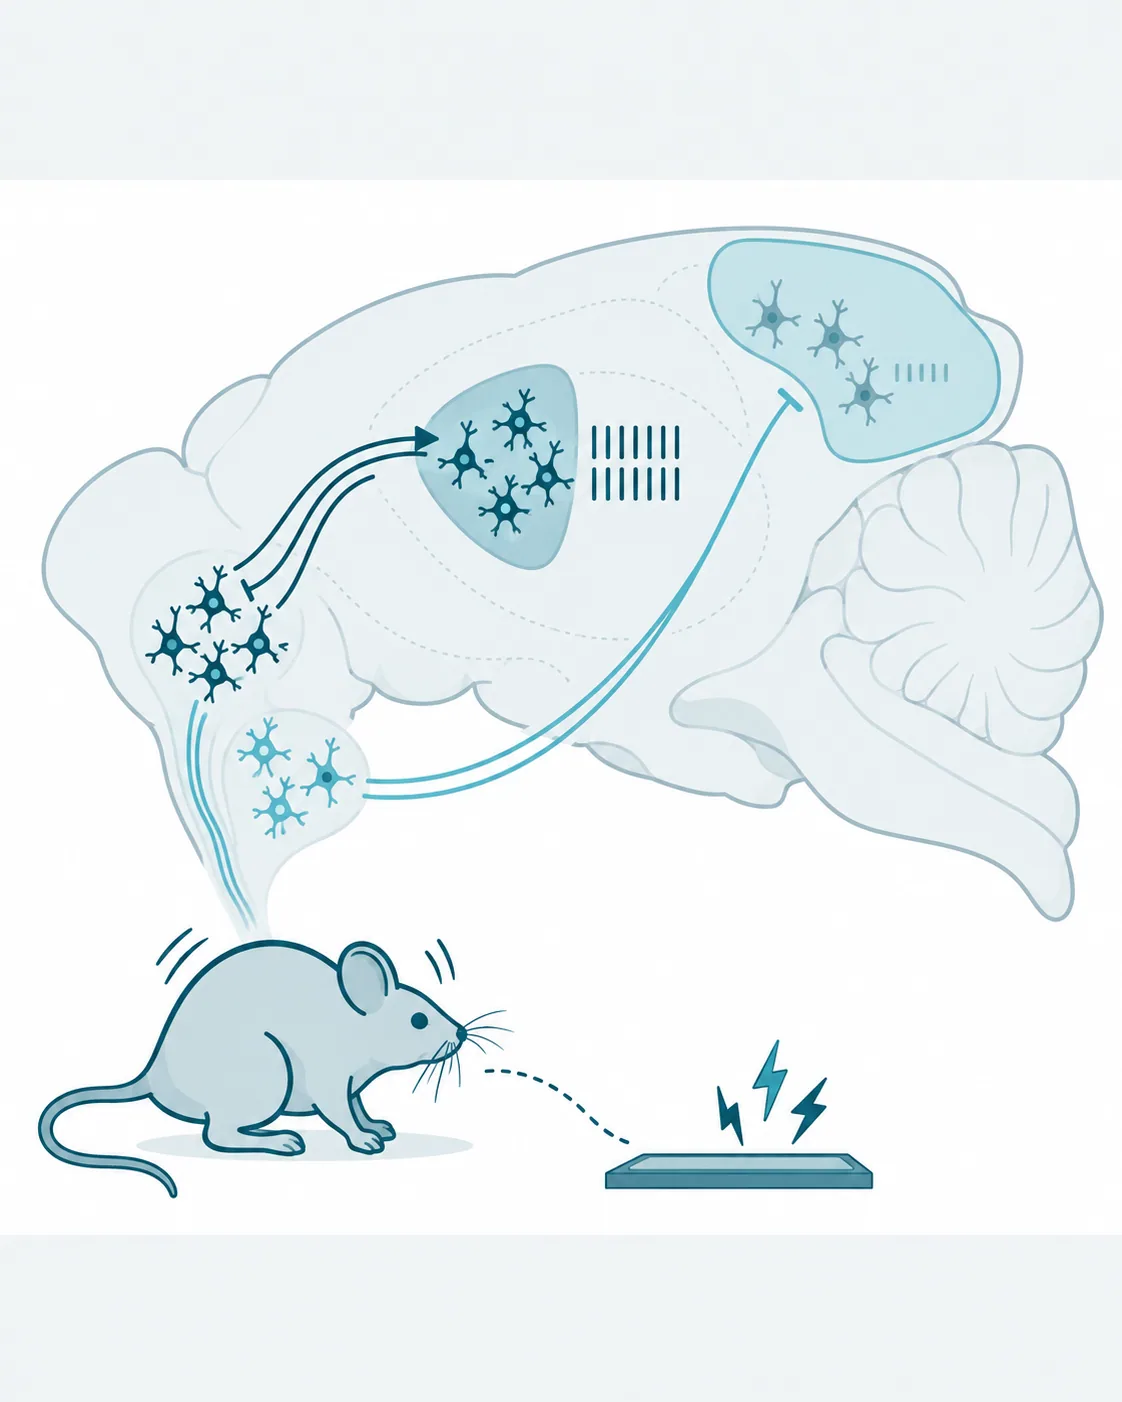
W tym samym badaniu potwierdzono czynnościowo trzy bezpośrednie drogi [12]. Z kory przedczołowej i z habenuli bocznej docierają do neuronów serotoninowych włókna pobudzające, uwalniające glutaminian [12]. Habenula boczna jest jądrem nadwzgórza. Z prążkowia biegnie natomiast bezpośrednie wejście hamujące, uwalniające GABA, czyli kwas γ-aminomasłowy, główny przekaźnik hamujący mózgu [12]. Autorzy podkreślili znaczenie takich wejść omijających stacje pośrednie, które łączą korę i jądra podstawy wprost z jądrami szwu [12].
Wejście z przyśrodkowej kory przedczołowej ma u szczurów znaczenie czynnościowe w odpowiedzi na stres. Brzuszna część tej kory, czyli okolice infralimbiczna i przedlimbiczna, rozpoznawała, czy zwierzę może kontrolować działający na nie bodziec stresowy [13]. Gdy bodziec był kontrolowalny, kora ta hamowała wywołaną stresem aktywację jądra grzbietowego szwu [13]. Wejścia do jądra grzbietowego nie rozkładają się przy tym równo: u myszy neurony unerwiające ciało migdałowate i neurony unerwiające korę czołową otrzymywały wejścia z różnych źródeł w różnych proporcjach [14].
Trzy bezpośrednie wejścia do neuronów serotoninowych jąder szwu różnią się źródłem, przekaźnikiem i działaniem [12].
| Źródło | Przekaźnik | Wpływ na neurony serotoninowe |
| kora przedczołowa | glutaminian | pobudzający |
| habenula boczna | glutaminian | pobudzający |
| neurony projekcyjne prążkowia | GABA | hamujący |
Jądra szwu nie działają więc samodzielnie: ich aktywność zależy od kory oceniającej sytuację i od jąder podstawy, a zestaw wejść różni się między podpopulacjami neuronów.
2.2. Połączenia wyjściowe
Aksony neuronów serotoninowych jąder szwu docierają do rozległych obszarów ośrodkowego układu nerwowego. Rozgałęziają się na dużych terytoriach, obejmujących struktury o bardzo różnych czynnościach [1]. Część zakończeń tworzy klasyczne synapsy chemiczne, ale wiele z nich synaps nie tworzy [1]. Serotonina uwalniana z takich zakończeń dyfunduje w przestrzeni międzykomórkowej i działa na receptory w pewnej odległości, co nazywa się przekaźnictwem objętościowym [1].
Część dziobowa zespołu unerwia głównie przodomózgowie [1]. Jądro grzbietowe i jądro środkowe szwu wysyłają do wielu struktur przodomózgowia projekcje równoległe i częściowo nakładające się, a ich aksony różnią się budową i właściwościami [1]. U myszy jądro grzbietowe szwu zasilało głównie podstawne części przodomózgowia, w tym ciało migdałowate [2]. Jądro środkowe szwu było głównym źródłem serotoniny dla hipokampu, przegrody i jąder nakrywki śródmózgowia i mostu [2]. Grupa B9 wysyłała włókna do jądra ogoniastego, kory przedczołowej, istoty czarnej i miejsca sinawego [2].
W obrębie samego jądra grzbietowego poszczególne części mają różne cele. U myszy brzuszna część jądra była głównym źródłem serotoniny dla kory i ciała migdałowatego, a część grzbietowa unerwiała podwzgórze [2]. Neurony unerwiające korę i neurony unerwiające struktury podkorowe miały w jądrze odrębne rozmieszczenie ciał komórkowych [14]. Neurony biegnące do ciała migdałowatego i do kory czołowej wysyłały przy tym boczne odgałęzienia do w dużej mierze odmiennych, wzajemnie uzupełniających się zestawów struktur [14]. U myszy opisano też podtyp neuronów serotoninowych unerwiający przede wszystkim jądra podstawy [3].
Część ogonowa zespołu unerwia pień mózgu i rdzeń kręgowy [1]. Do rdzenia biegną trzy równoległe projekcje: do rogów tylnych, do istoty szarej pośredniej i do rogów przednich [1]. Każde z tych pięter rdzenia pełni inną rolę, bo rogi tylne przetwarzają czucie, a rogi przednie zawierają neurony ruchowe. Ten sam przekaźnik może więc jednocześnie zmieniać przewodzenie bólu i pobudliwość mięśni, zależnie od tego, które piętro rdzenia unerwia dana grupa neuronów.
2.3. Neurochemia obszaru
Neurochemia jąder szwu obejmuje własny przekaźnik neuronów serotoninowych, ich receptory zwrotne i przekaźniki współuwalniane. Serotonina powstaje w tych neuronach z tryptofanu, a kluczowym enzymem jej syntezy jest hydroksylaza tryptofanu typu 2, w skrócie TPH2 [6]. Po uwolnieniu przekaźnik jest wychwytywany z powrotem do zakończeń przez transporter serotoniny, białko błonowe, które jest punktem uchwytu leków przeciwdepresyjnych z grupy SSRI, czyli selektywnych inhibitorów wychwytu zwrotnego serotoniny [15].
Na ciałach komórkowych neuronów jądra grzbietowego szwu leżą receptory serotoninowe typu 5-HT1A [5]. Działają one jako autoreceptory, czyli receptory pobudzane przez przekaźnik uwalniany przez ten sam neuron. W stanie wyjściowym neurony serotoninowe wyładowują się i uwalniają serotoninę zarówno w strukturach docelowych, jak i w obrębie samego jądra. Pobudzenie autoreceptorów 5-HT1A hamuje wyładowania neuronów serotoninowych i zmniejsza uwalnianie przekaźnika w korze przedczołowej [5]. Neuron ogranicza w ten sposób własną aktywność, gdy w jego otoczeniu przybywa serotoniny.
Ten sam mechanizm wpływa na działanie leków hamujących transporter serotoniny. Zablokowanie transportera podnosi stężenie serotoniny także wokół ciał komórkowych w jądrach szwu, co pośrednio pobudza autoreceptory 5-HT1A [15]. W efekcie zmniejsza się aktywność neuronów serotoninowych i uwalnianie przekaźnika z ich zakończeń, a to przeciwdziała wzrostowi stężenia serotoniny w przodomózgowiu [15]. Przewlekłe podawanie leków przeciwdepresyjnych odczula autoreceptory, przez co to ujemne sprzężenie zwrotne słabnie [15]. Zapobieganie temu hamowaniu przez pindolol, częściowego agonistę receptora 5-HT1A, przyspieszało w badaniach klinicznych działanie leków przeciwdepresyjnych [15].
Neurony jąder szwu wydzielają także inne przekaźniki niż serotonina. U myszy neurony serotoninowe jądra grzbietowego unerwiające korę i struktury podkorowe różniły się wytwarzaniem pęcherzykowego transportera glutaminianu typu 3, czyli białka pozwalającego współuwalniać glutaminian [14]. W tym samym jądrze występują też liczne podtypy neuronów nieserotoninowych o odrębnym profilu genów i odrębnym rozmieszczeniu [3]. Skład neurochemiczny jądra decyduje więc o tym, że jego pobudzenie może uwalniać w strukturach docelowych mieszaninę przekaźników, a nie samą serotoninę.
2.4. Funkcje jąder szwu
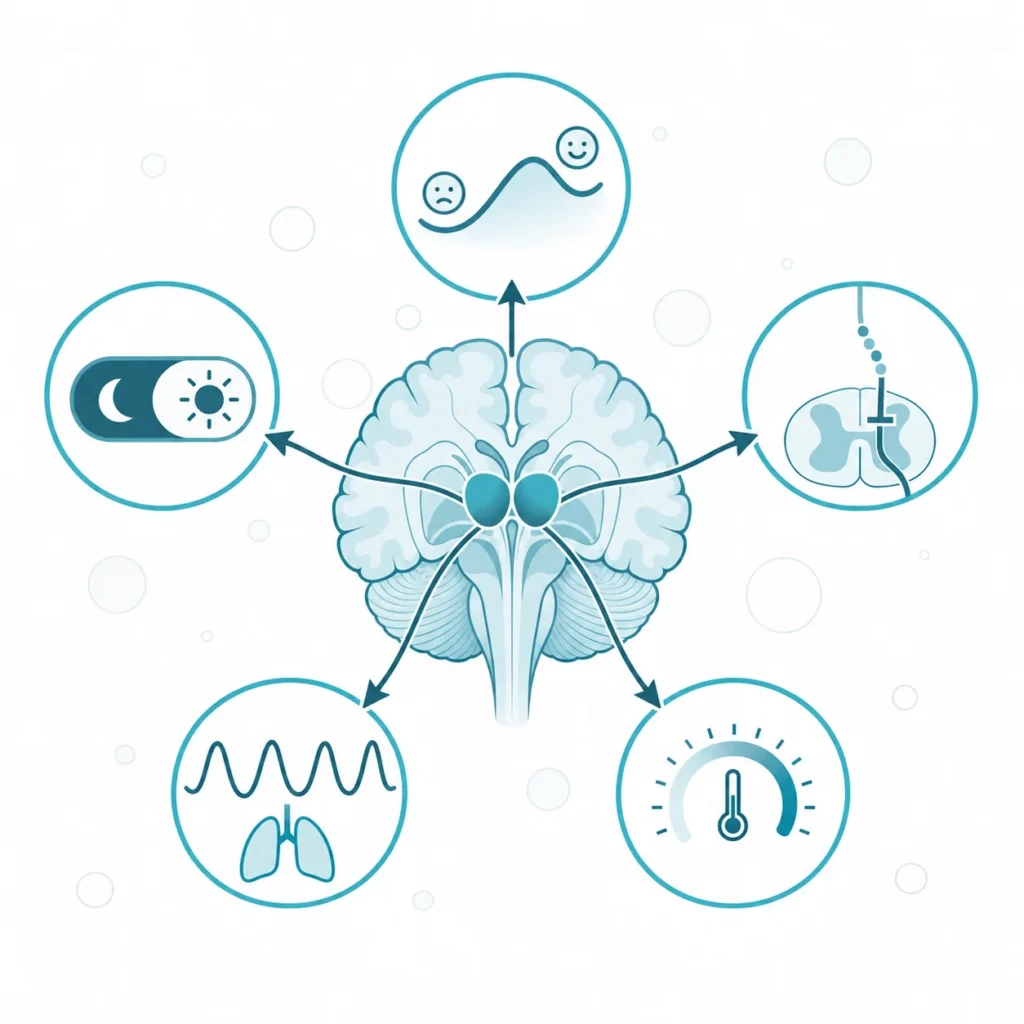
Jądra szwu uczestniczą w regulacji nastroju i odpowiedzi na stres, a także snu, bólu, oddychania, temperatury ciała i ruchu [1, 16]. Projekcje serotoninowe uczestniczą w pracy układów ruchowych, czuciowych i limbicznych, czyli związanych z emocjami [1]. Większość danych na temat funkcjonowania jąder szwu pochodzi z doświadczeń na gryzoniach, w których można wybiórczo pobudzać lub wyciszać określone grupy neuronów.
2.4.1. Nastrój i odpowiedź na stres
Jądro grzbietowe szwu jest tą częścią, którą najczęściej wiąże się z nastrojem, lękiem i radzeniem sobie ze stresem. U myszy neurony serotoninowe tego jądra unerwiające ciało migdałowate i neurony unerwiające korę czołową reagowały na bodźce awersyjne w przeciwnych kierunkach [14]. Pobudzanie i wyciszanie każdej z tych grup przyniosło spójny obraz: neurony biegnące do ciała migdałowatego nasilały zachowania przypominające lęk [14]. Neurony biegnące do kory czołowej sprzyjały natomiast aktywnemu radzeniu sobie w sytuacji wyzwania [14].
Drugim czynnikiem decydującym o skutkach stresu jest możliwość jego kontrolowania. U szczurów bodziec stresowy, którego zwierzę nie mogło kontrolować, aktywował jądro grzbietowe szwu i wywoływał szereg następstw behawioralnych [13]. Przy bodźcu kontrolowalnym przyśrodkowa kora przedczołowa hamowała tę aktywację, a następstwa behawioralne nie występowały [13]. Autorzy uznali, że obecność kontroli hamuje wywołaną stresem aktywność jąder pnia, wbrew poglądowi, że aktywność tę wywołuje brak kontroli [13].
Oba wyniki pokazują, że jądro grzbietowe szwu nie wytwarza jednego „sygnału nastroju”. O skutku decyduje to, która podpopulacja neuronów jest aktywna i jak kora przedczołowa ocenia sytuację. Dane pochodzą z badań na gryzoniach, w których lęk i radzenie sobie ocenia się na podstawie zachowania, dlatego ich przeniesienie na przeżycia człowieka wymaga ostrożności.
2.4.2. Sen i czuwanie
Aktywność neuronów serotoninowych jądra grzbietowego szwu zmienia się w kolejnych stanach cyklu snu i czuwania. U kotów ustanie ich wyładowań okazało się kluczowym zdarzeniem snu REM, czyli snu z szybkimi ruchami gałek ocznych (ang. rapid eye movement) [17]. Pomiar mikrodializą wykazał, że w śnie REM w jądrze grzbietowym szwu wzrasta wybiórczo uwalnianie GABA, bez zmian w uwalnianiu glutaminianu i glicyny [17].
Udział GABA potwierdziły doświadczenia farmakologiczne na tych samych zwierzętach. Podanie do jądra muscymolu, czyli substancji pobudzającej receptory GABA, zwiększało ilość snu REM [17]. Przepłukiwanie jądra pikrotoksyną, która blokuje te receptory, znosiło sen REM [17]. Hamujący przekaźnik wycisza więc neurony serotoninowe na czas snu REM, a według autorów to wyciszenie jest krytycznym elementem wytwarzania tej fazy snu.
Rola jąder szwu w zasypianiu i podtrzymaniu snu jest mniej jednoznaczna. U myszy zniszczenie jąder szwu zwiększało ilość czuwania i osłabiało odpowiedź homeostatyczną na pozbawienie snu, czyli wydłużenie i pogłębienie snu odsypiającego [10]. Pobudzanie tych samych neuronów salwami impulsów wywoływało natomiast przebudzenie [10]. Autorzy powiązali ten wynik z wcześniej opisanymi salwami wyładowań neuronów szwu w odpowiedzi na bodźce pobudzające [10]. O skutku działania jąder szwu dla snu decyduje więc nie tylko ilość uwalnianej serotoniny, lecz także wzorzec wyładowań ich neuronów.
2.4.3. Kontrola bólu
Część ogonowa jąder szwu wpływa na przewodzenie bólu przez włókna zstępujące do rogów tylnych rdzenia kręgowego [1, 18]. Rogi tylne są pierwszą stacją, w której sygnał z receptorów bólowych przechodzi z neuronu czuciowego na neuron rdzenia. Serotonina uwalniana tam z zakończeń pochodzących z pnia mózgu hamuje przewodzenie z włókien czuciowych i związane z nim odruchy rdzeniowe [18].
Ten sam układ zstępujący może jednak ból nasilać. Drogi serotoninowe biegnące z dziobowej, brzuszno-przyśrodkowej części rdzenia przedłużonego do rdzenia kręgowego podtrzymują ból patologiczny po uszkodzeniu tkanek i nerwów [18]. Pośredniczą w tym receptory serotoninowe w rogach tylnych rdzenia [18]. Wpływ jąder szwu na ból jest więc dwukierunkowy. Ten sam przekaźnik hamuje przewodzenie z włókien czuciowych, a po uszkodzeniu tkanek lub nerwów może podtrzymywać ból przewlekły przez drogi ułatwiające.
2.4.4. Oddychanie i termoregulacja
Neurony serotoninowe pnia mózgu uczestniczą w dwóch odruchach homeostatycznych: w odpowiedzi oddechowej na dwutlenek węgla i w utrzymaniu temperatury ciała [16]. Wzrost stężenia dwutlenku węgla we krwi i w tkankach zakwasza środowisko, a prawidłowa odpowiedź organizmu polega na pogłębieniu i przyspieszeniu oddechu. U myszy kwasica wywołana dwutlenkiem węgla zwiększała częstość wyładowań neuronów serotoninowych [16]. Neurony te reagują więc same na sygnał, który uruchamia odruch oddechowy.
Rolę tych neuronów sprawdzono przez ich odwracalne wyciszenie. Myszy miały w neuronach serotoninowych sztuczny receptor hamujący, uruchamiany podaniem syntetycznego ligandu, który wyłącza wyładowania wyłącznie w komórkach z tym receptorem [16]. Po jego uruchomieniu zanikał wzrost częstości wyładowań w odpowiedzi na kwasicę, a odruchowe zwiększenie oddychania przy wzroście stężenia dwutlenku węgla słabło [16]. W tym samym doświadczeniu temperatura głęboka ciała zwierząt przebywających w temperaturze pokojowej gwałtownie spadała, a potem wracała do normy [16].
Autorzy uznali, że neurony serotoninowe regulują sieci podtrzymujące oddychanie i temperaturę ciała, niezbędne do przeżycia [16]. Dane pochodzą z badań na myszach. U ludzi zaburzenia tych odruchów wiąże się z jądrami szwu rdzenia przedłużonego na podstawie badań pośmiertnych niemowląt [6].
2.4.5. Kontrola ruchowa
Kontrola ruchowa jest tą czynnością jąder szwu, którą pełnią głównie włókna zstępujące do rogów przednich rdzenia kręgowego [1]. W rogach przednich leżą neurony ruchowe, których aksony biegną do mięśni szkieletowych. Uwalnianie serotoniny w tej części rdzenia odgrywa kluczową rolę w czynności ruchowej, a pobudzenie receptorów serotoninowych pośredniczy w kontroli lokomocji, czyli rytmicznego ruchu chodu [18].
Serotonina z jąder szwu zmienia pobudliwość neuronów ruchowych rdzenia [18]. Wpływ ten obejmuje rytmiczną pracę sieci rdzeniowych w czasie chodu, a projekcje serotoninowe uczestniczą w pracy układów ruchowych na wielu piętrach ośrodkowego układu nerwowego [1]. Neurony serotoninowe mają przy tym zwiększoną zdolność odrastania i tworzenia nowych odgałęzień aksonów po uszkodzeniu [18]. Ta właściwość czyni je przedmiotem badań nad odbudową czynności ruchowej po urazach rdzenia kręgowego [18].
3. Uszkodzenie i patologia
3.1. Następstwa uszkodzenia
Następstwa utraty neuronów jąder szwu poznano głównie w dwóch sytuacjach: u myszy pozbawionych tych neuronów genetycznie i u ludzi po przerwaniu dróg zstępujących w rdzeniu kręgowym. Pierwsza sytuacja pokazuje skutki braku neuronów serotoninowych w całym ośrodkowym układzie nerwowym. Druga pokazuje skutki odcięcia rdzenia od części ogonowej zespołu.
U myszy z wyłączonym w neuronach serotoninowych genem Lmx1b, czyli czynnikiem transkrypcyjnym potrzebnym do ich rozwoju, prawie wszystkie neurony serotoninowe ośrodkowego układu nerwowego nie powstają [19]. Odpowiedź oddechowa tych zwierząt na podwyższone stężenie dwutlenku węgla była o 50% mniejsza niż u myszy prawidłowych [19]. Spoczynkowa wentylacja i odpowiedź na niedotlenienie pozostały prawidłowe [19]. Brak neuronów serotoninowych upośledza więc wybiórczo reakcję na dwutlenek węgla, a nie oddychanie jako takie.
Te same myszy nie utrzymywały temperatury ciała w zimnie. W temperaturze otoczenia 4°C ich temperatura głęboka spadała do 30°C w ciągu 120 minut [19]. Przyczyną było upośledzone wytwarzanie ciepła, zarówno przez drżenie mięśniowe, jak i bez drżenia, przy prawidłowym odczuwaniu temperatury i prawidłowym ograniczaniu utraty ciepła [19]. Podanie serotoniny do komór mózgu przywracało odpowiedź oddechową na dwutlenek węgla [19]. Według autorów neurony serotoninowe wzmacniają odpowiedź pozostałej sieci oddechowej na dwutlenek węgla, a po przywróceniu przekaźnika sieć ta znów reaguje [19].
U ludzi po uszkodzeniu rdzenia kręgowego przerwanie zstępującego unerwienia serotoninowego wiąże się z porażeniem, spastycznością, zaburzeniami czucia i bólem [18]. Brak serotoniny poniżej miejsca uszkodzenia znosi jej hamujący wpływ na przewodzenie czuciowe, co odhamowuje przekazywanie sygnałów z włókien czuciowych [18]. W neuronach ruchowych pozbawionych unerwienia serotoninowego rozwija się nadwrażliwość z odnerwienia, a wynikająca z niej nadpobudliwość leży u podstaw spastyczności [18]. Utrata wpływu jąder szwu na rdzeń zmienia więc pobudliwość obwodów rdzeniowych w obu kierunkach: odhamowuje czucie i nasila odpowiedź neuronów ruchowych.
3.2. Udział jąder szwu w chorobach
Jądra szwu są zmienione w kilku chorobach, przy czym w każdej z nich dane pochodzą z innego rodzaju badań. W depresji zebrano wyniki badań pośmiertnych i obrazowych, w zespole nagłej śmierci niemowląt badań pośmiertnych, a w chorobach zwyrodnieniowych badań neuropatologicznych i obrazowych osób przed wystąpieniem objawów.
W depresji wyniki dotyczące jąder szwu są niejednoznaczne. W badaniu pośmiertnym ofiar samobójstwa chorujących na depresję wiązanie ligandu receptora 5-HT1A w jądrze grzbietowym szwu było większe niż u osób bez zaburzeń psychicznych, szczególnie w podjądrach grzbietowym i brzuszno-bocznym [5]. Autorzy uznali to za oznakę zmniejszonej aktywności neuronów serotoninowych [5]. W metaanalizie 10 badań pozytonowej tomografii emisyjnej z udziałem 218 chorych i 261 osób zdrowych wiązanie receptora 5-HT1A było natomiast mniejsze, najwyraźniej w korze przyśrodkowej płata skroniowego, a w mniejszym stopniu także w jądrach szwu [20]. Przegląd ośmiu wcześniejszych badań tą metodą wykazał spadek wiązania w czterech, brak zmian w dwóch i wzrost w dwóch, co autorzy przypisali między innymi różnicom metod [21].
Podobnie niejednoznaczne są dane o transporterze serotoniny. W metaanalizie 50 badań badania obrazowe wykazały mniejsze wiązanie transportera w pniu mózgu, w tym w śródmózgowiu, u chorych na depresję [22]. Badania pośmiertne nie wykazały zmian w pniu mózgu [22]. Wyniki różnią się więc zależnie od metody, a kierunek zmian w samych jądrach szwu pozostaje nierozstrzygnięty.
Zespół nagłej śmierci niemowląt wiąże się z zaburzeniami jąder szwu rdzenia przedłużonego. W badaniu pośmiertnym serii 41 niemowląt zmarłych z tej przyczyny stężenie serotoniny w jądrze ciemnym szwu było o 26% niższe niż w grupie kontrolnej (35 przypadków wobec 5 kontroli), przy granicznej istotności statystycznej (P = 0,05) [6]. Ilość hydroksylazy tryptofanu typu 2 była w tym jądrze o 22% mniejsza, a wiązanie receptora 5-HT1A w trzech jądrach otrzymujących projekcje serotoninowe mniejsze o 29–55% [6]. Cała grupa kontrolna liczyła jednak tylko 7 niemowląt zmarłych nagle z innych przyczyn [6]. W późniejszej pracy niskie wiązanie zdefiniowano jako wartości poniżej 95% przedziału ufności grupy kontrolnej. Częstość i odsetek jąder rdzenia przedłużonego z niskim wiązaniem receptorów 5-HT1A i 5-HT2A/C były wtedy u niemowląt zmarłych z powodu zespołu dwa razy większe niż w grupie kontrolnej [23].
W chorobie Alzheimera jądro grzbietowe szwu bywa zajęte bardzo wcześnie. W serii 118 mózgów zmiany neurofibrylarne, czyli złogi nieprawidłowo ufosforylowanego białka tau, występowały w jego podjądrze nadbloczkowym u wszystkich osób ze zmianami w korze [7]. Zmiany te stwierdzono też u ponad jednej piątej osób bez zmian w korze, co według autorów wskazuje, że jądro grzbietowe szwu zostaje zajęte przed korą przedśródwęchową [7].
W chorobie Parkinsona zmiany w jądrach szwu mogą wyprzedzać objawy ruchowe. U nosicieli mutacji A53T genu alfa-synukleiny, którzy nie mieli jeszcze objawów ruchowych ani ubytku transportera dopaminy w prążkowiu, wiązanie transportera serotoniny w brzusznych i grzbietowych jądrach szwu było mniejsze niż u osób zdrowych [24]. Grupa nosicieli liczyła jednak 14 osób, w tym 7 bez objawów ruchowych [24].
W migrenie udział jąder szwu jest hipotezą. W badaniu przepływu krwi metodą pozytonowej tomografii emisyjnej aktywacja pnia mózgu w czasie napadu utrzymywała się także po ustąpieniu bólu po podaniu sumatryptanu [25]. Autorzy powiązali migrenę z zaburzoną równowagą jąder pnia regulujących hamowanie bólu i kontrolę naczyń, ale w streszczeniu pracy aktywację przypisano pniu mózgu jako całości, a nie jądrom szwu [25].
Pięć chorób różni się rodzajem zmian w jądrach szwu i rodzajem danych, na których opiera się ich opis [5–7, 20, 24, 25].
| Choroba | Zmiana w jądrach szwu | |
| depresja | więcej receptorów 5-HT1A pośmiertnie, mniej w obrazowaniu | |
| zespół nagłej śmierci niemowląt | mniej serotoniny i TPH2 w jądrze ciemnym szwu | |
| choroba Alzheimera | zmiany neurofibrylarne w jądrze grzbietowym przed korą | |
| choroba Parkinsona | mniej transportera serotoniny przed objawami ruchowymi | |
| migrena | aktywacja pnia mózgu w napadzie | badanie obrazowe przepływu krwi |
W chorobach zwyrodnieniowych i w zespole nagłej śmierci niemowląt zmiany opisano bezpośrednio w tkance lub w obrazie jąder szwu. W depresji i migrenie związek z jądrami szwu pozostaje przedmiotem sporu, bo wyniki różnych metod są ze sobą niezgodne.
3.3. Ocena i obrazowanie
Stan jąder szwu u żywego człowieka ocenia się metodami, które mierzą wybrane cechy neuronów serotoninowych albo pośrednie zmiany tkanki pnia mózgu. Metody te są dotąd narzędziami badawczymi, choć autorzy części prac proponują ich wykorzystanie kliniczne [24, 26].
Pozytonowa tomografia emisyjna mierzy wiązanie znakowanych promieniotwórczo ligandów z białkami neuronów serotoninowych. Ligand [¹¹C]DASB wiąże się z transporterem serotoniny i pozwala ocenić jego gęstość w jądrach szwu [24]. Inne ligandy wiążą się z receptorem 5-HT1A [20]. Wynik zależy jednak od wyboru obszaru odniesienia i od dokładności pomiaru ligandu we krwi tętniczej, co utrudnia porównywanie ośrodków [21].
Przezczaszkowa ultrasonografia, czyli badanie ultradźwiękami przez łuskę kości skroniowej, ocenia echogeniczność pnia mózgu w linii pośrodkowej. Obniżona echogeniczność, czyli słabsze odbicie fal w okolicy jąder szwu, wiązała się w badaniach z objawami depresyjnymi [26]. W prospektywnym badaniu 99 chorych po udarze niedokrwiennym depresja po trzech miesiącach wystąpiła u 48,0% osób z obniżoną echogenicznością i u 4,1% osób z prawidłowym obrazem [26]. Iloraz szans po uwzględnieniu czynników zakłócających wyniósł 6,4, przy szerokim przedziale ufności od 1,2 do 34,4 [26].
Ten sam objaw ultrasonograficzny występuje także w migrenie. W badaniu 57 chorych na migrenę i 50 osób zdrowych obniżoną echogeniczność jąder szwu stwierdzono u 42,9% chorych i u 22,2% osób z grupy kontrolnej [27]. W tej grupie objaw nie wiązał się z objawami depresji, a metaanaliza dołączona do badania wykazała iloraz szans 2,16 dla związku z migreną [27]. Czynnościowy rezonans magnetyczny w stanie spoczynku pozwala ocenić łączność czynnościową jąder szwu z innymi obszarami mózgu [28].
Trzy metody badania jąder szwu różnią się przedmiotem pomiaru i stanem dowodów [24, 26, 28].
| Metoda | Co mierzy |
| pozytonowa tomografia emisyjna | gęstość transportera serotoniny lub receptora 5-HT1A |
| przezczaszkowa ultrasonografia | echogeniczność pnia mózgu w linii pośrodkowej |
| czynnościowy rezonans magnetyczny | łączność czynnościową jąder szwu |
Metody te opisują różnice między grupami badanych, a ich wynik u pojedynczej osoby nie jest rozpoznaniem żadnej z chorób.
3.4. Czynniki wpływające na stan struktury
Stan jąder szwu zależy od czynników działających w różnych okresach życia: od ekspozycji płodu, przez cechy wrodzone, po bieżącą dostępność substratu do syntezy serotoniny. Dane o każdym z nich pochodzą z badań innego typu.
Dostępność tryptofanu, czyli aminokwasu, z którego neurony jąder szwu wytwarzają serotoninę, zmienia ich łączność czynnościową z innymi obszarami mózgu. W badaniu z randomizacją w układzie naprzemiennym z udziałem 30 zdrowych kobiet porównano ostre obniżenie stężenia tryptofanu z jego podażą jako warunkiem kontrolnym [28]. Procedura obniżenia tryptofanu zmniejszała jego stężenie w surowicy o 90% w stosunku do wartości wyjściowej [28]. W tym stanie łączność czynnościowa jądra szwu z korą okolicy czołowo-biegunowej była mniejsza niż w warunku kontrolnym [28]. Siła tej łączności korelowała istotnie z wielkością zmian stężenia tryptofanu w obu warunkach doświadczenia [28]. Wynik dotyczy krótkotrwałej zmiany czynności, a nie budowy jąder, i uzyskano go w małej grupie zdrowych ochotniczek.
Ekspozycja płodu na składniki dymu tytoniowego jest czynnikiem, który łączy się z rozwojem jąder szwu rdzenia przedłużonego. Według przeglądu narracyjnego palenie tytoniu w ciąży zwiększa ryzyko zespołu nagłej śmierci niemowląt od dwóch do pięciu razy, a u niemowląt zmarłych z tej przyczyny opisano nieprawidłowości układu serotoninowego w rdzeniu przedłużonym [29]. W badaniu pośmiertnym prowadzonym w ramach prospektywnego programu obserwacji ciąż palenie tytoniu przez matkę wiązało się ze zmianą wiązania ligandu receptorów nikotynowych w jądrze ciemnym szwu i w dwóch sąsiednich jądrach rdzenia przedłużonego [30]. Wiązanie rosło wraz z liczbą wypalanych papierosów, a wpływu picia alkoholu przez matkę nie stwierdzono w żadnej z badanych okolic [30]. Analiza obejmowała 11 niemowląt zmarłych z powodu zespołu i 8 z grupy kontrolnej, więc jej moc była ograniczona [30]. Wyniki te wskazują na związek, ale nie dowodzą, że nikotyna bezpośrednio wywołuje zaburzenia serotoninowe w jądrach szwu.
Cechą indywidualną, która zmienia czynność jąder szwu, jest gęstość autoreceptorów 5-HT1A. Osoby z dużą gęstością lub wysoką aktywnością tych receptorów są bardziej podatne na zaburzenia nastroju i słabiej odpowiadają na leki przeciwdepresyjne [15]. Ten sam receptor, który ogranicza aktywność neuronów serotoninowych, wyznacza więc także indywidualną różnicę w reakcji jąder szwu na leczenie.