1. Charakterystyka procesu
1.1. Definicja i zakres procesu
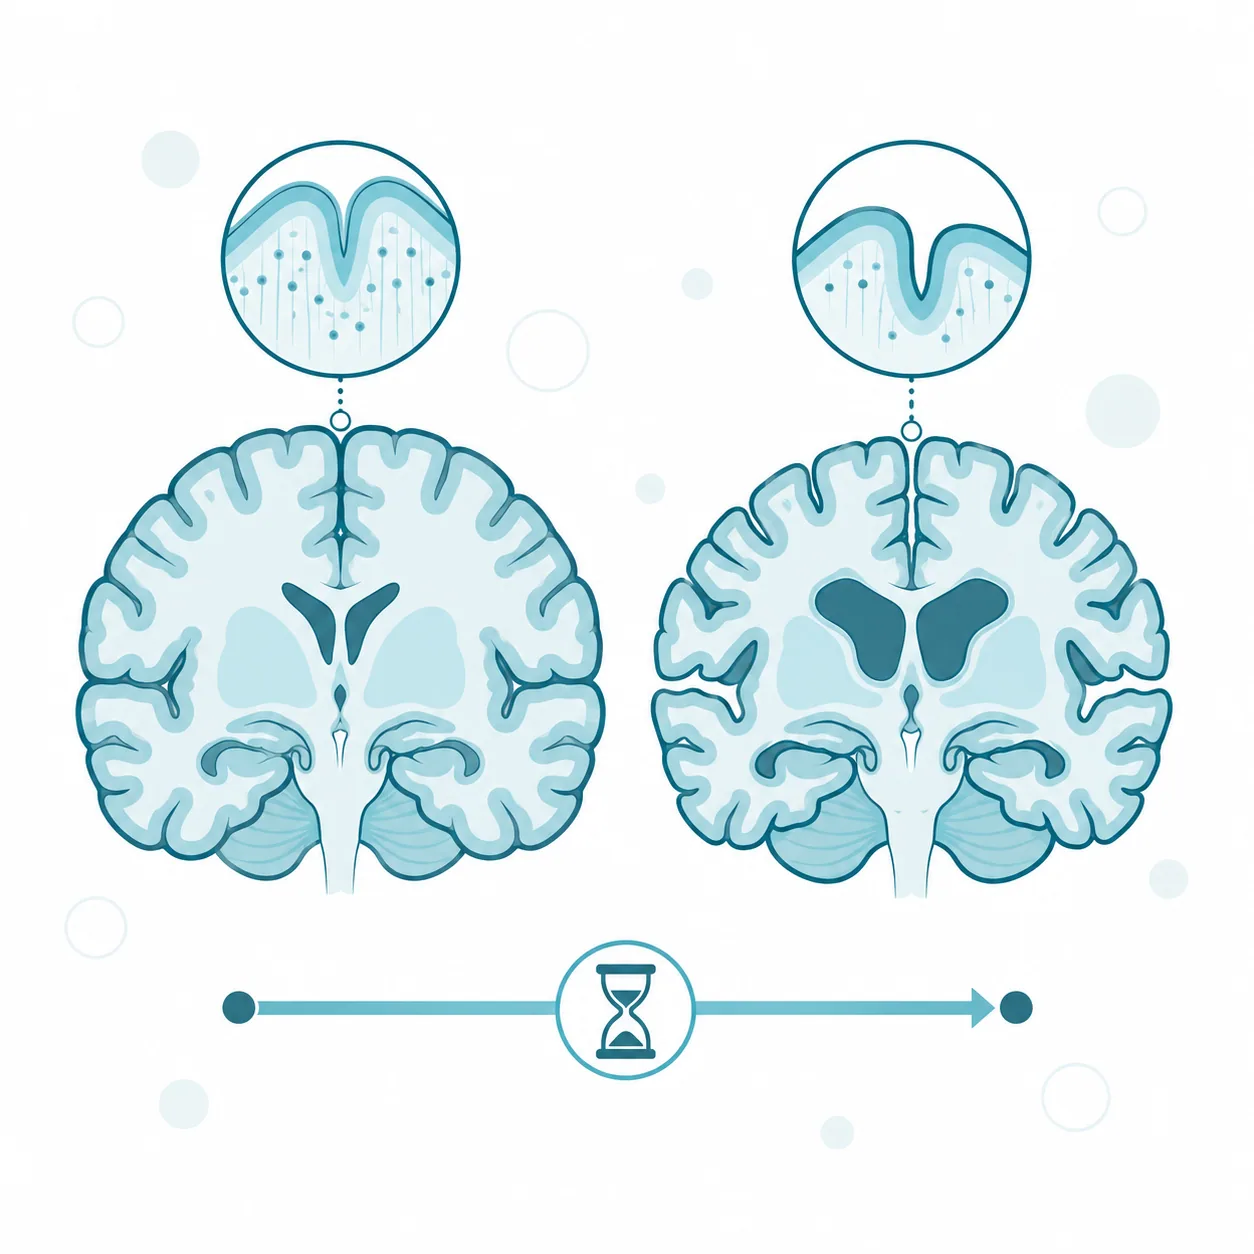
Starzenie mózgu to ciąg zmian strukturalnych i czynnościowych, które zachodzą w układzie nerwowym zdrowego człowieka wraz z upływem lat, należący do procesów starzenia całego organizmu. W badaniach rezonansu magnetycznego przejawia się ono zmniejszaniem się objętości mózgowia i poszerzaniem układu komorowego, a zmiany te występują także u osób bez otępienia [1]. Atrofia korowa oznacza ubytek objętości albo grubości kory mózgu, czyli zewnętrznej warstwy istoty szarej półkul. W prawidłowym starzeniu ubytek ten jest powolny i nierównomierny, bo obejmuje jedne obszary wyraźniej niż inne [1, 2].
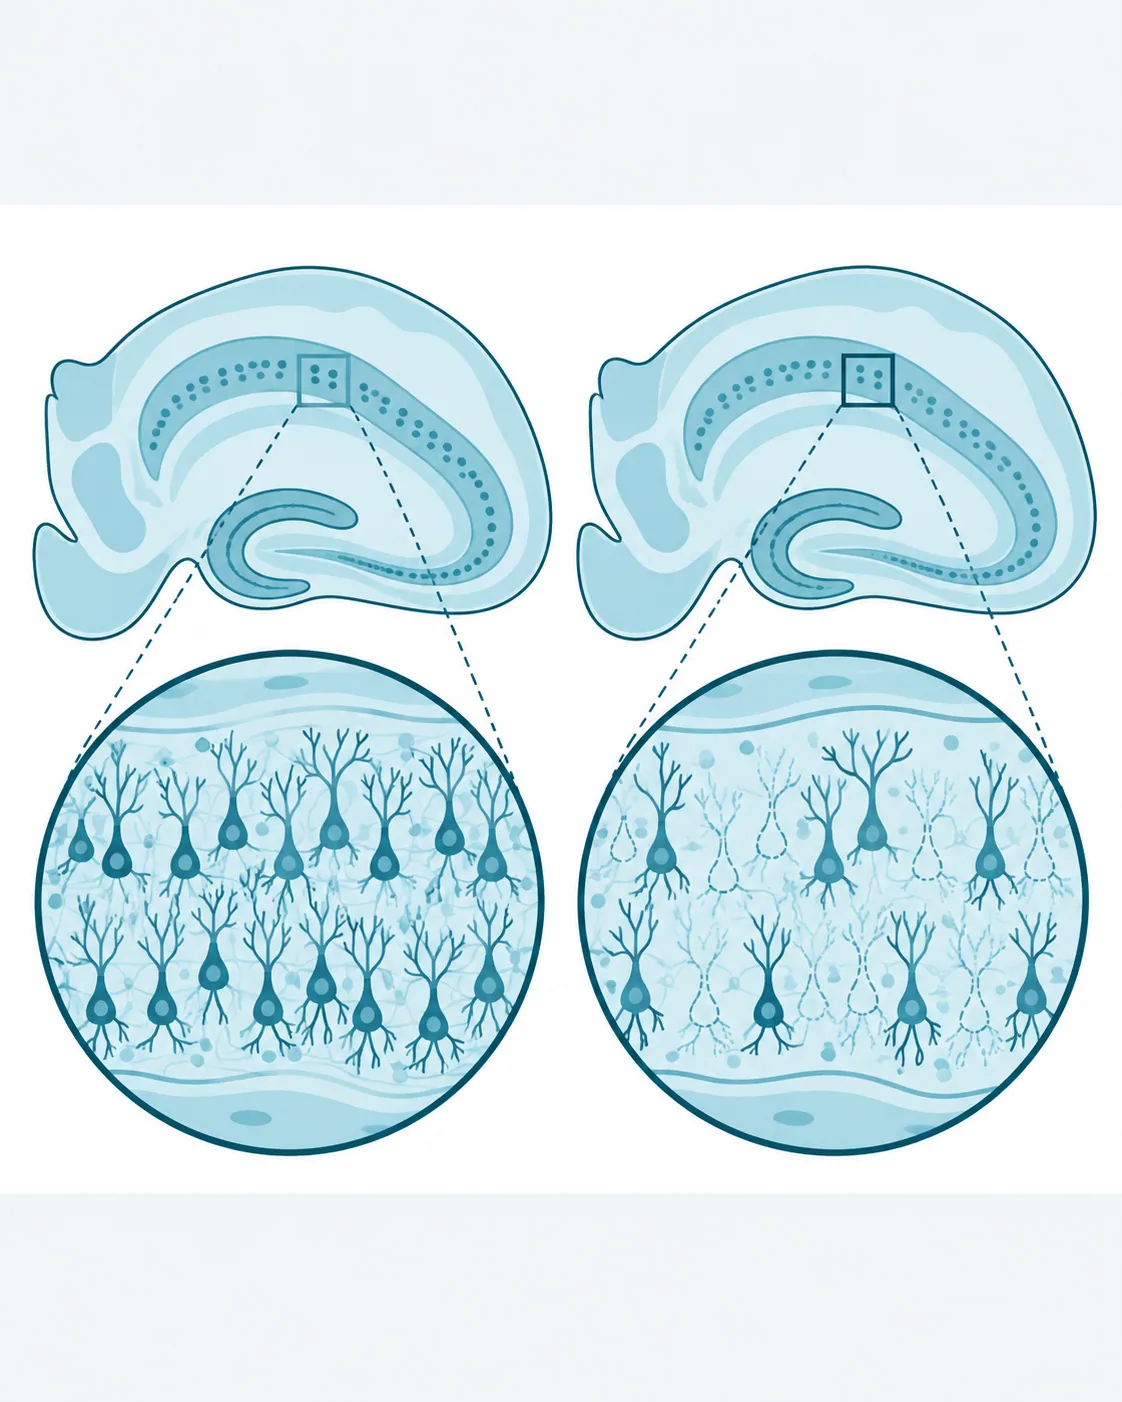
Starzenie mózgu bywa utożsamiane z otępieniem, ale oba pojęcia opisują zjawiska różne co do istoty. Kryterium różnicującym jest utrata samodzielności w codziennym funkcjonowaniu: towarzyszy ona otępieniu, a w prawidłowym starzeniu nie występuje. Od łagodnych zaburzeń poznawczych prawidłowe starzenie odróżnia wynik badań neuropsychologicznych, który pozostaje w granicach norm dla wieku. Granica nie zawsze jest jednak ostra. W pośmiertnym badaniu hipokampa ubytek neuronów w prawidłowym starzeniu różnił się od ubytku w chorobie Alzheimera jakościowo, a nie tylko nasileniem [3].
Zakres pojęcia obejmuje zmiany istoty szarej kory i jąder podkorowych, zmiany istoty białej oraz poszerzenie komór i przestrzeni płynowych. Obejmuje też zmiany czynności, takie jak spowolnienie przetwarzania informacji i słabsza pamięć epizodyczna [1]. Atrofię korową dzieli się na fizjologiczną, odpowiadającą tempu typowemu dla wieku, i patologiczną, szybszą albo umiejscowioną inaczej niż w prawidłowym starzeniu. Rozróżnienie to ma znaczenie przy ocenie badań obrazowych, bo granice prawidłowego zaniku wyznacza się osobno dla określonego wieku, a nawet płci i wykształcenia [4]. Znaczenie starzenia mózgu wynika z tego, że stanowi ono tło, na którym ocenia się każdy wynik badania obrazowego i każdy spadek sprawności poznawczej u osoby starszej.
1.2. Umiejscowienie
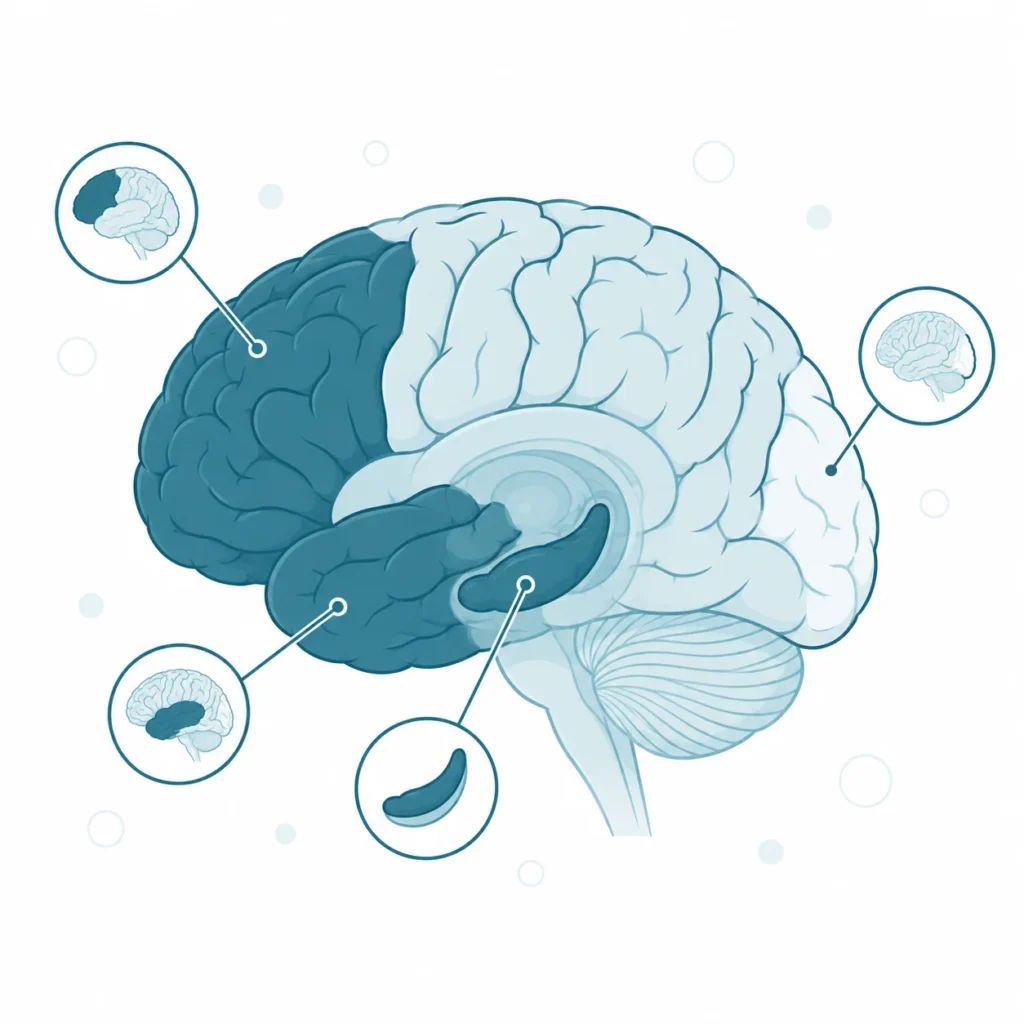
Starzenie mózgu zachodzi w całym mózgowiu, ale jego tempo zależy od obszaru. W przeglądzie badań rezonansu magnetycznego największe zmiany opisano w korze płatów czołowych i skroniowych oraz w skorupie, wzgórzu i jądrze półleżącym [1]. W pięcioletnim badaniu podłużnym zdrowych dorosłych wyraźnie zmniejszały się jądro ogoniaste, móżdżek, hipokamp i kora kojarzeniowa. Kora śródwęchowa zmieniała się w tym czasie nieznacznie, a pierwszorzędowa kora wzrokowa wcale [2].
Taki rozkład opisuje model nazywany „ostatni do rozwoju, pierwszy do zaniku”. Zakłada on, że obszary dojrzewające najpóźniej, przede wszystkim kora przedczołowa i inne obszary kojarzeniowe, z wiekiem zanikają najwcześniej [5]. Douaud i współpracownicy w analizie budowy mózgu 484 zdrowych osób w wieku 8–85 lat wyodrębnili sieć obszarów, która dojrzewa późno w okresie dorastania i szybciej od reszty mózgu zanika w starości [5]. Ta sama sieć pokrywała się z rozkładem zmian w schizofrenii i w chorobie Alzheimera [5]. Autorzy zaznaczyli jednak, że sieć ta jest w przeważającej mierze, lecz nie wyłącznie, siecią obszarów kojarzeniowych [5].
Model nie tłumaczy wszystkich obserwacji. Hipokamp należy do kory filogenetycznie starszej niż kora nowa, a mimo to jest jedną ze struktur kurczących się z wiekiem najwyraźniej [2]. Kora śródwęchowa, sąsiadująca z nim i również stara, zmieniała się natomiast w tym samym badaniu nieznacznie [2]. Kolejność dojrzewania nie wystarcza więc do przewidzenia, który obszar zaniknie pierwszy.
Starzenie dotyczy także istoty białej, czyli pęczków włókien nerwowych otoczonych otoczką mielinową. Według przeglądu Fjella i Walhovd łączna długość włókien zmielinizowanych zmniejsza się z wiekiem nawet o prawie połowę [1]. W badaniu podłużnym ubytek istoty białej płatów czołowych był tym większy, im starsi byli uczestnicy [2]. Starzenie obejmuje zatem zarówno korę z jej połączeniami lokalnymi, jak i drogi, którymi odległe obszary kory wymieniają informacje.
1.3. Rys historyczny
Pogląd na przyczynę starzenia mózgu zmienił się wraz z metodą liczenia neuronów. Przez dziesięciolecia uważano, że rozległe obumieranie neuronów kory nowej i hipokampa jest nieuniknionym składnikiem starzenia [6]. Zmianę przyniosły nowoczesne metody stereologiczne, które pozwalają dokładnie oszacować całkowitą liczbę neuronów w całej strukturze mózgu [7].
W 1994 roku West i współpracownicy, licząc tą metodą neurony hipokampa u 45 osób w wieku 13–101 lat, nie stwierdzili w prawidłowym starzeniu niemal żadnego ubytku w polu CA1, które w chorobie Alzheimera traci najwięcej komórek [3]. W 1997 roku Pakkenberg i Gundersen oszacowali w 94 mózgach z populacji duńskiej, że między 20. a 90. rokiem życia kora nowa traci około 10% neuronów [7]. Średnia liczba neuronów kory nowej wynosiła w tym badaniu 19 miliardów u kobiet i 23 miliardy u mężczyzn, a więc różnica między płciami, około 16%, przewyższała ubytek związany z wiekiem [7]. W tym samym roku Morrison i Hof podsumowali, że śmierć neuronów w prawidłowym starzeniu jest ograniczona i mało prawdopodobne, by tłumaczyła pogorszenie czynności kory i hipokampa [6]. Uwaga badaczy przesunęła się przez to na zmiany czynności i budowy obwodów neuronalnych, które mogą upośledzać ich pracę bez obumierania komórek [6].
1.4. Warunki i bodźce uruchamiające
Starzenie mózgu nie ma jednego bodźca, który by je uruchamiał w określonym momencie. Budowa mózgu zmienia się nieprzerwanie od urodzenia do końca życia, a starzenie jest dalszym odcinkiem tej samej krzywej, a nie odrębnym zdarzeniem [1]. Bethlehem i współpracownicy zebrali 123 984 badania rezonansu magnetycznego 101 457 osób w wieku od życia płodowego do 100 lat. Na tej podstawie wykreślili siatki centylowe objętości mózgu, podobne do siatek wzrostu i masy ciała u dzieci [8]. Krzywe te są nieliniowe, a położenie danej osoby na siatce okazało się w badaniach podłużnych stabilne [8].
Starzenie nie zaczyna się więc po przekroczeniu określonego wieku, lecz narasta stopniowo. Na poziomie czynności pierwsze zmiany pojawiają się wcześnie. W przekrojowym badaniu 345 dorosłych wyniki zadań wymagających szybkiego przetwarzania, pamięci roboczej i pamięci długotrwałej były niższe w kolejnych grupach wieku już od trzeciej dekady życia [9].
Na poziomie komórkowym procesowi towarzyszy narastanie kilku zmian jednocześnie. Przegląd Mattsona i Arumugama wymienia wśród nich osłabienie przemian energetycznych, zaburzenia gospodarki wapniowej neuronów, gromadzenie się cząsteczek i organelli uszkodzonych przez utlenianie oraz zapalenie [10]. Według tych autorów zmiany te czynią starzejący się mózg podatnym na chorobę Alzheimera, chorobę Parkinsona i udar [10]. Starzenie mózgu nie jest zatem chorobą, ale zwiększa prawdopodobieństwo, że tkanka nerwowa zachoruje.
2. Przebieg i regulacja
2.1. Etapy procesu
Starzenie mózgu przebiega jako ciąg zmian, które zaczynają się w pojedynczych neuronach, a kończą na objętości całych struktur widocznej w badaniu obrazowym. Stanem wyjściowym jest mózg dojrzały, w którym rozwój istoty szarej i białej się zakończył, a objętości struktur leżą na indywidualnym, względnie stałym centylu siatki [8]. Bodźcem jest narastanie zmian komórkowych, przede wszystkim osłabienie przemian energetycznych i plastyczności neuronów [10].
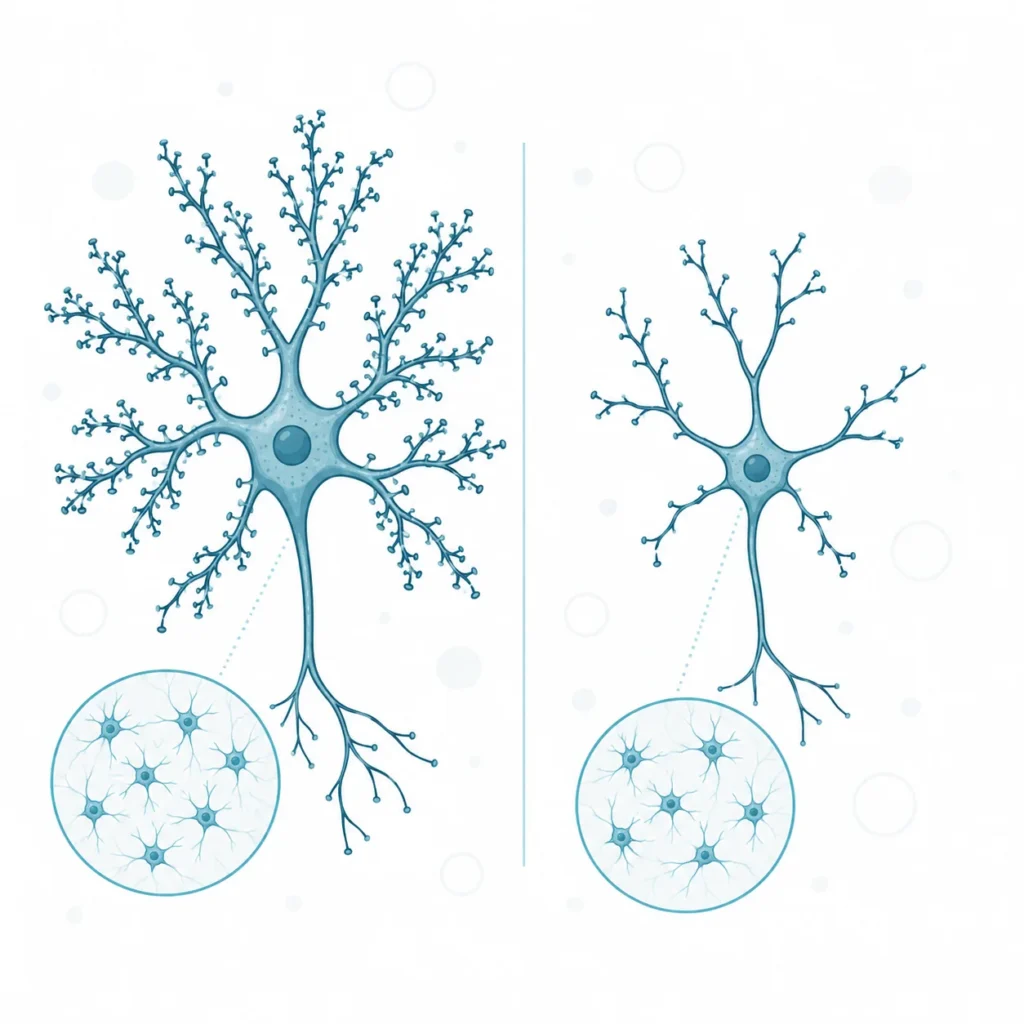
Pierwszy etap zachodzi w samych neuronach kory i hipokampa. Według przeglądu Fjella i Walhovd ubytek istoty szarej wynika prawdopodobnie głównie z kurczenia się ciał neuronów, z mniejszej liczby synaps i z utraty kolców dendrytów, czyli drobnych wypustek, na których powstają synapsy pobudzające [1]. Liczba samych neuronów spada przy tym niewiele, w korze nowej o około 10% w ciągu siedmiu dekad dorosłego życia [7]. Ubytek dotyczy więc głównie połączeń, a nie komórek.
Drugi etap to zmniejszenie objętości istoty szarej, które sumuje skutki zmian w pojedynczych neuronach. W rezonansie magnetycznym widać je jako ścieńczenie kory i zmniejszenie objętości jąder podkorowych. Według przeglądu badań podłużnych w większości obszarów mózgu wynosi ono od 0,5% do 1,0% rocznie [1]. Tempo różni się między obszarami i między osobami. W badaniu Raza i współpracowników różnice indywidualne w tempie zaniku wystąpiły we wszystkich badanych obszarach z wyjątkiem płacika ciemieniowego dolnego, a zanik jednych obszarów korelował z zanikiem innych [2]. Autorzy uznali to za wskazówkę, że część przyczyn jest wspólna dla całego mózgu.
Trzeci etap obejmuje istotę białą. Zmniejsza się łączna długość włókien zmielinizowanych [1], a ubytek istoty białej płatów czołowych narasta z wiekiem [2]. Czwarty etap jest następstwem trzech poprzednich. Miejsce zajmowane przez tkankę wypełnia płyn mózgowo-rdzeniowy, więc poszerzają się komory i bruzdy kory [1].
Stanem końcowym jest mózg o mniejszej objętości i szerszych przestrzeniach płynowych, który u osoby zdrowej nadal zapewnia samodzielne funkcjonowanie.
Zestawienie czterech elementów zmieniających się z wiekiem pokazuje, że za tym samym obrazem w rezonansie stoją różne zjawiska tkankowe.
| Element | Zmiana widoczna w badaniu | Podłoże tkankowe |
| Kora nowa | ścieńczenie, mniejsza objętość, najsilniej w płatach czołowych i skroniowych | mniejsze ciała neuronów, mniej kolców i synaps, niewielki ubytek neuronów |
| Hipokamp | zmniejszenie objętości | zmiany obwodów bez wyraźnego ubytku neuronów w polu CA1 |
| Istota biała | mniejsza objętość płatów czołowych | krótsze łącznie włókna zmielinizowane |
| Komory i bruzdy | poszerzenie | wypełnienie płynem miejsca po tkance |
Z zestawienia wynika, że objętość mierzona w rezonansie jest wskaźnikiem sumarycznym. Ten sam ubytek objętości może wynikać z mniejszej liczby synaps, krótszych włókien albo, w chorobie, z obumierania neuronów, a rozstrzyga o tym dopiero badanie tkanki albo obraz kliniczny.
2.2. Mechanizmy komórkowe
Starzenie mózgu nie ma jednego enzymu ani białka, które by je prowadziło. Zależy od kilku mechanizmów komórkowych działających równolegle w neuronach, w komórkach glejowych i w naczyniach. Każdy z nich odpowiada za inną część zmian tkankowych.
Najbliżej utraty objętości leży przebudowa synaps. Morrison i Hof wskazali, że za pogorszenie czynności hipokampa w starzeniu mogą odpowiadać zmiany czynnościowe i biochemiczne jego obwodów, a nie obumieranie neuronów [6]. Neuron, który traci część synaps pobudzających, nadal żyje i przewodzi impulsy. Odbiera jednak mniej sygnałów od sąsiadów, przez co obwód słabiej przenosi pobudzenie.
Drugim mechanizmem jest zmiana czynności mikrogleju, czyli osiadłych w mózgu komórek odpornościowych podobnych do makrofagów. W warunkach prawidłowych mikroglej podtrzymuje środowisko tkanki nerwowej i chroni ją przed uszkodzeniami. Z wiekiem jego sprawność słabnie w sposób wciąż niepełnie poznany. Przegląd Antignano i współpracowników zestawia w tej sprawie dane z modeli gryzoni z danymi u człowieka [11]. Zapalenie w tkance nerwowej przegląd Mattsona i Arumugama zalicza do cech starzejącego się mózgu [10].
Trzeci mechanizm dotyczy naczyń. Bariera krew-mózg ogranicza przenikanie do mózgu składników krwi, drobnoustrojów i komórek. Montagne i współpracownicy zmierzyli jej przepuszczalność u żywych ludzi w rezonansie magnetycznym z dynamicznym podaniem kontrastu [12]. Przepuszczalność bariery w hipokampie rosła z wiekiem [12]. U osób z łagodnymi zaburzeniami poznawczymi była większa w hipokampie, w tym w polu CA1 i w zakręcie zębatym, i wiązała się z uszkodzeniem perycytów, czyli komórek obejmujących naczynia włosowate [12]. Autorzy uznali rozszczelnienie bariery za wczesne zdarzenie w starzejącym się mózgu.
Czwarty mechanizm to osłabienie przemian energetycznych. Neurony zużywają dużo energii na utrzymanie potencjału błonowego i przekaźnictwa, a jej głównym źródłem są mitochondria. Przegląd Mattsona i Arumugama opisuje w starzejącym się mózgu osłabienie bioenergetyki, gromadzenie się uszkodzonych przez utlenianie cząsteczek i organelli oraz zaburzenia gospodarki wapniowej [10]. Według tego przeglądu towarzyszy temu osłabienie plastyczności neuronów i ich odporności na obciążenie [10].
Piątym zjawiskiem jest odkładanie się białek charakterystycznych dla chorób zwyrodnieniowych u osób bez objawów. W zbiorczej analizie danych 19 097 uczestników z 85 kohort nieprawidłowe nagromadzenie β-amyloidu stwierdzono u 24% osób z prawidłowymi wynikami testów poznawczych [13]. U osób z łagodnymi zaburzeniami poznawczymi odsetek ten wynosił 51% [13]. Granica między starzeniem prawidłowym a wczesną fazą choroby jest więc na poziomie tkanki płynna, a część zmian przypisywanych wiekowi może odzwierciedlać chorobę bez objawów.
2.3. Czynniki nasilające starzenie mózgu
Tempo starzenia mózgu nie jest stałe i zależy od stanu całego organizmu, zwłaszcza od stanu naczyń. Czynnikiem przyspieszającym zanik hipokampa okazało się w badaniu Raza i współpracowników nadciśnienie tętnicze. Zanik hipokampa narastał tam z wiekiem i przyspieszał, ale obie te zależności ograniczały się do uczestników z nadciśnieniem [2]. Wynik ten przemawia za tym, że część zaniku przypisywanego wiekowi jest w istocie skutkiem choroby naczyń.
Szerszy obraz daje raport Komisji czasopisma „The Lancet” z 2024 roku. Wymienia on 14 modyfikowalnych czynników ryzyka otępienia, których uwzględnienie mogłoby zapobiec nawet 45% przypadków [14, 31]. Wśród czynników medycznych są nadciśnienie, cukrzyca, depresja, niedosłuch, osłabienie wzroku, wysokie stężenie cholesterolu frakcji LDL, czyli lipoprotein o małej gęstości, otyłość i urazy głowy [14, 32]. Raport dotyczy jednak ryzyka otępienia, a nie tempa zaniku mózgu u osób zdrowych. Z obecności czynnika na tej liście nie wynika więc, że przyspiesza on zanik kory u osoby bez otępienia.
Trzecią grupę tworzą zmiany współistniejące wewnątrz samej tkanki. Nagromadzenie β-amyloidu u osób bez objawów [13] oraz rozszczelnienie bariery krew-mózg w hipokampie [12] występują u części starszych osób i nasilają się w łagodnych zaburzeniach poznawczych. W mózgu osoby starszej zmiany związane z wiekiem i zmiany chorobowe mogą więc przebiegać równolegle, a tempo zaniku u konkretnej osoby odzwierciedla oba procesy naraz.
2.4. Czynniki hamujące starzenie mózgu
Czynniki hamujące starzenie mózgu są poznane niepełnie, a część przypuszczalnie ochronnych cech nie potwierdziła się w pomiarach tempa zaniku. W badaniu Raza i współpracowników ani większa objętość mózgu, ani wyższe wykształcenie nie spowalniały zmniejszania się badanych struktur [2]. Cechy te mogą zmieniać punkt wyjścia, ale w tym badaniu nie zmieniały tempa zaniku.
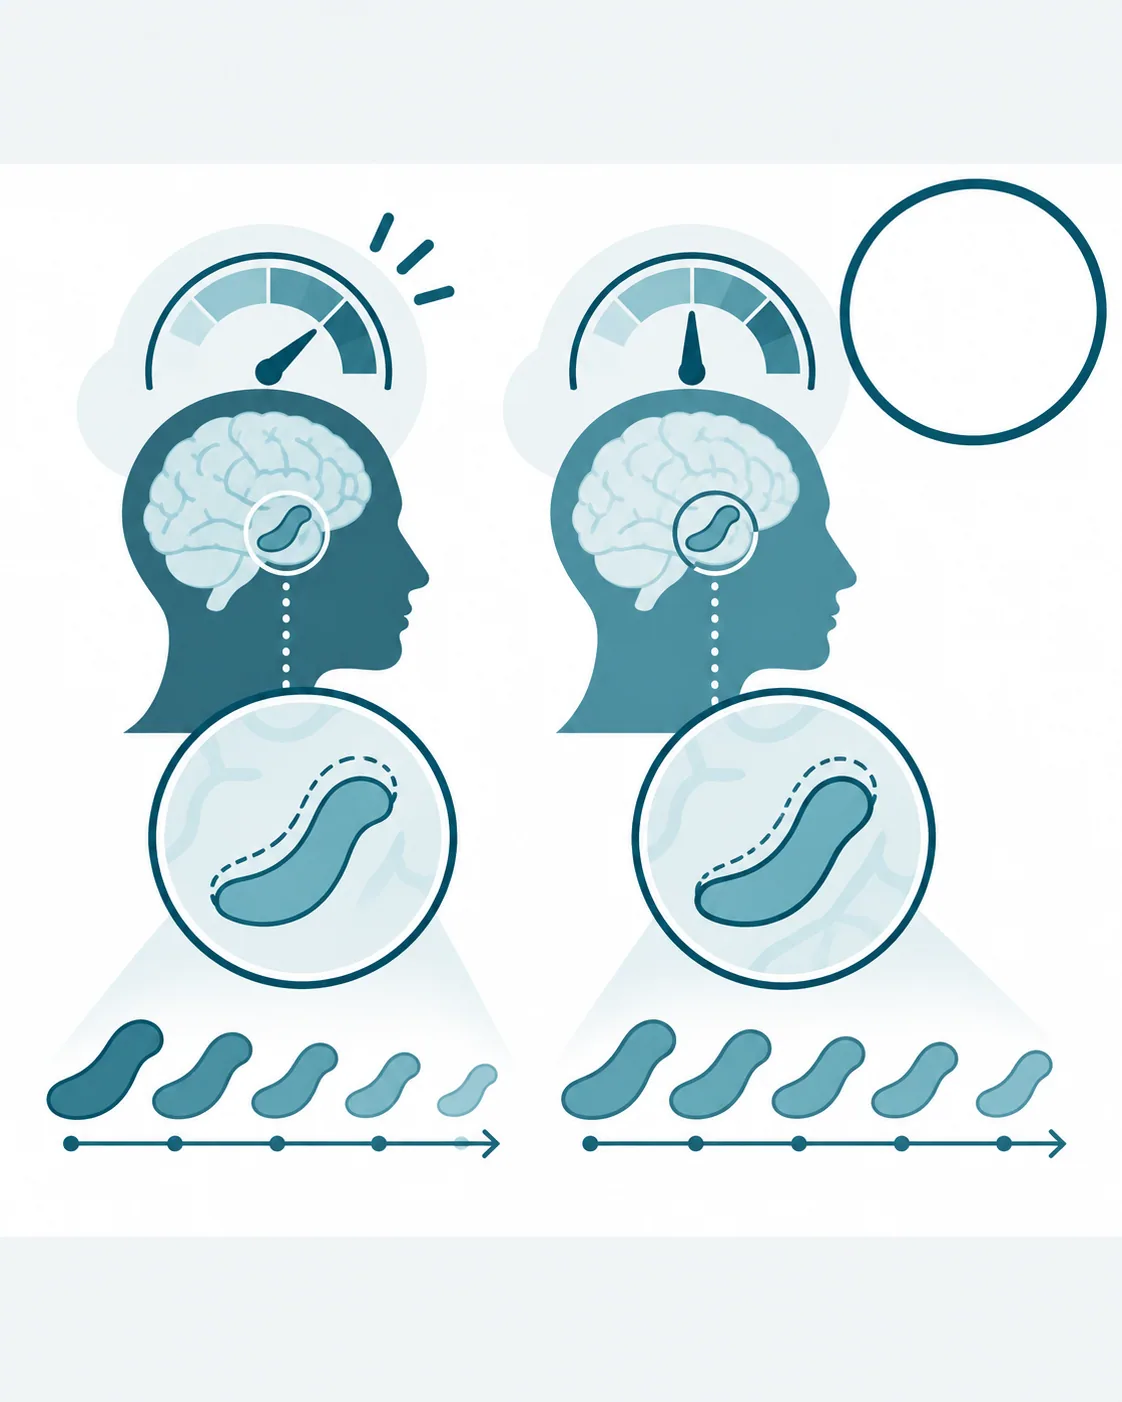
Czynnikiem fizjologicznym o udokumentowanym związku z tempem zaniku hipokampa jest wydolność krążeniowo-oddechowa. W badaniu Ericksona i współpracowników objętość hipokampa w grupie kontrolnej malała, ale u osób z wyższą wydolnością na początku badania spadek był częściowo mniejszy [15]. Przyrost objętości hipokampa w grupie ćwiczącej wiązał się z wyższym stężeniem w surowicy czynnika neurotroficznego pochodzenia mózgowego, białka podtrzymującego przeżycie neuronów i plastyczność synaps [15]. Związek ten jest korelacją i nie rozstrzyga, czy białko to pośredniczy w ochronie hipokampa u człowieka.
Na pojęciowym poziomie zjawiska ochronne porządkuje stanowisko grupy roboczej Alzheimer’s Association. Odróżnia ono rezerwę mózgową, czyli zasób strukturalny, rezerwę poznawczą, czyli sprawność wykorzystania tego zasobu, oraz utrzymanie mózgu, czyli mniejsze tempo zmian z wiekiem [16]. Rozróżnienie to wyjaśnia, dlaczego czynnik zwiększający rezerwę, na przykład wykształcenie, może wiązać się z mniejszym ryzykiem otępienia, nie spowalniając zaniku [2, 14]. Tylko utrzymanie mózgu oznacza w tym ujęciu rzeczywiste zahamowanie procesu starzenia.
2.5. Powiązania z innymi procesami
Starzenie mózgu splata się z procesami, które przebudowują tkankę nerwową przez całe życie. Ściśle łączy się z neuroplastycznością, czyli zdolnością neuronów do tworzenia, wzmacniania i usuwania połączeń. Osłabienie plastyczności jest jedną z cech starzejącego się mózgu [10], a utrata kolców dendrytycznych i synaps jest jej strukturalnym odpowiednikiem [1]. Plastyczność nie zanika jednak całkowicie, co pokazuje przyrost objętości hipokampa u osób starszych po treningu aerobowym w badaniu z randomizacją [15].
Drugim powiązanym procesem jest neurogeneza, czyli powstawanie nowych neuronów w zakręcie zębatym hipokampa. Erickson i współpracownicy opisali czynnik neurotroficzny pochodzenia mózgowego jako pośrednika neurogenezy w tym miejscu i powiązali jego stężenie we krwi z przyrostem objętości hipokampa [15]. Udziału nowych neuronów w przyroście objętości w tym badaniu nie mierzono [15].
Trzecie powiązanie dotyczy rozwoju. Sieć obszarów kory, która dojrzewa najpóźniej, zanika w starości szybciej od reszty mózgu, a ta sama sieć wiązała się w dużej populacji zdrowych osób ze sprawnością intelektualną i pamięcią epizodyczną [5]. Rozwój i starzenie są w tym ujęciu dwoma odcinkami jednej trajektorii życiowej, a nie procesami niezależnymi [5, 8].
Czwarte powiązanie łączy mózg z resztą organizmu. Nadciśnienie i cukrzyca są chorobami całego organizmu, a zapalenie i zaburzenia przemian energetycznych należą do cech starzejącego się mózgu [10, 14]. Stan naczyń i przemian metabolicznych organizmu wpływa więc na tempo starzenia mózgu, co udokumentowano między innymi dla nadciśnienia i zaniku hipokampa [2].
3. Fizjologia a patologia
3.1. Rola starzenia mózgu w warunkach prawidłowych
Starzenie mózgu nie jest w prawidłowych warunkach procesem jednokierunkowej utraty, bo obok spadku części zdolności poznawczych obserwuje się wzrost innych. Zmiany poznawcze z wiekiem są przez to nierównomierne. W przekrojowym badaniu 345 dorosłych wyniki zadań wymagających szybkiego przetwarzania, pamięci roboczej i pamięci długotrwałej były niższe w kolejnych grupach wieku od trzeciej dekady życia, a wiedza słowna rosła przez całe dorosłe życie [9]. W metaanalizie słownych zadań zakresu pamięci różnice między młodszymi a starszymi dorosłymi występowały we wszystkich zadaniach, lecz były najmniejsze dla prostego zakresu przechowywania, a największe dla zadań pamięci roboczej [17].
Salthouse zaproponował, że wspólnym podłożem wielu z tych zmian jest spowolnienie przetwarzania informacji [18]. Według tej teorii wolniejsze operacje umysłowe pogarszają wynik na dwa sposoby. Część operacji nie zdąży się zakończyć w dostępnym czasie, a wyniki wcześniejszych etapów przestają być dostępne, zanim zakończą się etapy późniejsze. Za teorią przemawia to, że statystyczne uwzględnienie szybkości przetwarzania w dużej mierze znosiło związek wieku z wynikami innych zadań [18].
Zmiany te mają w znacznej części podłoże strukturalne. Według przeglądu Fjella i Walhovd różnice w budowie mózgu tłumaczą od 25% do 100% różnic między osobami młodszymi a starszymi w wybranych funkcjach poznawczych [1]. Równocześnie badania czynnościowe wykazały u osób starszych silniejszą aktywację kory przedczołowej podczas zadań poznawczych [19]. Park i Reuter-Lorenz wyjaśniają to w modelu rusztowania, nazywanym od angielskiej nazwy modelem STAC (ang. scaffolding theory of aging and cognition). Zakłada on, że mózg uruchamia dodatkowe, uzupełniające obwody, które kompensują osłabienie struktur podstawowych [19]. Model ten pozostaje hipotezą, która łączy dane o ubytku struktury z danymi o wzmożonej aktywacji, ale nie dowodzi, że każda dodatkowa aktywacja poprawia wynik zadania. Prawidłowe starzenie łączy więc ubytek struktury z przebudową sposobu, w jaki mózg wykonuje zadania.
3.2. Atrofia przyspieszona – następstwa
Atrofia przyspieszona to zanik mózgu szybszy niż typowy dla wieku albo umiejscowiony inaczej niż w prawidłowym starzeniu. Nie jest ona osobną chorobą, lecz stanem pośrednim, którego następstwa zależą od przyczyny. Jej znaczenie polega na tym, że może wyprzedzać pogorszenie sprawności poznawczej i pomagać je przewidywać.
Związek tempa zaniku ze sprawnością umysłową opisano w badaniu VITACOG u osób po 70. roku życia z łagodnymi zaburzeniami poznawczymi. Szybszy zanik całego mózgu wiązał się tam z gorszymi wynikami testów poznawczych na końcu badania [20]. Autorzy tej pracy zaznaczyli, że przyspieszony zanik cechuje osoby z łagodnymi zaburzeniami poznawczymi, u których rozwija się następnie choroba Alzheimera [20]. Podobną zależność opisano dla zaniku przyśrodkowej części płatów skroniowych. W populacyjnej kohorcie 75-latków osoby z nieprawidłowym zanikiem po stronie prawej i prawidłowym wynikiem krótkiego testu przesiewowego po pięciu latach wypadały w tym teście gorzej [4].
Osobnym przejawem przyspieszonego starzenia są hiperintensywności istoty białej, czyli obszary jasne w obrazach rezonansu magnetycznego zależnych od czasu relaksacji T2. W metaanalizie badań podłużnych ich obecność wiązała się z ponad trzykrotnie większym ryzykiem udaru, z prawie dwukrotnie większym ryzykiem otępienia i z dwukrotnie większym ryzykiem zgonu [21]. Autorzy wskazali też na możliwy związek tych zmian z szybszym spadkiem ogólnej sprawności poznawczej, funkcji wykonawczych i szybkości przetwarzania [21]. Hiperintensywności istoty białej są więc wskaźnikiem ryzyka naczyniowego, a nie tylko obrazem wieku mózgu.
3.3. Udział starzenia mózgu w chorobach
Starzenie mózgu jest tłem, na którym rozwijają się choroby zwyrodnieniowe i naczyniowe. Różnica między starzeniem a chorobą Alzheimera jest widoczna w rozkładzie zmian. W badaniu stereologicznym hipokampa największy ubytek neuronów w chorobie Alzheimera dotyczył pola CA1, w którym w prawidłowym starzeniu neuronów niemal nie ubywało [3]. Autorzy uznali, że choroba Alzheimera nie jest przyspieszonym starzeniem, lecz odrębnym procesem patologicznym [3]. Podobne stanowisko przedstawili Morrison i Hof [6].
W chorobie Alzheimera zanik przyśrodkowej części płatów skroniowych, obejmującej hipokamp, jest wyraźniejszy niż u osób w tym samym wieku bez choroby. W badaniu Scheltensa i współpracowników zanik ten oceniony wzrokowo w rezonansie magnetycznym odróżniał chorych od zdrowych w tym samym wieku i wiązał się z wynikami testów pamięci [22]. Według autorów pojawiał się też prawdopodobnie wcześniej niż uogólniony zanik mózgu [22]. Sieć obszarów kory, które w prawidłowym starzeniu zanikają najszybciej, pokrywa się z rozkładem zmian w tej chorobie [5]. Zmiany związane z wiekiem i z chorobą obejmują więc podobne obszary, choć różnią się mechanizmem i tempem.
W otępieniu czołowo-skroniowym zanik dotyczy płatów czołowych i skroniowych, a jego wzór różni się między podtypami klinicznymi choroby [33]. W otępieniu naczyniowym podłożem zmian są choroby naczyń mózgowych, a hiperintensywności istoty białej, wskaźnik ryzyka zdarzeń naczyniowych w mózgu, wiązały się w metaanalizie z większym ryzykiem otępienia [21]. W łagodnych zaburzeniach poznawczych tempo zaniku całego mózgu jest większe niż w prawidłowym starzeniu i wiąże się z gorszymi wynikami testów [20]. Wspólną cechą tych stanów jest to, że zanik przekracza tempo albo rozkład typowy dla wieku.
3.4. Modyfikacja behawioralna i dietetyczna
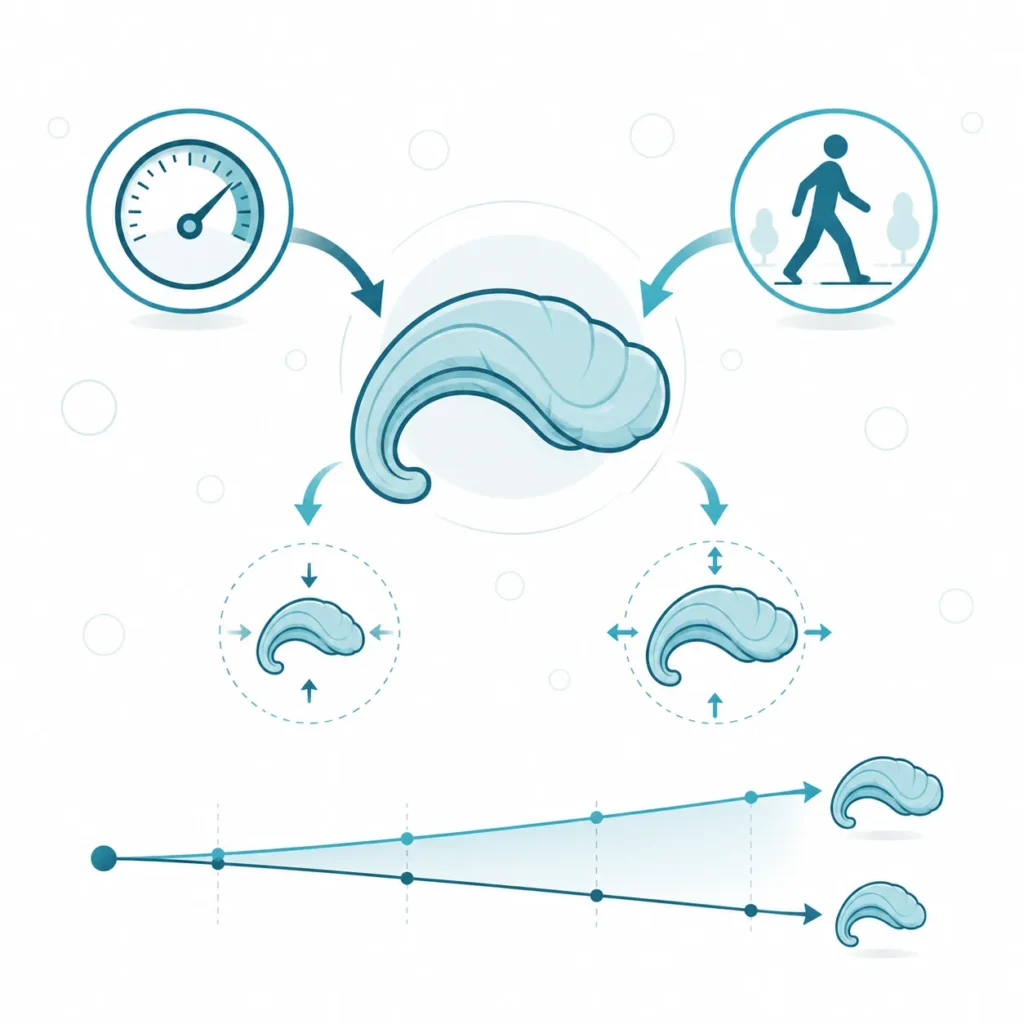
Z tempem starzenia mózgu wiążą się częściowo zachowania, wśród nich aktywność fizyczna i spożycie alkoholu [15, 23]. Wpływ aktywności fizycznej na objętość hipokampa oceniano w badaniach z randomizacją. W badaniu Ericksona i współpracowników u 120 osób starszych trening aerobowy zwiększył objętość przedniej części hipokampa o 2%, podczas gdy w grupie porównawczej objętość malała [15]. Autorzy ocenili, że odpowiada to cofnięciu ubytku związanego z wiekiem o rok do dwóch lat, a przyrostowi towarzyszyła poprawa pamięci przestrzennej [15]. Objętość jądra ogoniastego i wzgórza nie zmieniła się [15].
Wyniki późniejszych zestawień są ostrożniejsze. W metaanalizie 14 badań kontrolowanych z udziałem 737 osób trening aerobowy nie zmieniał istotnie objętości całego hipokampa [24]. Zwiększał natomiast objętość hipokampa lewego, a efekt wynikał głównie z zapobiegania ubytkowi, który w grupach kontrolnych postępował [24]. W metaanalizie dziewięciu badań z randomizacją u 581 osób starszych ćwiczenia poprawiały wskaźnik integralności istoty białej, czyli anizotropię frakcjonowaną, ale nie zmieniały objętości istoty białej ani hipokampa [25]. Według tych zestawień wpływ aktywności fizycznej na objętość hipokampa polega głównie na hamowaniu ubytku, a wyniki pojedynczych badań są niejednorodne [24, 25].
Po przeciwnej stronie leży alkohol. W kohorcie Whitehall II, obejmującej 550 osób obserwowanych przez 30 lat, większe spożycie alkoholu wiązało się w sposób zależny od ilości z większą szansą zaniku hipokampa [23]. Już spożycie umiarkowane wiązało się z ponad trzykrotnie większą szansą zaniku prawego hipokampa w porównaniu z abstynencją, a niewielkie spożycie nie dawało ochrony [23]. Jest to badanie obserwacyjne, więc nie dowodzi przyczynowości, a zależność od ilości była w nim stopniowa [23].
Raport Komisji czasopisma „The Lancet” z 2024 roku zalicza do modyfikowalnych czynników ryzyka otępienia także palenie tytoniu, brak aktywności fizycznej, niższe wykształcenie i izolację społeczną [14]. Czynniki te opisano jako czynniki ryzyka otępienia, a nie jako czynniki tempa zaniku kory u osób zdrowych.
3.5. Wsparcie suplementacyjne
Wpływ substancji odżywczych na starzenie mózgu oceniano w nielicznych badaniach z randomizacją, w których punktem końcowym była objętość mózgu albo tempo jej ubytku mierzone w rezonansie magnetycznym. Wyniki dotyczą różnych populacji: osób zdrowych, osób z łagodnymi zaburzeniami poznawczymi i chorych na chorobę Alzheimera. Kierunek wpływu zależy przez to od badanej populacji.
Kwasy omega-3 dały wyniki rozbieżne. U 65 zdrowych osób w wieku 50–75 lat ich podawanie wiązało się z korzystnymi zmianami objętości istoty szarej i mikrostruktury istoty białej w porównaniu z placebo [26]. U chorych na chorobę Alzheimera w stopniu łagodnym i umiarkowanym kwas dokozaheksaenowy nie zmienił w podgrupie z badaniem rezonansu tempa zaniku mózgu, wynoszącego w obu grupach około 1,3% rocznie [27]. W badaniu VITACOG podawanie kwasu foliowego razem z kobalaminą i pirydoksyną obniżało stężenie homocysteiny w osoczu, aminokwasu będącego czynnikiem ryzyka zaniku mózgu, zaburzeń poznawczych i otępienia [20]. U osób z łagodnymi zaburzeniami poznawczymi tempo zaniku wyniosło 0,76% rocznie wobec 1,08% w grupie placebo [20]. Największą różnicę obserwowano przy wyjściowym stężeniu homocysteiny powyżej 13 µmol/l [20]. Resweratrol w badaniu fazy 2 u chorych na chorobę Alzheimera zwiększał ubytek objętości mózgu w porównaniu z placebo [28]. Stężenie β-amyloidu 40 w płynie mózgowo-rdzeniowym i w osoczu zmniejszało się w jego grupie mniej niż w grupie placebo. Autorzy uznali, że interpretacja tych zmian biomarkerów wymaga dalszych badań [28]. Wyniki trzech substancji zestawiono według kierunku wpływu na objętość mózgu i siły dowodu.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Kwasy omega-3 | kwas dokozaheksaenowy jest najobficiej występującym w mózgu długołańcuchowym kwasem wielonienasyconym [27]; u zdrowych osób w wieku 50–75 lat korzystne zmiany objętości istoty szarej [26]; u chorych na chorobę Alzheimera brak wpływu na tempo zaniku [27] | ↑ objętość u zdrowych; ~ tempo zaniku w chorobie Alzheimera | B |
| Kwas foliowy | skojarzenie z kobalaminą i pirydoksyną obniża homocysteinę (wynik dotyczy skojarzenia, nie samego kwasu foliowego); wolniejszy zanik całego mózgu w łagodnych zaburzeniach poznawczych, zależny od wyjściowej homocysteiny [20] | ↓ tempo zaniku | B |
| Resweratrol | w chorobie Alzheimera większy ubytek objętości mózgu niż w grupie placebo, o niejasnym znaczeniu [28] | ↑ tempo ubytku objętości | B |
Każdy wiersz zestawienia opiera się na pojedynczych badaniach z randomizacją, a nie na metaanalizach [20, 26–28]. Badania obejmowały głównie osoby z zaburzeniami poznawczymi albo z chorobą Alzheimera, więc ich wyników nie można przenosić na prawidłowe starzenie bez badań w tej populacji.
4. Uwagi praktyczne
4.1. Jak to zbadać
Starzenie mózgu ocenia się u konkretnej osoby w badaniu rezonansu magnetycznego, które pokazuje objętość struktur, szerokość komór i bruzd oraz zmiany istoty białej. Ocena może być wzrokowa albo ilościowa. W praktyce klinicznej stosuje się między innymi wzrokową skalę zaniku przyśrodkowej części płatów skroniowych, nazywaną od angielskiej nazwy skalą MTA (ang. medial temporal lobe atrophy). Scheltens i współpracownicy pokazali, że taka ocena na zwykłych obrazach jest szybka i dobrze zgadza się z pomiarami liniowymi tej okolicy [22].
Skala MTA ma pięć stopni, od 0 do 4, i opisuje zanik formacji hipokampa oraz poszerzenie otaczających ją przestrzeni wypełnionych płynem mózgowo-rdzeniowym [4, 22]. Interpretacja wyniku zależy od wieku, a także od płci i wykształcenia. W populacyjnej kohorcie 390 osób w wieku 75 lat większość miała wynik nie wyższy niż 2, a mężczyźni mieli wyniki wyższe niż kobiety [4]. Autorzy za nieprawidłowy uznali w tym wieku wynik co najmniej 2 u kobiet z niższym wykształceniem oraz co najmniej 2,5 u mężczyzn i u kobiet z wyższym wykształceniem [4].
Pomiar ilościowy, czyli wolumetria, wykorzystuje programy komputerowe, które obliczają objętość poszczególnych struktur i porównują ją z wartościami oczekiwanymi dla wieku. Siatki centylowe Bethlehema i współpracowników umożliwiają przedstawienie objętości danej osoby jako centyla względem krzywych z ponad stu tysięcy badań [8]. W badaniach naukowych stosuje się też szacunek tak zwanego wieku mózgu z modeli uczenia maszynowego, które przewidują wiek na podstawie obrazu mózgu [29]. Żadna z tych miar nie stanowi samodzielnie rozpoznania. Według Scheltensa i współpracowników zanik w skali MTA wspiera rozpoznanie kliniczne choroby Alzheimera [22], a więc uzupełnia badanie neuropsychologiczne i ocenę objawów, a nie je zastępuje.
4.2. Na co warto zwrócić uwagę
Przez dziesięciolecia utrwalone było przekonanie o masowym obumieraniu neuronów w starzejącym się mózgu [6]. Badania stereologiczne go nie potwierdziły, a zmniejszenie objętości mózgu wynika głównie ze zmian samych neuronów i ich połączeń [1, 3, 7]. Różnica ma znaczenie praktyczne, bo utraty neuronu nie da się odwrócić, a objętość hipokampa może u osób starszych wzrosnąć, co wykazano w badaniu z randomizacją treningu aerobowego [15].
Drugie nieporozumienie dotyczy opisu badania obrazowego. Określenie „zanik korowy” w opisie rezonansu u osoby starszej bez objawów nie jest rozpoznaniem otępienia. Granice prawidłowego zaniku zależą od wieku [2], a u 75-latków także od płci i wykształcenia [4]. Nagromadzenie β-amyloidu występowało w analizie zbiorczej u około jednej czwartej osób z prawidłowymi wynikami testów poznawczych [13]. Zależność między zanikiem a późniejszym spadkiem sprawności poznawczej opisano w grupach osób [4, 20]. Zależność ta opisuje ryzyko w grupie i nie przesądza o przebiegu u jednej osoby.
Trzecia sprawa dotyczy tak zwanego wieku mózgu, czyli wieku przewidywanego przez model uczenia maszynowego na podstawie obrazu mózgu. Różnicę między tym wiekiem a wiekiem metrykalnym proponowano jako wskaźnik zdrowia mózgu, a mózg wyglądający na starszy wiązał się w badaniach z gorszą sprawnością fizjologiczną i poznawczą oraz z większym ryzykiem zgonu [29]. Vidal-Pineiro i współpracownicy sprawdzili jednak w dwóch dużych zbiorach danych podłużnych, że różnica ta nie wiązała się z tempem zmian mózgu mierzonym u tych samych osób w czasie [30]. Wiązała się natomiast z masą urodzeniową i z wynikami poligenicznymi, czyli z czynnikami działającymi od wczesnego życia [30]. Pojedynczy pomiar wieku mózgu nie mierzy więc tempa starzenia, a twierdzenia o odmładzaniu mózgu oparte na takiej różnicy nie mają podstawy w tych danych.
Ograniczenia dowodowe dotyczą także czynników modyfikujących. Badania przekrojowe zaniżają tempo zaniku w porównaniu z badaniami podłużnymi [2], więc wnioski o tempie starzenia wymagają powtarzanych pomiarów tej samej osoby. Przyrost objętości hipokampa po treningu aerobowym wykazało badanie z randomizacją [15], a metaanalizy potwierdziły efekt głównie dla hamowania ubytku i tylko w części pomiarów [24, 25]. Dane o substancjach odżywczych opierają się na pojedynczych badaniach o rozbieżnych wynikach [20, 26–28]. Ocena niepokojącego pogorszenia pamięci albo nieprawidłowego wyniku badania obrazowego należy do lekarza.