
1. Profil substancji
1.1. Definicja i klasyfikacja
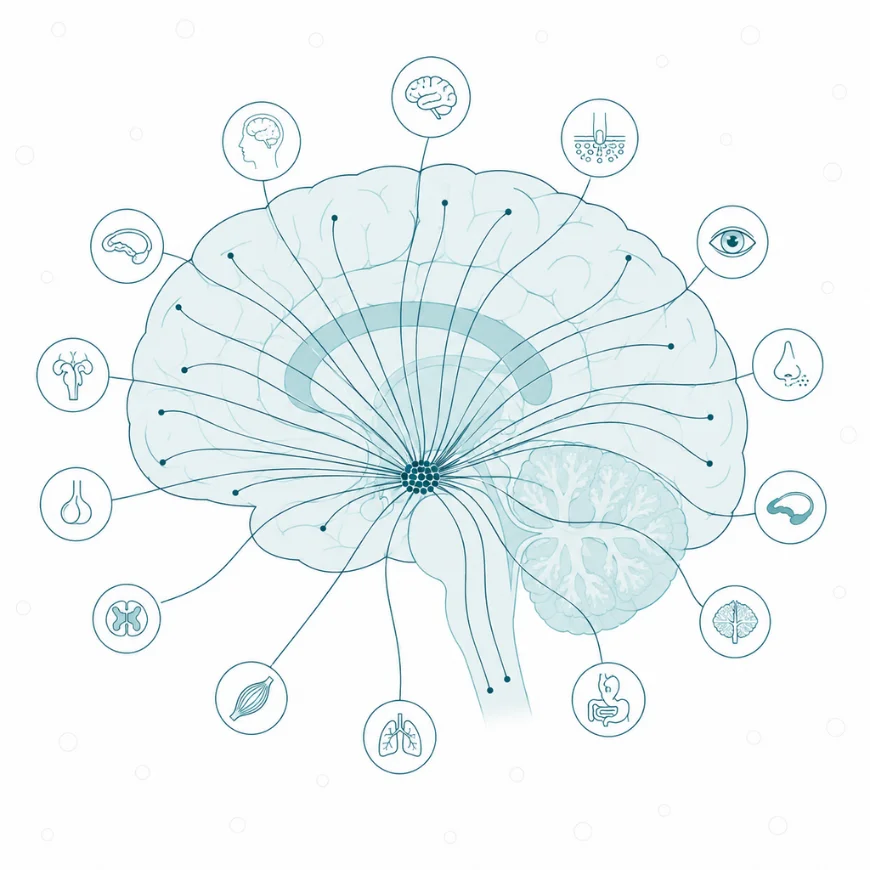
Oreksyny (ang. orexins), nazywane też hipokretynami (ang. hypocretins), to dwa neuropeptydy, oreksyna A i oreksyna B, należące do przekaźników peptydowych ośrodkowego układu nerwowego [1, 2]. W mózgu wytwarza je jedna populacja neuronów bocznego podwzgórza, których aksony docierają do większości ośrodków mózgowia i rdzenia kręgowego [3, 4]. Oba peptydy powstają z jednego białka prekursorowego, a podwójne nazewnictwo pochodzi od dwóch zespołów, które opisały je niezależnie [1, 2]. Hipokretyna 1 to ta sama cząsteczka co oreksyna A, a hipokretyna 2 to oreksyna B [5].
W klasyfikacji przekaźników oreksyny należą do neuropeptydów, czyli krótkich łańcuchów aminokwasów pełniących funkcję sygnałową między neuronami. W zakończeniach neuronów hipokretynowych peptyd występuje w dużych ziarnistych pęcherzykach [2]. Takie pęcherzyki są typowe dla neuropeptydów, a przekaźniki aminokwasowe gromadzą się w mniejszych pęcherzykach synaptycznych. Oreksyny działają przez dwa receptory sprzężone z białkami G, dlatego ich efekt rozwija się wolniej i trwa dłużej niż efekt przekaźnika otwierającego kanał jonowy [1, 6]. Pełnią więc funkcję neuromodulatora, który ustala poziom pobudliwości całych grup neuronów, a nie przenosi pojedynczego impulsu.
Nazwa oreksyny bywa mylona z ogólnym terminem „peptydy oreksygenne”, obejmującym wszystkie cząsteczki pobudzające apetyt. Oreksyny otrzymały nazwę od greckiego słowa orexis, czyli apetyt, ponieważ po podaniu do komór mózgu szczura zwiększały ilość zjadanego pokarmu [1, 7]. Ich główną funkcją okazało się jednak utrzymywanie czuwania, a nie sterowanie jedzeniem [7, 8]. Oreksyny różnią się też od greliny, hormonu krążącego we krwi, który nie jest wytwarzany przez neurony oreksynowe, lecz działa na nie z zewnątrz i je pobudza [9].
Najbliższym sąsiadem anatomicznym oreksyn jest hormon koncentrujący melaninę (ang. melanin-concentrating hormone, MCH), neuropeptyd bocznego podwzgórza sprzyjający snowi REM, czyli fazie snu z szybkimi ruchami gałek ocznych (ang. rapid eye movement). Neurony oreksynowe i neurony MCH leżą obok siebie, ale tworzą dwie rozłączne populacje [10]. Ich pobudzenie w czasie snu daje przeciwne skutki: stymulacja neuronów oreksynowych budzi zwierzę, a stymulacja neuronów MCH nasila sen REM [10]. Termin „układ oreksynowy” obejmuje oba peptydy, ich prekursor, dwa receptory i neurony, które je wytwarzają [7]. Oreksyna wymaga osobnego opisu, ponieważ utrata jej neuronów jest przyczyną narkolepsji typu 1, a jej receptory stały się punktem uchwytu nowej klasy leków [11, 12].
1.2. Budowa, trwałość i rozkład
Oreksyna A to peptyd złożony z 33 aminokwasów, a oreksyna B to peptyd liniowy złożony z 28 aminokwasów [7]. Cztery reszty cysteiny oreksyny A tworzą dwa wewnątrzcząsteczkowe mostki disiarczkowe. Sekwencja oreksyny A jest identyczna u człowieka, szczura, myszy, krowy, owcy, psa i świni [7]. Oreksyna B jest u szczura w 46% identyczna z oreksyną A [7].
Różnica w budowie przekłada się na trwałość obu peptydów poza neuronem. W badaniu na myszach oreksyna A podana dożylnie przenikała przez barierę krew-mózg na drodze prostej dyfuzji i docierała do tkanki mózgowej w postaci nienaruszonej [13]. Oreksyna B była natomiast szybko rozkładana we krwi i w nienaruszonej formie do mózgu nie docierała [13]. Autorzy powiązali tę różnicę z większą lipofilnością oreksyny A, czyli jej lepszą rozpuszczalnością w tłuszczach, z których zbudowane są błony komórkowe [13]. Wyniki te dotyczą modelu mysiego i nie są pomiarem przenikania oreksyn przez barierę u człowieka.
Podobnie jak w przypadku innych neuropeptydów, działanie oreksyny wygasa, gdy peptyd odłączy się od receptora i zostanie rozłożony przez enzymy proteolityczne. W diagnostyce oznacza się hipokretynę-1, czyli trwalszy z dwóch peptydów, w płynie mózgowo-rdzeniowym [14]. Różnica trwałości obu peptydów ma więc znaczenie nie tylko dla ich działania, ale też dla tego, co da się zmierzyć u pacjenta.
1.3. Rys historyczny
Przed 1998 rokiem boczne podwzgórze uchodziło za ośrodek głodu i pobudzenia, bo jego uszkodzenie u zwierząt wywoływało niedojadanie i spadek aktywności, ale nie znano przekaźnika, który za to odpowiada [7]. W styczniu 1998 roku zespół de Lecei opisał swoisty dla podwzgórza matrycowy RNA (mRNA), czyli cząsteczkę przenoszącą zapis genu do miejsca syntezy białka [2]. Kodował on prekursor dwóch peptydów podobnych do jelitowej sekretyny, które autorzy nazwali hipokretynami [2]. Kilka tygodni później zespół Sakuraiego zidentyfikował te same peptydy jako ligandy dwóch receptorów o nieznanym wcześniej ligandzie i nazwał je oreksynami [1]. W 1999 roku zespół Lin ustalił, że psią narkolepsję wywołuje mutacja genu receptora typu 2, a zespół Chemellego opisał objawy narkolepsji u myszy pozbawionych oreksyny [4, 15].
Nie było jednak jasne, czy ten sam mechanizm działa u człowieka, ponieważ ludzka narkolepsja rzadko występuje rodzinnie i nie wiązała się z mutacjami genów układu hipokretynowego [16]. Rozstrzygnięcie przyniósł 2000 rok. Nishino i współpracownicy nie wykryli hipokretyny w płynie mózgowo-rdzeniowym 7 z 9 chorych [17]. W mózgach zmarłych chorych zespół Peyron nie znalazł samych peptydów, a zespół Thannickala stwierdził utratę 85–95% neuronów hipokretynowych [16, 18]. Mutację genu prekursora znaleziono tylko u jednego chorego z bardzo wczesnym początkiem choroby [18].
1.4. Synteza i źródła oreksyny
Oreksyny powstają z białka prekursorowego nazywanego prepro-oreksyną, które u człowieka koduje gen HCRT [18]. Prekursor ulega w neuronie cięciu proteolitycznemu, a z jednego łańcucha powstają dwa peptydy [1]. Oreksyna A otrzymuje przy tym na końcu aminowym resztę piroglutaminową, a na końcu karboksylowym grupę amidową [7].
Neurony oreksynowe leżą w bocznym i tylnym podwzgórzu oraz w okolicy okołosklepieniowej, czyli wokół sklepienia – pęczka włókien łączącego hipokamp z ciałami suteczkowatymi [1, 18]. Część z nich leży też w podwzgórzu grzbietowo-przyśrodkowym [5]. U człowieka jest ich około 74 300, czyli znacznie mniej niż około 205 000 przewidywanych dla mózgu naczelnego o tej masie [19]. Populacja ta ma jednak u człowieka najbardziej złożony podział na skupiska spośród badanych naczelnych, z dodatkowym skupiskiem drobnokomórkowym w podwzgórzu grzbietowo-przyśrodkowym [19].
Neurony oreksynowe nie uwalniają wyłącznie oreksyny. U szczura 94% neuronów zawierających mRNA prepro-oreksyny wytwarza też mRNA prodynorfiny, czyli prekursora dynorfiny, peptydu opioidowego [20]. Neurony te zawierają również glutaminian, a sama oreksyna nasila jego uwalnianie z zakończeń presynaptycznych [7]. U myszy pozbawionych samego peptydu i u myszy pozbawionych całych neuronów obraz zaburzeń jest różny, co autorzy wiążą z możliwą utratą innych przekaźników tych komórek [20]. Zniszczenie neuronów oreksynowych odbiera więc mózgowi kilka przekaźników jednocześnie, a nie tylko oreksynę.
2. Mechanizm działania i funkcje
2.1. Receptory i punkty uchwytu
Receptor oreksynowy typu 1 (ang. orexin receptor 1, OX1R) to białko błonowe, które po związaniu oreksyny przekazuje sygnał przez białka G do wnętrza komórki [1, 7]. Na tej samej zasadzie działa receptor oreksynowy typu 2 (ang. orexin receptor 2, OX2R), kodowany przez odrębny gen [1, 15]. Oba należą do receptorów metabotropowych, więc nie tworzą kanału jonowego, tylko uruchamiają łańcuch reakcji enzymatycznych. Oreksyna A pobudza oba receptory, a oreksyna B działa głównie na OX2R [7]. OX1R odbiera zatem przede wszystkim oreksynę A, a OX2R sygnał od obu peptydów.
Oba receptory mają w mózgu rozmieszczenie w dużej mierze uzupełniające się [3]. OX1R występuje między innymi w korze przedczołowej, hipokampie, jądrze brzuszno-przyśrodkowym podwzgórza, jądrze grzbietowym szwu i miejscu sinawym [3]. OX2R dominuje w korze mózgu, jądrach przegrody, przyśrodkowych jądrach wzgórza, jądrach szwu i wielu jądrach podwzgórza, w tym w jądrze guzowo-suteczkowym [3]. Neurony noradrenergiczne miejsca sinawego mają spośród dwóch receptorów tylko OX1R, a neurony histaminergiczne jądra guzowo-suteczkowego OX2R [7].
Z rozmieszczenia wynika podział pracy między receptorami. Mutacja genu OX2R wywołuje u psów pełną narkolepsję, a myszy pozbawione OX1R mają jedynie niewielkie rozfragmentowanie snu i nie mają katapleksji [7, 15]. Autorzy mapy receptorów wiążą z tym szczególną rolę OX2R w utrzymaniu stabilności stanów snu i czuwania [3]. OX1R uczestniczy z kolei w reakcjach emocjonalnych: w szczurzym modelu paniki antagoniści OX1R znosili reakcje paniczne [21]. Na tej różnicy opiera się projektowanie leków działających wybiórczo na jeden receptor, takich jak agoniści OX2R [22].
2.2. Kaskada sygnałowa
Neuron docelowy oreksyny, na przykład komórka histaminergiczna jądra guzowo-suteczkowego, ma w spoczynku ujemny potencjał błonowy i wolne receptory oreksynowe na powierzchni. Bodźcem jest uwolnienie oreksyny z zakończeń aksonów, które docierają do tego jądra z bocznego podwzgórza [7]. Związanie peptydu zmienia kształt receptora, a ten aktywuje białka G związane z błoną od strony cytoplazmy. Receptory oreksynowe mogą przy tym sprzęgać się z białkami G należącymi do co najmniej trzech rodzin [6].
W drodze głównej białko G aktywuje fosfolipazę C, czyli enzym błonowy rozkładający fosfolipid błony na dwa przekaźniki wtórne [6]. Jeden z nich uwalnia jony wapnia z siateczki śródplazmatycznej, a drugi aktywuje kinazę białkową C. Wzrost stężenia wapnia w cytoplazmie jest głównym sygnałem przenoszonym przez oba receptory [23]. W komórkach z wprowadzonym receptorem OX2R sprzęgał się dodatkowo z białkiem G hamującym cyklazę adenylanową, czego nie stwierdzono dla OX1R [7].
Równolegle oreksyna zmienia przepływ jonów przez błonę neuronu. Otwiera niespecyficzne kanały kationowe, hamuje kanały potasowe i pobudza wymiennik sodowo-wapniowy, a wszystkie trzy zmiany przesuwają potencjał błonowy w stronę depolaryzacji [6]. Kinaza białkowa C nasila dodatkowo prądy wapniowe przez kanały typu L [7]. Stanem końcowym jest neuron zdepolaryzowany, który łatwiej osiąga próg i częściej wyładowuje się potencjałami czynnościowymi.
Oreksyna działa też presynaptycznie, zwiększając uwalnianie przekaźników z zakończeń nerwowych, i modyfikuje plastyczność synaps [6]. W polu brzusznym nakrywki oreksyna A nasila przekaźnictwo zależne od receptorów NMDA (N-metylo-D-asparaginianowych), czyli jonotropowych receptorów glutaminianu uczestniczących w plastyczności synaps, przez wbudowywanie nowych receptorów do błony synapsy [7]. Przy dłuższej stymulacji receptory oreksynowe wywołują w niektórych komórkach trwałe zmiany plastyczne [6]. Oreksyna może więc zmieniać czynność synapsy na dłużej, niż trwa jej obecność przy receptorze.
2.3. Funkcje oreksyny
Neurony oreksynowe wysyłają aksony do ośrodków czuwania, łaknienia, nagrody i układu autonomicznego, dlatego jeden peptyd wpływa jednocześnie na kilka układów [7]. Układ oreksynowy dostosowuje poziom czuwania do stanu emocjonalnego, dostępności nagrody i bilansu energetycznego organizmu [24]. Poszczególne funkcje różnią się ośrodkiem docelowym, a nie samym mechanizmem komórkowym.
2.3.1. Stabilizacja czuwania
Czuwanie podtrzymują grupy neuronów pnia mózgu i podwzgórza, które uwalniają noradrenalinę, histaminę, serotoninę i acetylocholinę. Neurony te wyładowują się szybko w czasie czuwania i milkną w czasie snu [7]. Hamuje je jądro przedwzrokowe brzuszno-boczne, ośrodek snu wysyłający do ośrodków czuwania włókna uwalniające kwas γ-aminomasłowy (GABA), główny przekaźnik hamujący mózgu [7]. Wzajemne hamowanie ośrodków snu i czuwania działa jak przełącznik, który przechodzi szybko i w całości z jednego stanu w drugi [25].
Oreksyna pobudza jednocześnie monoaminergiczne i cholinergiczne ośrodki czuwania [7, 8]. Wzmacnia w ten sposób tę stronę przełącznika, która utrzymuje czuwanie, i zapobiega przypadkowym przejściom do snu [25]. U myszy optogenetyczne pobudzenie neuronów oreksynowych zwiększało prawdopodobieństwo przebudzenia ze snu REM i ze snu NREM, czyli snu bez szybkich ruchów gałek ocznych, a ich wyciszenie wywoływało sen NREM [7]. Za przebudzenie odpowiadało w dużej mierze miejsce sinawe, bo zahamowanie jego neuronów znosiło efekt stymulacji neuronów oreksynowych [7].
Główne ośrodki czuwania, na które działa oreksyna, różnią się przekaźnikiem, typem receptora oreksynowego i rolą w utrzymaniu czuwania.
| Ośrodek docelowy | Przekaźnik | Działanie oreksyny | Rola |
| Miejsce sinawe (most) | noradrenalina | pobudzenie przez OX1R [7] | przebudzenie, czujność |
| Jądro guzowo-suteczkowe (podwzgórze tylne) | histamina | pobudzenie przez OX2R [7] | podtrzymanie czuwania |
| Jądro grzbietowe szwu (pień mózgu) | serotonina | pobudzenie, obecne OX1R i OX2R [3, 7] | aktywność w czuwaniu, milknięcie w śnie |
| Jądra nakrywki grzbietowo-boczne i konarowo-mostowe | acetylocholina | wzrost częstotliwości wyładowań [7] | czuwanie i sen REM |
| Podstawa przodomózgowia | acetylocholina | bezpośrednie pobudzenie [7] | pobudzenie kory |
Oreksyna nie jest zatem jednym z wielu równorzędnych przekaźników czuwania, lecz sygnałem, który pobudza naraz neurony wszystkich wymienionych przekaźników. Dzięki temu dobowy rytm snu i czuwania obejmuje długi, zwarty okres czuwania, a nie krótkie epizody przerywane snem [7].
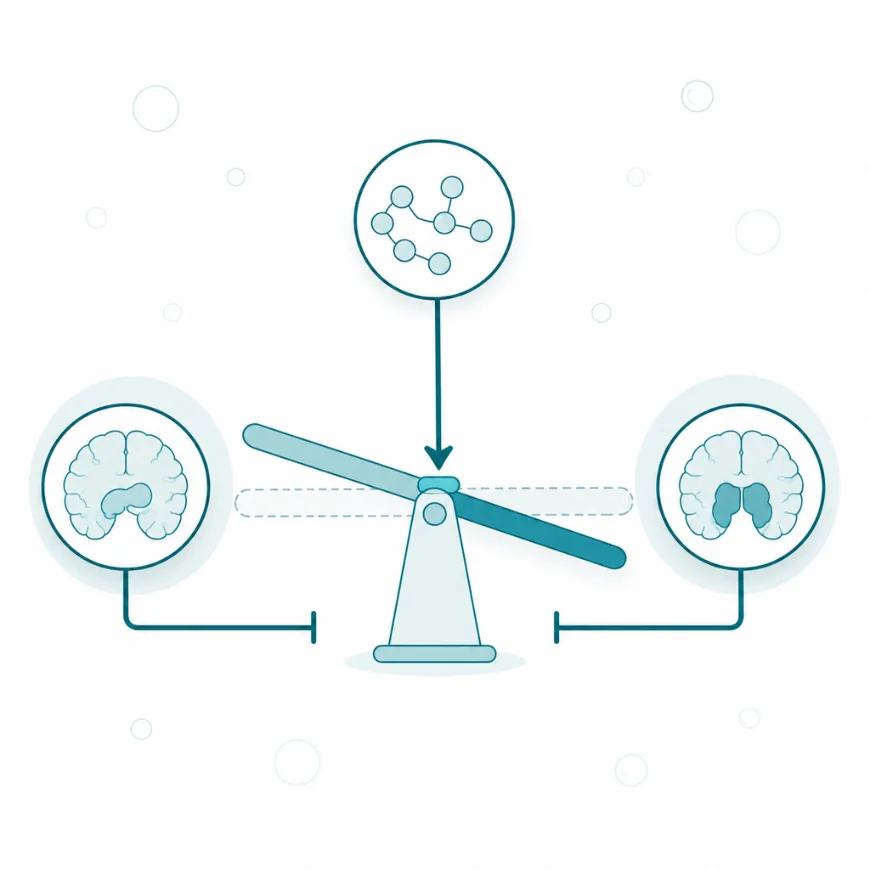
Oreksyna stabilizuje przełącznik snu i czuwania. Gdy jej brakuje, układ staje się chwiejny, a granice między snem a jawą zaczynają się zacierać.
2.3.2. Hamowanie przejścia do fazy snu REM
W regulacji snu REM i czuwania kluczową rolę odgrywają cholinergiczne jądra nakrywki grzbietowo-bocznej i konarowo-mostowej w pniu mózgu, a cechą snu REM jest zniesienie napięcia mięśni szkieletowych [7]. Oreksyna A zwiększa częstotliwość wyładowań tych neuronów cholinergicznych [7]. U kotów podanie oreksyny A do jądra nakrywki grzbietowo-bocznej wydłużało czuwanie i skracało sen REM [7]. Po podaniu oreksyny do jądra konarowo-mostowego wywołanie zwiotczenia mięśni wymagało silniejszego bodźca [7].
Oreksyna podtrzymuje równocześnie aktywność neuronów noradrenergicznych i serotoninergicznych, które w czasie snu REM milkną [7]. Sygnał oreksynowy utrzymuje w ten sposób granicę między czuwaniem a snem REM, a jej załamanie w narkolepsji wiąże się z rozpadem przełącznika stanów [8, 25]. Neurony oreksynowe otrzymują też wejścia z układu limbicznego, a hipoteza zakłada, że silne emocje zwiększają uwalnianie oreksyny w jądrze konarowo-mostowym i w ten sposób chronią przed utratą napięcia mięśni [7]. Konsekwencją braku tego zabezpieczenia jest katapleksja, czyli nagła utrata napięcia mięśni wywołana zwykle pozytywną emocją przy zachowanej świadomości [7].
2.3.3. Apetyt i gospodarka energetyczna
Oreksyny podane do komór mózgu szczura zwiększały ilość zjadanego pokarmu [1]. Nie zmniejszały przy tym tempa przemiany materii, lecz zwiększały jednocześnie spożycie i wydatek energii [7]. Autorzy przeglądu tłumaczą ten profil tym, że zwierzę szukające pokarmu musi być czujne i aktywne [7].
Działanie na łaknienie przebiega częściowo przez jądro łukowate podwzgórza. Oreksyna pobudza tam neurony wytwarzające neuropeptyd Y, który silnie zwiększa pobieranie pokarmu, i hamuje neurony proopiomelanokortynowe, które łaknienie tłumią [7]. Antagonista neuropeptydu Y tylko częściowo znosił jedzenie wywołane oreksyną, więc istnieją też inne drogi tego efektu [7].
Neurony oreksynowe łączą przy tym bilans energetyczny z czuwaniem [9]. Myszy pozbawione neuronów oreksynowych nie reagowały na głodzenie wzrostem czuwania i aktywności ruchowej, typowym dla zwierząt zdrowych [9]. Myszy z tego modelu jadły mniej niż zwierzęta kontrolne, a mimo to z wiekiem tyły [7, 20]. Autorzy przeglądu tłumaczą ten paradoks udziałem oreksyny w wydatkowaniu energii, między innymi przez wytwarzanie ciepła w brunatnej tkance tłuszczowej [7].
2.3.4. Układ nagrody i motywacja
Boczne podwzgórze od dawna łączono z motywacją i nagrodą, a neurony oreksynowe wysyłają włókna do jądra półleżącego i pola brzusznego nakrywki, czyli ośrodków układu nagrody [26]. Oreksyna bezpośrednio pobudza neurony dopaminowe pola brzusznego nakrywki [7, 23]. U szczurów aktywacja neuronów oreksynowych wiązała się z preferencją bodźców kojarzonych z narkotykiem i pokarmem [26].
Chemiczne pobudzenie neuronów oreksynowych przywracało u szczurów wygaszone wcześniej poszukiwanie morfiny, a antagonista oreksyny A całkowicie ten efekt znosił [26]. Podobny skutek dawało podanie samej oreksyny A do pola brzusznego nakrywki [26]. Neurony oreksynowe są też pobudzane przez oczekiwanie nagrody i bodźce ją zapowiadające [23]. U gryzoni około dwóch trzecich z nich zwiększa aktywność przed samodzielnie rozpoczętym biegiem i w odpowiedzi na bodźce czuciowe różnych rodzajów [10].
Oreksyna działa więc jako sygnał gotowości do działania, który łączy czuwanie z dążeniem do celu. Opisane doświadczenia wykonano na gryzoniach, więc ich przeniesienie na człowieka wymaga potwierdzenia w badaniach klinicznych.
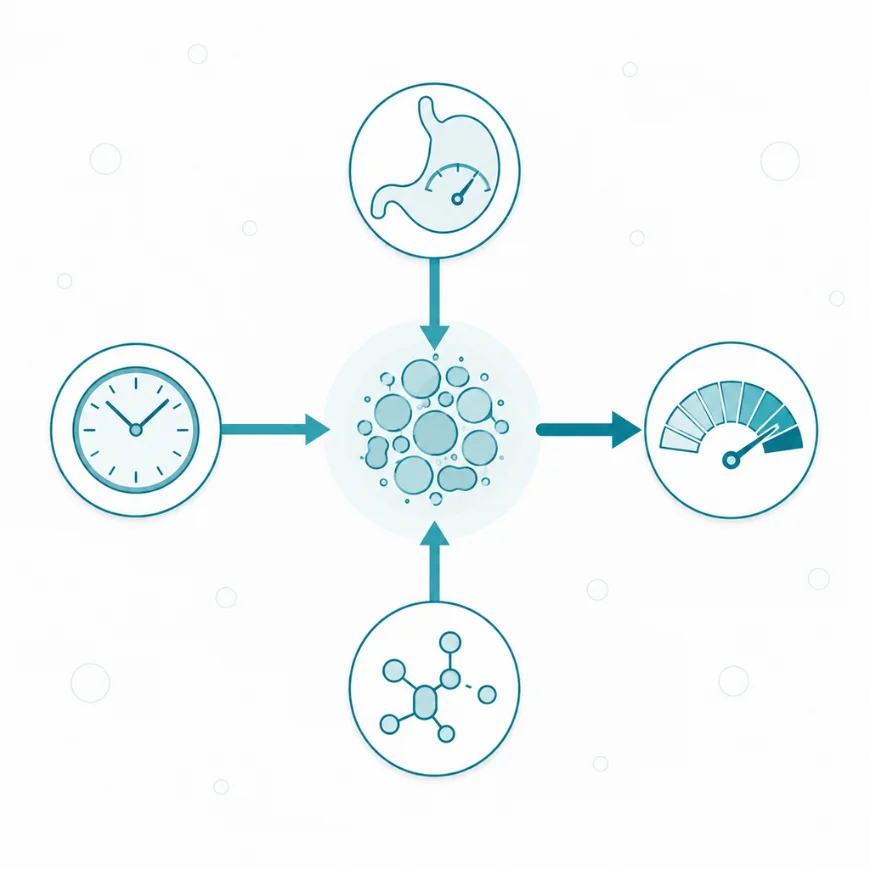
Neurony oreksynowe integrują trzy osie: dobową, metaboliczną i nagrody. Oznacza to, że sygnały dotyczące głodu, pory dnia i motywacji zbiegają się w jednej, wyspecjalizowanej grupie komórek.
2.3.5. Reakcja na stres i układ autonomiczny
Neurony oreksynowe aktywują się nie tylko przy głodzie, ale też pod wpływem różnorodnych bodźców czuciowych, zarówno obojętnych, jak i kojarzonych z nagrodą lub zagrożeniem [27]. Do ich wyjść należą pobudzenie kory widoczne w zapisie elektroencefalograficznym, aktywacja układu współczulnego i zachowania eksploracyjne [27]. Hipoteza zakłada, że wspólnym mianownikiem tych bodźców jest stres rozumiany jako stan potencjalnego zagrożenia albo niedoboru nagrody [27].
Oreksyny podane do komór mózgu podnosiły u zwierząt ciśnienie tętnicze i częstość pracy serca [7]. Efekt ten znosiły leki blokujące receptory adrenergiczne alfa-1 i beta, co wskazuje na pośrednictwo współczulnej części autonomicznego układu nerwowego [7]. Myszy pozbawione oreksyny miały niższe ciśnienie niż zwierzęta kontrolne i słabiej reagowały wzrostem ciśnienia i tętna na stres emocjonalny [7].
Oreksyna przygotowuje zatem organizm do reakcji na zagrożenie, zwiększając jednocześnie czujność i gotowość krążenia. Ta sama cecha staje się niekorzystna, gdy układ oreksynowy pozostaje nadmiernie pobudzony w stanach lękowych [21].
2.3.6. Termoregulacja
Brunatna tkanka tłuszczowa wytwarza ciepło bez drżenia mięśniowego i jest jednym ze sposobów utrzymania temperatury ciała. U szczurów włókna oreksynowe biegnące do jądra bladego szwu nasilały wytwarzanie ciepła w brunatnej tkance tłuszczowej [7]. Termoregulacja należy do funkcji autonomicznych, w których udział układu hipokretynowego opisano również w przeglądzie klinicznym [5].
Dane od ludzi nie potwierdzają jednak prostego przeniesienia tego mechanizmu. W badaniu siedmiu chorych z narkolepsją typu 1 i siedmiu osób zdrowych aktywność brunatnej tkanki tłuszczowej po dwóch godzinach w chłodzie nie różniła się między grupami [28]. U chorych z narkolepsją typu 1 termogeneza w brunatnej tkance tłuszczowej działała więc po ekspozycji na chłód także bez neuronów oreksynowych. Znaczenie oreksyny dla termoregulacji człowieka pozostaje przez to nieustalone.
2.4. Regulacja wydzielania i zmienność dobowa
Aktywność neuronów oreksynowych zmienia się w rytmie dobowym i w odpowiedzi na stan odżywienia, a sterują nią wejścia z podwzgórza, pnia mózgu i układu limbicznego [7]. U zwierząt stężenie oreksyny w płynie mózgowo-rdzeniowym wykazuje wahania dobowe, które znikają po usunięciu jądra nadskrzyżowaniowego, czyli głównego zegara biologicznego [7]. Zegar ten unerwia neurony oreksynowe bezpośrednio tylko w niewielkim stopniu, a głównie przez jądro grzbietowo-przyśrodkowe podwzgórza [7, 29]. U szczurów uszkodzenie jądra grzbietowo-przyśrodkowego osłabiało dobowy rytm czuwania, jedzenia i aktywności ruchowej o 78–89% [29].
Neurony oreksynowe są też hamowane przez ośrodki snu. U myszy neurony GABA-ergiczne i galaninowe jądra przedwzrokowego brzuszno-bocznego tworzą bezpośrednie synapsy na neuronach oreksynowych [30]. GABA silnie hamuje neurony oreksynowe przez oba typy swoich receptorów [7]. Hamują je też serotonina, noradrenalina i dopamina, a sama oreksyna pobudza sąsiednie neurony oreksynowe przez OX2R, co tworzy lokalne dodatnie sprzężenie zwrotne [7].
Drugą grupą sygnałów są wskaźniki bilansu energetycznego. W preparatach od myszy glukoza i leptyna hamowały izolowane neurony oreksynowe, a grelina je pobudzała [9]. Aminokwasy pokarmowe również aktywują te neurony i osłabiają ich odpowiedź na glukozę, a insulina nie działa na nie bezpośrednio [7]. U szczurów głodzenie zwiększało ekspresję mRNA prepro-oreksyny w podwzgórzu [1].
Neurony oreksynowe sumują więc informacje o porze doby, stanie odżywienia i bodźcach z otoczenia. Wynikiem tej integracji jest poziom czuwania dopasowany do bieżącej potrzeby organizmu.
3. Zaburzenia i modyfikacja poziomu
3.1. Niedobór – przyczyny i następstwa
Niedobór oreksyny u człowieka wynika niemal zawsze z utraty neuronów, które ją wytwarzają, a nie z defektu genu prekursora [18]. U chorych z narkolepsją liczba neuronów hipokretynowych jest zmniejszona o 85–95%, podczas gdy przemieszane z nimi neurony MCH zachowują prawidłową liczebność [16]. Mutacja genu prekursora jest przyczyną wyjątkową, opisaną u jednego chorego z bardzo wczesnym początkiem choroby [18].
Brak oreksyny odbiera przełącznikowi snu i czuwania stabilizację, więc oba stany zaczynają się przeplatać [25]. Narkolepsja typu 1 obejmuje nadmierną senność dzienną i katapleksję, a także omamy przy zasypianiu, porażenie przysenne i rozfragmentowany sen nocny [11]. Okresy snu REM pojawiają się u chorych wkrótce po zaśnięciu, co jest zgodne z utratą hamującego wpływu oreksyny na przejście do snu REM [11].
Skutki niedoboru wykraczają poza sen. Narkolepsja typu 1 wpływa również na funkcje ruchowe, psychiczne, emocjonalne, poznawcze, metaboliczne i autonomiczne [11]. W metaanalizie 48 badań chorzy z narkolepsją częściej niż osoby bez niej mieli otyłość, cukrzycę, nadciśnienie tętnicze i zaburzenia lipidowe oraz wyższy wskaźnik masy ciała [31]. Obraz ten przypomina otyłość zwierząt pozbawionych neuronów oreksynowych mimo mniejszego spożycia pokarmu [7].
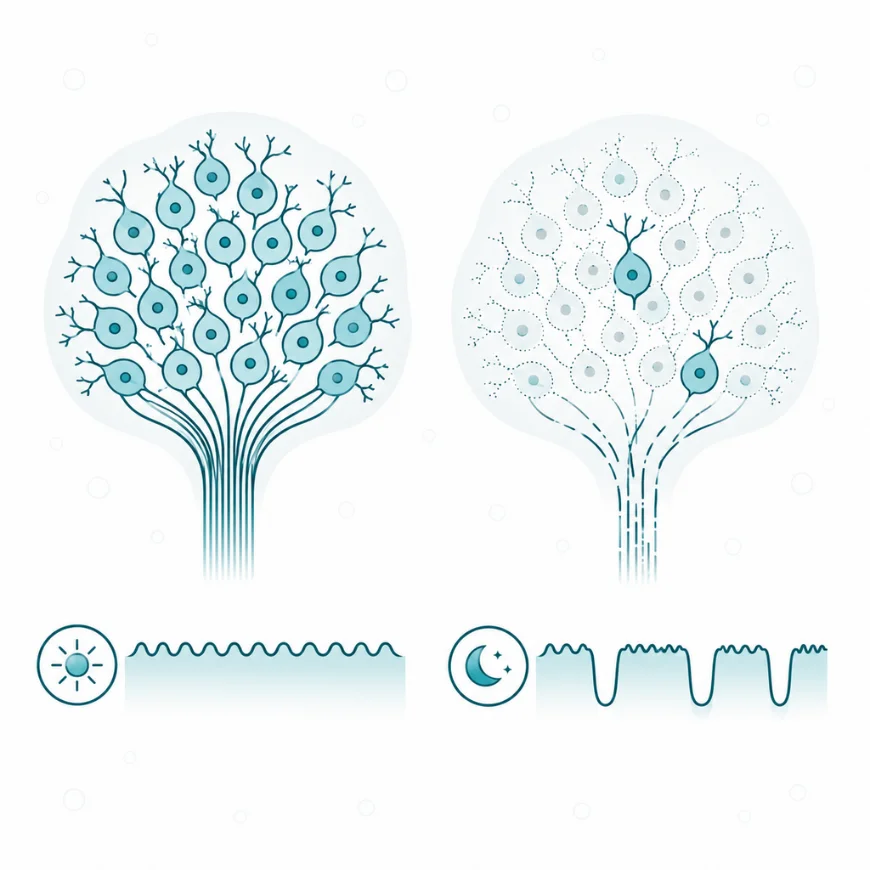
W narkolepsji typu 1 ginie ponad 90% neuronów oreksynowych. Objawy wynikają z utraty stabilizacji między stanem czuwania a snem.
3.2. Nadmiar – przyczyny i następstwa
Nadmierną aktywność układu oreksynowego opisano dotąd przede wszystkim w modelach zwierzęcych oraz w pojedynczych badaniach u ludzi [21, 23]. W szczurzym modelu napadów paniki pobudzenie neuronów oreksynowych było warunkiem rozwoju stanu podatności na panikę [21]. Wyciszenie genu oreksyny w podwzgórzu albo podanie antagonistów OX1R znosiło reakcje paniczne [21]. U ludzi z lękiem panicznym stężenie oreksyny w płynie mózgowo-rdzeniowym było wyższe niż u osób bez takiego lęku [21].
W przeglądzie zaburzeń motywacji nadmierne pobudzenie neuronów oreksynowych wiąże się z objadaniem się, zaburzeniami lękowymi i uzależnieniami [23]. Zaburzenia z obniżoną motywacją, takie jak depresja, autorzy wiążą z kolei z osłabieniem tego układu [23]. Zmiany aktywności neuronów oreksynowych w zaburzeniach lękowych i w depresji opisano w innym przeglądzie jako element hipotezy, według której neurony te sygnalizują stres [27].
Odrębną sprawą jest bezsenność. Antagoniści receptorów oreksynowych skracają czas zasypiania i czuwania w nocy, ponieważ osłabiają sygnał czuwania w porze snu [32, 33].
3.3. Rola oreksyny w patogenezie chorób
Narkolepsja typu 1 jest chorobą, w której oreksyna stanowi ogniwo centralne, a jej brak jest najprawdopodobniej skutkiem procesu autoimmunologicznego [5, 34]. Choroba dotyka około 1 na 2000 osób [14]. Allel HLA-DQB106:02, czyli wariant genu cząsteczki głównego układu zgodności tkankowej prezentującej limfocytom fragmenty białek, występował u 93% chorych z typową katapleksją i u 17% osób z grupy kontrolnej [14]. Prawie wszyscy chorzy z katapleksją mają jednocześnie allele DQA101:02 i DQB106:02, a nosicielstwo dwóch kopii DQB106:02 zwiększa ryzyko jeszcze bardziej [35].
Bezpośredni dowód udziału układu odpornościowego przyniosło badanie limfocytów T. Limfocyty T pomocnicze rozpoznające hipokretynę wykryto u wszystkich 19 badanych chorych, a limfocyty rozpoznające białko TRIB2, inny antygen neuronów hipokretynowych, u 8 z 13 [34]. Limfocyty T cytotoksyczne swoiste wobec hipokretyny znaleziono we krwi i w płynie mózgowo-rdzeniowym części chorych [34]. Autoreaktywne limfocyty nie reagowały krzyżowo z antygenami wirusa grypy [34].
Czynnikiem wyzwalającym bywa infekcja albo szczepienie. W Finlandii badano szczepionkę przeciw grypie pandemicznej wywołanej wirusem grypy A podtypu H1N1, zawierającą adiuwant AS03, czyli dodatek wzmacniający odpowiedź odpornościową. Zapadalność na narkolepsję wśród zaszczepionych osób w wieku 4–19 lat była 12,7 razy wyższa niż wśród niezaszczepionych [36]. W Chinach liczba zachorowań wzrosła trzykrotnie po pandemii grypy H1N1 z 2009 roku, choć szczepienie pamiętało tylko 5,6% chorych [37]. Początek choroby miał tam charakter sezonowy i następował 5–7 miesięcy po szczycie infekcji górnych dróg oddechowych [37].
Częściowy niedobór oreksyny opisano też w innych chorobach neurologicznych, w tym w chorobie Alzheimera, Parkinsona i Huntingtona, stwardnieniu rozsianym i zespole Pradera-Williego [5]. Może on współodpowiadać za zaburzenia snu w tych chorobach [5]. W uzależnieniach oreksyna działa jako ogniwo nawrotu poszukiwania substancji, co opisano w modelach zwierzęcych [23, 26].
3.4. Punkt uchwytu leków
Receptory oreksynowe stały się celem leków w obu kierunkach: antagonistów w bezsenności i agonistów w narkolepsji. Podwójni antagoniści receptorów oreksynowych (ang. dual orexin receptor antagonists) blokują oba receptory, a tym samym osłabiają sygnał czuwania w porze nocnej. Pierwszym lekiem działającym na układ oreksynowy, który zarejestrowała amerykańska Agencja Żywności i Leków, był suworeksant [12]. W rocznym badaniu z randomizacją suworeksant był dobrze tolerowany i w pierwszym miesiącu wydłużał subiektywny czas snu oraz skracał czas zasypiania [33]. Najczęstszym działaniem niepożądanym była senność, zgłaszana przez 13% leczonych i 3% osób z grupy placebo [33].
Lemboreksant utrzymywał skuteczność przez 12 miesięcy, a po odstawieniu nie obserwowano bezsenności z odbicia ani objawów odstawiennych [38]. Daridoreksant w dwóch badaniach fazy 3 skracał czas czuwania po zaśnięciu, w pierwszym z nich także czas do zaśnięcia, a w wyższej dawce badanej poprawiał funkcjonowanie dzienne [32]. W metaanalizie sieciowej 154 badań lemboreksant miał korzystny profil skuteczności, choć dane o jego bezpieczeństwie uznano za niejednoznaczne [39]. Ta sama analiza oceniła daridoreksant i suworeksant jako skuteczne w leczeniu doraźnym, zgłaszając zastrzeżenia dotyczące tolerancji albo brak danych o działaniu długotrwałym [39].
Drugi kierunek to agoniści OX2R, którzy mają zastąpić brakujący sygnał u chorych z narkolepsją typu 1. TAK-994 poprawiał czuwanie i zmniejszał liczbę napadów katapleksji, ale badanie przerwano z powodu działań niepożądanych dotyczących wątroby [40]. U 3 chorych uszkodzenie wątroby spełniało kryteria Hy’a, czyli kryteria ciężkiego polekowego uszkodzenia tego narządu [40]. Oveporexton (TAK-861) w badaniu fazy 2 poprawiał czuwanie i senność bez działania hepatotoksycznego [22]. W dwóch badaniach fazy 3 mediana zmniejszenia liczby napadów katapleksji wyniosła 79,0–88,8% wobec 27,7–39,1% w grupie placebo [41].
Leki działające na receptory oreksynowe różnią się kierunkiem działania, wskazaniem i zaawansowaniem badań klinicznych.
| Lek | Mechanizm | Wskazanie badane | Stan wiedzy |
| Suworeksant | antagonista OX1R i OX2R | bezsenność | zarejestrowany w USA [12], badanie roczne [33] |
| Lemboreksant | antagonista OX1R i OX2R | bezsenność | badanie 12-miesięczne, brak bezsenności z odbicia [38] |
| Daridoreksant | antagonista OX1R i OX2R | bezsenność | dwa badania fazy 3 [32] |
| TAK-994 | agonista OX2R | narkolepsja typu 1 | badanie przerwane z powodu hepatotoksyczności [40] |
| Oveporexton (TAK-861) | agonista OX2R | narkolepsja typu 1 | badania fazy 2 i 3 [22, 41] |
Blokowanie sygnału oreksynowego ma zatem już zastosowanie kliniczne, a jego odtwarzanie agonistami pozostaje na etapie badań. Dawkowanie i przeciwwskazania tych leków określają ich charakterystyki produktu leczniczego.
3.5. Czynniki wpływające na działanie oreksyny
Na stan układu oreksynowego wpływają czynniki niemodyfikowalne, związane z genotypem i wiekiem, oraz czynniki zależne od pory doby, odżywienia i otoczenia. Najsilniejszym znanym czynnikiem niemodyfikowalnym jest nosicielstwo allelu HLA-DQB1*06:02, szczególnie w dwóch kopiach [35]. Wiek ma znaczenie przy czynnikach wyzwalających, bo zwiększona zapadalność po szczepieniu w Finlandii dotyczyła osób w wieku 4–19 lat [36]. W chińskiej grupie chorych dzieci stanowiły 86% [37].
Obok genotypu działają allele ochronne. W badaniu obejmującym trzy grupy etniczne allele DQB106:01 i DQB105:01 zmniejszały ryzyko narkolepsji z katapleksją [35]. Autorzy uznali, że poza genami układu zgodności tkankowej istnieją też inne, nieznane jeszcze miejsca podatności w genomie [35].
Z czynników zależnych od trybu życia na neurony oreksynowe działają pora doby, głód i skład posiłku oraz bodźce z otoczenia [7, 9, 10]. Ich działanie opisano jednak na zwierzętach i w preparatach tkankowych.
Punkt uchwytu na układzie oreksynowym opisano też dla kilku substancji pochodzenia pokarmowego i roślinnego, wyłącznie w badaniach przedklinicznych. Glicyna podana dootrzewnowo myszom hamowała neurony oreksynowe przez receptory glicynowe na ich błonie i skracała czuwanie w okresie aktywności [42]. W badaniu in vitro hesperydyna i nobiletyna, flawonoidy ze skórki mandarynki, aktywowały OX1R, ale nie OX2R [43]. U starych szczurów pozbawianych snu wyciąg alkoholowy z żeń-szenia wydłużał sen i obniżał stężenie oreksyny w podwzgórzu [44]. Wyniki te nie pochodzą z badań klinicznych i nie pozwalają ocenić działania tych substancji u ludzi.
U ludzi zależności tych nie da się sprawdzić prostym pomiarem, bo stężenie hipokretyny-1 we krwi nie różni się nawet między chorymi z narkolepsją typu 1 a osobami zdrowymi [45]. Wpływ głodu i składu posiłku na układ oreksynowy człowieka jest więc wnioskiem z badań na zwierzętach, a nie wynikiem pomiaru u ludzi. Najlepiej udokumentowanym u człowieka czynnikiem zmieniającym czynność tego układu pozostają leki działające na receptory oreksynowe [39, 41].
4. Uwagi praktyczne
4.1. Jak to zbadać
Oreksyny nie oznacza się w rutynowych badaniach krwi, lecz w płynie mózgowo-rdzeniowym pobranym przez nakłucie lędźwiowe [14, 45]. Oznaczenie dotyczy hipokretyny-1, czyli oreksyny A, a w badaniu, które ustaliło progi diagnostyczne, wszystkie próbki analizowano w jednym ośrodku [14]. W badaniu 274 pacjentów z zaburzeniami snu i 296 osób kontrolnych stężenie poniżej 110 pg/ml okazało się diagnostyczne dla narkolepsji, a wartości powyżej 200 pg/ml uznano za prawidłowe [14]. Wynik podaje się w pikogramach na mililitr (pg/ml).
Wynik pośredni, między 110 a 200 pg/ml, stwierdzano u części chorych z nadmierną sennością oraz w różnych ostrych stanach neurologicznych [14]. Autorzy uznali oznaczenie za rozstrzygające tylko przy interpretacji w kontekście klinicznym [14]. Największą wartość ma ono u chorych z katapleksją oraz wtedy, gdy trudno ocenić wynik testu wielokrotnej latencji snu (ang. multiple sleep latency test, MSLT), czyli badania mierzącego, jak szybko pacjent zasypia w ciągu dnia [14]. Dotyczy to na przykład pacjentów przyjmujących leki psychoaktywne [14].
Niedobór oreksyny w płynie mózgowo-rdzeniowym jest jednym z trzech biomarkerów wspierających rozpoznanie narkolepsji typu 1, obok wczesnych okresów snu REM i obecności allelu HLA-DQB1*06:02 [11]. MSLT i polisomnografia oceniają skutki niedoboru dla snu, a nie samo stężenie oreksyny. Oznaczenie hipokretyny-1 we krwi nie ma wartości diagnostycznej, bo nawet po specjalnym przygotowaniu próbki wyniki chorych z narkolepsją typu 1 nie różniły się od wyników osób zdrowych [45].
4.2. Na co warto zwrócić uwagę
Skuteczność antagonistów receptorów oreksynowych nie dowodzi, że bezsenność wynika z nadmiaru oreksyny. Badania rejestracyjne suworeksantu i daridoreksantu oceniały sen i funkcjonowanie dzienne chorych, a nie stężenie oreksyny [32, 33]. Lek blokujący receptor osłabia sygnał czuwania bez względu na to, czy jest on nadmierny, czy prawidłowy. Poprawa snu po leczeniu nie jest więc informacją o pierwotnym stanie układu oreksynowego chorego.
Związek szczepienia z narkolepsją dotyczy konkretnej sytuacji, a nie szczepień w ogóle. Ryzyko przypisywane szczepionce oszacowano w Finlandii na jeden przypadek na 16 000 zaszczepionych osób w wieku 4–19 lat i dotyczyło jednego preparatu z adiuwantem AS03 [36]. Równoległe dane z Chin wskazują, że samo zakażenie wirusem grypy może wyzwolić chorobę, bo większość chorych nie była szczepiona [37]. Mechanizm łączący grypę z atakiem na neurony hipokretynowe pozostaje niewyjaśniony, a limfocyty autoreaktywne opisane u chorych nie reagowały krzyżowo z antygenami wirusa [34].
Część funkcji oreksyny opisano dotąd tylko w doświadczeniach na zwierzętach. Udział w nawrocie poszukiwania narkotyku wykazano u szczurów [26]. U ludzi z lękiem panicznym stwierdzono jedynie podwyższone stężenie oreksyny w płynie mózgowo-rdzeniowym, które nie rozstrzyga o przyczynie lęku [21]. W termoregulacji dane od chorych z narkolepsją typu 1 nie potwierdziły wyników uzyskanych na gryzoniach [28]. Przenoszenie wyników z modeli zwierzęcych na człowieka wymaga więc ostrożności także przy interpretacji objawów narkolepsji.
Nie jest też rozstrzygnięty sam charakter uszkodzenia neuronów. W jednym badaniu pośmiertnym stwierdzono w okolicy neuronów hipokretynowych glejozę, czyli bliznę glejową świadczącą o procesie niszczącym [16]. W innym, obejmującym sześć mózgów, utracie hipokretyn nie towarzyszyły ani glejoza, ani cechy zapalenia [18]. Obecność autoreaktywnych limfocytów T u chorych przemawia za mechanizmem autoimmunologicznym, ale przebieg niszczenia neuronów nie został bezpośrednio opisany [34].
Agoniści OX2R łagodzą objawy narkolepsji typu 1, ale mają własny profil działań niepożądanych. Częstsze oddawanie moczu i przemijająca bezsenność wystąpiły w badaniach fazy 3 u większości leczonych oveporextonem [41]. Uszkodzenie wątroby opisano natomiast przy TAK-994, a w badaniu fazy 2 oveporextonu nie wystąpiło, co sugeruje, że zależy ono od budowy cząsteczki [22, 40]. Rozpoznanie narkolepsji i wybór leczenia należą do lekarza specjalisty medycyny snu, a oznaczenie oreksyny jest tylko jednym z elementów tej oceny.