
1. Profil substancji
1.1. Definicja i klasyfikacja
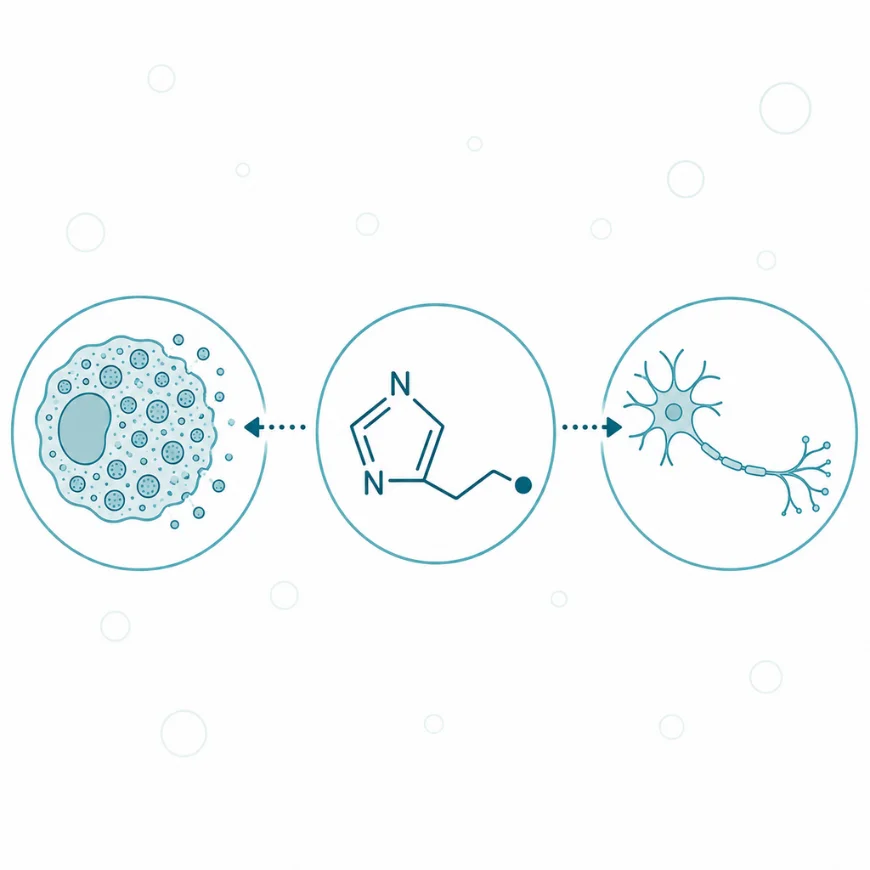
Histamina to amina biogenna o pierścieniu imidazolowym, czyli związek powstały przez odłączenie grupy karboksylowej od aminokwasu. Wśród amin biogennych stoi obok serotoniny i amin katecholowych, od których różni ją budowa pierścienia i odrębny zestaw receptorów. Powstaje z L-histydyny i pełni dwie role naraz. W ośrodkowym układzie nerwowym jest przekaźnikiem wytwarzanym przez własną, wyodrębnioną grupę neuronów. W tkankach obwodowych jest mediatorem uwalnianym z ziarnistości komórek odpornościowych [1, 2]. Obie role opierają się na tych samych receptorach, a różnią się źródłem cząsteczki, czasem jej działania i zasięgiem.
Histaminę odróżnia się od kilku pojęć, z którymi bywa mylona. Nie jest tożsama z histydyną, czyli aminokwasem, z którego powstaje. Nie jest też tryptazą. Obie cząsteczki opuszczają tę samą ziarnistość mastocyta, lecz tryptaza jest enzymem, a histamina ligandem receptorów [26]. Od nietolerancji histaminy odróżnia ją to, że nietolerancja nazywa zespół objawów przypisywanych nadmiarowi aminy, a nie samą cząsteczkę [12]. Potocznie „lek przeciwhistaminowy” oznacza wyłącznie antagonistę receptora H1. Antagoniści receptora H2 stosowani w chorobie wrzodowej także znoszą działanie histaminy, tylko w innej tkance [1, 20].
Zakres pojęcia obejmuje konkretną cząsteczkę o ustalonej chemii i ustalonych drogach rozkładu, a nie całą odpowiedź zapalną, w której ona uczestniczy. W reakcji nadwrażliwości natychmiastowej mastocyt uwalnia obok histaminy tryptazę, leukotrieny i prostaglandynę D2. Część objawów wynika z działania tych mediatorów, nie z działania samej aminy [22, 24].
Osobne hasło uzasadnia zakres oddziaływania tej jednej cząsteczki. Histamina jest pośrednikiem reakcji alergicznej, bodźcem dla wydzielania kwasu solnego w żołądku, przekaźnikiem układu czuwania i punktem uchwytu dwóch szeroko stosowanych klas leków [1, 4]. Rzadko która cząsteczka sygnałowa łączy w sobie funkcje tak odległe, a przy tym zachowuje jeden szlak syntezy i dwie drogi rozkładu.
1.2. Budowa i właściwości histaminy
Histamina jest cząsteczką małą i silnie polarną, zbudowaną z pierścienia imidazolowego połączonego z krótkim łańcuchem etyloaminowym. Grupa aminowa łańcucha bocznego przy odczynie krwi pozostaje sprotonowana, więc cząsteczka niesie ładunek dodatni i nie rozpuszcza się w błonach lipidowych [2]. Stąd bierze się rozstrzygająca cecha jej działania: histamina obwodowa nie przechodzi przez barierę krew-mózg i nie dociera do neuronów ośrodkowych. Pula mózgowa i pula tkankowa są rozdzielone, choć chemicznie chodzi o tę samą cząsteczkę.
Pierścień imidazolowy ma dwa atomy azotu o odmiennym położeniu, oznaczane jako tele i pros, i rozróżnienie to nie jest formalnością. Metylotransferaza histaminy przenosi grupę metylową wyłącznie na azot tele, co daje tele-metylohistaminę, główny metabolit ośrodkowy [11]. Ten sam pierścień decyduje o wiązaniu z kieszenią receptorową. Struktura receptora H1 pokazuje, że imidazol i grupa aminowa zajmują w niej dwa odrębne punkty zaczepienia [6]. Podobnie leki przeciwhistaminowe zajmują tę samą kieszeń, tyle że cząsteczką znacznie większą.
Ładunek dodatni ma ponadto następstwo dla sposobu magazynowania aminy. W ziarnistościach mastocyta histamina jest związana z ujemnie naładowaną heparyną i białkami proteoglikanowymi, co pozwala upakować ją w stężeniu nieosiągalnym w cytozolu [22]. Wyrzut ziarnistości do przestrzeni pozakomórkowej zmienia odczyn i skład jonowy otoczenia. Jony sodu wypierają aminę z kompleksu, a uwolniona histamina w ciągu sekund dociera do receptorów sąsiednich komórek [24].
1.3. Rys historyczny
Histamina weszła do farmakologii jako zanieczyszczenie. W 1910 roku Henry Dale i Patrick Laidlaw opisali substancję wyodrębnioną z wyciągu sporyszu [4]. Obniżała ona ciśnienie tętnicze, kurczyła oskrzela i wywoływała u zwierząt obraz odpowiadający wstrząsowi. Przed tym opisem związek uchodził za produkt grzyba, czyli za ciało obce organizmowi, a jego działanie za osobliwość toksykologiczną.
Rozstrzygnięcie przyszło siedemnaście lat później. W 1927 roku zespół, w którym pracowali Charles Best i Henry Dale, wyodrębnił histaminę ze świeżej wątroby i płuca [4]. Dowiodło to, że amina jest prawidłowym składnikiem tkanek ssaka. Tym samym obraz opisany w 1910 roku przestał być działaniem trucizny z grzyba. Stał się opisem tego, co robi własny mediator organizmu uwolniony w nadmiarze.
Kolejne rozstrzygnięcia dotyczyły receptorów i każde z nich wynikało z niepowodzenia leków. Ash i Schild stwierdzili w 1966 roku, że znane wówczas leki przeciwhistaminowe znoszą skurcz oskrzeli, ale nie zmieniają wydzielania kwasu solnego. Blokowany przez nie receptor nazwali H1. Zespół Jamesa Blacka wykazał w 1972 roku istnienie odrębnego receptora H2 i otrzymał pierwszego jego antagonistę, co otworzyło leczenie choroby wrzodowej [4]. Receptor H3 opisano w 1983 roku jako autoreceptor hamujący uwalnianie histaminy w mózgu. Receptor H4 sklonowano dopiero w 2000 roku, w komórkach układu odpornościowego [1, 4].
1.4. Synteza i źródła histaminy
Histamina powstaje w jednej reakcji: dekarboksylaza histydynowa odłącza grupę karboksylową od L-histydyny, a produktem jest amina i dwutlenek węgla [1]. Enzym ten działa z fosforanem pirydoksalu, czynną postacią witaminy B6, który wiąże aminokwas w przejściowy kompleks i dopiero w nim możliwe staje się odłączenie grupy karboksylowej [35]. Szlak nie ma odgałęzień ani drugiego enzymu zapasowego, więc aktywność dekarboksylazy histydynowej wyznacza całą pulę histaminy wytwarzanej przez organizm. Tłumaczy to, dlaczego myszy pozbawione genu tego enzymu nie mają histaminy własnej w ogóle i dlaczego stały się podstawowym modelem badania jej roli [33].
Wytwarzanie histaminy jest rozdzielone między kilka rodzajów komórek, a każdy z nich przechowuje ją inaczej. Mastocyty tkanek i bazofile krwi gromadzą aminę w ziarnistościach przez całe swoje życie i uwalniają ją wyrzutem po pobudzeniu [22]. Komórki enterochromatofilnopodobne błony śluzowej żołądka wydzielają histaminę w sposób ciągły i regulowany, w odpowiedzi na gastrynę [21]. Neurony jądra guzowo-suteczkowatego podwzgórza wytwarzają ją na bieżąco i wydzielają z zakończeń aksonalnych rozsianych po całym mózgowiu [2, 3]. Histaminę wytwarzają także limfocyty i komórki dendrytyczne. Ilości te są zbyt małe, by zmienić stężenie ogólnoustrojowe, wystarczają natomiast do przekazania sygnału w samej tkance [45].
Drugie źródło histaminy leży poza organizmem i dociera do niego przez przewód pokarmowy. Bakterie rozkładające białko przekształcają histydynę pokarmową w histaminę. Jej zawartość rośnie więc w produktach dojrzewających i fermentowanych oraz w rybach przechowywanych w niewłaściwej temperaturze [39]. Histaminę wytwarza również część bakterii jelitowych, co wiąże skład mikrobioty ze stężeniem tej aminy w świetle jelita [47]. Pula pokarmowa w warunkach prawidłowych nie przedostaje się do krążenia, ponieważ rozkłada ją oksydaza diaminowa błony śluzowej jelita.
2. Mechanizm działania i funkcje histaminy
2.1. Receptory i punkty uchwytu
Histamina działa wyłącznie przez receptory błonowe sprzężone z białkami G, a nie przez wnikanie do komórki [1, 5]. Cztery receptory oznaczone od H1 do H4 są wytworami odrębnych genów. Różnią się nie tylko umiejscowieniem, ale też powinowactwem do tej samej cząsteczki. Receptory H3 i H4 wiążą histaminę silniej niż H1 i H2, czyli odpowiadają na stężenia, przy których dwa pozostałe pozostają nieme [1]. Z tej różnicy wynika podział pracy. Receptory H3 i H4 odbierają sygnał toniczny, a H1 i H2 sygnał wyrzutowy, powstający po degranulacji. Receptory H1 i H2 występują przy tym obok siebie w ścianie naczynia, więc odpowiedź naczyniowa jest wypadkową obu [1, 45].
Cztery receptory różnią się białkiem sprzęgającym, rozmieszczeniem i skutkiem pobudzenia.
| Receptor | Białko G i przekaźnik wtórny | Główne umiejscowienie | Skutek pobudzenia |
| H1 | Gq/11, wzrost stężenia wapnia | śródbłonek, mięśnie gładkie, zakończenia czuciowe, neurony kory | rozszerzenie naczyń, obrzęk, świąd, skurcz oskrzeli, wzrost pobudzenia korowego |
| H2 | Gs, cykliczny AMP | komórki okładzinowe żołądka, mięśniówka naczyń, komórki odpornościowe | wydzielanie kwasu solnego, rozkurcz naczyń, tłumienie części odpowiedzi limfocytów |
| H3 | Gi/o, spadek stężenia cyklicznego AMP | zakończenia presynaptyczne neuronów histaminergicznych i innych | zahamowanie uwalniania histaminy oraz innych przekaźników |
| H4 | Gi/o, spadek stężenia cyklicznego AMP, wzrost stężenia wapnia | eozynofile, mastocyty, komórki dendrytyczne, limfocyty | napływ komórek odpornościowych do tkanki objętej zapaleniem |
Zestawienie pokazuje, dlaczego ta sama cząsteczka daje w jednym narządzie rozkurcz, a w drugim skurcz mięśniówki. O kierunku odpowiedzi rozstrzyga zatem nie histamina, tylko to, który receptor przeważa w danej tkance i jakie białko G jest z nim sprzężone [1, 5]. Receptor H3 ma przy tym cechę rzadką wśród receptorów metabotropowych. Pozostaje częściowo czynny bez związania liganda. Substancje znoszące tę czynność własną zwiększają więc uwalnianie histaminy, zamiast je hamować [1].
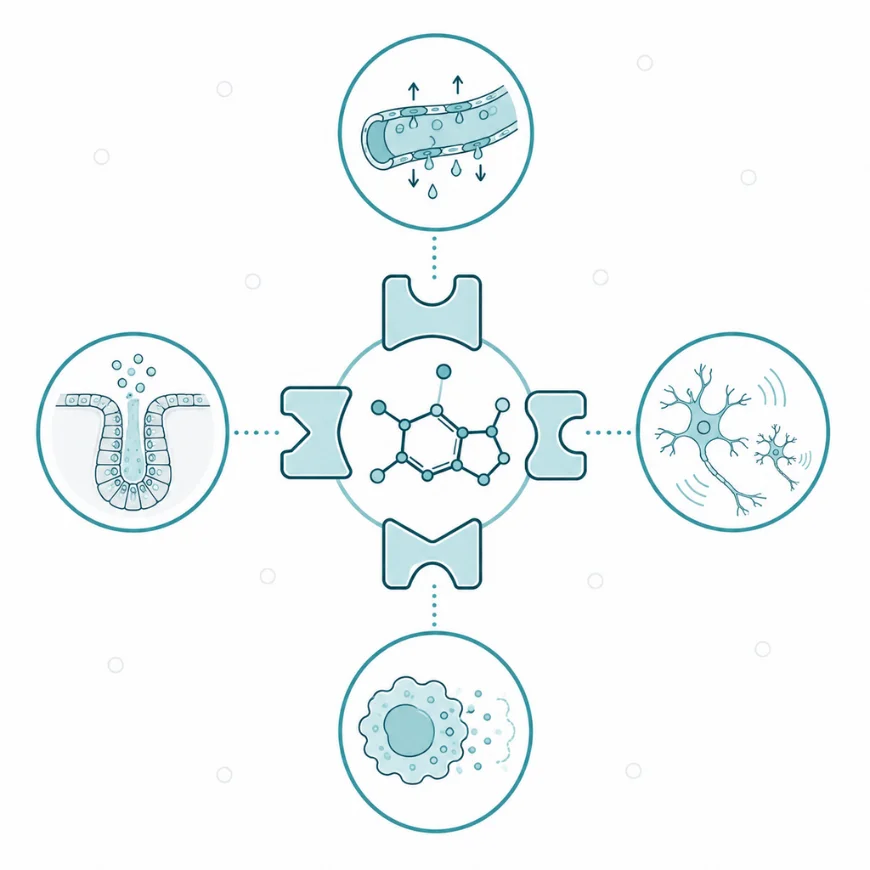
Cztery receptory histaminowe dają cztery różne skutki działania: naczyniowy, żołądkowy, ośrodkowy i immunologiczny. Leki przeciwhistaminowe działają na pierwszy z nich.
2.2. Kaskada sygnałowa
Droga sygnału zaczyna się przed pobudzeniem receptora, w komórce, która histaminę magazynuje. Aminę wytworzoną w cytozolu przenosi do wnętrza ziarnistości pęcherzykowy transporter monoamin drugiego typu, białko przenoszące monoaminy wbrew gradientowi stężeń kosztem gradientu protonowego. U myszy pozbawionych tego transportera mastocyty uwalniają z pojedynczej ziarnistości znacznie mniej histaminy [34]. Zapas powstaje więc tylko wtedy, gdy pęcherzyk jest ładowany aktywnie. Danych z badań u ludzi dotyczących tego etapu brakuje, a wnioskowanie opiera się na modelu zwierzęcym i na hodowlach komórkowych.
Pobudzenie receptora H1 uruchamia białko Gq, które aktywuje fosfolipazę C beta. Enzym ten rozcina lipid błonowy na trifosforan inozytolu i diacyloglicerol. Pierwszy z tych przekaźników wtórnych otwiera magazyny wapnia siateczki śródplazmatycznej [1, 5]. W komórce śródbłonka wzrost stężenia wapnia pobudza syntazę tlenku azotu, a powstający tlenek azotu rozkurcza mięśniówkę gładką sąsiedniego naczynia. Ten sam wzrost stężenia wapnia rozluźnia połączenia międzykomórkowe śródbłonka, przez co osocze przechodzi do tkanki. W doświadczeniu na zwierzętach rozdzielono oba składniki [27]. Obrzęk wymagał jednoczesnego zwiększenia przepływu i rozszczelnienia bariery śródbłonkowej, natomiast sam wzrost przepływu nie wystarczał.
Receptor H2 działa przeciwnie na poziomie przekaźnika wtórnego. Białko Gs pobudza cyklazę adenylanową i podnosi stężenie cyklicznego AMP. Kinaza białkowa A uruchamia wtedy wbudowanie pompy protonowej w błonę wydzielniczą komórki okładzinowej [20]. Receptory H3 i H4 sprzęgają się z białkami Gi/o i obniżają stężenie cyklicznego AMP. W zakończeniu presynaptycznym dodatkowym skutkiem jest zamknięcie kanałów wapniowych, przez co pęcherzyk nie zlewa się z błoną i uwalnianie przekaźnika słabnie [2].
Różnica w kaskadach wyjaśnia, dlaczego leki działające na jeden receptor nie znoszą objawów zależnych od drugiego. Antagonista H1 usuwa świąd i obrzęk, a nie zmienia wydzielania kwasu solnego, bo w komórce okładzinowej sygnał biegnie inną drogą wewnątrzkomórkową [1, 20].
2.3. Funkcje
2.3.1. Podtrzymywanie czuwania i pobudzenia korowego
Ośrodkową histaminę wytwarza jedno skupisko neuronów: jądro guzowo-suteczkowate w tylnej części podwzgórza, liczące u człowieka kilkadziesiąt tysięcy komórek [2, 3]. Ich aksony rozgałęziają się do kory, wzgórza, hipokampa i pnia mózgu, więc niewielka populacja zmienia stan czynnościowy całego mózgowia. Wyładowania tych neuronów są ściśle związane ze stanem czuwania. Występują przy otwartych oczach i uwadze, a przy sennym spokoju zwalniają. W czasie snu wolnofalowego i snu z szybkimi ruchami gałek ocznych ustają całkowicie [3, 7]. Wybiórcze zahamowanie tych komórek u zwierząt nie skraca czuwania, ale rozbija jego ciągłość na krótkie odcinki [9]. Układ histaminergiczny stabilizuje więc stan czuwania, zamiast go włączać.
Sterowanie tym układem odbywa się przez hamowanie z zewnątrz. Jądro przedwzrokowe brzuszno-boczne wysyła do jądra guzowo-suteczkowatego zakończenia hamujące, uwalniające kwas gamma-aminomasłowy i galaninę, i to połączenie tworzy przełącznik między snem a czuwaniem [8]. Drugim hamulcem jest adenozyna gromadząca się w czasie czuwania. Jej podanie do jądra guzowo-suteczkowatego u szczura hamuje neurony histaminergiczne przez receptory A1 i wydłuża sen wolnofalowy [10]. Histamina uczestniczy również w utrwalaniu śladu pamięciowego i w modulowaniu uwagi, przy czym dane pochodzą głównie z modeli gryzoni z wyłączonym genem dekarboksylazy [44]. Wpływ tego układu sięga dalej niż same ośrodki czuwania. U przytomnych myszy histamina spowalnia przetwarzanie sygnału już na poziomie siatkówki i ciała kolankowatego bocznego [48].
Ten sam układ uczestniczy w regulacji pobierania pokarmu. Histamina uwalniana w podwzgórzu i działająca przez receptor H1 zmniejsza u zwierząt ilość zjadanego pokarmu [46]. Przełożenie tej zależności na człowieka opiera się na obserwacjach dotyczących leków o powinowactwie do receptora H1, którym towarzyszy przyrost masy ciała, a nie na badaniach z randomizacją.
2.3.2. Pośredniczenie w reakcji nadwrażliwości natychmiastowej
Histamina jest pierwszym mediatorem uwalnianym w alergii typu natychmiastowego, a jej działanie wyznacza początkowy obraz reakcji. Stanem wyjściowym jest mastocyt tkankowy opłaszczony przeciwciałami klasy E, związanymi z receptorem o dużym powinowactwie na jego błonie. Bodźcem jest alergen, który łączy sąsiednie przeciwciała, a zbliżenie receptorów uruchamia kinazy błonowe i napływ wapnia [23, 24]. Ziarnistości zlewają się z błoną komórkową w ciągu sekund. Histamina pojawia się w tkance, zanim powstaną mediatory syntetyzowane od nowa, takie jak leukotrieny.
Dalszy przebieg wynika z rozmieszczenia receptorów. Pobudzenie H1 na zakończeniach czuciowych skóry daje świąd, na śródbłonku obrzęk i zaczerwienienie, a na mięśniówce oskrzeli skurcz [22]. Pobudzenie H2 w ścianie naczyń pogłębia rozkurcz, co przy uwolnieniu ogólnoustrojowym obniża ciśnienie tętnicze [24]. Receptor H4 nie daje objawu natychmiastowego, lecz kieruje do tkanki eozynofile i mastocyty, przedłużając stan zapalny o kolejne godziny [22]. Degranulacja nie zawsze zależy od przeciwciał. Mastocyt uwalnia histaminę także po pobudzeniu receptora MRGPRX2 przez leki, jady i neuropeptydy [23]. W rezultacie powstaje obraz kliniczny reakcji alergicznej bez udziału mechanizmu immunologicznego.
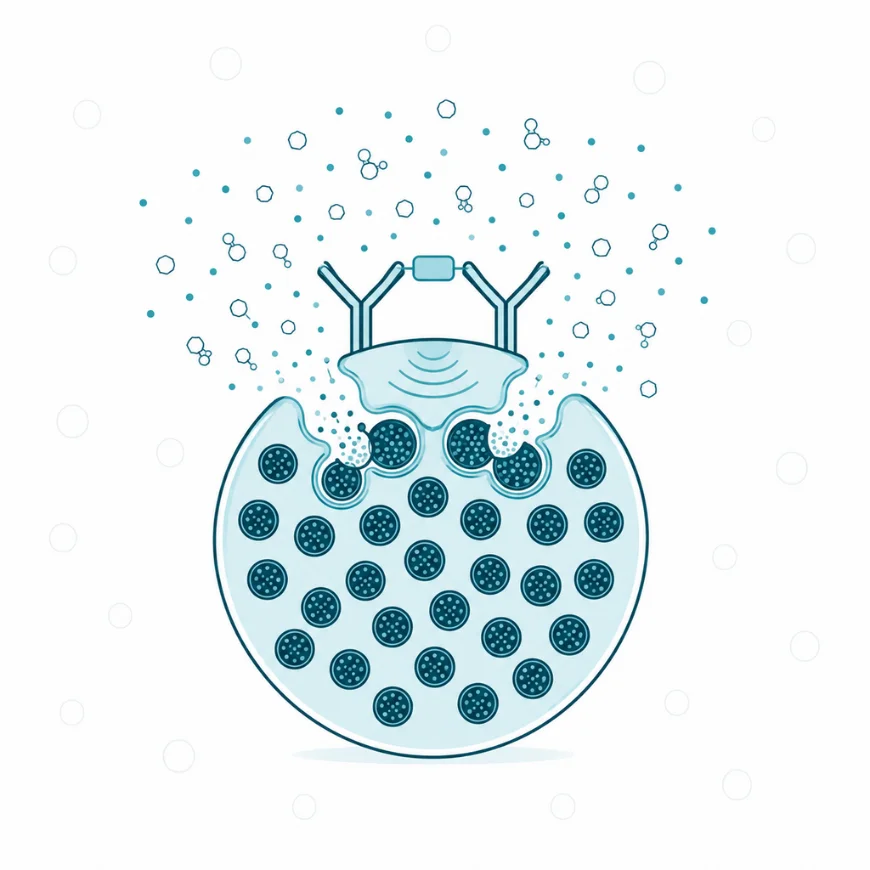
Alergen uruchamia reakcję tylko wtedy, gdy połączy dwa przeciwciała. Samo przyczepienie się do jednego z nich to za mało.
2.3.3. Pobudzanie wydzielania kwasu solnego
W żołądku histamina jest ogniwem pośrednim między sygnałem nerwowym i hormonalnym a komórką wydzielniczą. Gastryna uwalniana z komórek G odźwiernika nie działa wprost na komórkę okładzinową. Pobudza komórki enterochromatofilnopodobne dna żołądka, a te uwalniają histaminę w głąb blaszki właściwej [21]. Amina dociera do sąsiedniej komórki okładzinowej i pobudza jej receptory H2. Przez cykliczny AMP uruchamia wbudowanie pompy protonowej wymieniającej jony potasu na jony wodoru [20].
Histamina jest w tym układzie ogniwem wzmacniającym, a nie osobną drogą pobudzenia. Acetylocholina z nerwu błędnego i gastryna z krwi wywołują wydzielanie słabe, dopóki nie towarzyszy im histamina. Zablokowanie receptora H2 tłumi dlatego odpowiedź na wszystkie trzy bodźce naraz [20]. Hamulcem jest somatostatyna z komórek D, która wycisza zarówno uwalnianie gastryny, jak i wydzielanie histaminy z komórek enterochromatofilnopodobnych [21]. Utrata tego hamulca ma następstwo widoczne w klinice. Przewlekłe zniesienie kwaśności soku żołądkowego podnosi stężenie gastryny, a utrzymujący się nadmiar gastryny pobudza komórki wytwarzające histaminę do rozrostu [21].
2.3.4. Regulacja napięcia naczyń i szczelności śródbłonka
Histamina zmienia stan naczynia na dwa sposoby jednocześnie i oba dają się rozdzielić doświadczalnie. Przez receptory H1 śródbłonka uruchamia wytwarzanie tlenku azotu. Tlenek azotu rozkurcza mięśniówkę tętniczki i zwiększa dopływ krwi. Przez te same receptory histamina rozluźnia połączenia między komórkami śródbłonka żyłki, przez co osocze i białka przechodzą do tkanki [27]. Efektem widocznym jest odczyn złożony z zaczerwienienia, bąbla i otoczki rumieniowej, czyli reakcja stanowiąca podstawę skórnych testów alergicznych.
Skutki ogólnoustrojowe pojawiają się wtedy, gdy uwolnienie obejmuje mastocyty wielu tkanek naraz. Jednoczesny rozkurcz naczyń oporowych i ucieczka osocza poza łożysko obniżają objętość krwi krążącej i ciśnienie tętnicze, co jest mechanizmem wstrząsu anafilaktycznego [24, 25]. Do odruchowego przyspieszenia czynności serca dochodzi jeszcze bezpośrednie działanie histaminy na receptory H2 mięśnia sercowego [45]. Ten sam wpływ na drobne naczynia mózgowia rozważa się jako ogniwo napadu migreny. Podanie histaminy wywołuje ból głowy o cechach migrenowych u osób podatnych [43].
2.4. Regulacja wydzielania histaminy i zmienność dobowa
Uwalnianie histaminy podlega regulacji odrębnej w każdym z trzech miejsc jej wytwarzania. W mózgu podstawowym mechanizmem jest ujemne sprzężenie zwrotne przez receptor H3. Histamina uwolniona z zakończenia wiąże się z autoreceptorem tego samego neuronu i hamuje dalsze wydzielanie oraz syntezę [1, 2]. Ten sam receptor występuje na zakończeniach neuronów noradrenergicznych, serotoninergicznych i cholinergicznych. Histamina reguluje więc nie tylko własne uwalnianie, ale i uwalnianie innych przekaźników pobudzających [2].
Zmienność dobowa wynika wprost z przynależności układu do mechanizmów czuwania. Neurony jądra guzowo-suteczkowatego są czynne w dzień, milkną przed zaśnięciem i pozostają nieme przez cały sen. Stężenie histaminy w ośrodkowym układzie nerwowym zmienia się przez to w rytmie dobowym o dużej amplitudzie [3, 7]. Rytm ten nie jest ustalany wewnątrz jądra, lecz narzucany przez hamowanie z jądra przedwzrokowego brzuszno-bocznego i przez narastanie adenozyny w czasie czuwania [8, 10]. Opis samego przełącznika snu i czuwania oraz jego zegara należy do hasła rytm snu i czuwania.
Na obwodzie regulacja ma inny charakter, bo dotyczy zapasu zgromadzonego wcześniej. Mastocyt uwalnia histaminę po związaniu alergenu przez przeciwciała klasy E oraz po pobudzeniu receptora MRGPRX2 przez leki i neuropeptydy. Degranulację wywołują też bodźce fizyczne: ucisk, zimno i wysiłek [23, 28]. Komórki enterochromatofilnopodobne żołądka wydzielają histaminę w rytmie posiłków, pod kontrolą gastryny i somatostatyny [21]. Wspólną cechą obu obwodowych źródeł jest to, że stężenie aminy w tkance zmienia się skokowo i wraca do wartości wyjściowej w ciągu minut.
2.5. Inaktywacja i wydalanie histaminy
Histamina nie jest odzyskiwana przez wychwyt zwrotny do zakończenia nerwowego, jak dzieje się to w przypadku amin katecholowych. Kończy działanie wyłącznie przez rozkład enzymatyczny, a rozkład prowadzą dwa niezależne enzymy o odrębnym umiejscowieniu [1, 12]. Metylotransferaza histaminy działa wewnątrz komórki i przenosi grupę metylową z S-adenozylometioniny na azot pierścienia. Enzym ten występuje w ośrodkowym układzie nerwowym, w oskrzelach i w nerce. Powstającą tele-metylohistaminę rozkłada dalej monoaminooksydaza typu B, do kwasu tele-metyloimidazolooctowego [11].
Oksydaza diaminowa działa odwrotnie: jest wydzielana poza komórkę i rozkłada histaminę, zanim ta dotrze do krążenia. Największą aktywność ma w błonie śluzowej jelita cienkiego, w łożysku i w nerce. Jej produktem jest aldehyd imidazolooctowy, utleniany następnie do kwasu imidazolooctowego [12, 14]. Enzym zawiera jon miedzi i wytworzoną z własnej reszty tyrozynowej grupę topachinonową, a oba te elementy są konieczne do przeprowadzenia reakcji utlenienia [36]. Stąd bierze się podział ról: ośrodkowy układ nerwowy rozkłada histaminę przez metylację, a bariera jelitowa przez utlenianie.
Podział ten ma następstwo praktyczne. Ubytek aktywności metylotransferazy zmienia przekaźnictwo w mózgu, a ubytek aktywności oksydazy diaminowej przepuszcza do krążenia histaminę pochodzącą z pokarmu [11, 12]. Wariant genu metylotransferazy prowadzący do zamiany treoniny na izoleucynę w pozycji 105 obniża aktywność i trwałość enzymu [11]. Wskutek tego u nosicieli histamina rozkłada się w tkance mózgowej wolniej.
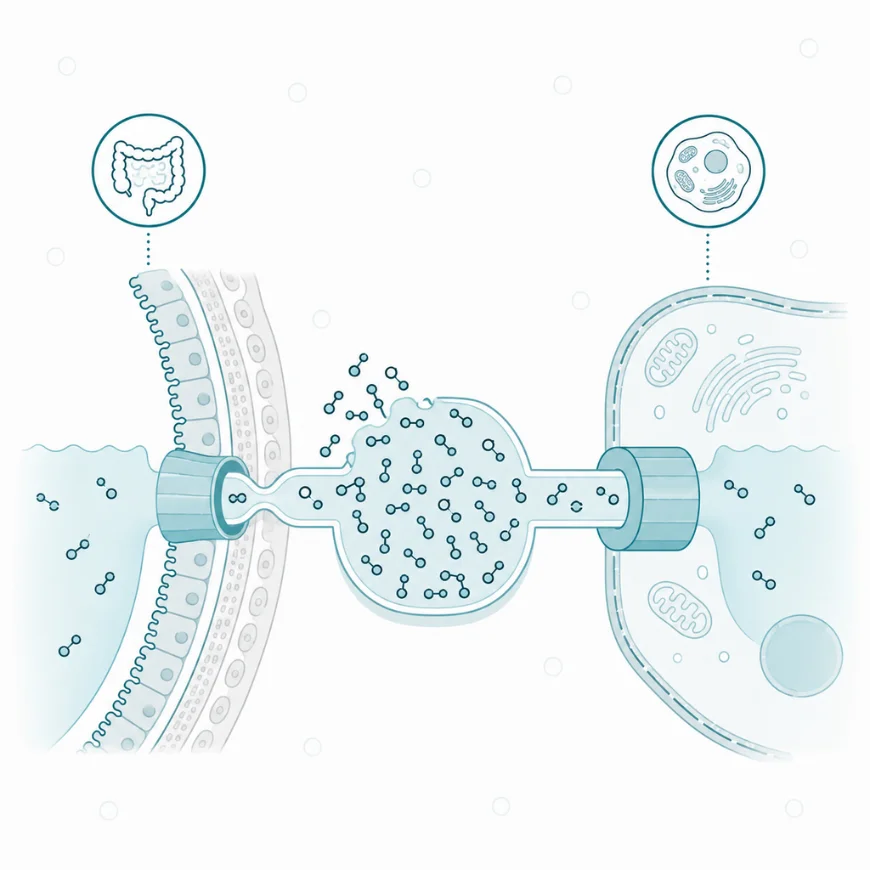
Histamina jest rozkładana dwiema drogami — jelitową i wewnątrzkomórkową. Ograniczenie pierwszej z nich leży u podstaw pojęcia nietolerancji histaminy.
3. Zaburzenia i modyfikacja
3.1. Niedobór histaminy
Niedobór histaminy przybiera dwie odrębne postacie i tylko pierwsza z nich ma pewne podłoże molekularne. Postać ośrodkowa polega na upośledzeniu syntezy. W rodzinie z mutacją skracającą łańcuch dekarboksylazy histydynowej tiki i rozpoznanie zespołu Tourette’a miał każdy nosiciel [32]. Myszy z wyłączonym genem tego enzymu powtarzają obraz choroby, w tym nasilone stereotypie i zaburzone hamowanie przedimpulsowe. Podanie histaminy do mózgu te objawy znosi [33]. Mechanizm wiąże histaminę z dopaminą. Jej brak podnosi stężenie dopaminy w prążkowiu i zmienia wiązanie receptorów D2 i D3, co stwierdzono u zwierząt i u nosicieli mutacji [33].
Postać obwodowa polega na niedostatecznym rozkładzie, nie na niedostatecznej syntezie. Obniżona aktywność oksydazy diaminowej jelita przepuszcza do krążenia histaminę pokarmową, a zespół objawów przypisywany temu zjawisku określa się mianem nietolerancji histaminy [12, 13]. Zgłaszane dolegliwości obejmują biegunkę, wzdęcia, zaczerwienienie skóry, pokrzywkę, katar i ból głowy. Te same objawy występują ponadto w zespole jelita drażliwego i w alergii pokarmowej [13, 18]. Aktywność enzymu obniżają choroby zapalne jelita, alkohol i niektóre leki hamujące go bezpośrednio [14, 18].
Siła dowodów po stronie obwodowej pozostaje wyraźnie mniejsza. Przeglądy piśmiennictwa zgodnie zaznaczają brak kryteriów rozpoznania o potwierdzonej trafności [12, 18]. Rozpoznanie opiera się zatem na wykluczeniu innych przyczyn i na odpowiedzi na ograniczenie histaminy w diecie. Podawane szacunki rozpowszechnienia nie pochodzą z badań populacyjnych, tylko z serii chorych kierowanych do poradni, co zawyża udział kobiet w średnim wieku [18].
3.2. Nadmiar histaminy
Nadmiar histaminy powstaje przez gwałtowne uwolnienie zapasu, przez zwiększenie liczby komórek magazynujących albo przez podaż z zewnątrz. Uwolnienie gwałtowne zachodzi w reakcji anafilaktycznej. Obraz obejmuje pokrzywkę, obrzęk, skurcz oskrzeli i spadek ciśnienia tętniczego, a rozpoznanie opiera się na nim, nie na oznaczeniu mediatora [25]. Mechanizm nie zawsze wymaga przeciwciał klasy E, ponieważ tę samą degranulację wywołują dopełniacz, leki działające przez receptor MRGPRX2 oraz środki cieniujące [23].
Zwiększenie liczby komórek magazynujących występuje w mastocytozie układowej, chorobie klonalnej wywołanej mutacją kinazy KIT. Nadmiar mastocytów w szpiku, skórze i przewodzie pokarmowym daje objawy napadowe i stale podwyższone stężenie tryptazy. Hamowanie zmutowanej kinazy zmniejszało nasilenie objawów w badaniu z randomizacją [42]. Odrębną przyczyną jest dziedziczna alfa-tryptazemia, czyli zwielokrotnienie genu tryptazy alfa. Podnosi ona stężenie tryptazy podstawowej bez rozrostu komórek i nasila objawy po uwolnieniu mediatorów [41].
Podaż z zewnątrz daje obraz najbardziej zbliżony do alergii, choć mechanizmu immunologicznego w nim nie ma. Zatrucie histaminowe po rybach, nazywane zatruciem skombrotoksycznym, powstaje wtedy, gdy bakterie przekształcą histydynę mięsa ryby w histaminę przed spożyciem [39]. Objawy pojawiają się w ciągu kilkudziesięciu minut i obejmują zaczerwienienie twarzy, ból głowy, kołatanie serca i biegunkę. Od reakcji alergicznej odróżnia je brak przeciwciał swoistych oraz zachorowanie wszystkich osób, które zjadły tę samą porcję [40].
3.3. Rola histaminy w patogenezie chorób
Udział histaminy w chorobach rozkłada się na trzy wzorce: nadmierne uwalnianie, nieprawidłowy rozkład i utratę równowagi między pobudzeniem a hamowaniem w mózgu. Pierwszy wzorzec obejmuje choroby alergiczne. W alergicznym nieżycie nosa histamina uwalniana po kontakcie z alergenem wywołuje kichanie, świąd i wysięk. Leki blokujące receptor H1 znoszą właśnie te objawy i pozostawiają zatkanie nosa, zależne od innych mediatorów [22, 29]. W pokrzywce przewlekłej mastocyt skóry uwalnia histaminę bez uchwytnego alergenu, często pod wpływem autoprzeciwciał pobudzających jego receptor [28]. Bąble pojawiają się wskutek tego codziennie przez wiele miesięcy.
Drugi wzorzec dotyczy przewodu pokarmowego. W chorobie wrzodowej i w chorobie refluksowej histamina jest ogniwem wzmacniającym wydzielanie kwasu. Antagoniści receptora H2 obniżają dlatego kwaśność soku żołądkowego niezależnie od przyczyny wyjściowej [20]. W nieswoistych chorobach zapalnych jelit opisano zaburzenie przemiany histaminy [47]. Zmieniony skład mikrobioty zwiększa jej wytwarzanie w świetle jelita, a zapalenie błony śluzowej obniża aktywność oksydazy diaminowej. Oba ogniwa działają w tę samą stronę. Zależność ta jest dobrze udokumentowana w modelach doświadczalnych, a u ludzi opiera się na badaniach obserwacyjnych.
Trzeci wzorzec obejmuje choroby ośrodkowego układu nerwowego. W zespole Tourette’a niedobór syntezy histaminy odhamowuje przekaźnictwo dopaminowe prążkowia [32, 33]. W narkolepsji z katapleksją pierwotną przyczyną jest ubytek neuronów oreksynowych. Mimo to dostępny farmakologicznie pozostaje układ histaminergiczny, a jego pobudzenie zmniejsza senność dzienną [31]. Histaminę wiąże się również z napadem migreny. Jej wlew wywołuje ból głowy o cechach migrenowych, a osoby chore reagują na niego silniej niż zdrowe [43]. Opis samej narkolepsji jako jednostki chorobowej należy do hasła odrębnego.
3.4. Modyfikacja behawioralna i dietetyczna
Wpływ na stężenie histaminy przez zachowanie i dietę jest możliwy wyłącznie po stronie obwodowej. Pula ośrodkowa powstaje na miejscu i jest oddzielona barierą krew-mózg [2]. Punktem uchwytu jest podaż pokarmowa oraz sprawność jej rozkładu w jelicie. Największe ilości histaminy zawierają sery i wędliny dojrzewające, ryby przechowywane bez chłodzenia, kiszonki, wino i piwo. Łączy je rozkład białka prowadzony przez bakterie [12, 19].
Ograniczenie podaży w diecie badano w niewielkich próbach o krótkim czasie obserwacji. Jedną z nich było badanie z randomizacją i układem naprzemiennym u osiemnastu chorych z rozpoznaną nietolerancją histaminy [15]. W okresie diety ubogiej w histaminę dolegliwości ze strony przewodu pokarmowego i skóry zmniejszyły się. Aktywność oksydazy diaminowej w surowicy nie odróżniała jednak tej diety od zwykłej. Objawy reagują zatem na zmianę podaży, a osoczowy wskaźnik enzymatyczny tej zmiany nie oddaje. Przeglądy oceniające postępowanie dietetyczne opisują ten sam schemat [19]. Wskazują przy tym na brak badań z dłuższą obserwacją oraz na ryzyko trwałego zubożenia diety przy przedłużaniu fazy eliminacyjnej.
Osobnym czynnikiem jest alkohol, który działa dwiema drogami naraz. Napoje fermentowane same zawierają histaminę, a etanol i aldehyd octowy hamują aktywność oksydazy diaminowej [14, 18]. Amina pozostaje wskutek tego w krążeniu dłużej. Listy tak zwanych uwalniaczy histaminy wymieniają truskawki, owoce cytrusowe i czekoladę. Ich podstawa doświadczalna jest znacznie słabsza niż dane o zawartości histaminy w produktach fermentowanych [18].
3.5. Wsparcie suplementacyjne
Substancje z katalogu platformy mają punkt uchwytu w dwóch miejscach szlaku histaminowego: w uwalnianiu aminy z ziarnistości mastocyta oraz w jej rozkładzie enzymatycznym. Zestawienie obejmuje wyłącznie te, dla których opisano mechanizm działania na samą histaminę, wraz z jawnym oznaczeniem poziomu danych.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Kwercetyna | W hodowli ludzkich mastocytów hamuje wyrzut ziarnistości i uwalnianie histaminy silniej niż kromoglikan, obniżając napływ wapnia do cytozolu [37] | ↓ | C |
| Kwas askorbinowy | W modelu uczulenia u myszy obniża stężenie histaminy w osoczu, a w hodowli komórek tucznych hamuje degranulację [38] | ↓ | C |
| Miedź | Jest jonem katalitycznym oksydazy diaminowej, enzymu rozkładającego histaminę w jelicie i łożysku [14, 36] | ↓ | C |
| Pirydoksyna | W postaci fosforanu pirydoksalu jest kofaktorem dekarboksylazy histydynowej, czyli enzymu wytwarzającego histaminę [35] | ↑ | C |
Z zestawienia wynikają dwa wnioski. Żadna z wymienionych substancji nie ma badania z randomizacją u ludzi z punktem końcowym w postaci stężenia histaminy. Wszystkie wiersze opierają się na danych z hodowli komórkowych i modeli zwierzęcych. Wiersz dotyczący pirydoksyny wskazuje przy tym kierunek przeciwny do deklaracji marketingowych. Witamina B6 jest kofaktorem enzymu wytwarzającego histaminę, a nie enzymu, który ją rozkłada [35]. Szczegóły dawkowania, łączenia i interakcji zawierają karty substancji w dziale Suplementy.
4. Uwagi praktyczne
4.1. Jak to zbadać
Oznaczenie samej histaminy jest możliwe, ale jej okno pomiarowe jest wąskie. Po degranulacji stężenie w osoczu rośnie w ciągu kilku minut i po kilkudziesięciu minutach wraca do wartości wyjściowej. Próbka pobrana po przyjeździe do szpitala zwykle nic już nie pokazuje [25, 26]. Wynik zaniża dodatkowo uwalnianie histaminy z bazofilów w samej probówce, jeśli krew stoi przed odwirowaniem. Z tego powodu w diagnostyce reakcji anafilaktycznej oznacza się tryptazę, uwalnianą z tych samych ziarnistości i utrzymującą się dłużej. Uzgodnione kryterium ostrej aktywacji mastocytów porównuje wartość szczytową z wartością podstawową tej samej osoby. Rozpoznanie wspiera wzrost przekraczający 1,2-krotność wartości podstawowej powiększoną o 2 ng/ml [26]. Stężenie prawidłowe nie wyklucza przy tym reakcji anafilaktycznej, ponieważ tryptaza nie rośnie u wszystkich chorych [26].
W moczu oznacza się metylohistaminę, czyli produkt rozkładu. Pomiar uśrednia wydzielanie z całej doby i omija problem krótkiego czasu życia aminy w osoczu [12]. Aktywność oksydazy diaminowej w surowicy jest testem rozpowszechnionym w kontekście nietolerancji histaminy, a jego wartość rozstrzygająca pozostaje mała. Sprawdzono to u 249 chorych z podejrzeniem nietolerancji i u 50 osób zdrowych [16]. Próg 3 U/ml dawał swoistość 100% przy czułości 2%. Próg 10 U/ml dawał natomiast czułość 71% przy swoistości 61% wobec chorych o małym prawdopodobieństwie rozpoznania. W kohorcie retrospektywnej nasilenie objawów odpowiadało przedziałom aktywności enzymu, a największą poprawę po zastosowanym postępowaniu mieli chorzy z wartościami pośrednimi [17]. Oznaczenie jest zatem wskaźnikiem pomocniczym, nie kryterium. Stężenie tryptazy podstawowej trwale podwyższone kieruje natomiast rozpoznanie w stronę mastocytozy albo dziedzicznej alfa-tryptazemii i wymaga badań genetycznych [41, 42].
4.2. Na co zwrócić uwagę
Pierwsze nieporozumienie dotyczy nazwy całej klasy leków. Określenie „lek przeciwhistaminowy” odnosi się w mowie potocznej wyłącznie do antagonistów receptora H1. Tymczasem antagoniści receptora H2 znoszą działanie tej samej cząsteczki, tylko w komórce okładzinowej żołądka [1, 20]. Rozróżnienie to ma następstwo kliniczne: preparat stosowany w pokrzywce nie zmieni wydzielania kwasu solnego, a preparat stosowany w refluksie nie zniesie świądu.
Drugie nieporozumienie dotyczy senności po lekach przeciwalergicznych. Nie jest ona działaniem przypadkowym ani skutkiem domieszki. Powstaje przez zajęcie receptorów H1 w mózgu, czyli tego samego punktu uchwytu, który znosi objawy w skórze i błonie śluzowej [29]. Starsze leki przenikają przez barierę krew-mózg, bo są cząsteczkami lipofilnymi. Nowsze pozostają w krążeniu, ponieważ są słabiej lipofilne, a glikoproteina P aktywnie usuwa je z mózgu. Przegląd systematyczny badań nad feksofenadyną opisuje zajęcie receptorów mózgowych nieodróżnialne od placebo w obrazowaniu, przy zachowanym działaniu obwodowym [30]. Drugim następstwem tego samego mechanizmu jest sen płytszy i gorsza sprawność następnego dnia po lekach starszej generacji [29].
Trzecie nieporozumienie dotyczy oznaczania oksydazy diaminowej jako testu rozstrzygającego o nietolerancji histaminy. Czułość przy niskim progu odcięcia wynosi kilka procent [16]. Rozpoznanie opiera się na obrazie klinicznym i na obserwacji po ograniczeniu podaży, nie na jednym wyniku [18]. Odrębnym uproszczeniem jest łączenie histaminy pokarmowej z działaniem na mózg. Amina pochodząca z pokarmu nie przechodzi przez barierę krew-mózg nawet przy nadmiarze w krążeniu [2]. Opisywane dolegliwości ze strony głowy wynikają z działania naczyniowego i z pobudzenia zakończeń czuciowych, a nie z dopływu histaminy do neuronów [43].
Ograniczenia dowodowe wymagają jawnego zaznaczenia w trzech miejscach. Znaczna część wiedzy o ośrodkowej roli histaminy pochodzi z gryzoni z wyłączonym genem dekarboksylazy histydynowej oraz z rejestracji pojedynczych neuronów u zwierząt [33, 44]. Przełożenie na człowieka opiera się na obrazowaniu i na obserwacjach farmakologicznych [3]. Receptor H4 opisano głównie w układach doświadczalnych, a substancje działające na niego nie weszły dotąd do praktyki klinicznej [1, 22]. Badania nad dietą ubogą w histaminę obejmują kilkanaście do kilkudziesięciu osób, trwają tygodnie i opierają się na objawach zgłaszanych przez chorych [15, 19]. Wobec wniosków formułowanych w piśmiennictwie popularnym jest to zatem podstawa słaba. Treść hasła ma charakter edukacyjny i nie zastępuje porady lekarskiej.