
1. Charakterystyka
1.1. Definicja i nazewnictwo
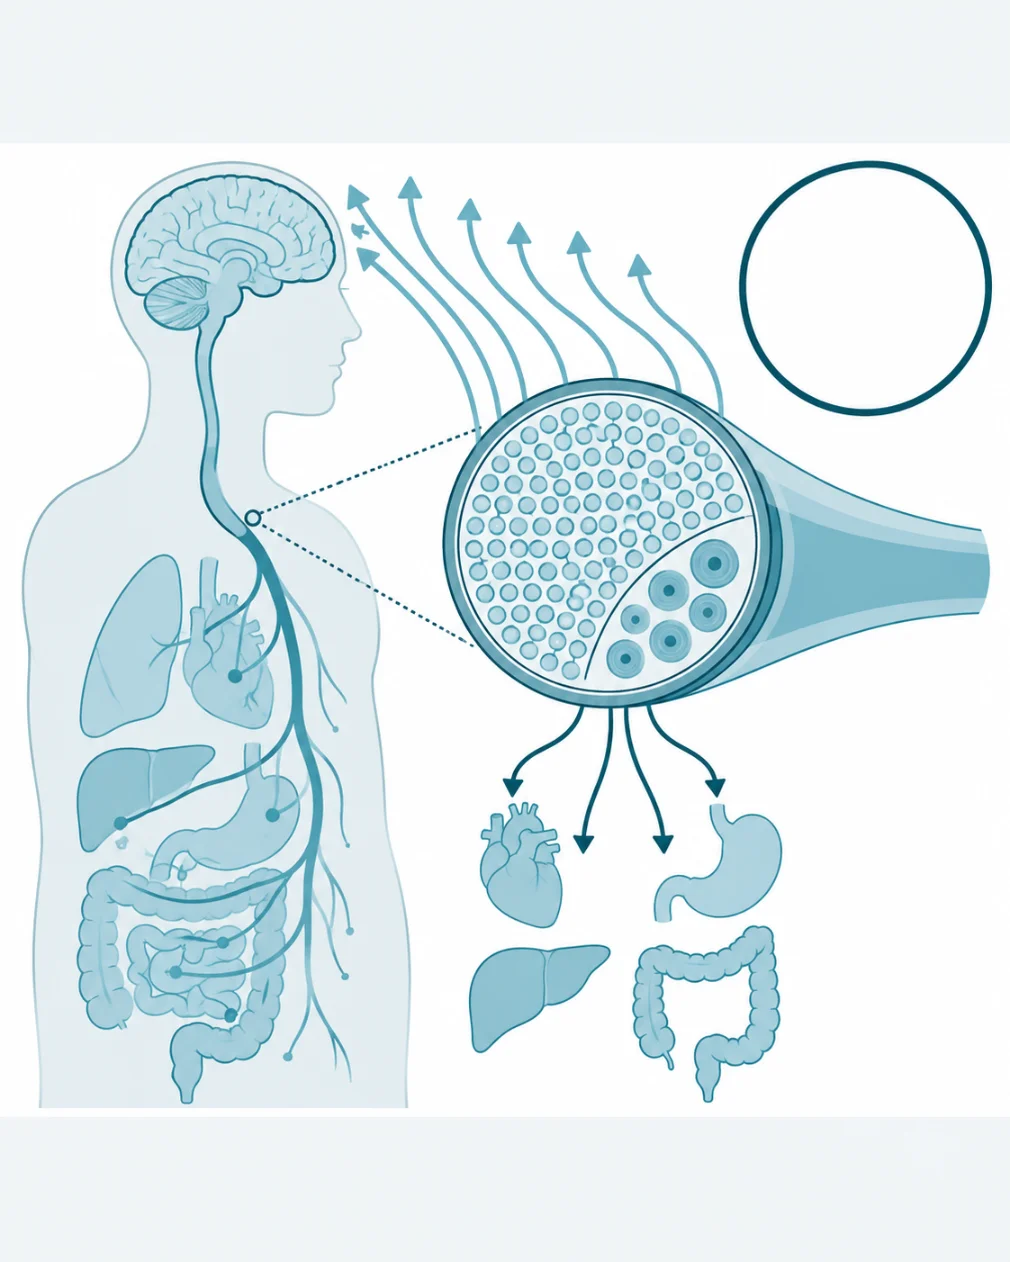
Nerw błędny (łac. nervus vagus) to dziesiąty nerw czaszkowy, najdłuższy spośród nerwów czaszkowych, którego obszar unerwienia leży w większej części poza głową, w szyi, klatce piersiowej i jamie brzusznej [1]. Łacińska nazwa vagus, czyli wędrowny, oddaje właśnie ten rozległy przebieg. Nerw błędny jest nerwem mieszanym, bo w jednym pniu biegną włókna ruchowe, przywspółczulne i czuciowe. Stanowi główną drogę przywspółczulnej części autonomicznego układu nerwowego, przez którą mózg wpływa na serce, płuca i przewód pokarmowy [2].
W klasyfikacji anatomicznej nerw błędny należy do nerwów czaszkowych wychodzących z rdzenia przedłużonego, a w klasyfikacji czynnościowej do nerwów układu autonomicznego. Mimo tej przynależności większość jego włókien przewodzi informację w przeciwnym kierunku, od narządów do mózgu [1]. Autorzy pracy eksperymentalnej na szczurach i myszach przyjmują jako wiedzę wyjściową, bez wskazania gatunku, że niezmielinizowane włókna czuciowe typu C stanowią ponad 80% włókien nerwu [3]. Proporcje dla człowieka ustala się dopiero w badaniach mikroskopii elektronowej nerwów pobranych od zmarłych dawców narządów [4].
Nerw błędny bywa utożsamiany z całym układem przywspółczulnym, a to zbyt szerokie ujęcie. Włókna przywspółczulne biegną także w innych nerwach czaszkowych i w nerwach krzyżowych, a zasięg nerwu błędnego w przewodzie pokarmowym kończy się na proksymalnej części okrężnicy [5]. Popularne określenie „tonus nerwu błędnego” nie opisuje stanu samego nerwu. W badaniach psychofizjologicznych oznacza udział układu przywspółczulnego w regulacji pracy serca, szacowany pośrednio ze zmienności rytmu serca [6]. Od sąsiednich nerwów językowo-gardłowego i dodatkowego nerw błędny odróżnia zakres unerwienia, chociaż wszystkie trzy opuszczają czaszkę przez ten sam otwór szyjny.
Zakres pojęcia obejmuje jądra nerwu w rdzeniu przedłużonym, dwa zwoje czuciowe, pień nerwu z gałęziami oraz sploty i pnie błędne w klatce piersiowej i jamie brzusznej. Ośrodki, do których sygnał czuciowy dociera dalej, nie są częścią nerwu, choć współtworzą jego odruchy. Nerw błędny łączy mózg z sercem, płucami i przewodem pokarmowym, a jego stymulacja elektryczna jest metodą leczenia padaczki lekoopornej, która wykazała skuteczność także w depresji lekoopornej [1].
1.2. Położenie i granice
Nerw błędny wychodzi z bocznej powierzchni rdzenia przedłużonego szeregiem korzonków, leżących w bruździe za oliwką. Korzonki łączą się w pień, który opuszcza jamę czaszki przez otwór szyjny, razem z nerwem językowo-gardłowym i nerwem dodatkowym. W otworze szyjnym i tuż pod nim leżą oba zwoje czuciowe nerwu.
Na szyi nerw błędny biegnie w pochewce szyjnej, między żyłą szyjną wewnętrzną a tętnicą szyjną wewnętrzną, a niżej tętnicą szyjną wspólną. Na tym odcinku jest dostępny chirurgicznie, dlatego właśnie tu zakłada się elektrody wszczepialnych stymulatorów [1]. U świń włókna czuciowe i ruchowe tworzą w szyjnym odcinku pnia osobne pęczki w pobliżu zwoju dolnego i łączą się niżej, a pęczki związane z krtanią, sercem i płucami rozdzielają się dopiero w dolnej części szyi [7]. Wynik ten dotyczy zwierząt, a u człowieka układ pęczków jest dopiero mapowany [4].
W klatce piersiowej oba nerwy wchodzą do śródpiersia, przy czym prawy biegnie przed tętnicą podobojczykową, a lewy przed łukiem aorty. Za korzeniami płuc oddają gałęzie płucne i rozpadają się na splot przełykowy, otaczający przełyk. Ze splotu powstają dwa pnie błędne, przedni i tylny, które przechodzą przez rozwór przełykowy przepony do jamy brzusznej. Pień przedni zawiera głównie włókna lewego nerwu, a pień tylny prawego, co wynika z obrotu żołądka w rozwoju zarodkowym.
Granice nerwu wyznacza więc z jednej strony wyjście z rdzenia przedłużonego, z drugiej zakończenia w ścianach narządów jamy brzusznej, sięgające proksymalnej części okrężnicy [5]. Ta rozpiętość tłumaczy, dlaczego uszkodzenie na różnych poziomach daje odmienne objawy.
1.3. Jądra, zwoje i skład włókien
Nerw błędny ma w pniu mózgu cztery jądra, z których dwa wysyłają włókna, a dwa je odbierają. Podział ten odpowiada trzem rodzajom włókien w pniu nerwu: ruchowym, przywspółczulnym i czuciowym. Jądra obsługują w większości różne rodzaje sygnału, dlatego ogniskowe uszkodzenie pnia mózgu może znieść jedną czynność nerwu, a oszczędzić inne.
Jądro dwuznaczne zawiera neurony ruchowe, których aksony unerwiają mięśnie poprzecznie prążkowane gardła, krtani i górnej części przełyku [8]. W jądrze dwuznacznym leżą też neurony przedzwojowe przywspółczulne zaopatrujące serce, a u kota mieści się w nim 80% takich neuronów [54]. Jądro grzbietowe ruchowe nerwu błędnego zawiera neurony przedzwojowe przywspółczulne. Ich aksony kończą się w zwojach leżących w ścianach narządów, a stamtąd neurony zazwojowe unerwiają mięśnie gładkie i gruczoły [8, 9]. Włókna eferentne przywspółczulne tworzą więc łańcuch dwóch neuronów, przedzwojowego i zazwojowego [5].
Włókna czuciowe mają ciała komórek w dwóch zwojach. Zwój górny, zwany szyjnym, leży w otworze szyjnym, a zwój dolny, zwany węzłowym, tuż pod nim. Neurony czuciowe są pseudojednobiegunowe, czyli jedna odnoga ich aksonu kończy się w narządzie, a druga w pniu mózgu [5]. Sygnał z narządów wewnętrznych trafia do jądra pasma samotnego (łac. nucleus tractus solitarii), czyli głównej stacji przekaźnikowej czucia trzewnego, gdzie przekaźnikiem aferentów jest najpewniej głównie glutaminian [10]. Czucie skórne z ucha dociera natomiast do jądra rdzeniowego nerwu trójdzielnego, które u ludzi aktywowało się przy pobudzaniu gałęzi usznej [11].
Cztery jądra nerwu błędnego różnią się rodzajem włókien, kierunkiem przewodzenia i celem [8, 10, 11, 54].
| Jądro | Rodzaj włókien | Kierunek | Cel lub źródło sygnału |
| dwuznaczne | ruchowe skrzelopochodne, przywspółczulne sercowe | eferentny | mięśnie gardła, krtani, górnego przełyku, serce |
| grzbietowe ruchowe | przywspółczulne przedzwojowe | eferentny | zwoje w ścianach narządów klatki i brzucha |
| pasma samotnego | czuciowe trzewne | aferentny | serce, naczynia, płuca, przewód pokarmowy |
| rdzeniowe nerwu trójdzielnego | czuciowe somatyczne | aferentny | skóra małżowiny usznej i przewodu słuchowego |
W ludzkim nerwie błędnym, zarówno w odcinku szyjnym, jak i pod przeponą, występują obok siebie włókna zmielinizowane i niezmielinizowane, co potwierdziła mikroskopia elektronowa tkanek od zmarłych dawców [4]. Z tej budowy wynika, że pojedynczy pień nerwu przewodzi równocześnie szybkie sygnały ruchowe do krtani i powolne sygnały czuciowe z trzewi.
1.4. Rozwój
Nerw błędny powstaje w rozwoju zarodkowym jako nerw łuków gardłowych, co wyjaśnia, dlaczego unerwia mięśnie gardła i krtani, a nie mięśnie tułowia. Jego neurony czuciowe mają dwa odrębne źródła zarodkowe, które nadają im różne właściwości.
Neurony zwoju węzłowego wywodzą się z plakod nadskrzelowych, czyli pogrubień nabłonka głowy zarodka. Neurony zwoju szyjnego pochodzą natomiast z grzebienia nerwowego [12], tego samego źródła, z którego powstają neurony czuciowe zwojów rdzeniowych. U myszy, szczurów i świnek morskich oba typy neuronów czuciowych z włóknami typu C różnią się wrażliwością na adenozynotrifosforan, zależnością od czynników neurotroficznych i wytwarzaniem neuropeptydów [12]. W badaniu na makakach te same różnice w ekspresji genów utrzymywały się u naczelnych [12].
U myszy zarówno neurony pochodzące z plakod, jak i z grzebienia nerwowego unerwiają przełyk, przy czym te drugie przypominają profilem receptorów czynników neurotroficznych neurony bólowe zwojów rdzeniowych [13]. Pochodzenie zarodkowe wiąże się więc z tym, na jakie bodźce dany neuron czuciowy nerwu błędnego reaguje. Dane te pochodzą ze zwierząt, a u człowieka podział neuronów według pochodzenia nie został jeszcze opisany z podobną szczegółowością.
1.5. Rys historyczny
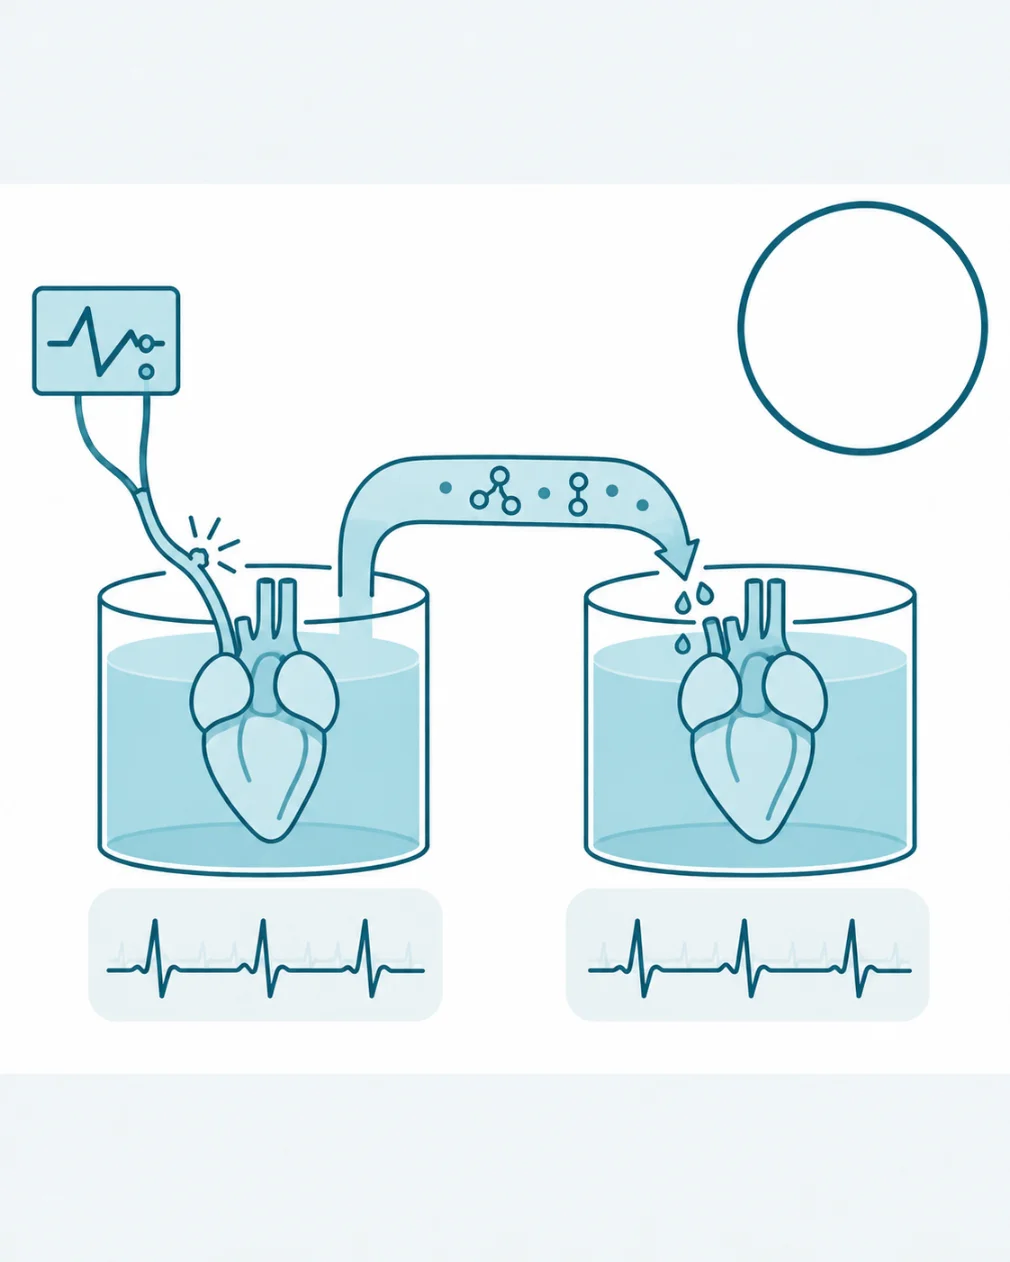
Nerw błędny dostarczył pierwszego jednoznacznego dowodu, że komórki nerwowe przekazują sygnał chemicznie. Na początku dwudziestego wieku chemiczny charakter przekazywania impulsu z nerwu na narząd pozostawał hipotezą bez rozstrzygającego doświadczenia [14]. Otto Loewi wykonał je w 1920 roku na sercu żaby, drażniąc nerw błędny, a opis ukazał się w 1921 roku [14]. Substancję uwalnianą przez nerw nazwał Vagusstoff, a później zidentyfikowano ją jako acetylocholinę [15].
Drugie rozstrzygnięcie dotyczyło odporności. Do końca dwudziestego wieku wpływ mózgu na ogólnoustrojową reakcję zapalną opisywano głównie przez mechanizmy humoralne, czyli hormony osi podwzgórze–przysadka–nadnercza [16]. W 2000 roku zespół Kevina Traceya wykazał doświadczalnie, że acetylocholina hamuje uwalnianie cytokin prozapalnych przez ludzkie makrofagi w hodowli, a elektryczne drażnienie nerwu błędnego u szczurów zapobiega wstrząsowi po endotoksynie [16]. W 2002 roku Tracey opisał ten obwód jako odruch zapalny, sterowany przez układ nerwowy w czasie rzeczywistym, podobnie jak rytm serca [17].

2. Połączenia i czynność
2.1. Przebieg i gałęzie
Nerw błędny oddaje gałęzie na całej długości, od podstawy czaszki po jamę brzuszną, a kolejność ich odejścia odpowiada kolejności narządów. Gałęzie szyjne zaopatrują ucho, gardło i krtań, piersiowe serce, płuca i przełyk, a brzuszne narządy jamy brzusznej [5].
Najwyżej odchodzi gałąź uszna, która unerwia czuciowo część małżowiny usznej i przewodu słuchowego zewnętrznego. Muszelka małżowiny (łac. cymba conchae) jest unerwiona wyłącznie przez tę gałąź [11]. Gałęzie gardłowe współtworzą splot gardłowy, a nerw krtaniowy górny zaopatruje błonę śluzową krtani powyżej głośni i mięsień pierścienno-tarczowy. Nerw krtaniowy wsteczny unerwia pozostałe mięśnie krtani i błonę śluzową poniżej głośni.
Przebieg nerwu krtaniowego wstecznego jest po obu stronach niesymetryczny. Lewy nerw zawraca pod łukiem aorty, prawy pod tętnicą podobojczykową, po czym oba wstępują ku krtani w bruździe między tchawicą a przełykiem. Prawy nerw krtaniowy może też odchodzić bezpośrednio od pnia na szyi, bez zawracania. W metaanalizie 53 badań obejmujących 33 571 prawych nerwów taki nerw niewsteczny stwierdzano w 0,7% przypadków, a w 86,7% z nich towarzyszyła mu nieprawidłowo odchodząca prawa tętnica podobojczykowa [18].
Gałęzie nerwu błędnego różnią się odcinkiem, na którym odchodzą, i zakresem unerwienia [5, 10].
| Gałąź | Odcinek | Zakres unerwienia |
| uszna | głowa | skóra części małżowiny i przewodu słuchowego |
| gardłowe | szyja | mięśnie i błona śluzowa gardła, podniebienie miękkie |
| krtaniowy górny | szyja | błona śluzowa krtani nad głośnią, mięsień pierścienno-tarczowy |
| krtaniowy wsteczny | szyja i klatka | pozostałe mięśnie krtani, błona śluzowa pod głośnią, tchawica, przełyk |
| sercowe | szyja i klatka | splot sercowy, węzeł zatokowo-przedsionkowy i przedsionkowo-komorowy |
| płucne i przełykowe | klatka | drzewo oskrzelowe, płuca, przełyk |
| żołądkowe, wątrobowe, trzewne | brzuch | żołądek, wątroba, trzustka, jelito cienkie, proksymalna okrężnica |
Z niesymetrycznego przebiegu wynika, że lewy nerw krtaniowy wsteczny ma dłuższy odcinek w klatce piersiowej, a prawy nerw niewsteczny, biegnący nietypowo, jest bardziej narażony na przecięcie w czasie operacji tarczycy [19].
2.2. Zakres unerwienia
Zakres unerwienia nerwu błędnego obejmuje trzy rodzaje czynności, rozdzielone w nim między różne populacje włókien. Włókna ruchowe unerwiają mięśnie poprzecznie prążkowane gardła, krtani i górnego przełyku. Włókna przywspółczulne unerwiają mięśnie gładkie i gruczoły narządów klatki piersiowej i jamy brzusznej, od drzewa tchawiczo-oskrzelowego po proksymalną okrężnicę [5]. Dalsza część jelita grubego otrzymuje włókna przywspółczulne z nerwów krzyżowych.
Włókna czuciowe są najliczniejsze [1]. W badaniach ze znakowaniem szlaków nerwowych u zwierząt aferenty nerwu błędnego docierały do przełyku, dolnych dróg oddechowych, serca i aorty, całego przewodu pokarmowego, wątroby, żyły wrotnej, dróg żółciowych i trzustki, ale nie do śledziony [10]. W zakończeniach nerwowych w narządach wyróżniono mechanoreceptory i chemoreceptory, a także czujniki temperatury i osmolalności [10]. Badania molekularne i genetyczne wyodrębniły wiele typów neuronów czuciowych unerwiających różne narządy, a czynność wielu z nich pozostaje słabo poznana [20].
Włókna czuciowe somatyczne nerwu błędnego pochodzą ze skóry ucha. Ich pobudzenie elektryczne u zdrowych ochotników aktywowało w czynnościowym rezonansie magnetycznym jądro pasma samotnego i struktury, do których ono projektuje [11]. Szeroki zasięg czuciowy sprawia, że nerw błędny jest dla mózgu jednym z głównych źródeł informacji o stanie narządów wewnętrznych, co nazywa się interocepcją [20].
2.3. Funkcje nerwu błędnego
Nerw błędny uczestniczy w regulacji oddychania, rytmu serca, ciśnienia tętniczego i motoryki jelit, w odruchach kaszlu i połykania oraz w zachowaniach związanych z jedzeniem, piciem i chorobą [20]. Wiele z tych czynności poznano w badaniach na zwierzętach, a ich przełożenie na człowieka bywa częściowe.
2.3.1. Kontrola rytmu serca
Serce ma własny rozrusznik, węzeł zatokowo-przedsionkowy, który bez wpływów nerwowych wyznaczałby rytm szybszy niż spoczynkowy. Nerw błędny stale go spowalnia. Neurony przedzwojowe sercowe, leżące w dużej części w jądrze dwuznacznym [54], wysyłają włókna do zwojów w splocie sercowym, a neurony zazwojowe uwalniają acetylocholinę na komórki węzła. Acetylocholina działa przez receptory muskarynowe, wydłuża powolną depolaryzację komórek rozrusznikowych, a przez to odstęp między kolejnymi skurczami. Tę samą substancję jako pierwszy wykrył Loewi w sercu żaby, drażniąc nerw błędny [14].
Wpływ nerwu błędnego na serce zmienia się w rytmie oddechu. Przy wdechu napływ sygnału hamującego słabnie i serce przyspiesza, a przy wydechu znów zwalnia, co nazywa się oddechową niemiarowością zatokową (ang. respiratory sinus arrhythmia, RSA). RSA odpowiada składowej wysokiej częstotliwości w zmienności rytmu serca i często służy jako wskaźnik napięcia przywspółczulnego serca [21]. Zależność ta jest silna u tej samej osoby w różnych warunkach, a słabsza przy porównywaniu różnych osób [21].
Działanie nerwu błędnego na serce jest szybkie, bo acetylocholina jest natychmiast rozkładana w szczelinie synaptycznej. Dzięki temu nerw może zmieniać długość pojedynczego cyklu serca, czego wolniejsze wpływy hormonalne nie potrafią. Przewaga wpływu wagalnego tłumaczy więc powolny rytm spoczynkowy, a jego osłabienie szybko przyspiesza serce.
2.3.2. Regulacja przewodu pokarmowego
Przewód pokarmowy od przełyku po proksymalną okrężnicę otrzymuje włókna przywspółczulne z nerwu błędnego [5]. Nerw nie steruje jednak każdym skurczem jelita, bo tę rolę pełnią zwoje śródścienne. Nerw błędny dostosowuje ich pracę do sytuacji: przyjęcia pokarmu, rozciągnięcia żołądka czy obecności składników odżywczych.
Podstawą tej regulacji jest odruch wago-wagalny, w którym obie odnogi łuku biegną w nerwie błędnym. Aferenty z żołądka przekazują sygnał do jądra pasma samotnego, a ono moduluje neurony jądra grzbietowego ruchowego, które odsyłają polecenie z powrotem do żołądka [9]. Połączenie jądra pasma samotnego z jądrem grzbietowym ruchowym jest plastyczne, bo jego czułość zmieniają neuroprzekaźniki, krążące hormony i sam napływ sygnału czuciowego [9]. W przełyku ten sam układ działa inaczej, ponieważ jądro dwuznaczne unerwia mięśnie poprzecznie prążkowane, a jądro grzbietowe ruchowe mięśnie gładkie. Połykanie i rozkurcz przystosowawczy żołądka koordynuje ośrodkowy generator wzorca w pniu mózgu [8].
Nerw błędny pobudza także wydzielanie żołądkowe. Na początku dwudziestego wieku Iwan Pawłow opisał odruchowe pobudzanie wydzielania soku żołądkowego przez nerw błędny, a koncepcja ta konkurowała później z koncepcją histaminową [22]. Z tej funkcji wzięło się leczenie choroby wrzodowej przez przecięcie nerwu.
2.3.3. Przekaz trzewno-mózgowy
Aferenty nerwu błędnego informują mózg o rozciągnięciu ścian narządów, o składzie treści jelitowej i o hormonach wydzielanych przez jelito [10, 20]. Na tej drodze powstaje część sygnałów sytości. U szczurów przecięcie nerwu błędnego w jamie brzusznej znosiło hamowanie jedzenia przez peptyd YY [23]. Receptor tego peptydu powstaje w neuronach zwoju węzłowego i jest transportowany do zakończeń nerwu, więc hormon jelitowy może pobudzać nerw bezpośrednio [23]. Cholecystokinina, peptyd glukagonopodobny 1 i grelina przekazują sygnał sytości albo głodu przez aferenty nerwu błędnego lub przez krew [23].
Nerw błędny jest jedną z dróg osi jelita–mózg, łączących przewód pokarmowy z ośrodkowym układem nerwowym [2]. W badaniu na myszach podawanie szczepu Lactobacillus rhamnosus zmieniało ekspresję receptorów kwasu γ-aminomasłowego w mózgu i zmniejszało zachowania lękowe, ale nie u zwierząt po wagotomii [24]. Wynik ten wskazuje nerw błędny jako drogę, którą bakterie tworzące mikrobiom jelitowy wpływają na mózg myszy [24]. Dane te pochodzą z badań na zwierzętach i nie zostały potwierdzone u człowieka.
Aferenty nerwu błędnego przenoszą też sygnał o zapaleniu w jamie brzusznej. U szczurów wagotomia podprzeponowa znosiła wzrost temperatury ciała wywołany podaniem interleukiny 1β, cytokiny wydzielanej przez aktywowane komórki odpornościowe [25]. Endotoksyna i cytokiny pobudzają włókna czuciowe nerwu, a sygnał uruchamia przeciwzapalną odpowiedź osi podwzgórze–przysadka–nadnercza [16]. Nerw błędny przekazuje więc mózgowi sygnał o zapaleniu w jamie brzusznej, a mózg odpowiada na niego gorączką i reakcją hormonalną.
2.3.4. Odruch zapalny
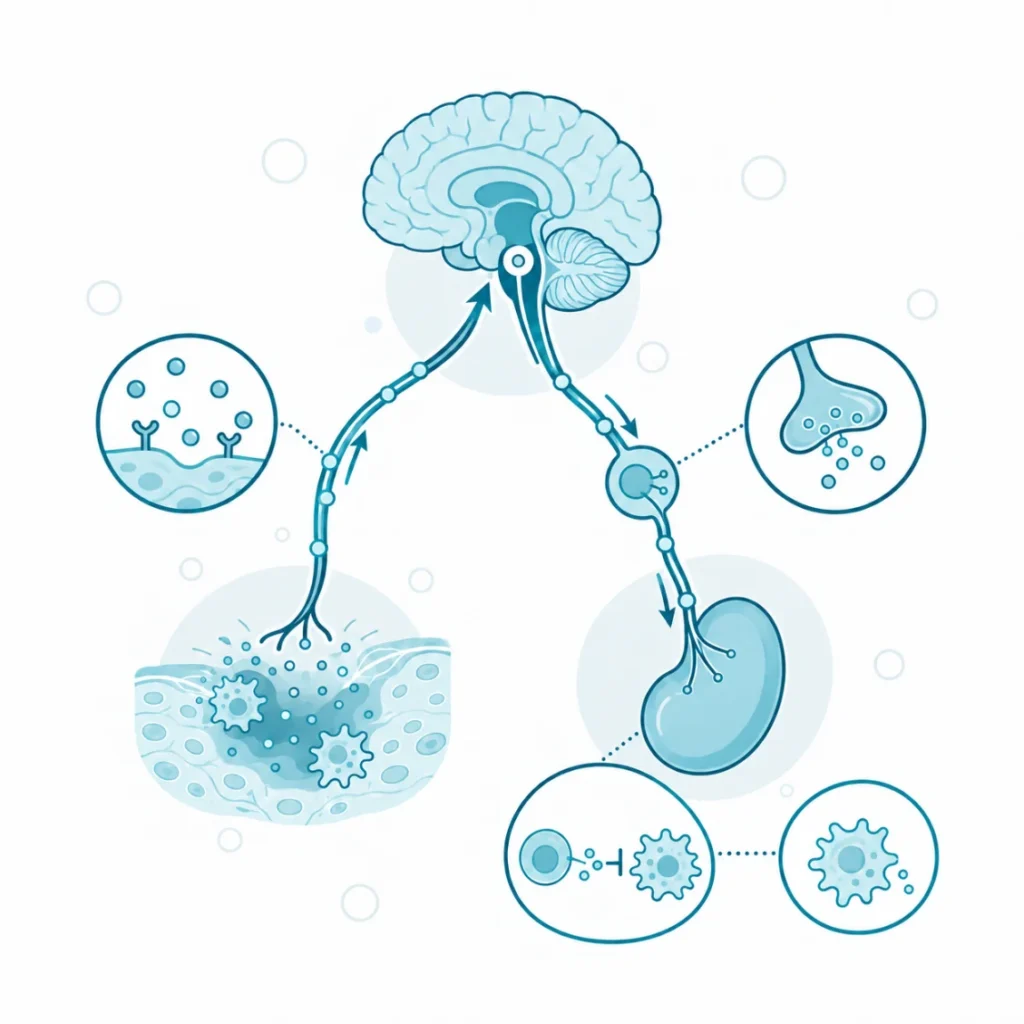
Odruch zapalny to obwód, w którym nerw błędny ogranicza wytwarzanie cytokin prozapalnych przez makrofagi. Jego odnogą czuciową są aferenty wykrywające zapalenie, a odnogą ruchową szlak nazwany cholinergicznym szlakiem przeciwzapalnym [17, 26]. Obwód ten zbadano głównie w modelach zwierzęcych, a jego przełożenie na człowieka jest przedmiotem badań klinicznych.
Przebieg odruchu opisano w kilku krokach. W proponowanym modelu aferenty przekazują sygnał do jądra pasma samotnego, a ono do neuronów jądra grzbietowego ruchowego, z których wychodzą włókna eferentne. Sygnał biegnie dalej włóknami eferentnymi nerwu błędnego i nerwem śledzionowym do śledziony [26]. Zaproponowano, że włókna nerwu błędnego przełączają się w zwoju trzewnym na neurony współczulne, których aksony tworzą nerw śledzionowy [27]. Włókna nerwowe w śledzionie nie mają enzymów potrzebnych do wytwarzania acetylocholiny, więc ostatnie ogniwo tworzą limfocyty T pamięci zdolne do jej syntezy [28]. U myszy pozbawionych limfocytów T drażnienie nerwu błędnego nie hamowało wytwarzania cytokin [28]. Uwolniona acetylocholina działa na receptor nikotynowy z podjednostką α7 na makrofagach i hamuje uwalnianie czynnika martwicy nowotworów [28].
Anatomia tego obwodu budzi spór. W badaniu na szczurach znaczniki z jądra grzbietowego ruchowego nie tworzyły połączeń synaptycznych z neuronami współczulnymi unerwiającymi śledzionę, a drażnienie włókien eferentnych nie zmieniało aktywności nerwu śledzionowego [27]. Sam nerw błędny nie unerwia śledziony [10, 27]. Nie jest więc ustalone, jaką drogą sygnał z nerwu błędnego dociera do śledziony, choć zależność efektu od śledziony i nerwu śledzionowego potwierdzono w modelach zwierzęcych [26, 27].
2.3.5. Fonacja, połykanie i odruchy obronne
Nerw błędny unerwia wszystkie mięśnie wewnętrzne krtani, więc od niego zależy ustawienie fałdów głosowych przy mówieniu, oddychaniu i kaszlu. Nerw krtaniowy wsteczny odwodzi i przywodzi fałdy głosowe, a nerw krtaniowy górny napina je przez mięsień pierścienno-tarczowy. Neurony jądra dwuznacznego unerwiają też mięśnie gardła i podniebienia miękkiego, które przesuwają kęs w czasie połykania.
Połykanie wymaga współpracy nerwu błędnego z innymi nerwami czaszkowymi. Ośrodkowy generator wzorca połykania w pniu mózgu koordynuje skurcze mięśni poprzecznie prążkowanych i gładkich przełyku oraz pracę jego zwieraczy [8]. Aferenty z przełyku dostosowują ten program do objętości i konsystencji kęsa, a ich utrata zaburza to dostosowanie [8].
Odruchy obronne dróg oddechowych również biegną nerwem błędnym. Jego aferenty z dróg oddechowych wyzwalają kaszel [20]. W odruchu gardłowym odnoga czuciowa biegnie głównie w nerwie językowo-gardłowym, a ruchowa w nerwie błędnym. Nerw błędny chroni więc drogi oddechowe na dwa sposoby: zamyka krtań w czasie połykania i usuwa ciało obce kaszlem, gdy do niej trafi.

3. Uszkodzenie i patologia
3.1. Następstwa uszkodzenia
Uszkodzenie nerwu błędnego daje objawy zależne od poziomu, na którym powstało. Uszkodzenie pnia nerwu u podstawy czaszki znosi po jednej stronie wszystkie jego czynności, a uszkodzenie w rdzeniu przedłużonym może objąć tylko część jąder. Uszkodzenie pojedynczej gałęzi znosi tylko czynność tej gałęzi.
Typowym uszkodzeniem jatrogennym jest przecięcie albo rozciągnięcie nerwu krtaniowego wstecznego w czasie operacji na szyi i w klatce piersiowej. Jego skutkiem jest porażenie fałdu głosowego, przejściowe albo trwałe [18]. Porażony fałd nie dochodzi do linii środkowej, więc głośnia nie zamyka się szczelnie, a głos staje się chrapliwy i słaby. Nerw niewsteczny, niewidoczny w typowym miejscu, jest szczególnie narażony. W metaanalizie 17 badań uszkodzenie w operacjach tarczycy dotyczyło 7% nerwów niewstecznych, a ryzyko było 3,8 raza większe niż dla nerwu o typowym przebiegu [19].
Zawał bocznej części rdzenia przedłużonego może uszkodzić jądro dwuznaczne razem z sąsiednimi strukturami. W serii 130 kolejnych chorych z takim zawałem zaburzenia połykania i mowy występowały częściej przy ogniskach położonych wyżej w rdzeniu przedłużonym [29]. Porażenie mięśni gardła i krtani po jednej stronie grozi zachłyśnięciem, bo kęs może trafić do niedomkniętej krtani.
Przecięcie nerwu błędnego było w połowie dwudziestego wieku metodą leczenia choroby wrzodowej [22]. Wagotomię pniową łączono z zabiegiem drenującym żołądek albo wykonywano bez niego, a później zastąpiły ją leki hamujące wydzielanie kwasu [22]. Przecięcie pni pod przeponą pozbawia żołądek odruchów wago-wagalnych, które regulują jego czynność trawienną [9].
3.2. Udział nerwu błędnego w chorobach
Nerw błędny ulega uszkodzeniu w chorobach ogólnoustrojowych, na przykład w cukrzycy. Uczestniczy też w mechanizmie omdleń i jest przedmiotem hipotezy o drodze szerzenia się choroby Parkinsona.
Neuropatia autonomiczna serca w cukrzycy jest dobrze poznanym przykładem uszkodzenia włókien nerwu błędnego w chorobie przewlekłej. Jej częstość w cukrzycy typu 1 wynosi w różnych badaniach od 2,5% do 90%, zależnie od badanej grupy i kryteriów [30]. W 10-letniej obserwacji jednego ośrodka nieprawidłowe próby rytmu serca występowały u 40% z 543 chorych, a nieprawidłowe próby ciśnienia u mniej niż 20% [31]. Pogorszenie przebiegało kolejno: najpierw pojawiały się nieprawidłowe próby rytmu serca, zależne głównie od nerwu błędnego, a później próby ciśnienia [31]. W metaanalizie badań prospektywnych neuropatia autonomiczna serca wiązała się z 3,16 razy większym ryzykiem zdarzeń sercowo-naczyniowych i 3,17 razy większym ryzykiem zgonu [32].
Omdlenie wazowagalne to najczęstszy rodzaj omdlenia [33]. U dzieci i młodzieży stanowi od 60% do 80% omdleń [34]. Mechanizm zaczyna się od wzrostu napięcia współczulnego i częstości rytmu serca przy słabo wypełnionej lewej komorze. W tych warunkach pobudzone zostają zakończenia czuciowe typu C w sercu, a uruchomiony przez nie odruch zwalnia serce i rozszerza naczynia [33]. Zwolnienie serca zależy od włókien nerwu błędnego, a spadek ciśnienia zmniejsza przepływ mózgowy i prowadzi do utraty przytomności [33].
W chorobie Parkinsona proces tworzenia złogów zawierających białko alfa-synukleinę zaczyna się w dolnej części pnia mózgu od jądra grzbietowego ruchowego nerwu błędnego [35]. W 2003 roku Braak i współpracownicy postawili hipotezę, że czynnik chorobotwórczy wnika przez błonę śluzową przewodu pokarmowego i wędruje do mózgu niezmielinizowanymi włóknami przedzwojowymi nerwu błędnego [35]. W duńskim badaniu kohortowym ryzyko choroby po wagotomii pniowej było mniejsze niż w populacji ogólnej przy obserwacji dłuższej niż 20 lat (współczynnik ryzyka, ang. hazard ratio, HR 0,53), a w całym okresie obserwacji różnica nie była istotna (HR 0,85) [36]. W szwedzkim badaniu z 9 430 chorymi wagotomia ogółem nie wiązała się z ryzykiem choroby (HR 0,96), a mniejsze ryzyko pojawiło się tylko po wagotomii pniowej wykonanej co najmniej 5 lat przed rozpoznaniem (HR 0,59) [37]. Według autorów przeglądu tych danych rola nerwu błędnego jako drogi szerzenia się choroby pozostaje przedmiotem sporu [38].
3.3. Stymulacja nerwu błędnego
Stymulacja nerwu błędnego (ang. vagus nerve stimulation, VNS) to metoda leczenia polegająca na przewlekłym, przerywanym drażnieniu nerwu prądem z programowalnego generatora impulsów [39]. Elektrody w kształcie mankietu zakłada się chirurgicznie na szyjny odcinek nerwu [1]. Metodę stosuje się klinicznie od około trzech dekad, najpierw w padaczce, później w innych wskazaniach [1].
Mechanizm działania VNS w padaczce i depresji nie jest ustalony. Działanie przeciwpadaczkowe wiąże się z pobudzaniem włókien czuciowych i ich rozległymi połączeniami w mózgu [10]. Hipoteza zakłada, że wiele ośrodkowych skutków VNS zależy od pobudzenia miejsca sinawego, największego skupiska neuronów noradrenergicznych w mózgu [40]. U szczurów krótkie serie VNS wywoływały szybkie, fazowe wyładowania neuronów miejsca sinawego [40]. U ludzi pobudzenie gałęzi usznej aktywowało w rezonansie magnetycznym jądro pasma samotnego, miejsce sinawe i jądro szwu grzbietowe, będące źródłem serotoniny [11].
W padaczce lekoopornej z napadami ogniskowymi przegląd systematyczny Cochrane objął 5 badań z randomizacją i 439 uczestników. Przy stymulacji o wysokim natężeniu zmniejszenie częstości napadów o co najmniej połowę uzyskiwano 1,73 raza częściej niż przy stymulacji o niskim natężeniu, przy umiarkowanej pewności dowodów [39]. Do działań niepożądanych należały chrypka, kaszel i duszność, a zmiana głosu utrudniała zaślepienie tych badań [39].
W depresji lekoopornej VNS jest w Stanach Zjednoczonych zatwierdzonym leczeniem wspomagającym [41]. Badanie RECOVER objęło 493 dorosłych z depresją znacznie oporną na leczenie, obserwowanych przez 12 miesięcy [41]. Pierwszorzędowy punkt końcowy, czyli odsetek czasu z odpowiedzią w skali Montgomery–Åsberg, nie różnił aktywnej stymulacji od pozorowanej [41]. Aktywna stymulacja dawała natomiast więcej czasu z odpowiedzią w ocenie lekarzy i w samoocenie chorych, a częściej wywoływała duszność [41].
W rehabilitacji po udarze niedokrwiennym badanie VNS-REHAB objęło 108 chorych z umiarkowanym lub ciężkim niedowładem ręki, trwającym co najmniej 9 miesięcy [42]. Stymulację łączono w czasie z ćwiczeniami ruchowymi, a grupa kontrolna otrzymywała stymulację pozorowaną. Po zakończeniu terapii w ośrodku wynik w skali Fugl-Meyera poprawił się o 5,0 punktu w grupie aktywnej i o 2,4 punktu w grupie kontrolnej, czyli różnica wyniosła 2,6 punktu [42]. Po 90 dniach klinicznie istotną poprawę miało 47% chorych z grupy aktywnej i 24% z grupy kontrolnej [42].
W reumatoidalnym zapaleniu stawów badanie RESET-RA sprawdzało wykorzystanie odruchu zapalnego u 242 chorych, u których zawiodły leki biologiczne lub celowane. Po 3 miesiącach kryterium poprawy ACR20 Amerykańskiego Kolegium Reumatologii, oznaczające zmniejszenie objawów o co najmniej 20%, spełniło 35,2% chorych z aktywną stymulacją i 24,2% z pozorowaną [43]. Poważne działania niepożądane związane z leczeniem wystąpiły u 1,6% chorych i dotyczyły okresu okołooperacyjnego [43].
Cztery zastosowania wszczepialnej stymulacji różnią się rodzajem badań, liczbą uczestników i siłą wyniku [39, 41–43].
| Wskazanie | Rodzaj badania | Liczba uczestników | Wynik główny |
| padaczka ogniskowa lekooporna | przegląd Cochrane, 5 badań z randomizacją | 439 | zmniejszenie napadów o ≥50% 1,73 raza częściej |
| depresja lekooporna | badanie z randomizacją, 12 miesięcy | 493 | pierwszorzędowy punkt końcowy niespełniony, drugorzędowe korzystne |
| niedowład ręki po udarze | badanie z randomizacją, stymulacja łączona z ćwiczeniami | 108 | różnica 2,6 punktu w skali Fugl-Meyera |
| reumatoidalne zapalenie stawów | badanie z randomizacją, 3 miesiące | 242 | ACR20 35,2% wobec 24,2% |
Przezskórna stymulacja gałęzi usznej (ang. transcutaneous auricular VNS, taVNS) nie wymaga zabiegu, ale jej mechanizm jest słabiej udokumentowany. W metaanalizie 16 badań u zdrowych osób jednorazowa stymulacja nie zmieniała zmienności rytmu serca zależnej od nerwu błędnego w porównaniu z pozorowaną stymulacją [44]. U szczurów hamowanie aktywności współczulnej po pobudzeniu skrawka ucha zależało przynajmniej częściowo od nerwów szyjnych, a nie od nerwu błędnego [45]. W dyspepsji czynnościowej metaanaliza 6 badań z randomizacją i 716 uczestników wykazała zmniejszenie objawów w porównaniu ze stymulacją pozorowaną, przy umiarkowanej pewności dowodów [46]. Metoda przezskórna ma więc wyniki kliniczne w pojedynczych wskazaniach, ale udział nerwu błędnego w jej działaniu nie jest wyjaśniony.
3.4. Czynniki wpływające na stan struktury
Stan nerwu błędnego ocenia się zwykle pośrednio, przez jego wpływ na rytm serca, dlatego wiedza o czynnikach modyfikujących dotyczy głównie tego wpływu. Część czynników jest niemodyfikowalna, jak wiek i płeć, część zależy od trybu życia i chorób współistniejących.
Wiek zmniejsza zmienność rytmu serca zależną od nerwu błędnego. W badaniu 260 zdrowych osób w wieku od 10 do 99 lat do miar spadających najszybciej należał RMSSD (ang. root mean square of successive differences), czyli miara różnic między kolejnymi odstępami między uderzeniami serca. W szóstej dekadzie życia osiągał 47% wartości z drugiej dekady [47]. U osób poniżej 30 roku życia zmienność rytmu była niższa u kobiet niż u mężczyzn, a różnica znikała po 50 roku życia [47].
Regularny trening fizyczny zwalnia rytm spoczynkowy i zwiększa składową oddechową zmienności rytmu. W metaanalizie 13 badań trening zwiększał moc w paśmie wysokiej częstotliwości z umiarkowaną wielkością efektu (d = 0,48). Wydłużał też odstęp RR, czyli czas między kolejnymi uderzeniami serca, a u osób starszych słabiej [48]. Związek tego wzrostu z długością odstępu RR był jednak słaby, więc bradykardia treningowa zależy nie tylko od nerwu błędnego [48]. Sen również zmienia wpływ nerwu na serce. W śnie bez szybkich ruchów gałek ocznych (NREM) przeważa napięcie przywspółczulne, a w śnie z szybkimi ruchami gałek ocznych (REM) wpływ nerwu błędnego prawdopodobnie słabnie [49].
Cukrzyca uszkadza włókna autonomiczne, w tym wagalne, w mechanizmie złożonym i nie w pełni poznanym [30]. W 4-miesięcznym badaniu z randomizacją DEKAN kwas alfa-liponowy w porównaniu z placebo nieznacznie zwiększał RMSSD u chorych z cukrzycą typu 2 i neuropatią autonomiczną serca, bez różnicy w objawach [50]. Wynik pochodzi z jednego badania, a zmiana miała niewielką wielkość. Wszystkie te dane opisują zmienność rytmu serca, a nie budowę nerwu, co ogranicza wnioski o jego stanie.
4. Uwagi praktyczne
4.1. Jak to zbadać
Czynność nerwu błędnego bada się pośrednio, bo w warunkach klinicznych nie mierzy się aktywności samego nerwu. Ocenia się jego wpływ na serce, odruchy z gardła i krtani oraz ruchomość fałdów głosowych.
Zmienność rytmu serca (ang. heart rate variability, HRV) opisuje wahania odstępów między kolejnymi pobudzeniami serca w zapisie elektrokardiograficznym. Standardy pomiaru ustaliła w 1996 roku grupa robocza Europejskiego Towarzystwa Kardiologicznego i północnoamerykańskiego towarzystwa elektrofizjologii serca [6, 51]. Zapis 24-godzinny, zapis krótki, około 5-minutowy, i zapisy ultrakrótkie dają wartości, których normy nie są wymienne [52]. Wśród standardowych miar czasowych jest RMSSD [47], a składowa oddechowa odpowiada mocy w paśmie wysokiej częstotliwości [21]. Na wynik wpływają częstość i głębokość oddechu, aktywność fizyczna w czasie pomiaru, wiek i płeć [21, 52].
Testy odruchowe układu autonomicznego oceniają reakcję serca i ciśnienia na znormalizowany bodziec. Zestaw Ewinga obejmuje pięć prób: odpowiedź rytmu serca na głęboki oddech, na próbę Valsalvy i na pionizację oraz odpowiedź ciśnienia na pionizację i na ucisk ręki [31]. Pierwsze trzy oceniają głównie drogę przywspółczulną, a pojedyncza próba nie wystarcza do oceny stopnia uszkodzenia [31]. Według kryteriów konsensusu z Toronto jedna nieprawidłowa próba oznacza neuropatię możliwą, a co najmniej dwie pewną [32]. Przy podejrzeniu omdleń odruchowych wykonuje się test pochyleniowy, który w warunkach kontrolowanych wywołuje odruch wazowagalny [33, 53].
Czynność ruchową nerwu ocenia badanie neurologiczne nerwów czaszkowych: ruch podniebienia miękkiego przy fonacji, odruch gardłowy i jakość głosu. Przy chrypce po operacji na szyi ruchomość fałdów głosowych ocenia się w laryngoskopii. Jednostronne porażenie po stronie uszkodzenia wskazuje na nerw krtaniowy wsteczny albo pień nerwu powyżej jego odejścia.
4.2. Na co warto zwrócić uwagę
Zmienność rytmu serca nie jest bezpośrednią miarą „tonusu nerwu błędnego”. Oddechowa składowa zmienności odzwierciedla napięcie przywspółczulne serca tylko przy kontroli oddechu i aktywności fizycznej, a w niektórych warunkach może się od niego oddzielić [21]. Na jej wielkość wpływa też napięcie beta-adrenergiczne, a związek ze stanem nerwu jest silny u tej samej osoby, słabszy między osobami [21]. Wynik HRV mówi więc o regulacji serca w chwili pomiaru, a nie o stanie całego nerwu, który w większości przewodzi sygnały czuciowe z trzewi [1].
Przekonanie, że wysoka zmienność rytmu serca oznacza zdrowie, a niska chorobę, upraszcza dane populacyjne. Niska zmienność wiąże się z większym ryzykiem zgonu w grupach chorych, na przykład w neuropatii autonomicznej w cukrzycy [32]. Tymczasem u 12% zdrowych osób po 65 roku życia RMSSD spadał poniżej opublikowanych progów zwiększonego ryzyka zgonu [47]. Wynik uzyskany w innych warunkach niż w badaniach normatywnych, na przykład przy innym czasie zapisu, nie daje się z tymi progami porównać [52].
Przekonanie, że ćwiczenia oddechowe albo przezskórne pobudzanie „aktywują” nerw błędny i w ten sposób leczą lęk czy zapalenie, łączy kilka niesprawdzonych założeń. Zmiana sposobu oddychania może zmieniać oddechową składową zmienności rytmu serca także bez zmiany napięcia nerwu, więc wzrost tego wskaźnika nie dowodzi „aktywacji” [21]. Brak wpływu jednorazowej przezskórnej stymulacji na zmienność rytmu serca u zdrowych osób podważa samo założenie, że metoda pobudza nerw w sposób mierzalny [44]. Korzystne wyniki badań z randomizacją w dyspepsji czynnościowej, obejmujące także objawy lękowe, dotyczą chorych z tą chorobą i nie przesądzają o mechanizmie [46]. Działanie przeciwzapalne odruchu zapalnego udokumentowano głównie u gryzoni, a anatomiczna droga z nerwu do śledziony jest sporna [26, 27]. Skuteczność w reumatoidalnym zapaleniu stawów dotyczy urządzenia wszczepionego na nerw i umiarkowanej różnicy względem stymulacji pozorowanej [43].
Wyniki badań nad wagotomią a chorobą Parkinsona pochodzą z obserwacji rejestrowych, które nie dowodzą przyczynowości. Mniejsze ryzyko pojawiało się w podgrupach po wagotomii pniowej i przy długiej obserwacji, a nie w całych grupach operowanych [36, 37]. Rozpoznanie neuropatii autonomicznej, porażenia nerwu krtaniowego czy przyczyny omdleń należy do lekarza, który interpretuje wyniki badań w kontekście klinicznym.