1. Charakterystyka
1.1. Definicja i klasyfikacja
Kora śródwęchowa (ang. entorhinal cortex, EC) to obszar kory mózgu na przyśrodkowej powierzchni płata skroniowego, należący do formacji hipokampa w szerokim znaczeniu [1]. Jej nazwa łacińska brzmi area entorhinalis. W podziale cytoarchitektonicznym Brodmanna kora śródwęchowa odpowiada polu 28 [2]. Zajmuje przednią część zakrętu przyhipokampowego, czyli wału kory biegnącego wzdłuż przyśrodkowego brzegu płata skroniowego [3].
W klasyfikacji typów kory EC jest korą przejściową. Ma sześć warstw, ale warstwa IV nie występuje we wszystkich jej polach, a pole najbardziej przednie jest uwarstwione słabo [1]. Części boczne i tylne przypominają budową sąsiednią korę nową [1]. EC łączy więc cechy kory starej hipokampu i kory nowej.
Kora śródwęchowa bywa mylona z trzema pojęciami. Z korą węchową łączy ją głównie nazwa: boczna część EC otrzymuje wprawdzie silne wejścia z obszarów węchowych, ale odbiera też sygnały z wyspy, z kory czołowej i z kory okołowęchowej [4]. Od hipokampu właściwego, czyli rogu Amona i zakrętu zębatego, różni się położeniem i rolą. EC leży poza nim i dostarcza mu głównej części wejść korowych [5]. Od sąsiedniej kory okołowęchowej, odpowiadającej polom Brodmanna 35 i 36, odróżnia ją cytoarchitektura. W jakościowym porównaniu adnotacji czterech niezależnych pracowni neuroanatomicznych, wykonanych na trzech preparatach, granice były najbardziej zgodne właśnie dla EC i pola 35 [6].
Zakres pojęcia obejmuje u człowieka osiem pól cytoarchitektonicznych, od pola węchowego na przednim końcu do ogonowego pola granicznego [1]. Kora śródwęchowa jest główną strukturą wejścia i wyjścia formacji hipokampa [4]. Zawiera komórki siatki, które kodują położenie ciała w otoczeniu [7]. Jest też jednym z pierwszych obszarów kory, w których pojawiają się zmiany neurofibrylarne choroby Alzheimera [8]. Uszkodzenie EC odcina hipokamp od dużej części informacji płynących z kory, dlatego jego skutki wykraczają poza samą strukturę [4].
1.2. Położenie i granice
Kora śródwęchowa leży na przyśrodkowej powierzchni płata skroniowego [1]. Zajmuje przednią i tylno-boczną część zakrętu przyhipokampowego [3]. Od przodu zaczyna się słabo uwarstwionym polem węchowym. Ku tyłowi jej pole ogonowe leży już za początkiem szczeliny hipokampu, a całość zamyka ogonowe pole graniczne [1].
Na przyśrodkowym brzegu płata skroniowego EC tworzy niewielkie uwypuklenie, nazywane po łacinie gyrus ambiens. W badaniu 37 płatów skroniowych zakręt ten był ograniczony dwiema drobnymi bruzdami i niemal dokładnie odpowiadał przyśrodkowemu polu pośredniemu EC [2]. Grubość kory w tym polu wynosiła średnio 2,5 mm [2]. Autorzy podali też odległości między punktami orientacyjnymi widocznymi w rezonansie magnetycznym, które pozwalają odnaleźć tę okolicę u żywego człowieka [2].
Bocznie kora śródwęchowa graniczy z korą okołowęchową, a granica ta nie jest ostra. Pole boczno-przednie EC przechodzi w sąsiednią korę stopniowo [1]. W porównaniu czterech pracowni neuroanatomicznych zgodność granic była najmniejsza właśnie w strefach przejściowych, w których cechy cytoarchitektoniczne narastają powoli [6]. Różne szkoły stosują ponadto odmienne definicje pól przyśrodkowej części płata skroniowego [6]. Pomiary objętości EC z różnych badań nie są więc w pełni porównywalne, bo zależą od przyjętego przebiegu granic.
1.3. Budowa makroskopowa i podział na części
Powierzchnia kory śródwęchowej różni się ukształtowaniem od powierzchni innych obszarów kory [10]. Pokrywają ją drobne wyniosłości, nazywane brodawkami kory śródwęchowej (łac. verrucae areae entorhinalis) [3, 10]. Każda brodawka odpowiada wyspie neuronów warstwy II, leżącej tuż pod powierzchnią [3, 10]. W badaniu odlewów powierzchni u 60 osób zdrowych w wieku od 23 do 85 lat brodawek było więcej, a ich łączna powierzchnia była większa w lewej półkuli niż w prawej [3]. Ta lewostronna przewaga była wyraźna i statystycznie istotna [3].
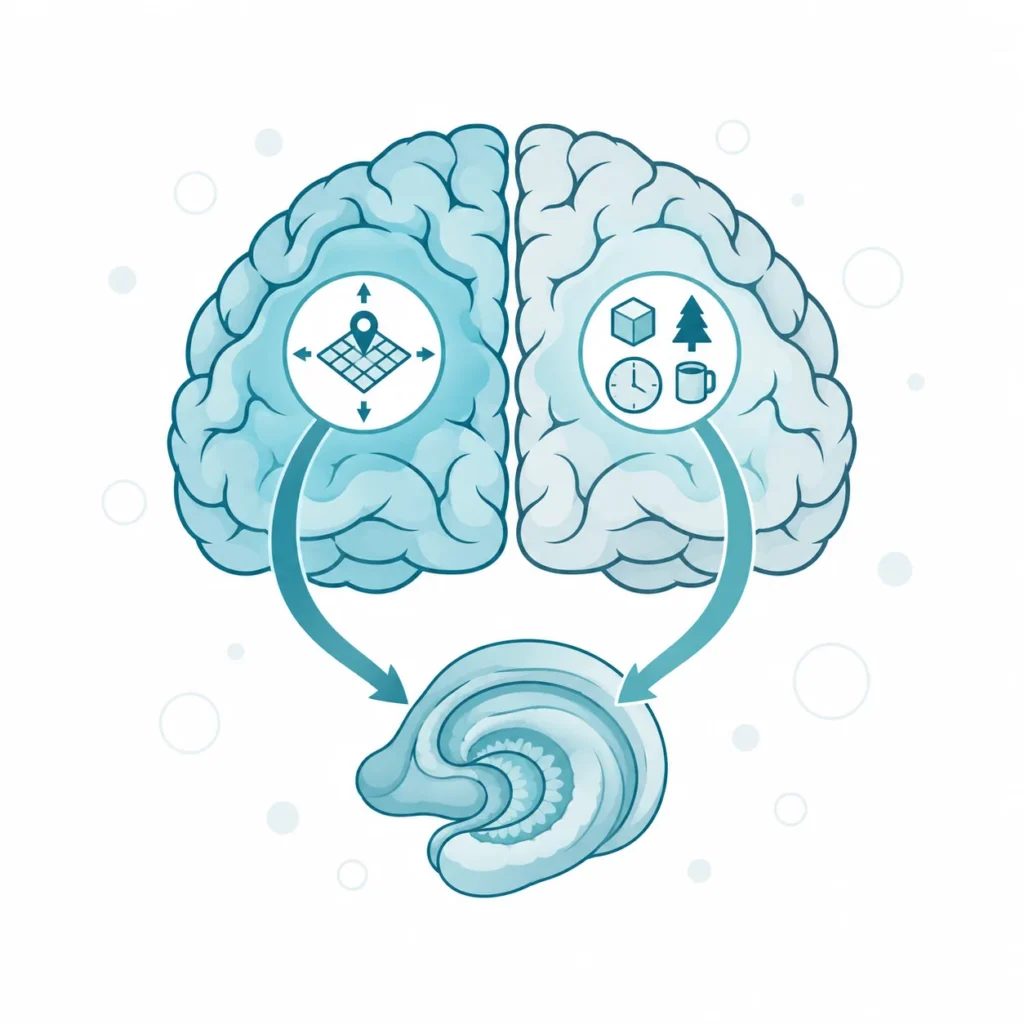
Podział kory śródwęchowej na części wyprowadzono z badań na gryzoniach. U szczura wyróżnia się część boczną (ang. lateral entorhinal cortex, LEC) i przyśrodkową (ang. medial entorhinal cortex, MEC), które różnią się cytoarchitekturą i przebiegiem projekcji do hipokampu [4]. MEC łączy się z obszarami przetwarzającymi położenie i kierunek, a LEC z obszarami węchowymi, wyspą, korą czołową i korą okołowęchową [4]. Autorzy przeglądu tych danych argumentują, że dwudzielny podział może wystarczać do opisu organizacji czynnościowej EC [4].
U człowieka odpowiedniki obu części nie układają się wyłącznie w osi przyśrodkowo-bocznej [11, 12]. W dwóch niezależnych zbiorach danych z czynnościowego rezonansu magnetycznego o polu 7 T kora okołowęchowa łączyła się czynnościowo głównie z przednio-boczną częścią EC [11]. Kora przyhipokampowa łączyła się natomiast z częścią tylno-przyśrodkową [11]. Drugi zespół, posługujący się innymi metodami analizy, opisał podział czynnościowy przebiegający przede wszystkim w osi przednio-tylnej [12]. Obie prace wskazały więc przednio-boczną część EC jako ludzki odpowiednik LEC, a tylno-przyśrodkową jako odpowiednik MEC.
Zestawienie obu części kory śródwęchowej pokazuje, że różnią się one źródłem wejść i rodzajem przetwarzanej informacji [4, 11].
| Część EC | Odpowiednik u człowieka | Główne wejścia korowe | Przewaga przetwarzanej informacji |
| boczna (LEC) | przednio-boczna | kora okołowęchowa, obszary węchowe, wyspa, kora czołowa | obiekty, uwaga, motywacja |
| przyśrodkowa (MEC) | tylno-przyśrodkowa | kora przyhipokampowa (u gryzoni kora zawęchowa), przedpodkładka, przypodkładka, kora zaspleniowa | położenie i kierunek |
Ludzkie odpowiedniki obu części wyznaczono na podstawie wzorca połączeń znanego z badań na gryzoniach [12]. Ma to znaczenie praktyczne, bo wskazuje, w którym miejscu EC człowieka należy szukać zjawisk opisanych u szczurów [12].
1.4. Budowa mikroskopowa
Kora śródwęchowa ma budowę warstwową, ale układ warstw zmienia się w obrębie jej ośmiu pól. W badaniu 35 mózgów warstwa IV, czyli ubogie w komórki pasmo zwane lamina dissecans, nie występowała we wszystkich polach i najwyraźniej rysowała się w polu pośrednim [1]. Pole ogonowe wyróżniało się jasnym pasmem oddzielającym warstwę V od warstwy VI [1]. W przyśrodkowym polu pośrednim warstwy I–III miały łącznie średnio 1,3 mm grubości, a warstwy V–VI około 1 mm [2].
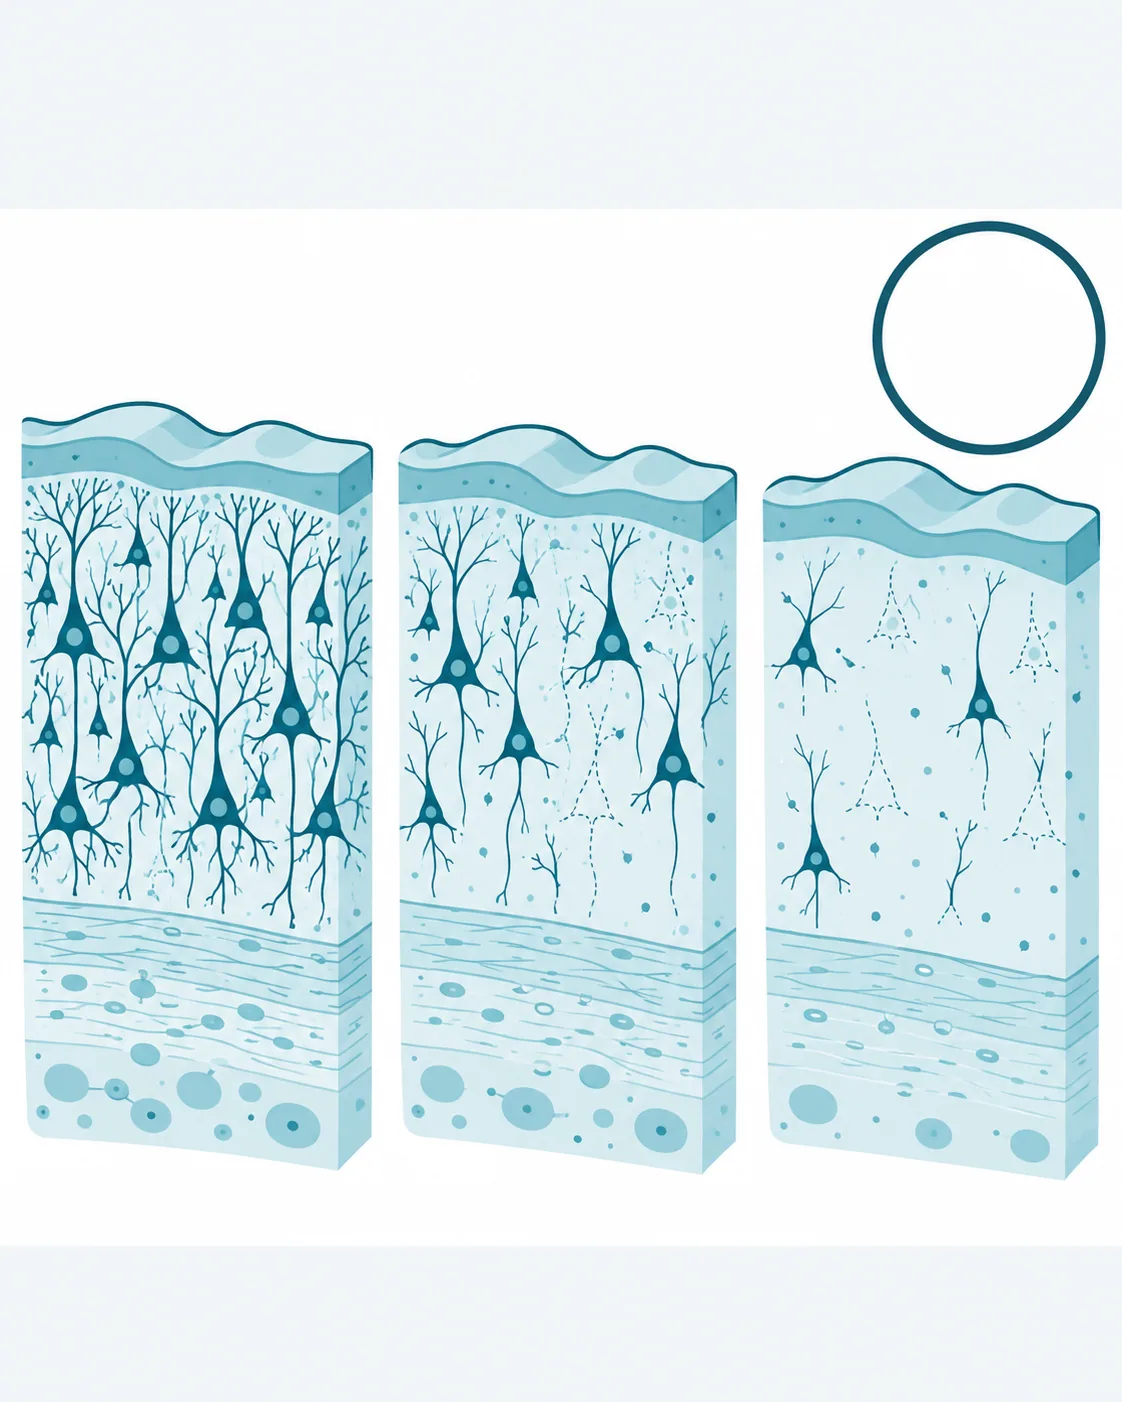
Najbardziej charakterystyczną cechą mikroskopową EC jest budowa warstwy II. Duże neurony tej warstwy nie tworzą ciągłego pasma, lecz skupiają się w wyspy, które odpowiadają brodawkom widocznym na powierzchni kory [3]. W przedniej części EC obserwowano także skupiska drobnych, słabo zróżnicowanych neuronów warstwy II, określane przez autorów jako heterotopie [3]. Występowały one zarówno u młodych, jak i u starszych dorosłych [3]. Neurony warstwy II należą też do pierwszych komórek EC, w których w trakcie starzenia pojawiają się zmiany neurofibrylarne [3].
Liczebność neuronów EC oszacowano metodami stereologicznymi, czyli przez zliczanie komórek w seryjnych przekrojach z poprawką na objętość. U osób zmarłych bez zaburzeń poznawczych warstwa II zawierała około 650 000 neuronów, warstwa IV około miliona, a cała EC około 7 milionów [9]. Autorzy tego liczenia nazywają warstwą IV warstwę, która otrzymuje główne wejście zwrotne z hipokampu, a nie ubogie w komórki pasmo lamina dissecans opisane przez Insaustiego i współpracowników [1, 9]. W innym badaniu, ograniczonym do samych wysp warstwy II u 10 osób, liczba neuronów wynosiła średnio 468 000 po stronie lewej i 405 000 po prawej, bez istotnej różnicy między półkulami [3]. Rozbieżność obu wartości może wynikać z różnicy zakresu pomiaru, bo pierwsze badanie liczyło całą warstwę, a drugie tylko wyspy.
1.5. Rys historyczny
Kora śródwęchowa przez długi czas była opisywana przede wszystkim jako łącznik między hipokampem a korą nową. Tak określali ją jeszcze w 2004 roku Fyhn i współpracownicy, a punktem odniesienia dla precyzyjnego sygnału położenia były wówczas komórki miejsca w hipokampie [13]. W tym samym badaniu neurony grzbietowo-ogonowej części MEC szczura miały stabilne, wielokrotne pola aktywności i przewidywały położenie zwierzęcia równie dokładnie jak komórki miejsca [13]. W korze zawęchowej, która dostarcza MEC sygnałów, takiej dokładności nie stwierdzono [13]. Autorzy wywnioskowali, że trwała mapa przestrzeni powstaje już wewnątrz MEC [13].
Rok później Hafting, Fyhn, Molden oraz May-Britt i Edvard Moserowie opisali w tej samej okolicy komórki siatki, których pola aktywności tworzą regularną sieć pokrywającą całe otoczenie [7]. W 2014 roku May-Britt i Edvard Moserowie otrzymali za to odkrycie Nagrodę Nobla z fizjologii lub medycyny, wspólnie z Johnem O’Keefe’em, odkrywcą komórek miejsca [14].
Równolegle przebiegał drugi ciąg ustaleń, dotyczący patologii. W 1991 roku Braak i Braak zbadali 83 mózgi osób bez otępienia i z otępieniem [8]. Rozmieszczenie złogów amyloidu okazało się mało przydatne do wyróżnienia etapów choroby [8]. Rozkład splątków neurofibrylarnych układał się natomiast w sześć stadiów [8]. Dwa pierwsze, obejmujące okolicę przejściową kory śródwęchowej, autorzy nazwali transentorhinalnymi [8].
2. Połączenia i czynność
2.1. Połączenia wejściowe
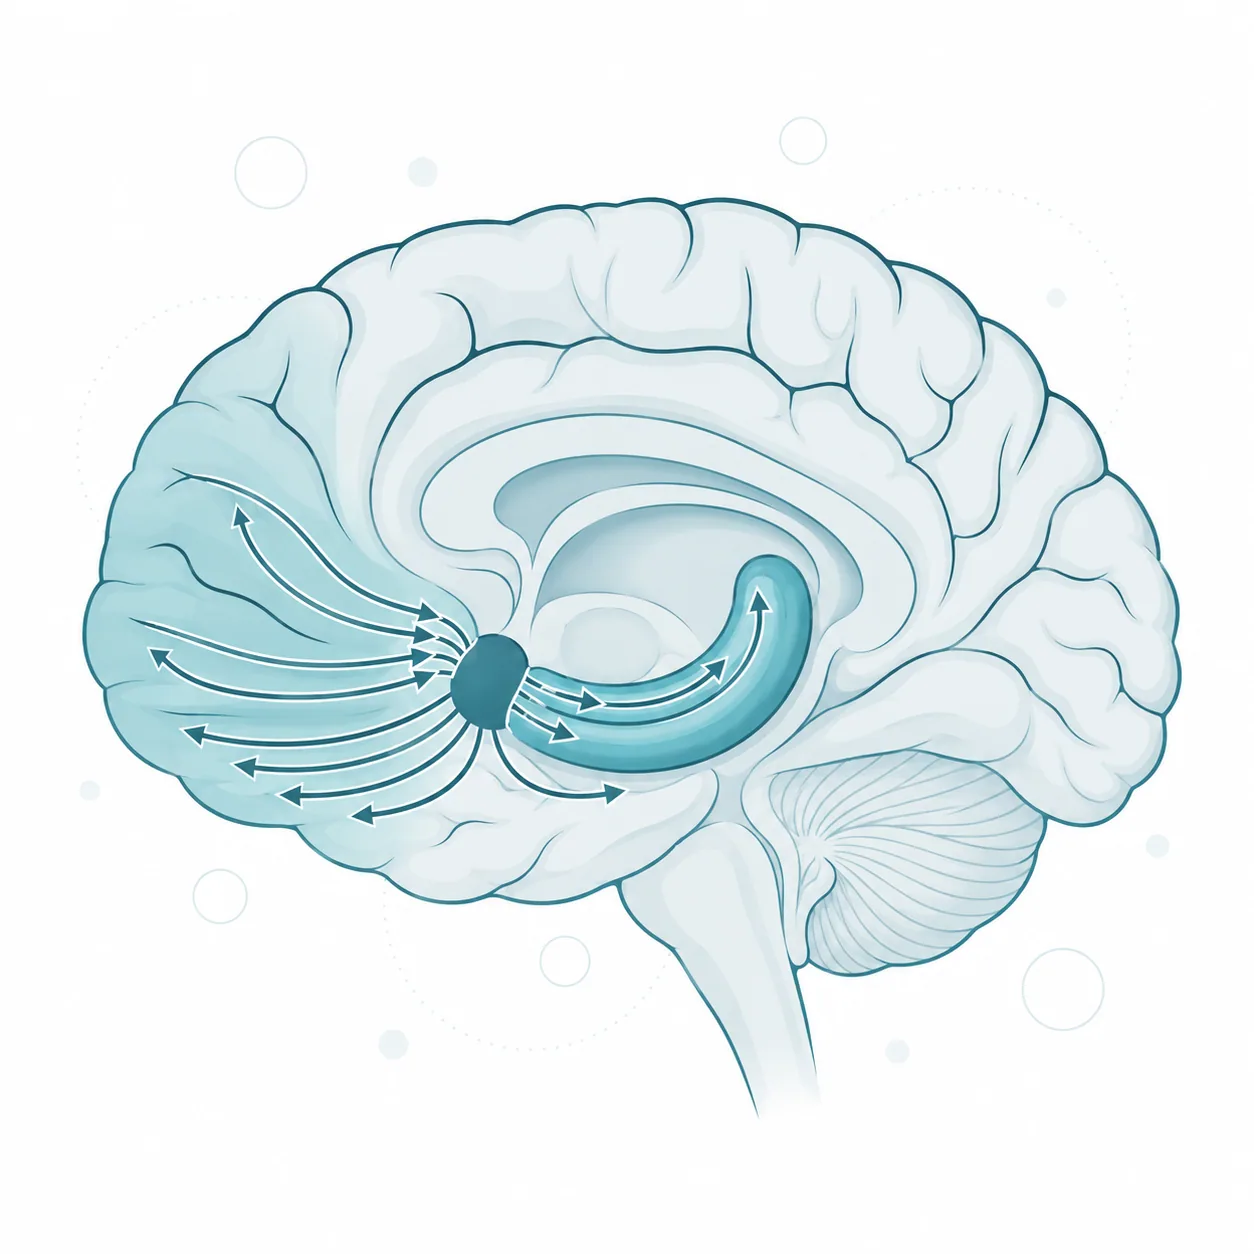
Kora śródwęchowa zbiera sygnały z wielu obszarów kory, zanim trafią one do hipokampu. Przegląd anatomii gryzoni opisuje ją jako punkt węzłowy obwodów łączących korę z hipokampem [4]. Wejścia nie rozkładają się jednak równo, bo każda z dwóch części EC ma własny zestaw źródeł.
Do części przyśrodkowej docierają sygnały z obszarów zaliczanych do tak zwanej przestrzennej domeny kory. Należą do nich przedpodkładka, przypodkładka, kora zaspleniowa i kora zawęchowa [4]. Przedpodkładka i przypodkładka to pola sąsiadujące z hipokampem, a kora zaspleniowa leży za tylnym końcem ciała modzelowatego. W badaniu na szczurach kora zawęchowa, dostarczająca MEC informacji zmysłowych, nie zawierała jeszcze neuronów o precyzyjnym kodowaniu położenia [13].
Część boczna otrzymuje wejścia o innym charakterze. Łączy się silnie z obszarami węchowymi, z wyspą, z przyśrodkową i oczodołową korą czołową oraz z korą okołowęchową [4]. Autorzy przeglądu wiążą te obszary z przetwarzaniem informacji o obiektach, z uwagą i z motywacją [4].
Trzecim źródłem wejść jest sam hipokamp. Jedna z głównych projekcji wychodzących z formacji hipokampa wraca do głębokich warstw EC. Gómez-Isla i współpracownicy nazywają tę warstwę czwartą [9], a w innych pracach określa się ją jako piątą [15]. Kora śródwęchowa leży więc zarówno na drodze sygnałów do hipokampu, jak i na ich drodze powrotnej do kory [9].
2.2. Połączenia wyjściowe
Kora śródwęchowa wysyła sygnały w dwóch kierunkach: do hipokampu i z powrotem do kory. Drogi te wychodzą z różnych warstw EC, więc uszkodzenie jednej warstwy nie przerywa wszystkich połączeń jednakowo.
Główną drogą wyjściową jest droga przeszywająca (łac. tractus perforans). Droga ta wychodzi z warstwy II EC i stanowi główne źródło pobudzających wejść do hipokampu [9]. Jej najlepiej opisaną częścią jest projekcja do zakrętu zębatego, a pozostałe włókna kierują się do innych pól formacji hipokampa [5]. Projekcja do zakrętu zębatego występuje u wszystkich zbadanych gatunków i ma u nich podobną ogólną organizację [5]. Pozwala to przenosić część wniosków z badań anatomicznych na szczurach na człowieka.
Drugą drogą jest bezpośrednia projekcja z EC do pola CA1 hipokampu, nazywana drogą skroniowo-amonową [16]. Skrót CA pochodzi od łacińskiej nazwy rogu Amona (cornu Ammonis), a CA1 to jeden z jego odcinków. Droga skroniowo-amonowa omija zatem zakręt zębaty i dostarcza do CA1 sygnał z kory bez pośrednich przełączeń [16].
Trzecia droga prowadzi z głębokich warstw EC do kory. Neurony warstwy V łączą hipokamp z rozległymi obszarami kory [15]. Tą drogą wynik przetwarzania w hipokampie wraca do kory [15].
Trzy drogi wyjściowe kory śródwęchowej różnią się miejscem początku i miejscem docelowym [5, 9, 15, 16].
| Droga | Początek w EC | Cel |
| droga przeszywająca | warstwa II | zakręt zębaty i inne pola formacji hipokampa |
| droga skroniowo-amonowa | EC, projekcja bezpośrednia | pole CA1 hipokampu |
| projekcja zwrotna do kory | warstwa V | rozległe obszary kory |
Organizacja wyjść wyjaśnia, dlaczego utrata neuronów warstwy II ma tak duże znaczenie. Przerywa ona główną drogę wejścia do hipokampu, podczas gdy projekcja zwrotna do kory wychodzi z warstwy V [9, 15].
2.3. Funkcje
2.3.1. Nawigacja przestrzenna
Nawigacja przestrzenna wymaga, aby mózg znał położenie ciała, kierunek, w którym zwrócona jest głowa, i odległość od przeszkód. W przyśrodkowej części kory śródwęchowej szczura każdą z tych informacji kodują osobne typy neuronów.
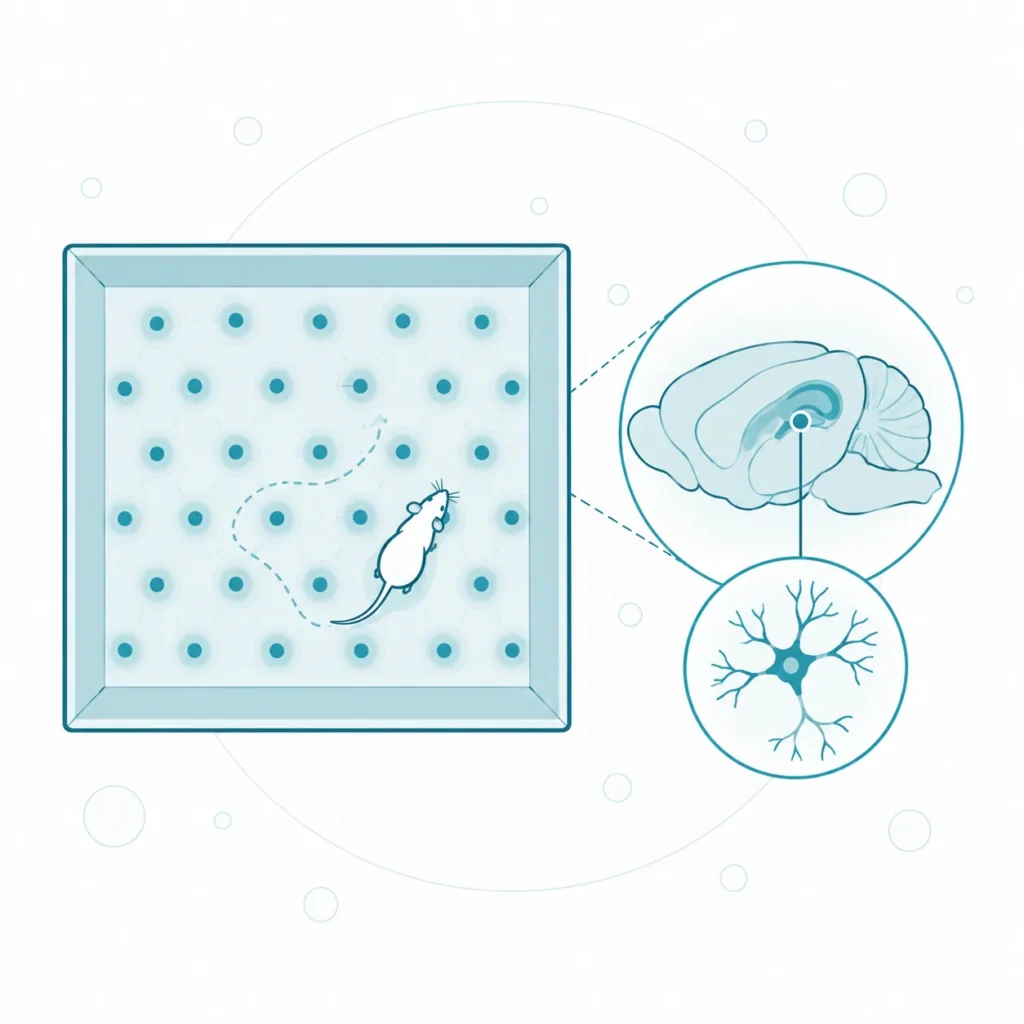
Komórki siatki, opisane w 2005 roku, są aktywne za każdym razem, gdy zwierzę znajdzie się w jednym z wierzchołków regularnej siatki trójkątów równobocznych, pokrywającej całą powierzchnię otoczenia [7]. Siatki sąsiednich komórek mają wspólną orientację i jednakowy rozstaw, ale są względem siebie przesunięte [7]. Rozstaw siatki i wielkość pojedynczych pól rosną w kierunku od grzbietowej do brzusznej części MEC [7]. Mapa jest zakotwiczona w zewnętrznych punktach orientacyjnych, ale utrzymuje się także po ich usunięciu [7]. Autorzy uznali to za przesłankę, że komórki siatki należą do mapy opartej na integracji drogi, czyli na wyliczaniu położenia z własnego ruchu [7].
Komórki granic wyładowują się, gdy zwierzę znajduje się blisko krawędzi otoczenia, na przykład ściany [18]. Stanowią mniej niż 10% lokalnej populacji neuronów i występują we wszystkich warstwach MEC oraz w przypodkładce [18]. Często sąsiadują z komórkami kierunku głowy i komórkami siatki [18]. Według autorów komórki granic mogą wiązać pola komórek siatki i komórek miejsca z geometrią otoczenia [18].
Trzy typy neuronów przestrzennych MEC różnią się tym, jaką cechę położenia kodują [7, 18].
| Typ neuronu | Kiedy jest aktywny | Rozmieszczenie |
| komórka siatki | w wierzchołkach siatki trójkątów pokrywającej otoczenie | grzbietowo-ogonowa MEC |
| komórka granic | w pobliżu krawędzi otoczenia | wszystkie warstwy MEC, przypodkładka |
| komórka kierunku głowy | przy określonym kierunku głowy | MEC, obok komórek siatki i granic |
U człowieka komórki siatki bada się pośrednio i rzadko. W czynnościowym rezonansie magnetycznym ochotnicy poruszający się w rzeczywistości wirtualnej wykazywali sygnał o sześciokrotnej symetrii względem kierunku ruchu, najsilniejszy w prawej EC [19]. Spójność tego sygnału wiązała się z lepszym wynikiem zadań pamięci przestrzennej [19]. Bezpośrednie rejestracje wykonano u chorych operowanych neurochirurgicznie z powodu padaczki, u których stwierdzono neurony o wzorze wyładowań podobnym do komórek siatki [20]. Komórki siatki opisano wcześniej u szczurów, nietoperzy i małp [20]. Według autorów rejestracji wynik ten sugeruje, że człowiek i inne ssaki posługują się homologicznym sposobem kodowania przestrzeni [20].
2.3.2. Rozpoznawanie obiektów
Obiekty w otoczeniu, takie jak przedmioty czy punkty orientacyjne, są przetwarzane głównie w bocznej części kory śródwęchowej [4, 21]. Neurony LEC szczura wykazują niewielką wybiórczość przestrzenną, dlatego zaproponowano, że ta część EC dostarcza hipokampowi informacji innej niż położenie [21].
Deshmukh i Knierim sprawdzili tę hipotezę, rejestrując neurony obu części EC u szczurów eksplorujących otwartą przestrzeń z rozmieszczonymi przedmiotami [21]. Neurony LEC wyładowywały się wybiórczo w określonych miejscach względem przedmiotów [21]. Neurony MEC reagowały na obecność przedmiotów słabo [21]. Autorzy uznali ten wynik za pierwsze bezpośrednie wykazanie podwójnej dysocjacji między wejściami z LEC i MEC do hipokampu [21].
Wynik ten zgadza się z anatomią połączeń. LEC łączy się z korą okołowęchową, obszarami węchowymi i korą czołową, czyli z obszarami związanymi z informacją o obiektach, uwagą i motywacją [4]. U człowieka odpowiednikiem LEC jest przednio-boczna część EC [11]. Ta część jest więc najbardziej prawdopodobnym miejscem przetwarzania informacji o obiektach w mózgu człowieka. Wniosek ten opiera się jednak na połączeniach czynnościowych, a nie na rejestracjach pojedynczych neuronów [11].
2.3.3. Czas i pamięć epizodyczna
Pamięć epizodyczna, czyli pamięć zdarzeń z własnego życia, wymaga powiązania treści zdarzenia z miejscem i z chwilą, w której nastąpiło. Komórki siatki i neurony LEC reagujące na przedmioty opisują miejsce i treść zdarzenia, a do pełnego zapisu potrzebna jest jeszcze informacja o czasie.
Tsao i współpracownicy rejestrowali aktywność neuronów u szczurów swobodnie poszukujących pokarmu [17]. Informacja o czasie była silnie zakodowana w stanie całej populacji neuronów LEC, w skali od sekund do godzin [17]. Podobnie wyraźnego kodowania czasu nie stwierdzono w MEC ani w polach CA3 i CA1 hipokampu [17]. Gdy zadanie wymuszało powtarzanie bardzo podobnych prób, kodowanie upływu czasu między próbami słabło, a kodowanie czasu od początku próby się poprawiało [17].
Autorzy wywnioskowali, że populacje neuronów LEC reprezentują czas przez kodowanie samego doświadczenia [17]. Według ich hipotezy hipokamp łączy tę informację z sygnałami przestrzennymi z MEC i zapisuje jednolity ślad tego, co, gdzie i kiedy się wydarzyło [17]. Wynik dotyczy szczurów, a jego przeniesienie na człowieka wymaga osobnych badań.
2.3.4. Podtrzymywanie aktywności neuronów
Pamięć robocza, czyli utrzymywanie informacji przez krótki czas bez jej utrwalania, wymaga neuronów, które pozostają aktywne po ustaniu bodźca. Najczęściej przyjmowane wyjaśnienie tego zjawiska zakłada krążenie pobudzenia w sieciach połączonych neuronów [15].
Egorov i współpracownicy opisali w korze śródwęchowej mechanizm działający wewnątrz pojedynczej komórki [15]. W skrawkach kory śródwęchowej szczura neurony warstwy V odpowiadały na kolejne bodźce stopniowymi zmianami częstotliwości wyładowań, które po każdym bodźcu pozostawały stabilne [15]. Poziom aktywności można było podwyższać lub obniżać zależnie od rodzaju wejścia, a bodźce zakłócające go nie zmieniały [15]. Zjawisko wymagało pobudzenia cholinergicznych receptorów muskarynowych, czyli receptorów acetylocholiny, i zależało od prądu kationowego wrażliwego na jony wapnia [15].
Autorzy uznali tę zdolność za elementarny mechanizm pamięci roboczej [15]. Ponieważ obserwację wykonano w skrawkach mózgu szczura, jej udział w pamięci roboczej człowieka pozostaje hipotezą. Wynik ten tłumaczy jednak, dlaczego czynność EC może zależeć od przekaźnictwa cholinergicznego.
3. Uszkodzenie i patologia
3.1. Następstwa uszkodzenia
Uszkodzenie kory śródwęchowej przerywa przepływ informacji między korą a hipokampem, więc jego skutki ujawniają się przede wszystkim w pamięci i orientacji w przestrzeni. Wiedza o tych skutkach pochodzi z dwóch źródeł: z doświadczeń, w których u zwierząt niszczy się wybrane drogi EC, oraz z badań chorych, u których objętość EC jest zmniejszona.
Remondes i Schuman uszkadzali u szczurów wybiórczo drogę skroniowo-amonową, czyli bezpośrednią projekcję z EC do pola CA1 [16]. Zwierzęta uczyły się odnajdywać ukrytą platformę w basenie z wodą. Po 24 godzinach zarówno zwierzęta kontrolne, jak i zwierzęta z uszkodzeniem pamiętały położenie platformy [16]. Po czterech tygodniach pamięć zachowały tylko zwierzęta kontrolne [16].
Kolejne doświadczenie rozstrzygnęło, na którym etapie droga ta jest potrzebna. Uszkodzenie wykonane po nauce, gdy pamięć krótkotrwała była już potwierdzona, również znosiło pamięć długotrwałą [16]. Uszkodzenie opóźnione o trzy tygodnie nie miało już takiego skutku [16]. Autorzy wywnioskowali, że ciągły dopływ sygnału z kory drogą skroniowo-amonową jest potrzebny do konsolidacji, czyli utrwalania długotrwałej pamięci przestrzennej [16]. Uszkodzenie tej drogi nie zaburzało więc pamięci krótkotrwałej, lecz jej przenoszenie do trwałego zapisu [16].
U ludzi skutki zaniku EC opisano w badaniu chorych z łagodnymi zaburzeniami poznawczymi i osób zdrowych z grupy kontrolnej [22]. Uczestnicy wykonywali w rzeczywistości wirtualnej zadanie integracji drogi, czyli odtwarzania położenia na podstawie własnego ruchu. Błędy w tym zadaniu były tym większe, im mniejsza była objętość całej EC i jej części tylno-przyśrodkowej [22]. Zależność ta odpowiada roli tylno-przyśrodkowej EC jako ludzkiego odpowiednika MEC, w której u szczurów działają komórki siatki [7, 11].
3.2. Udział kory śródwęchowej w chorobach
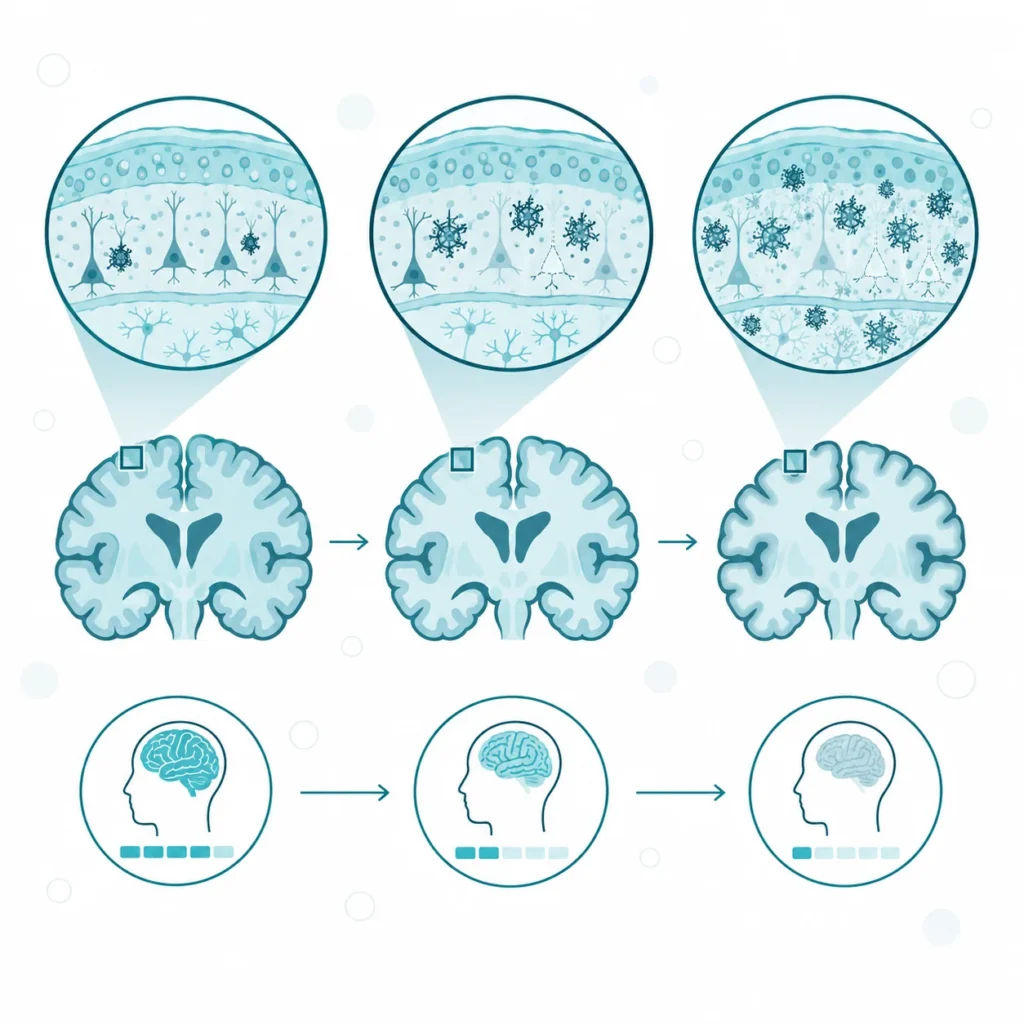
W chorobie Alzheimera zmiany kory śródwęchowej układają się w ustaloną kolejność stadiów [8]. W klasyfikacji Braaków stadia I i II oznaczają łagodne lub ciężkie zmiany neurofibrylarne w warstwie zwanej pre-alfa okolicy przejściowej EC [8]. W stadiach III i IV, nazwanych limbicznymi od układu limbicznego, zmiany obejmują tę samą warstwę zarówno w okolicy przejściowej, jak i w EC właściwej, a w niewielkim stopniu także pole CA1 [8]. Dopiero w stadiach V i VI dochodzi do zniszczenia niemal wszystkich obszarów kojarzeniowych kory nowej [8].
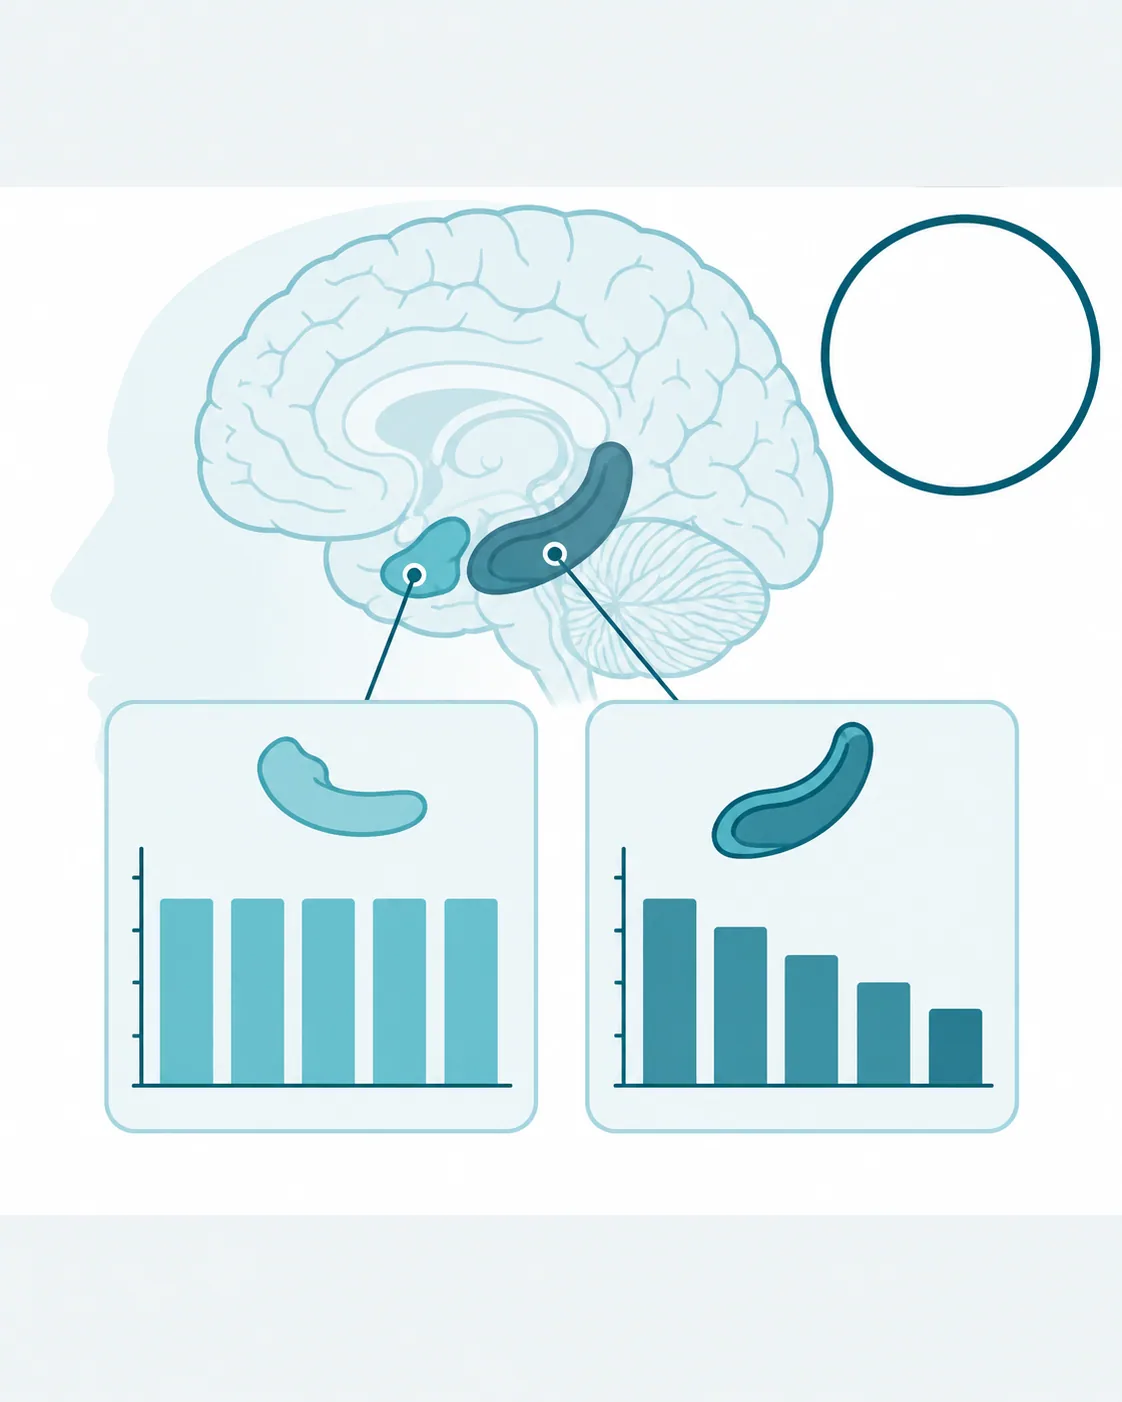
Zmianom neurofibrylarnym towarzyszy utrata neuronów. W badaniu stereologicznym 20 osób chorzy z najłagodniejszym klinicznie wykrywalnym otępieniem mieli w EC o 32% mniej neuronów niż osoby bez zaburzeń poznawczych [9]. W warstwie II ubytek wynosił 60%, a w warstwie IV (w numeracji autorów, czyli w warstwie otrzymującej wejście zwrotne z hipokampu) 40% [9]. U chorych z ciężkim otępieniem warstwa II straciła około 90% neuronów, a warstwa IV około 70% [9]. Liczba neuronów była odwrotnie proporcjonalna do liczby splątków i blaszek neurytycznych, ale nie wiązała się istotnie z liczbą blaszek rozlanych [9]. W chorobie Alzheimera brodawki na powierzchni EC zanikają wskutek powstawania splątków i śmierci neuronów [10]. W rezonansie magnetycznym wykonanym po śmierci przy polu 7 T średnia wysokość brodawek wynosiła 0,13 mm w grupie kontrolnej i 0,11 mm w łagodnej chorobie Alzheimera (10 przypadków) [10]. Ocena brodawek była tym gorsza, im wyższe było stadium Braaków [10].
Zaburzenia czynności EC stwierdzano u osób z grupy ryzyka na wiele lat przed możliwym początkiem choroby [23]. Młodzi dorośli, nosiciele allelu ε4 genu apolipoproteiny E (APOE), który zwiększa ryzyko choroby Alzheimera, mieli w czynnościowym rezonansie słabszą reprezentację siatkopodobną i inny sposób poruszania się w wirtualnej arenie [23]. Obie zmiany wiązały się z gorszym wynikiem pamięci przestrzennej [23]. Wyższa aktywność hipokampu u tych osób może według autorów odzwierciedlać mechanizm wyrównawczy [23]. W badaniu 100 dorosłych w średnim wieku bez objawów gorsza integracja drogi wiązała się zarówno z dziedzicznym, jak i fizjologicznym ryzykiem choroby, bez podobnego związku z pamięcią epizodyczną [24]. W podgrupie zbadanej rezonansem o polu 7 T zaburzenie to współwystępowało ze zmienionym sygnałem czynnościowym w tylno-przyśrodkowej części EC [24].
W padaczce skroniowej niektóre wcześniejsze opisy wskazywały na wybiórczą utratę neuronów warstwy III EC [25]. W badaniu ilościowym 26 chorych ze stwardnieniem hipokampu, 9 chorych z padaczką skroniową wywołaną zmianą ogniskową i 8 osób z grupy kontrolnej średnia gęstość neuronów EC nie różniła się jednak istotnie między grupami [25]. Autorzy nie potwierdzili stałego wzorca uszkodzenia EC, który odróżniałby stwardnienie hipokampu od padaczki z innych przyczyn [25].
W schizofrenii dane są niespójne. W badaniu 6 chorych i 16 osób z grupy kontrolnej opisano nieprawidłowe wpuklenia powierzchni, zaburzenie układu warstw, przemieszczenie neuronów i ich niedobór w warstwach powierzchownych [26]. Autorzy uznali te zmiany za ślad zaburzonego rozwoju mózgu [26]. W badaniu 14 chorych i 14 osób z grupy kontrolnej, obejmującym rostralne dwie trzecie EC, nie stwierdzono dezorganizacji warstw ani istotnych różnic liczby i gęstości neuronów [27]. W dwóch przednich polach liczba neuronów była mniejsza o 12–18%, co autorzy uznali za możliwą łagodną nieprawidłowość wymagającą sprawdzenia na większej próbie [27].
Trzy choroby różnią się zarówno rodzajem zmian w korze śródwęchowej, jak i spójnością danych [9, 25–27].
| Choroba | Zmiana w EC | Rodzaj danych | Spójność wyników |
| choroba Alzheimera | splątki neurofibrylarne od stadiów I–II, utrata neuronów warstwy II | badania pośmiertne, obrazowanie | wyniki zgodne |
| padaczka skroniowa | opisy utraty neuronów warstwy III | materiał operacyjny | badanie ilościowe nie potwierdziło stałego wzorca |
| schizofrenia | zaburzenia układu warstw, przemieszczenie neuronów | badania pośmiertne | wyniki sprzeczne |
Spośród tych trzech chorób tylko w chorobie Alzheimera uszkodzenie EC jest stałym i dobrze udokumentowanym elementem obrazu choroby [8, 9].
3.3. Ocena i obrazowanie
Korę śródwęchową u człowieka ocenia się trzema rodzajami metod: pomiarem budowy, obrazowaniem złogów białka tau i badaniem czynności. Opisane wyniki pochodzą z badań grup chorych i osób z grup kontrolnych.
Pomiar objętości EC w rezonansie magnetycznym porównano z pomiarem objętości hipokampu u osób starszych zdrowych, u chorych zgłaszających trudności poznawcze bez otępienia i u chorych z bardzo łagodną chorobą Alzheimera [28]. Obie grupy chorych miały mniejszą objętość EC niż osoby zdrowe, ale nie różniły się nią między sobą [28]. Spośród 23 chorych bez otępienia, u których dostępna była obserwacja, 12 zachorowało na chorobę Alzheimera w ciągu 12–77 miesięcy [28]. Osoby te lepiej odróżniała od pozostałych objętość EC niż objętość hipokampu [28].
Pozytonowa tomografia emisyjna ze znacznikiem wiążącym białko tau pokazuje rozmieszczenie splątków za życia. W przekrojowym badaniu 114 osób z użyciem znacznika drugiej generacji złogi tau stwierdzano najpierw, w grupie osób bez zaburzeń poznawczych, ale ze złogami amyloidu, w przedniej części przyśrodkowego płata skroniowego, czyli w EC, polu Brodmanna 35 i przednim hipokampie [29]. W grupach bardziej zaawansowanych, od łagodnych zaburzeń poznawczych do choroby Alzheimera, złogi obejmowały także części tylne, a ich ilość wiązała się z gorszymi wynikami testów poznawczych [29].
Czynność EC ocenia się zadaniami nawigacyjnymi. W badaniu chorych z łagodnymi zaburzeniami poznawczymi test integracji drogi w rzeczywistości wirtualnej odróżniał chorych z biomarkerami choroby Alzheimera w płynie mózgowo-rdzeniowym od chorych bez tych biomarkerów z polem pod krzywą 0,90 [22]. Najlepszy ze standardowych testów poznawczych osiągnął w tym porównaniu 0,57 [22]. Grupa z oznaczonymi biomarkerami liczyła jednak tylko 26 osób [22].
Trzy metody oceny kory śródwęchowej mierzą różne właściwości tej struktury [22, 28, 29].
| Metoda | Co mierzy | Najważniejszy wynik |
| wolumetria MRI | objętość EC | pomaga ocenić ryzyko chorób neurodegeneracyjnych u chorych bez otępienia |
| PET z ligandem tau | rozmieszczenie złogów tau | złogi w EC występują już w fazie przedklinicznej |
| test integracji drogi w rzeczywistości wirtualnej | czynność nawigacyjną | wysoka trafność odróżniania chorych z biomarkerami i bez nich |
Metody te opisują różnice między grupami badanych. Wynik u pojedynczej osoby nie jest rozpoznaniem choroby Alzheimera.
3.4. Czynniki wpływające na stan struktury
Stan kory śródwęchowej zależy od czynników niemodyfikowalnych, przede wszystkim od wieku, oraz od czynników związanych ze stylem życia i z działaniem hormonów stresu. Dane o obu grupach czynników pochodzą głównie z badań obserwacyjnych.
Wiek zmienia EC słabiej niż wiele innych obszarów mózgu [30]. W pięcioletnim badaniu podłużnym zdrowych dorosłych hipokamp, jądro ogoniaste, móżdżek i kora kojarzeniowa wyraźnie się zmniejszały, a zmiana objętości EC była minimalna [30]. Tempo zaniku EC rosło jednak z wiekiem uczestników [30]. Wyniki dotyczące liczby neuronów są niespójne. U osób zmarłych bez zaburzeń poznawczych liczba neuronów EC była podobna w wieku od 60 do 90 lat [9]. W innym badaniu, obejmującym osoby w wieku od 23 do 85 lat, starsze osoby miały mniejszą powierzchnię brodawek i mniej neuronów w wyspach warstwy II [3]. Oba badania pośmiertne były przekrojowe, porównywały więc różne osoby, a nie te same osoby w czasie.
Z grubością EC wiąże się wydolność krążeniowo-oddechowa. W badaniu przekrojowym 598 osób w średnim i starszym wieku lepsza wydolność wiązała się z większą grubością EC i większą objętością hipokampu, po uwzględnieniu wieku, płci, wykształcenia i masy ciała [31]. Subiektywna jakość snu sama nie wiązała się z budową tych struktur [31]. U osób ze złą jakością snu związek między wydolnością a grubością EC był jednak słabszy [31]. Charakter badania nie pozwala rozstrzygnąć, czy wydolność chroni EC, czy osoby z lepiej zachowanym mózgiem są sprawniejsze.
Na czynność EC wpływa kortyzol, główny hormon odpowiedzi na stres. Kora śródwęchowa zawiera receptory glikokortykoidowe, czyli białka, przez które kortyzol zmienia działanie komórek [32]. W badaniu kontrolowanym placebo 39 zdrowych mężczyzn wykonywało zadanie integracji drogi w rezonansie magnetycznym po podaniu kortyzolu albo placebo [32]. Kortyzol wyraźnie pogarszał wykonanie zadania [32]. Reprezentacja siatkopodobna w prawej EC, widoczna po placebo w pierwszej sesji, po kortyzolu słabła [32]. Autorzy uznali, że zaburzenie czynności komórek siatki może tłumaczyć wpływ stresu na nawigację [32]. Badanie objęło wyłącznie mężczyzn i dotyczyło działania podanego hormonu, a nie skutków stresu przewlekłego.
4. Na co warto zwrócić uwagę
Określenie kory śródwęchowej jako „GPS mózgu” upraszcza wyniki badań na zwierzętach. Mapa komórek siatki jest zakotwiczona w punktach orientacyjnych, ale utrzymuje się po ich usunięciu, a jej udział w integracji drogi autorzy odkrycia przedstawili jako wniosek, nie jako bezpośredni pomiar [7]. Położenie kodują w MEC także komórki granic i komórki kierunku głowy, a precyzyjny sygnał położenia występuje również w hipokampie [13, 18]. Część boczna EC przetwarza ponadto obiekty i upływ czasu, czyli informacje, których odbiornik nawigacji satelitarnej nie zawiera [17, 21].
Dowody na istnienie komórek siatki u człowieka mają dwa źródła o różnej sile. Rejestracje pojedynczych neuronów wykonano u chorych leczonych neurochirurgicznie z powodu padaczki, czyli w szczególnej grupie badanych [20]. Sygnał w czynnościowym rezonansie magnetycznym jest natomiast pomiarem pośrednim. Autorzy przewidzieli go na podstawie zgodnej orientacji siatek u szczurów, a nie zarejestrowali samych komórek [19]. Oba źródła zgodnie wskazują na kodowanie siatkowe w ludzkiej EC, ale nie dostarczają takiej szczegółowości, jaką dają badania na gryzoniach.
Zadania nawigacyjne przedstawia się jako możliwy wczesny wskaźnik choroby Alzheimera. Dotychczasowe wyniki pochodzą jednak z badań przekrojowych na niewielkich grupach, a test integracji drogi odróżniał chorych z biomarkerami od chorych bez nich w grupie 26 osób [22]. Różnice u nosicieli allelu ε4 i u osób w średnim wieku z czynnikami ryzyka dotyczą średnich grupowych [23, 24]. Wynik takiego zadania u konkretnej osoby nie przesądza więc o rozpoznaniu ani o rokowaniu.
Zdanie, że choroba Alzheimera zaczyna się w korze śródwęchowej, wymaga doprecyzowania. W stadiach I i II Braaków zmiany obejmują okolicę przejściową, leżącą na granicy EC z sąsiednią korą, a EC właściwa dołącza w stadiach III i IV [8]. W obrazowaniu białka tau najwcześniejsze złogi obejmują łącznie EC, pole Brodmanna 35 i przedni hipokamp [29]. Ocena zaburzeń pamięci i orientacji w przestrzeni oraz decyzja o badaniach należą do lekarza, najczęściej neurologa.