
1. Charakterystyka
1.1. Definicja klasy
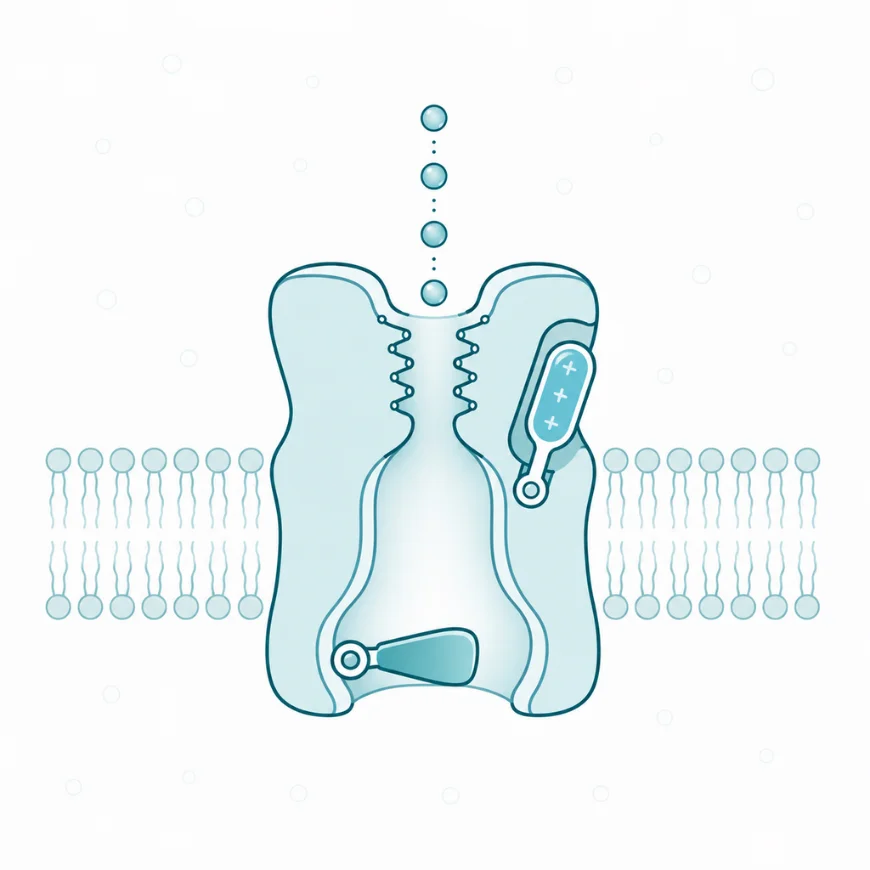
Kanały jonowe (ang. ion channels) to integralne białka błonowe należące do białek transportu przezbłonowego, które tworzą w dwuwarstwie lipidowej wypełniony wodą por przewodzący jony. Jon płynie przez otwarty kanał biernie, czyli zgodnie ze swoim gradientem elektrochemicznym, na który składają się różnica stężeń i różnica potencjału elektrycznego po obu stronach błony [1]. Kanał nie dostarcza energii, tylko otwiera drogę przez hydrofobowe wnętrze błony, które bez niego zatrzymuje jony. O tym, kiedy droga jest otwarta, decyduje bramka, czyli fragment białka zamykający por w jednej konformacji i otwierający go w drugiej [1]. Kryterium przynależności do klasy jest funkcjonalne: białko przewodzi jony zgodnie z gradientem i steruje tym przepływem bramką.
Kanały jonowe myli się najczęściej z pompami jonowymi i przenośnikami, które również uczestniczą w transporcie przez błony. Pompa przenosi jony wbrew gradientowi, zużywając energię adenozynotrifosforanu (ATP), głównego nośnika energii w komórce, albo energię gradientu innego jonu, i ma co najmniej dwie bramki, które nie mogą być otwarte jednocześnie [1]. Kanałowi wystarcza jedna bramka, dlatego przez pojedynczy otwarty kanał przechodzą dziesiątki milionów jonów na sekundę, a przez pompę o kilka rzędów wielkości mniej [1]. Kryterium różnicującym nie jest rodzaj przenoszonego jonu ani budowa białka, lecz zdolność do transportu pod górę gradientu. Białko, które ją ma, jest pompą, a białko, które jej nie ma, jest kanałem [1].
Zakres klasy obejmuje kanały błony komórkowej i kanały błon organelli, kanały otwierane zmianą napięcia i kanały otwierane cząsteczkami sygnałowymi. Należą do niej także receptory, w których miejsce wiązania neuroprzekaźnika i por są częściami jednego białka. Klasa obejmuje też nadrodzinę kanałów bramkowanych napięciem i ich krewnych, jedną z najliczniejszych grup białek przekazujących sygnał [2]. Wśród tych białek liczniejsze od niej są tylko receptory sprzężone z białkami G i kinazy białkowe [2].
Wszystkie rodziny kanałów łączy ten sam plan działania: por, filtr selektywności i bramka sterowana bodźcem. Znajomość tego planu wyjaśnia, dlaczego lek może blokować kanał tylko w określonym stanie i dlaczego choroby tak różne jak padaczka, mukowiscydoza i wrodzone zaburzenia rytmu serca mają wspólny mechanizm. W kanałach sodowych pozwala też przewidzieć skutek mutacji: warianty w pętli porowej częściej wyłączają kanał, a warianty w miejscach inaktywacji częściej go wzmacniają [3].
1.2. Podział i kryteria klasyfikacji
Kanały jonowe klasyfikuje się według trzech niezależnych kryteriów: bodźca otwierającego bramkę, jonów przepuszczanych przez filtr i budowy białka. Każde kryterium daje inny podział, a konkretny kanał zajmuje miejsce w każdym z nich. Kanał potasowy bramkowany napięciem to w tym ujęciu także kanał selektywny dla potasu i tetramer podjednostek o sześciu segmentach przezbłonowych.
Według bodźca bramkującego wyróżnia się kanały bramkowane napięciem, ligandem zewnątrzkomórkowym, ligandem wewnątrzkomórkowym, bodźcem mechanicznym i temperaturą. Ligandem zewnątrzkomórkowym jest zwykle neuroprzekaźnik albo ATP uwolnione z sąsiedniej komórki [4]. Ligandem wewnątrzkomórkowym bywają cykliczne nukleotydy, jony wapnia albo nukleotydy adeninowe odzwierciedlające stan energetyczny komórki [2, 5, 6]. Kanały mechanowrażliwe otwiera rozciągnięcie lub ucisk błony [7], a kanały termowrażliwe zmiana temperatury w określonym zakresie [8]. Podział ten nie jest rozłączny, bo część kanałów odpowiada na dwa bodźce naraz, na przykład na napięcie i na cykliczny nukleotyd [9].
Według selektywności wyróżnia się kanały sodowe, potasowe, wapniowe i chlorkowe oraz kanały kationowe nieselektywne, które przepuszczają kilka rodzajów kationów. Selektywność ma charakter względny, a nie bezwzględny: otwarty kanał potasowy przepuszcza potas około tysiąc razy chętniej niż sód [1]. Kanały nieselektywne, takie jak otwierane cyklicznymi nukleotydami, słabo odróżniają jony metali alkalicznych i przepuszczają również wapń [5].
Według budowy decyduje liczba segmentów przezbłonowych w podjednostce i liczba podjednostek tworzących por. Najczęstszy układ to cztery podjednostki albo cztery powtórzone domeny jednego łańcucha ułożone wokół wspólnego poru, czyli tetramer lub pseudotetramer [2, 10]. Receptory z pętlą cysteinową są pentamerami, a receptory P2X otwierane przez ATP i kanały Piezo są trimerami [4, 11, 12]. Białka rodziny CLC (od ang. chloride channel), obejmującej kanały i przenośniki chlorkowe, są dimerami z osobną drogą dla jonów w każdej podjednostce [13]. Kryterium budowy najlepiej odzwierciedla pokrewieństwo ewolucyjne, dlatego to ono wyznacza nazwy rodzin kanałów.
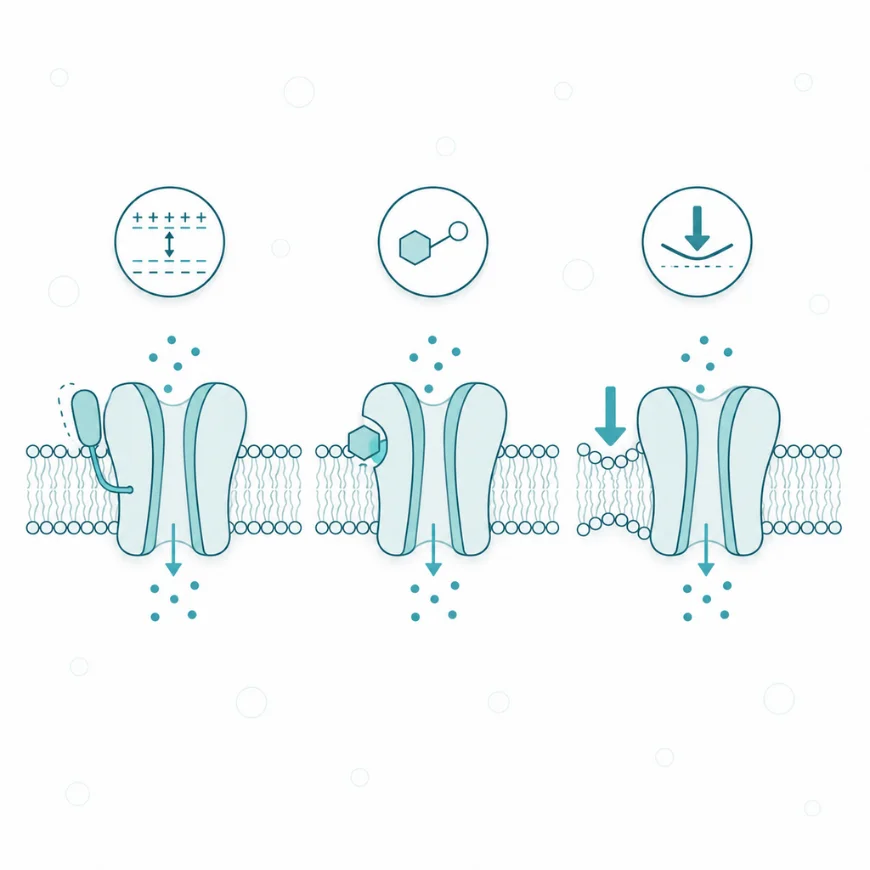
Trzy sposoby otwierania — zmiany napięcia, ligand i bodziec fizyczny — prowadzą do tego samego skutku: przepływu jonów przez ten sam typ poru.
1.3. Odróżnienie od klas sąsiednich
Granica między kanałami a pompami jest w budowie mniej ostra niż w funkcji. W rodzinie białek CLC część członków działa jako kanały chlorkowe, a część jako wymienniki chlorku na proton, choć struktury obu grup są bardzo podobne [13]. U ssaków ClC-1, ClC-2, ClC-Ka i ClC-Kb są kanałami błony komórkowej, a białka od ClC-3 do ClC-7 wymiennikami w błonach endosomów i lizosomów [13]. Odwrotny przypadek stanowi białko CFTR, czyli regulator przewodnictwa przezbłonowego w mukowiscydozie (ang. cystic fibrosis transmembrane conductance regulator). Białko to wchodzi w skład nadrodziny przenośników ABC (od ang. ATP-binding cassette), które przenoszą substancje przez błony kosztem ATP, a mimo to działa jako kanał anionowy [14]. Spośród tysięcy znanych białek ABC jest ono jedynym, o którym wiadomo, że pracuje jako kanał jonowy [1]. Hipoteza zakłada, że CFTR powstał z przenośnika przez utratę albo rozprzęgnięcie jednej z jego dwóch bramek [1].
Tę samą zasadę ilustruje palitoksyna, toksyna morska, która wiąże się z pompą sodowo-potasową i rozprzęga jej dwie bramki [1]. Gdy obie bramki bywają otwarte jednocześnie, pompa zachowuje się jak kanał kationowy i przepuszcza ponad milion jonów sodu na sekundę [1]. O przynależności do klasy rozstrzyga więc sposób sterowania bramkami, a nie pochodzenie białka.
Poza klasą pozostają akwaporyny, białka kanałów wodnych, które przepuszczają cząsteczki wody, a jonów nie przewodzą. Poza nią leżą również złącza szczelinowe zbudowane z koneksyn, ponieważ łączą cytoplazmę dwóch sąsiednich komórek, a nie wnętrze komórki z płynem zewnątrzkomórkowym. Kanały uwalniające wapń z siateczki śródplazmatycznej, czyli receptory rianodynowe i receptory trifosforanu inozytolu, spełniają kryterium klasy. Ich znaczenie polega jednak głównie na uwalnianiu wapnia jako sygnału wewnątrzkomórkowego, czyli na sygnalizacji wapniowej.
Receptory jonotropowe stanowią podklasę kanałów bramkowanych ligandem zewnątrzkomórkowym, w której neuroprzekaźnik otwiera por bezpośrednio. Od receptorów metabotropowych odróżnia je droga sygnału: nie przechodzi on przez białko G ani przekaźnik wtórny, lecz od razu zmienia przepływ jonów. Dzięki temu receptory jonotropowe pośredniczą w szybkim przekaźnictwie pobudzającym i hamującym [11].
1.4. Rys historyczny
Do połowy lat siedemdziesiątych dwudziestego wieku kanały jonowe znano wyłącznie z pomiarów prądów płynących przez całą błonę. Hodgkin i Huxley opisali w 1952 roku prąd sodowy, jego selektywność, aktywację zależną od napięcia i szybką inaktywację, ale białko niosące ten prąd pozostawało nieznane [15]. Pierwsze rozstrzygnięcie przyniosła metoda pomiaru. W 1976 roku Neher i Sakmann zarejestrowali prądy płynące przez pojedyncze kanały w błonie odnerwionych włókien mięśniowych żaby [16]. Prąd błonowy okazał się sumą skokowych otwarć i zamknięć pojedynczych cząsteczek [1].
W 1984 roku zespół Nody poznał sekwencję kanału sodowego z narządu elektrycznego węgorza elektrycznego. Białko liczyło 1820 reszt aminokwasowych i zawierało cztery powtórzone domeny, a w każdej z nich autorzy wskazali odcinek bogaty w reszty naładowane dodatnio jako prawdopodobny element bramkowania [10]. Trzecie rozstrzygnięcie dotyczyło selektywności. Jon potasu jest większy od jonu sodu, a mimo to kanał potasowy przepuszcza potas i zatrzymuje sód [17]. W 1998 roku Doyle, MacKinnon i współpracownicy rozwiązali strukturę bakteryjnego kanału potasowego KcsA z Streptomyces lividans. Filtr o długości 12 angströmów wyściełają w nim atomy tlenu grup karbonylowych, rozmieszczone tak, by koordynować jon potasu, a nie mniejszy jon sodu [17].
2. Cechy wspólne i mechanizm
2.1. Budowa
Wspólnym elementem wszystkich kanałów jonowych jest domena porowa, czyli część białka otaczająca drogę jonów przez błonę. W kanałach potasowych każda z czterech podjednostek wnosi do poru dwie helisy przezbłonowe połączone pętlą porową, zwaną pętlą P [6, 17]. Pętle P czterech podjednostek schodzą się w środku i tworzą filtr selektywności, najwęższy odcinek poru. W kanale KcsA filtr ma długość około 12 angströmów, a pod nim leży szersza jama wypełniona wodą [17]. Jama pozwala jonowi zachować otoczkę wodną w środku dwuwarstwy lipidowej, gdzie jego przejście byłoby energetycznie najtrudniejsze [17].
Bramka aktywacyjna leży w wielu kanałach po stronie cytoplazmy, tam gdzie wewnętrzne helisy czterech podjednostek krzyżują się i zaciskają por [1]. Do domeny porowej przyłączone są domeny regulatorowe, które odbierają bodziec, czyli czujniki napięcia albo miejsca wiązania cząsteczek sygnałowych [2]. W kanałach bramkowanych napięciem czujnik tworzą segmenty S1–S4 każdej podjednostki lub domeny, a por segmenty S5 i S6 z łączącą je pętlą P [15]. Segment S4 zawiera skupione reszty aminokwasowe naładowane dodatnio, które mogą przesuwać się w polu elektrycznym błony [10].
Kanały sodowe i wapniowe bramkowane napięciem mają cztery takie domeny połączone w jednym łańcuchu białkowym [10]. Kanały potasowe składają się natomiast z czterech osobnych podjednostek [17, 18]. Z tej budowy wynika podział pracy w obrębie poru. Filtr decyduje o tym, jakie jony przechodzą, a bramka o tym, kiedy przechodzą, więc ten sam typ poru może być sterowany bardzo różnymi czujnikami [1].
2.2. Mechanizm działania
W stanie spoczynku bramka kanału jest zamknięta, a po obu stronach błony utrzymują się różnice stężeń jonów wytworzone przez pompy. Gradient elektrochemiczny istnieje stale, a przepływ jonów zależy od tego, czy bramka jest otwarta [1]. Kierunek przepływu wyznaczają ładunek jonu, różnica stężeń i napięcie błony, dlatego ten sam otwarty kanał może przepuszczać jony do komórki albo z komórki [1].
Bodziec działa najpierw na domenę regulatorową. W kanale bramkowanym napięciem depolaryzacja błony przesuwa naładowany dodatnio segment S4 ku zewnętrznej stronie błony [15]. Ruch czujnika przenosi się na wewnętrzne helisy poru, które rozchodzą się i otwierają bramkę po stronie cytoplazmy [1]. W kanale bramkowanym ligandem tę samą pracę wykonuje energia wiązania cząsteczki sygnałowej. W receptorze P2X na przykład ATP wiąże się w trzech miejscach na styku podjednostek i przestawia ich wzajemne położenie [4].
Po otwarciu bramki jony wchodzą do jamy poru, a następnie do filtru selektywności. Jon potasu w roztworze otacza woda, więc przed wejściem do filtru musi ją utracić, a to wymaga energii [1]. Filtr oddaje tę energię z powrotem, ponieważ osiem atomów tlenu grup karbonylowych układa się wokół jonu tak jak cząsteczki wody w jego otoczce [1]. Sztywna budowa filtru nie pozwala mu zacisnąć się wokół mniejszego jonu sodu, dlatego sód pozostaje przed filtrem [17]. W filtrze stoją jeden za drugim dwa jony potasu, a ich wzajemne odpychanie przesuwa kolejne jony dalej [17]. W efekcie otwarty kanał potasowy przewodzi setki milionów jonów na sekundę, prawie tak szybko, jak jony docierają do jego ujścia [1].
Stan otwarty trwa zwykle kilka milisekund, a przejścia bramki zachodzą rzędu stu razy na sekundę [1]. Wiele kanałów zamyka się też mimo trwającego bodźca, czyli ulega inaktywacji. W kanałach potasowych Shaker szybką inaktywację wywołuje odcinek końca aminowego białka, który jako domena cytoplazmatyczna wchodzi do otwartego poru i go zatyka [19]. Mechanizm ten nazywa się inaktywacją typu N albo tak zwanym modelem kuli i łańcucha, bo zatyczka jest połączona z resztą białka elastycznym odcinkiem. Inaktywacja typu C przebiega w samym filtrze: rozerwanie wiązania wodorowego mocującego filtr do helisy porowej pozwala mu odchylić się na zewnątrz, a poszerzony wylot filtru przestaje przewodzić potas [20]. W kanałach sodowych szybką inaktywację wywołuje wewnątrzkomórkowa pętla łącząca domeny III i IV, która zamyka por od strony cytoplazmy [15].
Kanał przechodzi zatem przez trzy stany: zamknięty, otwarty i inaktywowany, a ze stanu inaktywowanego wraca do zamkniętego dopiero po ustąpieniu bodźca. Sekwencja ta ogranicza czas przepływu jonów i wyznacza okres, w którym kanał nie może otworzyć się ponownie. Na poziomie błony komórek nerwowych decyduje ona o przebiegu potencjału czynnościowego i okresie refrakcji. Z tej samej sekwencji wynika podstawowa zasada farmakologii kanałów: lek może mieć inne powinowactwo do każdego z trzech stanów [21].
2.3. Źródło zróżnicowania w obrębie klasy
Pierwszym źródłem zróżnicowania jest liczba genów. Sama nadrodzina kanałów bramkowanych napięciem i ich krewnych obejmuje w genomie człowieka 143 białka w ośmiu rodzinach [2]. Rodziny różnią się czujnikiem i filtrem, lecz zachowują wspólny plan poru, co pozwala jednemu wzorcowi budowy obsłużyć bodźce od napięcia po cykliczne nukleotydy [2].
Drugim źródłem jest składanie kanału z różnych podjednostek. Kanały otwierane cyklicznymi nukleotydami powstają z dwóch albo trzech typów podjednostek kodowanych przez sześć genów, a skład kompleksu decyduje o wrażliwości na ligand, przewodnictwie i bramkowaniu [5]. Podobnie kanały potasowe dokomórkowo prostujące tworzą zarówno homotetramery, jak i heterotetramery [6]. Liczba możliwych kanałów znacznie przewyższa liczbę genów.
Trzecim źródłem są podjednostki pomocnicze, które nie tworzą poru, ale zmieniają pracę kanału. Ssaczy kanał potasowy Kv1.2 krystalizuje w kompleksie z podjednostką β o aktywności oksydoreduktazy, zdolną do regulacji kanału w komórce [18]. Kanały wapniowe mają podjednostkę pomocniczą α2δ [22]. Kanał potasowy zależny od ATP w komórkach beta trzustki łączy podjednostkę Kir6.2, należącą do kanałów potasowych dokomórkowo prostujących, z receptorem sulfonylomocznika, białkiem z rodziny ABC [1, 23].
Czwartym źródłem jest obróbka transkryptu i gotowego białka. Alternatywne składanie transkryptów różni się między tkankami, dlatego jeden gen kanału wapniowego daje w różnych narządach odmiany o innych właściwościach [24]. Na gotowe białko działają fosforylacja, jony wapnia związane z kalmoduliną i fosfolipidy błonowe [5, 6]. Na przykład kanał CFTR otwiera się dopiero po fosforylacji jego domeny regulatorowej przez kinazę białkową A zależną od cyklicznego adenozynomonofosforanu, czyli cAMP [14]. Cząsteczka cAMP jest jednym z przekaźników wtórnych, które przenoszą sygnał z receptorów błonowych do wnętrza komórki. Różnice między izoformami i wariantami składania są też wykorzystywane w poszukiwaniu leków działających wybiórczo na jedną odmianę kanału [24].
3. Główni przedstawiciele grupy
Dziesięć rodzin kanałów jonowych reprezentuje razem każdy z pięciu bodźców bramkujących i każdy z głównych układów budowy klasy. Rodziny różnią się czujnikiem, filtrem i liczbą podjednostek, a z każdą z nich wiąże się co najmniej jedna choroba albo grupa leków. Można je porównać według bodźca, selektywności, budowy poru i przykładowego znaczenia klinicznego.
| Rodzina | Bodziec bramkujący | Selektywność | Budowa poru | Przykład znaczenia klinicznego |
| Sodowe bramkowane napięciem (Nav1.1–Nav1.9) | depolaryzacja | Na⁺ | cztery domeny w jednym łańcuchu | zespół Draveta, leki miejscowo znieczulające |
| Potasowe bramkowane napięciem (Kv, w tym Kv7 i Kv11.1) | depolaryzacja | K⁺ | tetramer podjednostek sześciosegmentowych | zespół długiego QT |
| Potasowe dokomórkowo prostujące (Kir, w tym kanały zależne od ATP) | stale aktywne, białka G, ATP | K⁺ | tetramer podjednostek dwusegmentowych | cukrzyca noworodkowa |
| Potasowe o dwóch domenach porowych (K2P) | pH, temperatura, rozciąganie | K⁺ | dwie pętle porowe w podjednostce | prąd przecieku |
| Wapniowe bramkowane napięciem (Cav) | depolaryzacja | Ca²⁺ | cztery domeny w jednym łańcuchu, podjednostka α2δ | migrena hemiplegiczna, gabapentynoidy |
| HCN i CNG | hiperpolaryzacja i cykliczny AMP (HCN), cykliczne nukleotydy (CNG) | kationy nieselektywnie | tetramer z domeną wiązania nukleotydu | iwabradyna, achromatopsja |
| TRP | temperatura, związki roślinne, bodźce chemiczne | kationy nieselektywnie | tetramer | pieczenie po kapsaicynie |
| Piezo | siła mechaniczna | kationy | trimer | kserocytoza dziedziczna |
| Chlorkowe (CFTR, ClC) | ATP i fosforylacja (CFTR), napięcie (ClC) | Cl⁻ | białko ABC (CFTR), dimer z dwoma porami (ClC) | mukowiscydoza, miotonia |
| Bramkowane ligandem zewnątrzkomórkowym | neuroprzekaźnik, ATP | kationy albo aniony | pentamer, tetramer, trimer | miastenia |
Porównanie pokazuje, że ten sam bodziec otwiera kanały o różnej selektywności, a selektywność potasowa występuje w rodzinach o zupełnie różnych czujnikach. Rodzina kanału przesądza o planie budowy poru, a nie o bodźcu ani o przepuszczanym jonie.
3.1. Kanały sodowe bramkowane napięciem
Kanały sodowe bramkowane napięciem (Nav) otwierają się po depolaryzacji błony i wprowadzają do komórki jony sodu, które zapoczątkowują potencjał czynnościowy w nerwach, mięśniach i innych komórkach pobudliwych [15]. U człowieka koduje je dziewięć genów, oznaczanych SCN1A–SCN5A i SCN8A–SCN11A, z których powstają izoformy od Nav1.1 do Nav1.9 [3]. Izoformy różnią się rozmieszczeniem tkankowym. Warianty genów izoform mózgowych wiążą się z padaczkami, warianty genów izoform mięśniowych i czuciowych z chorobami nerwowo-mięśniowymi, a warianty SCN5A z arytmiami [3]. Izoforma Nav1.7 występuje obficie w neuronach nocyceptywnych, czyli neuronach czuciowych przewodzących sygnały bólowe [25]. Kanały Nav są też punktem uchwytu leków miejscowo znieczulających [21].
3.2. Kanały potasowe bramkowane napięciem
Kanały potasowe bramkowane napięciem (Kv) wyprowadzają potas z komórki po depolaryzacji i w ten sposób kształtują przebieg oraz częstotliwość potencjałów czynnościowych [18]. Strukturę ssaczego kanału Kv1.2 poznano w stanie z otwartą bramką aktywacyjną [18]. Do rodziny należą kanały Kv7 kodowane przez geny KCNQ1–KCNQ5, które przewodzą neuronalny prąd M i jedną ze składowych prądu repolaryzacji w sercu [26]. Szczególną pozycję ma kanał Kv11.1, znany jako hERG (od ang. human ether-à-go-go-related gene), który przewodzi szybki prąd repolaryzujący komórki mięśnia komór serca [27]. Kanał hERG blokuje zaskakująco wiele leków o różnej budowie chemicznej, co jest częstą przyczyną przerywania ich rozwoju w przedklinicznych badaniach bezpieczeństwa [28].
3.3. Kanały potasowe dokomórkowo prostujące
Kanały potasowe dokomórkowo prostujące (Kir) przepuszczają potas łatwiej do komórki niż z komórki [6]. Właściwość ta nie wynika z bramki, lecz z zatykania poru od strony cytoplazmy przez jony magnezu i poliaminy [6]. Podjednostka Kir ma tylko dwie helisy przezbłonowe z pętlą porową, a kanał powstaje z czterech takich podjednostek [6]. Siedem podrodzin tworzy cztery grupy czynnościowe: stale aktywne kanały Kir2, kanały Kir3 otwierane przez białka G, kanały Kir6 zależne od ATP oraz kanały transportujące potas w nabłonkach [6]. Kanał zależny od ATP (KATP) sprzęga stan energetyczny komórki z jej pobudliwością, ponieważ wzrost stężenia ATP go zamyka [23]. W komórkach beta trzustki zamknięcie tego kanału depolaryzuje błonę i uruchamia wydzielanie insuliny [23].
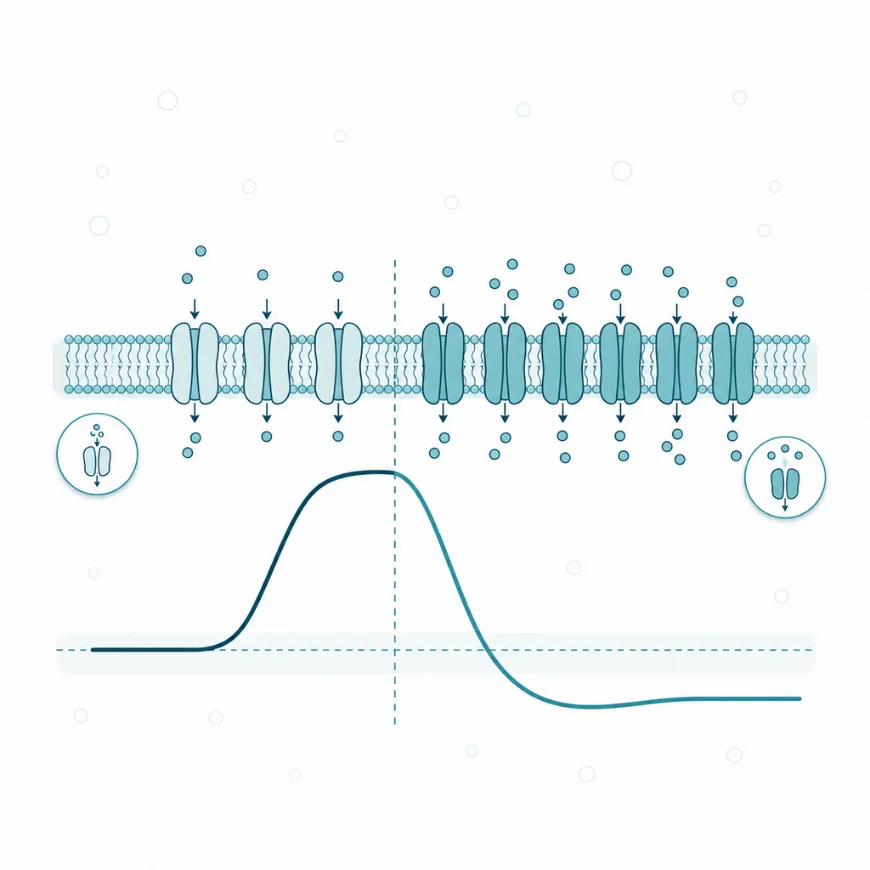
Kanały potasowe pomagają hamować pobudliwość komórek. To one sprowadzają potencjał z powrotem poniżej progu.
3.4. Kanały potasowe o dwóch domenach porowych
Kanały potasowe o dwóch domenach porowych (K2P) przewodzą tak zwany prąd przecieku, czyli stały prąd potasowy niezależny od napięcia, który stabilizuje ujemny potencjał spoczynkowy błony [29]. Nazwa rodziny pochodzi od dwóch pętli porowych w jednej podjednostce. Kanały K2P nie mają czujnika napięcia, a ich aktywność zmieniają pH, temperatura, rozciąganie błony i wewnątrzkomórkowe szlaki sygnałowe [29]. Rodzina dzieli się na sześć podrodzin, które różnią się regulacją i rozmieszczeniem w tkankach [29]. Hiperpolaryzujące działanie kanałów K2P podlega zatem regulacji, a komórka może przez nie przekształcać zmiany chemiczne i mechaniczne w zmianę pobudliwości [29].
3.5. Kanały wapniowe bramkowane napięciem
Kanały wapniowe bramkowane napięciem (Cav) zamieniają zmianę napięcia błony w napływ jonów wapnia, które wewnątrz komórki działają jako sygnał chemiczny [30]. U ssaków rodzina liczy dziesięć białek w trzech podrodzinach [30]. Podrodzina Cav1 przewodzi prąd typu L i uruchamia skurcz, wydzielanie oraz ekspresję genów [24, 30]. Podrodzina Cav2, do której należą kanały typu P/Q i N, zapoczątkowuje uwalnianie neuroprzekaźnika w szybkich synapsach [24, 30]. Podrodzina Cav3 przewodzi prąd typu T, który podtrzymuje rytmiczne wyładowania komórek mięśnia sercowego i neuronów wzgórza [30]. Podjednostce tworzącej por towarzyszą podjednostki pomocnicze, w tym α2δ [22]. Dalszy los napływającego wapnia, jego odbiorniki i usuwanie z cytoplazmy stanowią przedmiot sygnalizacji wapniowej.
3.6. Kanały HCN i CNG
Kanały HCN, czyli kanały kationowe aktywowane hiperpolaryzacją i bramkowane cyklicznymi nukleotydami (ang. hyperpolarization-activated cyclic nucleotide-gated), otwierają się przy ujemnym, a nie dodatnim potencjale błony [31]. Cztery izoformy, od HCN1 do HCN4, występują w sercu i układzie nerwowym i przewodzą prąd rozrusznikowy, kluczowy dla rytmicznej aktywności komórek węzła zatokowego i neuronów wyładowujących się samoistnie [31]. Kanał przepuszcza zarówno sód, jak i potas, a jego otwarcie ułatwia bezpośrednie związanie cAMP z domeną wewnątrzkomórkową [9]. W węźle zatokowym prąd ten przewodzi głównie izoforma HCN4 [9]. Spokrewnione kanały CNG, bramkowane cyklicznymi nukleotydami (ang. cyclic nucleotide-gated), prawie nie reagują na napięcie. Otwierają się po związaniu cAMP albo cyklicznego guanozynomonofosforanu (cGMP), drugiego wewnątrzkomórkowego przekaźnika z tej grupy, w fotoreceptorach siatkówki i neuronach węchowych [5]. Oba typy kanałów są ogniwem, przez które cykliczny nukleotyd bezpośrednio zmienia przepływ jonów.
3.7. Kanały TRP
Kanały TRP (od ang. transient receptor potential, przejściowy potencjał receptorowy) to rodzina kanałów kationowych, które reagują na temperaturę, dotyk, ból, osmolarność, feromony i bodźce smakowe [32]. Receptor kapsaicyny TRPV1 jest nieselektywnym kanałem kationowym, który otwiera zarówno kapsaicyna z papryczek chili, jak i temperatura w zakresie wywołującym ból [33]. Kanał TRPM8 otwierają z kolei mentol i temperatura w zakresie od chłodnej do zimnej [8]. Na podstawie odkrycia obu kanałów autorzy uznali kanały TRP za główne czujniki temperatury w obwodowym układzie nerwowym ssaków [8]. Poza czuciem kanały TRP działają w wielu komórkach niepobudliwych jako czujniki sygnałów pochodzących z wnętrza komórki i z jej otoczenia [32].
3.8. Kanały Piezo
Kanały Piezo, czyli Piezo1 i Piezo2, to kanały kationowe otwierane siłą mechaniczną działającą na błonę [7]. Zidentyfikowano je w 2010 roku jako białka niezbędne do powstawania prądów aktywowanych mechanicznie w komórkach nerwiaka zarodkowego myszy [7]. Wyciszenie Piezo2 w neuronach zwojów rdzeniowych osłabiało w tym samym badaniu szybko adaptujące się prądy mechaniczne [7]. Białko Piezo1 myszy liczy ponad 2500 aminokwasów, nie jest homologiczne z innymi kanałami jonowymi i tworzy trimer [12]. Kanały Piezo odpowiadają między innymi za wyczuwanie sztywności podłoża, reakcję na lekki dotyk i uwalnianie serotoniny w jelicie [12]. Za odkrycie receptorów temperatury i dotyku, w tym TRPV1 i kanałów Piezo, David Julius i Ardem Patapoutian otrzymali w 2021 roku Nagrodę Nobla z fizjologii lub medycyny [34].
3.9. Kanały chlorkowe
Kanały chlorkowe przewodzą jony chlorkowe, które zwykle stabilizują potencjał błony albo umożliwiają przezbłonowy ruch soli i wody [1]. Prądy sodowe i potasowe zmieniają natomiast potencjał błony i niosą sygnał elektryczny [1]. Dwie główne grupy kanałów chlorkowych mają zupełnie różne pochodzenie. CFTR jest kanałem anionowym nabłonków, niezbędnym do transportu soli i wody [14]. Por CFTR tworzą dwie domeny przezbłonowe, a otwarcie wymaga fosforylacji domeny regulatorowej oraz związania ATP w dwóch domenach wiążących nukleotydy [14]. Białka CLC są natomiast dimerami, w których każda podjednostka ma własną drogę dla jonów [13]. W mięśniach szkieletowych prąd chlorkowy stabilizuje potencjał błony włókien [1].
3.10. Kanały bramkowane ligandem zewnątrzkomórkowym
Kanały bramkowane ligandem zewnątrzkomórkowym otwierają się po związaniu neuroprzekaźnika albo ATP i szybko przekazują sygnał między komórkami [11]. Tworzą je trzy niespokrewnione układy budowy: pentamery z pętlą cysteinową, tetrameryczne receptory glutaminianu i trimeryczne receptory P2X [4, 11]. Wśród pentamerów receptory kwasu γ-aminomasłowego typu A i receptory glicyny przewodzą aniony, a receptory nikotynowe acetylocholiny i receptory serotoninowe typu 3 przewodzą kationy [11]. Przykładem kanału bramkowanego glutaminianem jest receptor NMDA, czyli receptor N-metylo-D-asparaginianu, przez którego kanał do neuronu wnikają między innymi jony wapnia [35]. Kanał receptora NMDA jest też punktem uchwytu jonów magnezu i memantyny.
4. Znaczenie kliniczne
4.1. Udział kanałów jonowych w chorobach
Kanałopatie to choroby, w których przyczyną objawów jest nieprawidłowa czynność kanału jonowego. Najczęściej wynikają z mutacji genu kanału, ale mogą je wywołać także przeciwciała skierowane przeciw kanałowi albo leki blokujące kanał [36, 37]. Mutacja może osłabiać przewodzenie, czyli powodować utratę funkcji, albo je nasilać, czyli powodować zysk funkcji. W przeglądzie systematycznym 437 wariantów genów kanałów sodowych warianty w pętlach porowych wiązały się częściej z utratą funkcji, a warianty w miejscach inaktywacji ze zyskiem funkcji [3].
W układzie nerwowym przykładem kanałopatii jest zespół Draveta, ciężka padaczka niemowlęca z napadami wywoływanymi początkowo gorączką. W badaniu siedmiu niespokrewnionych chorych u każdego stwierdzono mutację de novo genu SCN1A, kodującego kanał Nav1.1 [38]. Większość tych mutacji przerywała ramkę odczytu albo wprowadzała przedwczesny kodon stop [38]. Niedobory genetyczne dotyczące każdego z pięciu genów kanałów Kv7 wywołują zaburzenia pobudliwości, wśród nich padaczki, arytmie i głuchotę [26]. Rodzinna migrena hemiplegiczna, czyli z przemijającym niedowładem połowiczym, wiąże się z mutacjami zmiany sensu genu CACNA1A (dawniej CACNL1A4), kodującego podjednostkę tworzącą por kanału wapniowego typu P/Q [39]. Mutacje przerywające ramkę odczytu tego samego genu wywołują ataksję epizodyczną typu 2 [39]. Utrata funkcji kanału Nav1.7 z powodu homozygotycznych mutacji nonsensownych genu SCN9A powodowała w trzech rodzinach z północnego Pakistanu, w których zawierano małżeństwa między krewnymi, wrodzoną niezdolność odczuwania bólu u osób poza tym zdrowych [25]. Autorzy uznali, że u człowieka kanał ten jest niezbędnym i niezastępowalnym ogniwem czucia bólu [25].
W sercu kanałopatie ujawniają się jako zaburzenia rytmu. W zespole długiego QT wydłużony jest odstęp QT w elektrokardiogramie (EKG), czyli w zapisie elektrycznej czynności serca, a odstęp ten odpowiada czasowi pobudzenia i repolaryzacji komór. Dziedziczne mutacje genu kanału hERG wywołują ten zespół i zwiększają ryzyko zagrażających życiu arytmii [28]. Spośród 17 genów zgłaszanych jako przyczyna wrodzonego zespołu długiego QT tylko trzy uznano za pewną przyczynę jego postaci typowej: KCNQ1, KCNH2 i SCN5A [40]. Nabytą postacią kanałopatii jest polekowy zespół długiego QT, w którym głównym celem leku jest zwykle kanał hERG [37].
Aktywujące mutacje genu KCNJ11, kodującego podjednostkę Kir6.2 kanału KATP, odpowiadają za 30–58% przypadków cukrzycy rozpoznanej przed szóstym miesiącem życia [23]. Kanał z taką mutacją nie zamyka się mimo wzrostu stężenia ATP, więc komórka beta nie wydziela insuliny [23]. W mięśniach szkieletowych mutacje kanałów jonowych wywołują porażenia okresowe, w których napady osłabienia wynikają z przejściowej utraty pobudliwości włókien [41]. Mutacje te destabilizują potencjał spoczynkowy i zwykle zmieniają czynność kanału w kierunku zysku funkcji, a nie całkowitej jej utraty [41]. Mukowiscydozę wywołują mutacje genu CFTR, a prawie 90% chorych ma co najmniej jedną kopię mutacji Phe508del [14, 42]. Mutacje genów białek CLC powodują u ludzi i myszy między innymi miotonię, głuchotę i osteopetrozę [13]. Mutacje kanałów CNG czopków siatkówki wywołują postacie achromatopsji, czyli wrodzonego braku widzenia barw [5]. Mutacje Piezo1 w krwinkach czerwonych powodują dziedziczną kserocytozę, zwykle przez spowolnienie inaktywacji kanału [12].
Kanały jonowe mogą też stać się celem odpowiedzi autoimmunologicznej. W zespole miastenicznym Lamberta-Eatona przeciwciała przeciw kanałom wapniowym typu P/Q wykryto u wszystkich 32 chorych z rozpoznanym nowotworem i u 91% z 33 chorych bez nowotworu [36]. W grupie 69 chorych na miastenię, padaczkę albo twardzinę przeciwciała te występowały u mniej niż 3% osób [36]. W miastenii celem przeciwciał jest receptor nikotynowy acetylocholiny, który sam należy do pentamerycznych kanałów bramkowanych ligandem [11]. Obie choroby dotyczą kanałów jonowych złącza nerwowo-mięśniowego, ale różnią się stroną synapsy i rodzajem kanału.
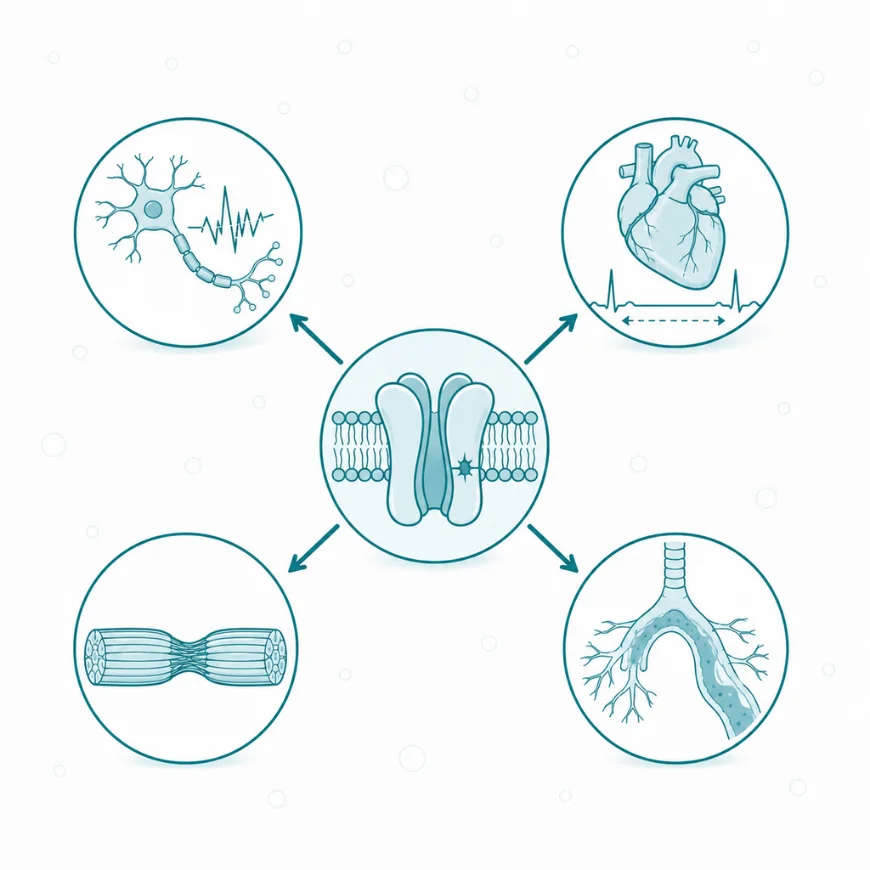
Kanałopatie mogą prowadzić do różnych zaburzeń: wada w neuronie daje padaczkę, w sercu — arytmię, w mięśniu — sztywność.
4.2. Punkty uchwytu leków i substancji
Kanały jonowe są celem wielu grup leków, a działanie wielu blokerów zależy od cyklu stanów kanału. Leki miejscowo znieczulające wiążą się z jednym miejscem w kanale sodowym, do którego docierają dwiema drogami [21]. Postać rozpuszczalna w lipidach dociera przez błonę, a postać naładowana przez wewnętrzne ujście poru, dostępne tylko przy otwartej bramce [21]. Związanie leku zwiększa prawdopodobieństwo zamknięcia bramki inaktywacyjnej [21]. Kanał często otwierany jest więc blokowany silniej niż kanał w spoczynku [21]. Kanały sodowe są też punktem uchwytu części leków przeciwpadaczkowych [43]. Leki miejscowo znieczulające blokują wewnętrzną część poru, a tetrodotoksyna, toksyna ryb rozdymkowatych, i μ-konotoksyny ślimaków stożków blokują jego część zewnętrzną [44].
Selektywność względem izoformy otworzyła nową grupę leków przeciwbólowych. Suzetrygina wybiórczo hamuje kanał Nav1.8 obecny w neuronach nocyceptywnych [45]. W styczniu 2025 roku uzyskała rejestrację amerykańskiej Agencji Żywności i Leków (FDA), urzędu dopuszczającego leki do obrotu w Stanach Zjednoczonych, jako pierwszy od ponad dwudziestu lat nieopioidowy lek przeciwbólowy [45]. W dwóch badaniach z randomizacją III fazy, po plastyce powłok brzusznych (1118 chorych) i operacji palucha koślawego (1073 chorych), suzetrygina zmniejszała ból w ciągu 48 godzin skuteczniej niż placebo [46]. Nie okazała się jednak skuteczniejsza od połączenia hydrokodonu z paracetamolem [46]. Według przeglądu kanał Nav1.8 występuje przede wszystkim w obwodowych neuronach czuciowych, co autorzy wiążą z brakiem ośrodkowych i arytmogennych działań leku [45]. U myszy wykryto go jednak także w neuronach zwojów wewnątrzsercowych, gdzie jego zablokowanie zmniejszało częstotliwość wyładowań, a w komórkach mięśnia komór czynnego kanału nie stwierdzono [54].
Kanały wapniowe są celem kilku grup leków o różnych punktach uchwytu. Pochodne 1,4-dihydropirydyny blokują kanały typu L Cav1.2 i są szeroko stosowane w leczeniu nadciśnienia tętniczego [24]. Etosuksymid działa na kanały typu T i jest stosowany w padaczce z napadami nieświadomości [24]. Gabapentynoidy nie blokują poru, lecz wiążą się z podjednostką pomocniczą α2δ-1 [24]. Gabapentynę opisano w 1996 roku jako pierwszą substancję farmakologiczną wiążącą się z podjednostką α2δ [22]. Zykonotyd, peptydowy bloker kanałów typu N podawany do przestrzeni podpajęczynówkowej, ma ograniczone zastosowanie w bólu opornym na inne leczenie [24].
Pochodne sulfonylomocznika zamykają kanał KATP drogą niezależną od ATP [23]. W badaniu 49 kolejnych chorych z cukrzycą wywołaną mutacjami Kir6.2 insulinę odstawiło po przejściu na pochodną sulfonylomocznika 44 chorych, czyli 90% [23]. Odsetek hemoglobiny glikowanej spadł w tej grupie z 8,1% do 6,4% po 12 tygodniach [23]. Blokada kanału hERG jest z kolei mechanizmem działania leków przeciwarytmicznych klasy III, a zarazem przyczyną polekowego wydłużenia odstępu QT [27]. Część blokerów hERG o słabszym działaniu proarytmicznym dodatkowo ułatwia aktywację kanału, co według autora przeglądu zmniejsza ryzyko arytmii [27].
Iwabradyna blokuje prąd rozrusznikowy przewodzony przez kanały HCN i zwalnia rytm zatokowy [9]. W badaniu z randomizacją SHIFT objęto 6558 chorych z niewydolnością serca, frakcją wyrzutową lewej komory do 35% i spoczynkową częstością rytmu co najmniej 70 na minutę [47]. Zgon sercowo-naczyniowy albo hospitalizacja z powodu nasilenia niewydolności serca wystąpiły u 24% chorych otrzymujących iwabradynę i u 29% otrzymujących placebo [47].
Modulatory CFTR poprawiają czynność kanału zmienionego przez mutację. Iwakaftor, tak zwany potencjator, zwiększa aktywność wadliwego kanału CFTR [48]. W badaniu z randomizacją u chorych z mutacją G551D iwakaftor zwiększył natężoną objętość wydechową pierwszosekundową o 10,6 punktu procentowego wartości należnej względem placebo do 24. tygodnia [48]. Skojarzenie korektora eleksakaftoru z tezakaftorem i iwakaftorem zwiększyło ten wskaźnik u chorych z jedną kopią Phe508del o 14,3 punktu procentowego w ciągu 24 tygodni [42]. W tym samym badaniu częstość zaostrzeń płucnych była o 63% mniejsza, a stężenie chlorków w pocie niższe o 41,8 mmol/l niż w grupie placebo [42]. Memantyna jest akompetycyjnym (ang. uncompetitive) blokerem kanału receptora NMDA o niskim powinowactwie [35]. Wchodzi do kanału głównie wtedy, gdy jest on nadmiernie otwarty, i szybko go opuszcza, a zarejestrowano ją w leczeniu choroby Alzheimera [35]. We wszystkich tych przykładach skuteczność leku zależy od tego, czy rozpoznaje on stan kanału, izoformę albo podjednostkę, a nie od samego poru, który w obrębie klasy jest podobny.
4.3. Wsparcie suplementacyjne
Kilka substancji z katalogu suplementów działa bezpośrednio na kanały jonowe, ale dane pochodzą z hodowli komórek i z tkanek zwierzęcych. Jony magnezu w stężeniu fizjologicznym, około 1 mmol/l w płynie zewnątrzkomórkowym, blokowały por receptora NMDA zależnie od napięcia w hodowlach neuronów rdzenia kręgowego myszy [49]. Badanie to nie oceniało wpływu podaży magnezu u ludzi. Kawalaktony z pieprzu metystynowego, czyli (+)-metystycyna i (±)-kawaina, hamowały w stężeniach od 1 do 400 µmol/l prąd sodowy w neuronach hipokampa szczura [50]. Gingerole i szogaole z imbiru aktywowały szczurzy kanał TRPV1 w hodowanych komórkach linii HEK293 [51]. Piperyna z pieprzu czarnego aktywowała ludzki kanał TRPV1 w warunkach in vitro z około dwukrotnie większą skutecznością maksymalną niż kapsaicyna, choć dopiero w wyższym stężeniu [52], a hiperforyna z dziurawca aktywowała wybiórczo kanał TRPC6 w liniach komórkowych [53].
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Magnez | Mg²⁺ blokuje por receptora NMDA zależnie od napięcia (neurony myszy) | ↓ przewodnictwo kanału NMDA | C |
| Memantyna | lek, status lekopodobny; akompetycyjny bloker otwartego kanału NMDA o niskim powinowactwie | ↓ przewodnictwo kanału NMDA | C (mechanizm) |
| Kava kava | (+)-metystycyna i (±)-kawaina hamują prąd kanałów Nav (neurony hipokampa szczura) | ↓ prąd sodowy | C |
| Imbir | gingerole i szogaole aktywują TRPV1 (komórki HEK293, szczury) | ↑ aktywność TRPV1 | C |
| Piperyna | agonista ludzkiego TRPV1 (in vitro) | ↑ aktywność TRPV1 | C |
| Dziurawiec | hiperforyna aktywuje TRPC6 (linie komórkowe) | ↑ aktywność TRPC6 | C |
Wszystkie wiersze mają siłę dowodu C, więc zestawienie opisuje punkty uchwytu na kanałach, a nie potwierdzone działanie u ludzi. Dawkowanie, interakcje i bezpieczeństwo tych substancji opisują karty działu Suplementy.
5. Na co warto zwrócić uwagę
Kanałopatia nie oznacza wyłącznie mutacji. Tę samą zaburzoną czynność kanału może wywołać przeciwciało albo lek, a w polekowym zespole długiego QT przyczyną wydłużenia repolaryzacji jest podany lek blokujący kanał hERG [37]. Ryzyko arytmii przy leku blokującym ten kanał zwiększają gorączka, zmiany pH, hipokaliemia, hipomagnezemia i jednoczesne stosowanie innych leków [37]. Na ryzyko polekowe wpływają zatem stężenia elektrolitów i inne przyjmowane leki, których nie ujawnia badanie genetyczne.
Wykrycie wariantu w genie kanału nie przesądza o chorobie. W ocenie 17 genów zgłaszanych jako przyczyna wrodzonego zespołu długiego QT dziewięć miało ograniczone albo sporne dowody związku z chorobą [40]. Autorzy odradzili opieranie decyzji klinicznych na wariantach w tych genach bez nowych dowodów genetycznych [40]. W przeglądzie wariantów genów kanałów sodowych 68 z 437 ocenionych czynnościowo wariantów, czyli 16%, uznano za łagodne [3].
Badanie genetyczne rozstrzyga najwięcej wtedy, gdy wynik zmienia leczenie. U niemowląt z cukrzycą wynik badania genu KCNJ11 wskazuje mutację kanału, na którą działają pochodne sulfonylomocznika [23]. U dzieci z podejrzeniem zespołu Draveta potwierdzenie mutacji SCN1A ma znaczenie praktyczne. W retrospektywnej serii 18 chorych część z nich otrzymywała przed rozpoznaniem molekularnym leki blokujące kanały sodowe, co wiązało się z nasileniem napadów i zmianą leczenia [43]. Autorzy przeglądu wariantów kanałów sodowych wskazują ponadto, że strategia leczenia zależy prawdopodobnie od kierunku zmiany czynności kanału, czyli od utraty albo zysku funkcji [3].
Substancje roślinne działające na kanały jonowe bywają przedstawiane jako naturalne blokery albo aktywatory kanałów. Kierunek ich działania zależy jednak od czasu ekspozycji: piperyna w tym samym doświadczeniu in vitro silniej niż kapsaicyna odczulała kanał TRPV1 i szybciej zmniejszała jego odpowiedź przy powtarzanych podaniach [52]. Aktywator kanału może więc po krótkim czasie działać jak czynnik osłabiający jego odpowiedź. Wyniki uzyskane w hodowlach komórek nie wskazują ponadto, jakie stężenie substancji osiąga tkanka u człowieka.
Informacje o lekach działających na kanały jonowe mają charakter edukacyjny, a decyzję o badaniu genetycznym albo o zmianie leczenia podejmuje lekarz prowadzący.