1. Charakterystyka
1.1. Definicja i zakres pojęcia
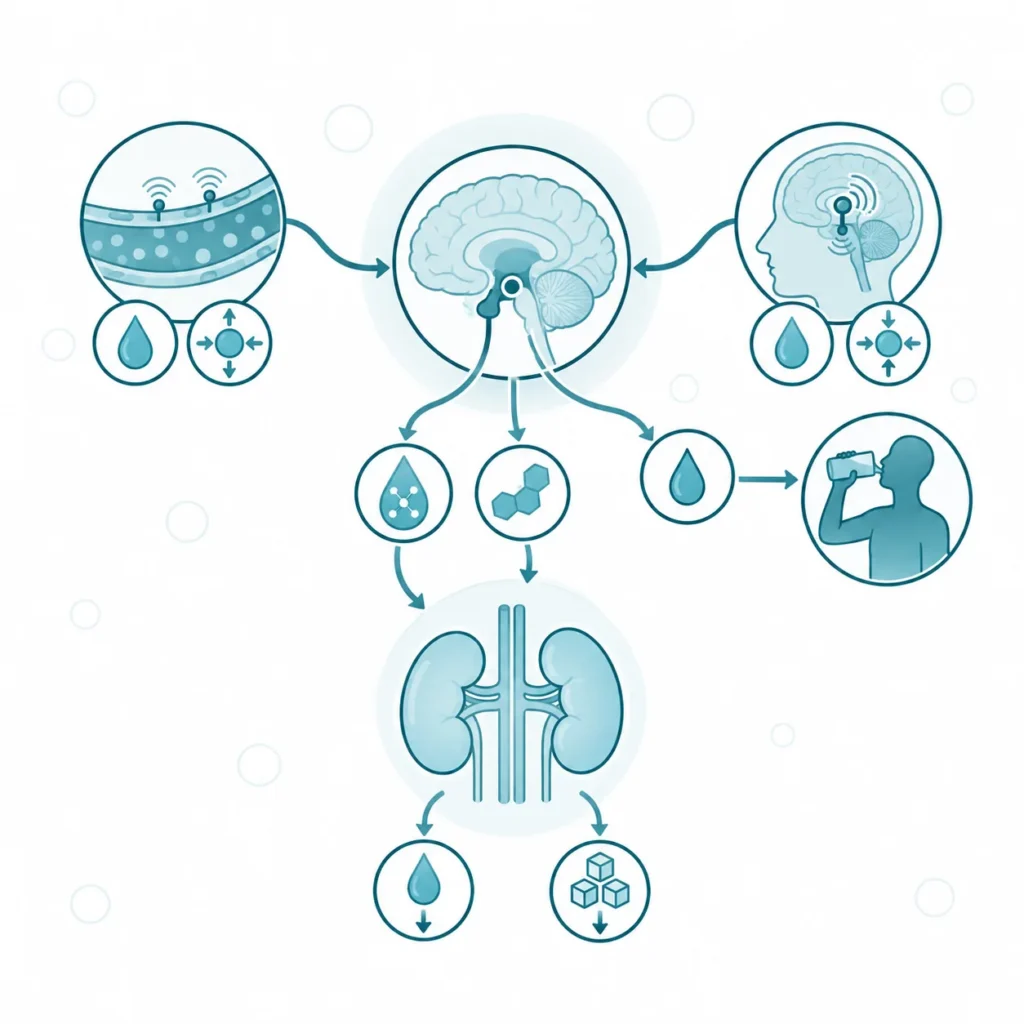
Gospodarka wodno-elektrolitowa (ang. water and electrolyte balance) to układ regulacyjny utrzymujący stałą objętość i stały skład płynów ustrojowych, należący do mechanizmów homeostazy całego organizmu. Obejmuje wodę oraz główne jony tych płynów: sód, potas i chlorki. Nie jest jednym narządem, lecz układem czynnościowym złożonym z czujników w mózgu i naczyniach, ośrodka w podwzgórzu, hormonów oraz nerki jako głównego narządu wykonawczego [1, 2].
W obrębie tego układu działają dwie pętle, które łatwo pomylić, bo obie zmieniają ilość wody i sodu. Osmoregulacja pilnuje stężenia płynów, czyli ich osmolalności, a mówiąc dokładniej toniczności, która decyduje o przesunięciach wody między wnętrzem komórek a ich otoczeniem [3]. Regulacja objętości pilnuje natomiast ilości płynu zewnątrzkomórkowego, a ta zależy głównie od całkowitej ilości soli sodowych w ustroju [3]. Kryterium różnicującym są czujniki i efektory. Osmoregulację uruchamiają osmoreceptory, a jej wykonawcami są pragnienie i wazopresyna [1]. Regulację objętości uruchamiają baroreceptory, a wykonawcami są układ renina–angiotensyna–aldosteron i wydalanie sodu przez nerki [4]. Z tego rozróżnienia wynika praktyczna konsekwencja: stężenie sodu w surowicy jest przede wszystkim miarą bilansu wody, a nie ilości sodu w organizmie [5].
Zakres pojęcia obejmuje bilans wody, sodu, potasu i chlorków oraz rozmieszczenie wody między przestrzeniami płynowymi. Wapń i fosforan podlegają osobnemu sterowaniu przez parathormon wydzielany przez przytarczyce i przez kalcytriol, dlatego należą do gospodarki wapniowo-fosforanowej, a nie do tego układu. Znaczenie kliniczne gospodarki wodno-elektrolitowej wynika z częstości jej zaburzeń: hiponatremia jest najczęstszym zaburzeniem bilansu płynów i elektrolitów spotykanym w praktyce klinicznej [6]. Zmiany toniczności zmieniają objętość komórek, co szczególnie dotyczy komórek mózgu i może zaburzać ich czynność oraz przeżycie [3].
1.2. Elementy i organizacja układu
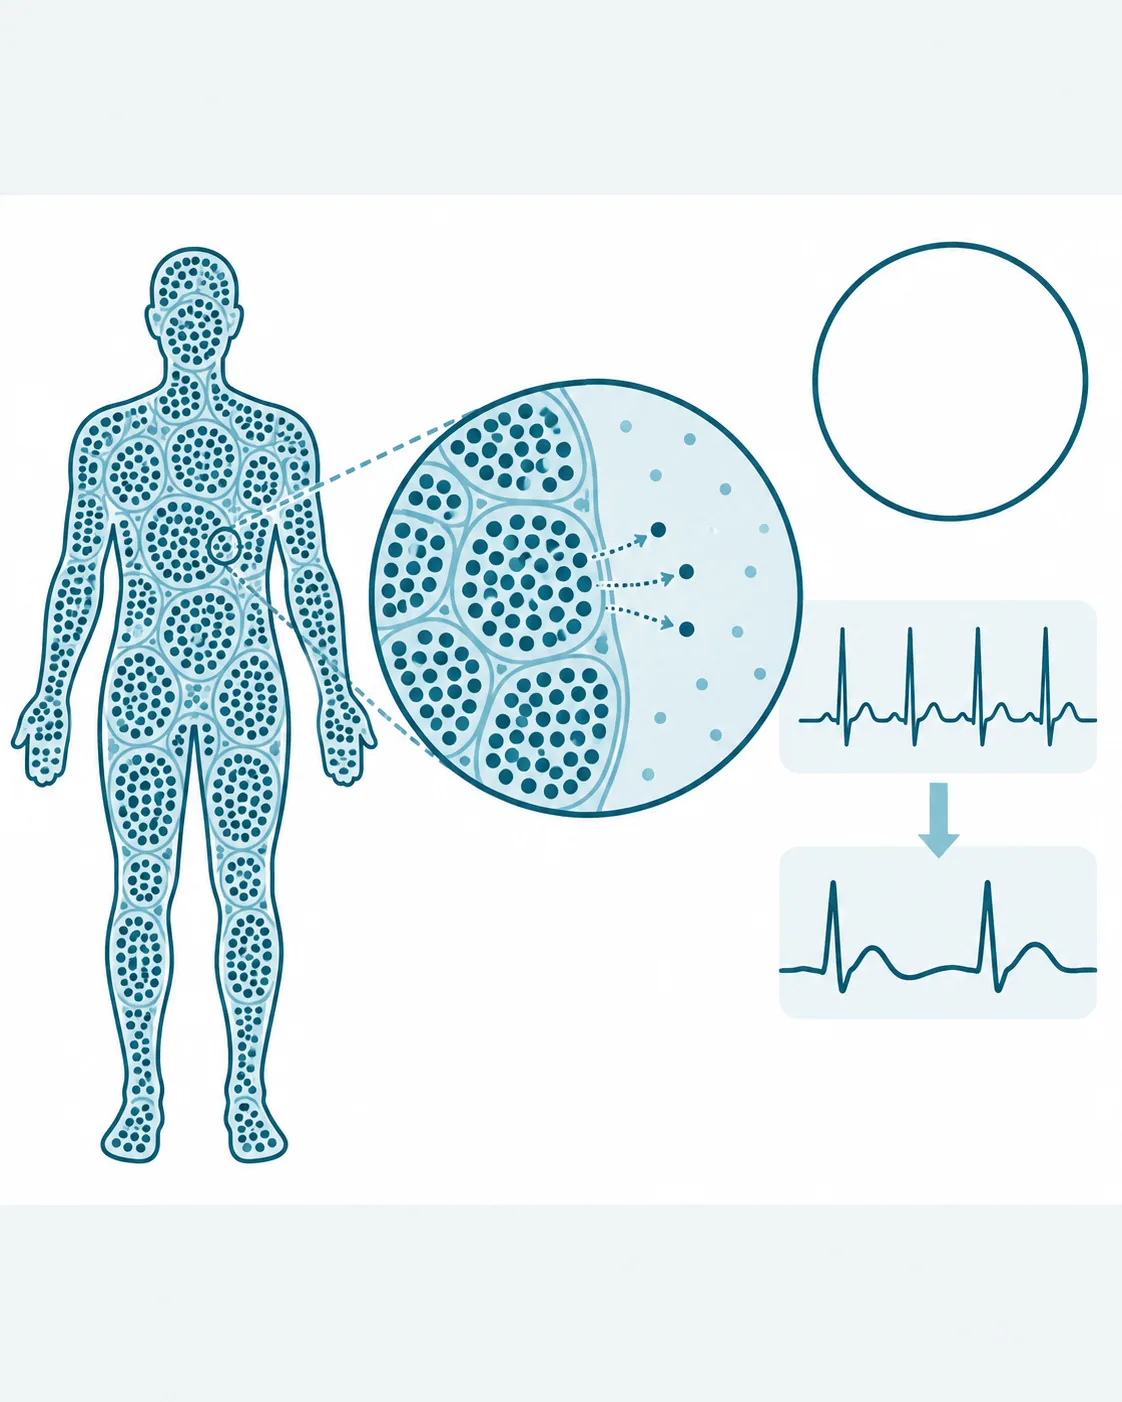
Gospodarka wodno-elektrolitowa działa na płynach rozdzielonych błonami komórkowymi na dwie główne przestrzenie. Woda stanowi u dorosłego zwykle 50–60% masy ciała, przy rozpiętości od 45 do 75%, a u osób zdrowych dzieli się między wnętrze komórek i przestrzeń zewnątrzkomórkową w stosunku około 62:38 [7]. Przestrzeń zewnątrzkomórkowa obejmuje płyn śródmiąższowy i osocze, czyli tę część płynu, którą krew przenosi przez naczynia. Głównym kationem płynu zewnątrzkomórkowego jest sód, a płynu wewnątrzkomórkowego potas [3]. Podział ten jest bardzo nierówny: poza komórkami znajduje się tylko 2% potasu ustroju [8].
Wejściami układu są czujniki dwóch rodzajów. Osmoreceptory leżą w narządzie naczyniowym blaszki krańcowej i w narządzie podsklepieniowym, czyli w narządach okołokomorowych przedniej ściany trzeciej komory, pozbawionych prawidłowej bariery krew-mózg [9]. Ich neurony są więc wystawione na bezpośredni kontakt z krwią i odbierają zarówno wzrost osmolalności, jak i krążącą angiotensynę II [9]. Baroreceptory tętnicze odbierają natomiast stopień wypełnienia łożyska tętniczego, a w nerce podobną informację niesie ciśnienie perfuzyjne oraz stężenie chlorku sodu docierające do plamki gęstej kanalika dalszego [2, 4].
Ośrodek układu leży w podwzgórzu. Sygnały z obu narządów okołokomorowych i z baroreceptorów zbiegają się w jądrze przedwzrokowym pośrodkowym, które rozdziela je na trzy odpowiedzi: pragnienie, wydzielanie hormonu antydiuretycznego i wydalanie sodu przez nerki [10]. Neurony wytwarzające wazopresynę mają ciała komórkowe w podwzgórzu, a tylna część przysadki zawiera jedynie zakończenia ich aksonów, z których hormon trafia do krwi [11].
Wyjścia układu obejmują zachowanie i hormony. Pragnienie i apetyt na sól zmieniają ilość przyjmowanej wody i sodu, a nerka zmienia ich wydalanie pod wpływem nerwów współczulnych, ciśnienia perfuzji oraz czynników krążących [2]. Do tych czynników należą wazopresyna, układ renina–angiotensyna–aldosteron, sercowe peptydy natriuretyczne i oksytocyna [2]. Każdy z trzech rodzajów czujników odpowiada na inną wielkość fizyczną.
| Czujnik | Położenie | Odbierany sygnał | Główna odpowiedź |
| Osmoreceptory | narząd naczyniowy blaszki krańcowej, narząd podsklepieniowy | osmolalność osocza, angiotensyna II | pragnienie, wydzielanie wazopresyny |
| Baroreceptory tętnicze | ściana dużych tętnic | wypełnienie łożyska tętniczego | pobudzenie współczulne, wydzielanie reniny, nieosmotyczne wydzielanie wazopresyny |
| Plamka gęsta | kanalik dalszy nefronu | stężenie chlorku sodu w płynie kanalikowym | zmiana wydzielania reniny |
Organizacja ta rozdziela więc kontrolę stężenia płynów od kontroli ich objętości już na poziomie czujników, a łączy obie dopiero w podwzgórzu i w nerce.
1.3. Rys historyczny
Pojęcie osmoreceptora wywodzi się z badań fizjologa E.B. Verneya, który w 1947 roku opisał czynniki decydujące o uwalnianiu hormonu antydiuretycznego [12]. Jego doświadczenia na psach doprowadziły do koncepcji osmoreceptorów, czyli struktur mózgu odbierających ciśnienie osmotyczne krwi i sterujących wydzielaniem tego hormonu [13]. Przez długi czas osmoreceptory pozostawały konstrukcją wyprowadzoną z doświadczeń, bo krążące stężenia wazopresyny były zbyt małe dla ówczesnych metod pomiaru. Dopiero czułe metody radioimmunologiczne pozwoliły je oznaczać i ustalić, że osmoregulacja wydzielania wazopresyny ma podstawowe znaczenie dla bilansu wody, a spadek ciśnienia i objętości krwi jest silnym bodźcem nieosmotycznym [13].
Kolejne prace umiejscowiły czujniki w narządach okołokomorowych blaszki krańcowej i wskazały drogi, którymi ich sygnał dociera do kory wyspy i przedniej części zakrętu obręczy, czyli do obszarów, które według badań obrazowych u ludzi uczestniczą w powstawaniu świadomego odczucia pragnienia [9]. Przez cały ten czas pragnienie uważano za odpowiedź na zmiany objętości lub toniczności krwi [14]. W 2016 roku zespół Zimmermana wykazał u myszy, że neurony pragnienia narządu podsklepieniowego reagują już na sygnały z jamy ustnej podczas jedzenia i picia [14]. Neurony te przewidują przyszły stan bilansu płynów, zanim zmieni się skład krwi, co wyjaśnia między innymi szybkie gaszenie pragnienia przez sam akt picia [14].
2. Działanie układu
2.1. Sygnał wejściowy i jego przetwarzanie
Sygnałem wejściowym osmoregulacji jest osmolalność osocza, czyli liczba cząsteczek osmotycznie czynnych w kilogramie wody osocza, wyrażana w miliosmolach na kilogram (mOsm/kg). W warunkach prawidłowych o jej wartości decyduje głównie sód z towarzyszącymi mu anionami, bo to one pozostają w przestrzeni zewnątrzkomórkowej i przyciągają do niej wodę [3]. Wzrost osmolalności pobudza neurony narządów okołokomorowych blaszki krańcowej, a te przekazują sygnał dalej do podwzgórza [1, 9].
Odpowiedź na ten sygnał ma charakter progowy. W badaniu z próbą odwodnieniową objęto między innymi 10 osób bez cukrzycy [15]. Próg osmolalności, powyżej którego rosło u nich stężenie wazopresyny, wynosił średnio 284,1 mOsm/kg, a próg pragnienia 286,0 mOsm/kg, czyli nieco więcej [15]. Wartości te wyznaczono z regresji liniowej obu odpowiedzi względem osmolalności, a u osób ze źle kontrolowaną cukrzycą typu 2 oba progi były przesunięte w górę [15]. W tym badaniu wydzielanie wazopresyny zaczynało się więc przy osmolalności nieco niższej niż ta, przy której pojawiała się potrzeba picia.
Drugim wejściem jest wypełnienie łożyska tętniczego. Spadek rzutu serca albo rozszerzenie naczyń obwodowych zmniejsza rozciąganie baroreceptorów tętniczych, a to znosi ich stałe hamowanie układu współczulnego i nieosmotycznego wydzielania wazopresyny [4]. Silnymi bodźcami wydzielania hormonu są wyraźny spadek ciśnienia tętniczego i objętości krwi [13]. Ten sam niedobór objętości uruchamia przez nerkę wydzielanie reniny, a powstająca angiotensyna II działa na narząd podsklepieniowy i nasila pragnienie [4, 9].
Przetwarzanie obu sygnałów odbywa się w jądrze przedwzrokowym pośrodkowym. Zawiera ono pobudzające neurony glutaminianergiczne i hamujące neurony GABA-ergiczne, czyli uwalniające kwas γ-aminomasłowy (GABA), a neurony te przesyłają sygnały do jąder podwzgórza i do ośrodków pnia mózgu [10]. Do sygnałów z krwi dołącza informacja z jamy ustnej: u myszy neurony pragnienia narządu podsklepieniowego zmniejszają aktywność w trakcie picia, zanim woda zostanie wchłonięta [14]. Dzięki temu u myszy układ odpowiada na przewidywany stan płynów, a nie wyłącznie na stan aktualny, i może zakończyć picie, zanim przyjęta woda zmieni skład krwi [14]. Bezpośrednich danych o takim mechanizmie u ludzi w tej pracy nie przedstawiono.
2.2. Przekaźnictwo w obrębie układu
Przekaźnictwo w gospodarce wodno-elektrolitowej opiera się na hormonach, które przenoszą decyzję ośrodka do nerki, oraz na drogach nerwowych, które przenoszą ją do zachowania. Głównym przekaźnikiem pętli osmotycznej jest wazopresyna, czyli hormon antydiuretyczny. Wytwarzają ją neurony podwzgórza, a uwalniają do krwi zakończenia ich aksonów w tylnym płacie przysadki [11].
W nerce wazopresyna działa na komórki główne kanalika zbiorczego. Hormon wiąże się z receptorem V2 w ich błonie podstawnej. W odpowiedzi komórki zwiększają liczbę kanałów wodnych z rodziny akwaporyn, czyli akwaporyny-2, w błonie zwróconej do światła kanalika [11]. Woda przechodzi wtedy z moczu do śródmiąższu nerki, a mocz staje się bardziej zagęszczony. Przy długotrwałym braku hormonu komórki główne ograniczają samą syntezę akwaporyny-2, dlatego nawet podany z zewnątrz hormon przywraca pełne zagęszczanie moczu dopiero po kilku dniach [11].
Pętlę objętościową przekazuje układ renina–angiotensyna–aldosteron. Pobudzenie współczulne nerki zwiększa wydzielanie reniny, a powstająca angiotensyna II obkurcza naczynia i pobudza korę nadnerczy do wydzielania aldosteronu [4]. Aldosteron wiąże się z receptorem mineralokortykoidowym w końcowym odcinku nefronu i nasila tam wchłanianie zwrotne sodu przez nabłonkowe kanały sodowe [16]. Wchłanianie sodu wytwarza zarazem siłę napędową dla wydzielania potasu do moczu, więc ten sam hormon reguluje bilans obu jonów [16]. Przeciwnie działają sercowe peptydy natriuretyczne, które sprzyjają wydalaniu sodu [2].
Część przekaźnictwa prowadzi do zachowania. Informacja o soli w pożywieniu biegnie z języka i przewodu pokarmowego nerwami do jądra pasma samotnego, a drogą humoralną do narządu podsklepieniowego i pola najdalszego [2]. Obwody łączące te struktury z jądrem przyramiennym, jądrem przykomorowym i układem nagrody pobudzają albo hamują apetyt na sól [2]. Główne przekaźniki hormonalne układu różnią się źródłem, bodźcem i miejscem działania.
| Przekaźnik | Źródło | Główny bodziec wydzielania | Działanie w obrębie układu |
| Wazopresyna | neurony podwzgórza, uwalniana z tylnego płata przysadki | wzrost osmolalności, spadek objętości krwi | wbudowanie akwaporyny-2, zatrzymanie wody |
| Angiotensyna II | powstaje we krwi po wydzieleniu reniny przez nerkę | spadek wypełnienia tętnic, pobudzenie współczulne | skurcz naczyń, wydzielanie aldosteronu, pragnienie |
| Aldosteron | kora nadnerczy | angiotensyna II, wzrost stężenia potasu | wchłanianie sodu i wydzielanie potasu w końcowym odcinku nefronu |
| Peptydy natriuretyczne | serce | rozciąganie ścian serca | zwiększenie wydalania sodu |
Hormony te działają w większości na ten sam narząd, ale na różne odcinki nefronu, dlatego nerka może niezależnie zmieniać wydalanie wody i sodu.
2.3. Sprzężenia zwrotne i regulacja
Gospodarka wodno-elektrolitowa jest układem z ujemnym sprzężeniem zwrotnym, w którym skutek odpowiedzi znosi bodziec. Woda zatrzymana przez nerkę albo przyjęta z piciem obniża osmolalność osocza, a spadek osmolalności zmniejsza wydzielanie wazopresyny i wygasza pragnienie [1]. Pętla ta, razem z pobudzeniem współczulnym i zmianą czynności nerek, stabilizuje toniczność i objętość płynu zewnątrzkomórkowego [1]. Do sprzężenia zwrotnego dochodzi sterowanie wyprzedzające: u myszy sygnały z jamy ustnej hamują pragnienie, zanim woda zostanie wchłonięta [14].
Obie pętle, osmotyczna i objętościowa, mogą jednak wysyłać sprzeczne polecenia. Przy znacznym spadku objętości krwi albo przy niedostatecznym wypełnieniu tętnic baroreceptory podtrzymują nieosmotyczne wydzielanie wazopresyny także wtedy, gdy osmolalność jest niska [4, 13]. Nerka zatrzymuje wówczas wodę mimo rozcieńczenia płynów, co prowadzi do hipoosmolalności i hiponatremii [4]. Znaczenie tego mechanizmu potwierdza działanie doustnych antagonistów receptora V2, które u chorych z obrzękami i hiponatremią zwiększają wydalanie wody wolnej od elektrolitów [4]. W takich warunkach ochrona objętości krwi ma więc pierwszeństwo przed ochroną toniczności.
Bilans potasu ma dwa poziomy regulacji. Długoterminowo całkowitą ilość potasu ustala nerka, która dostosowuje jego wydalanie do podaży [17]. Szybkie rozmieszczenie potasu między komórkami a płynem zewnątrzkomórkowym zależy natomiast od insuliny i od napięcia układu współczulnego działającego przez receptory β-adrenergiczne [17]. Oba czynniki przesuwają potas do wnętrza komórek, przez co ograniczają wzrost jego stężenia we krwi, zanim nerka zdąży wydalić nadmiar.
W nerce stężenie potasu samo reguluje drogę sodu. Wzrost miejscowego stężenia potasu zmniejsza wchłanianie chlorku sodu w kanaliku krętym dalszym, więc więcej sodu dociera do odcinka, w którym działają nabłonkowe kanały sodowe [16]. Wchłanianie tego sodu napędza wydzielanie potasu, dzięki czemu nerka dopasowuje wydalanie potasu do jego podaży w pożywieniu [16].
2.4. Funkcje
2.4.1. Stałość objętości komórek
Stała toniczność płynu zewnątrzkomórkowego chroni objętość komórek, bo woda przechodzi przez błony swobodnie i podąża za różnicą stężeń substancji osmotycznie czynnych. Zaburzenia toniczności są głównym czynnikiem zmieniającym objętość komórek, a zmiana ta może krytycznie upośledzać czynność i przeżycie komórek mózgu [3]. Mózg jest tu szczególnie narażony, ponieważ zamyka go sztywna czaszka i jego obrzęk szybko podnosi ciśnienie wewnątrzczaszkowe.
Gdy osmolalność osocza spada gwałtownie, woda napływa do neuronów i komórek glejowych, a mózg nie zdąży się przystosować, co grozi zagrażającym życiu obrzękiem [18]. Przy spadku powolnym komórki mózgu pozbywają się części elektrolitów wewnątrzkomórkowych oraz organicznych substancji osmotycznie czynnych, czyli osmolitów, i w ten sposób ograniczają obrzęk [18]. Ta sama adaptacja czyni je jednak bardziej podatnymi na uszkodzenie, gdy osmolalność wraca do normy zbyt szybko [18]. Stałość toniczności jest więc warunkiem prawidłowej czynności neuronów, a nie tylko parametrem laboratoryjnym.
2.4.2. Objętość krwi i ciśnienie tętnicze
Druga funkcja układu dotyczy objętości płynu zewnątrzkomórkowego, której część krążąca w naczyniach zapewnia ukrwienie narządów. Tę czynnie krążącą część opisuje pojęcie efektywnej objętości krwi tętniczej, a jej podstawowym zadaniem jest odpowiednia perfuzja komórek i narządów [3]. O wypełnieniu tętnic decydują rzut serca i opór naczyń obwodowych, a nie sama ilość płynu w organizmie [4].
Spadek wypełnienia tętnic uruchamia układ współczulny, układ renina–angiotensyna–aldosteron i nieosmotyczne wydzielanie wazopresyny [4]. Odpowiedzi te podnoszą opór naczyń i zwiększają zatrzymywanie sodu i wody przez nerki, a przez to podtrzymują ciśnienie tętnicze [4]. Regulacja objętości łączy więc gospodarkę wodno-elektrolitową bezpośrednio z ciśnieniem tętniczym i z pracą serca.
2.4.3. Pobudliwość błon komórkowych
Trzecia funkcja dotyczy potasu i elektrycznych właściwości błon. Utrzymanie bilansu potasu ma w organizmie bardzo wysoki priorytet, ponieważ od rozkładu tego jonu zależy potencjał błonowy komórek [8]. Potencjał spoczynkowy błony komórek nerwowych i mięśniowych wynika głównie z różnicy stężeń potasu po obu stronach błony, ponieważ w spoczynku jest ona najbardziej przepuszczalna właśnie dla tego jonu.
Zasób zewnątrzkomórkowy potasu jest bardzo mały, dlatego przesunięcie niewielkiej części zasobu wewnątrzkomórkowego wyraźnie zmienia jego stężenie we krwi [8]. Wzrost tego stężenia zmniejsza różnicę stężeń w poprzek błony i przesuwa potencjał spoczynkowy w stronę depolaryzacji, a spadek zmienia przede wszystkim przebieg repolaryzacji [19]. Klinicznie najpoważniejsze są skutki w mięśniu sercowym, gdzie zmiana potencjału spoczynkowego zmienia przewodzenie pobudzenia i może wywołać zaburzenia rytmu [19]. Wąski zakres stężenia potasu we krwi jest więc warunkiem stabilnej pobudliwości serca, mięśni i przewodzenia impulsów nerwowych.
2.5. Interakcje z innymi układami
Gospodarka wodno-elektrolitowa dzieli ośrodki i przekaźniki z kilkoma innymi układami regulacyjnymi. Najważniejszym wspólnym węzłem jest jądro przedwzrokowe pośrodkowe, które oprócz pragnienia i wydzielania wazopresyny steruje także temperaturą ciała, snem i krążeniem [10].
Z autonomicznym układem nerwowym układ łączy się przez drogi współczulne. Neurony jądra przedwzrokowego pośrodkowego pobudzają szlaki współczulne, które obkurczają naczynia i przyspieszają pracę serca, aby utrzymać ciśnienie tętnicze i ukrwienie narządów [10]. Ta sama struktura uruchamia drżenie mięśniowe, termogenezę w brunatnej tkance tłuszczowej i zmiany przepływu skórnego, dlatego regulacja płynów i temperatury korzysta z części wspólnych dróg [10].
Z regulacją pobierania pokarmu układ łączy się w narządach okołokomorowych. Narząd podsklepieniowy i narząd naczyniowy blaszki krańcowej sterują pragnieniem, a pole najdalsze w tyłomózgowiu odbiera hormony hamujące łaknienie [9]. U myszy neurony pragnienia reagują już na jedzenie, co tłumaczy częste picie w czasie posiłków [14].
Ze układem hormonalnym gospodarkę wodno-elektrolitową wiąże kilka hormonów spoza jej głównego toru. Insulina i katecholaminy działające na receptory β-adrenergiczne przesuwają potas do komórek [17]. Oksytocyna należy do czynników humoralnych, przez które nerka zmienia wydalanie sodu [2]. Zaburzenie w jednym z tych układów przenosi się więc na bilans płynów, nawet jeśli osmoreceptory i nerka działają prawidłowo.
3. Zaburzenia i modyfikacja
3.1. Nadmierna aktywność układu
Nadmierna aktywność gospodarki wodno-elektrolitowej oznacza zatrzymywanie wody albo sodu ponad potrzebę wynikającą z aktualnej toniczności i objętości płynów. Jej najczęstszym wyrazem jest hiponatremia, którą europejskie wytyczne definiują jako stężenie sodu w surowicy poniżej 135 mmol/l [6]. Wytyczne te wiążą hiponatremię ze zwiększoną śmiertelnością, chorobowością i dłuższym pobytem w szpitalu [6].
W zespole nieadekwatnego wydzielania hormonu antydiuretycznego wazopresyna pozostaje we krwi mimo niskiej osmolalności osocza. Nerka nadal wbudowuje akwaporynę-2 do błony komórek kanalika zbiorczego, zatrzymuje wodę i rozcieńcza sód, choć objętość płynów nie jest zmniejszona. Podobny stan wywołują niektóre leki. W metaanalizie 39 badań leczenie przeciwdepresyjne wiązało się z ponad trzykrotnie większą szansą hiponatremii, a częstość zdarzenia wynosiła 7,44% dla inhibitorów wychwytu zwrotnego serotoniny i noradrenaliny oraz 5,59% dla selektywnych inhibitorów wychwytu zwrotnego serotoniny [20]. Najmniejszą częstość w tym zestawieniu miały mirtazapina i trazodon [20].
Diuretyki tiazydowe wywołują hiponatremię częściej, niż dotąd sądzono, zwłaszcza u osób starszych i u osób z niskim prawidłowym stężeniem sodu lub potasu [21]. Według przeglądu Beckmanna i współpracowników składają się na nią utrata sodu i potasu, zwiększone przyjmowanie wody i upośledzone wydalanie wody wolnej, a udział może mieć także prostaglandyna E2 [21]. Ryzyko rośnie przy małej podaży substancji osmotycznie czynnych w diecie i przy jednoczesnym stosowaniu innych leków obniżających sód [21].
Przewlekła hiponatremia ma następstwo, które ujawnia się dopiero przy jej wyrównywaniu. Komórki mózgu przystosowane do niskiej osmolalności utraciły osmolity, a gwałtowny powrót osmolalności do normy odwadnia je i może wywołać zespół osmotycznej demielinizacji, czyli uszkodzenie osłonek mielinowych [18]. Przegląd Kamela i współpracowników przytacza badania obserwacyjne, w których zespół ten występował rzadko i niekonsekwentnie wiązał się ze zbyt szybkim wyrównaniem, a wolniejsze wyrównanie wiązało się z większą śmiertelnością [18]. Autorzy przeglądu uznają jednak, że do czasu uzyskania lepszych dowodów ostrożne granice tempa wyrównania pozostają zasadne [18].
Nadmiar aldosteronu przenosi nadmierną aktywność układu na bilans potasu. Hormon nasila wchłanianie sodu w końcowym odcinku nefronu, a to napędza wydzielanie potasu do moczu [16]. Utrata potasu przez nerki obniża jego stężenie we krwi, co zmienia repolaryzację mięśnia sercowego i sprzyja zaburzeniom rytmu [19].
3.2. Niedostateczna aktywność układu
Niedostateczna aktywność gospodarki wodno-elektrolitowej oznacza, że układ nie zatrzymuje wody albo nie uruchamia pragnienia mimo wzrostu osmolalności. Jej wyrazem jest hipernatremia, która najczęściej wynika z niedoboru całkowitej ilości wody w organizmie, a rzadziej z nadmiaru sodu bez zmiany ilości wody [5]. Utratę wody mogą powodować mechanizmy nerkowe albo pozanerkowe [5].
Najczystszym modelem niedostatecznej aktywności jest moczówka prosta. W postaci ośrodkowej neurony wytwarzające wazopresynę ulegają zniszczeniu przez zmiany uciskające lub naciekające, uraz głowy, zabieg operacyjny albo proces autoimmunologiczny [11]. Objawy pojawiają się dopiero po utracie 80–90% tych neuronów, bo zdolność syntezy hormonu znacznie przekracza potrzeby organizmu [11]. Brak hormonu daje wielomocz, który u większości chorych wyrównuje wtórnie nasilone pragnienie i picie [11]. Gdy zniszczeniu ulegają także osmoreceptory przedniego podwzgórza, znika również pragnienie, a chory rozwija ciężkie przewlekłe odwodnienie z hiperosmolalnością [11].
W postaci nerkowej hormon jest wydzielany, lecz nerka nie odpowiada na jego sygnał. W 2022 roku międzynarodowa grupa robocza zaproponowała zastąpienie nazw obu postaci określeniami niedobór wazopresyny argininowej (postać ośrodkowa) i oporność na wazopresynę argininową (postać nerkowa) [22]. Uzasadnieniem były dane wskazujące, że chorzy z rozpoznaniem moczówki prostej doznają szkód związanych z dotychczasową nazwą [22].
Niedostateczna aktywność układu narasta z wiekiem. W badaniu siedmiu zdrowych mężczyzn w wieku 67–75 lat i siedmiu młodych mężczyzn po pozbawieniu wody starsi mieli większy wzrost osmolalności, stężenia sodu i wazopresyny [23]. Mimo to odczuwali mniejsze pragnienie, pili mniej i nie przywracali wyjściowego rozcieńczenia osocza [23]. Wydzielanie wazopresyny było u nich zachowane, a gorsze zagęszczanie moczu autorzy przypisali przyczynom nerkowym [23]. Odwodnienie z utraty wody jest u osób starszych częste i wiąże się z wieloma przyczynami chorobowości i zgonów [24].
Niedostateczna aktywność dotyczy także potasu. Gdy w końcowym odcinku nefronu brakuje działania aldosteronu albo do tego odcinka dociera za mało sodu, wydzielanie potasu słabnie [16]. Potas gromadzi się wtedy w płynie zewnątrzkomórkowym, a wzrost jego stężenia depolaryzuje błony i zaburza przewodzenie w sercu, a przy wyższych stężeniach je zwalnia [19].
3.3. Udział gospodarki wodno-elektrolitowej w chorobach
Gospodarka wodno-elektrolitowa jest ogniwem kilku chorób przewlekłych, w których jej czujniki działają prawidłowo, lecz odbierają mylący sygnał. Najlepiej opisano ten mechanizm w niewydolności serca i w marskości wątroby.
W niewydolności serca spada rzut serca, a w marskości rozszerzają się naczynia obwodowe [4]. W obu sytuacjach baroreceptory odbierają niedostateczne wypełnienie tętnic, choć całkowita ilość płynu w organizmie jest zwiększona [4]. Pobudzona w ten sposób odpowiedź nerwowo-hormonalna sprawia, że nerka dalej zatrzymuje sód i wodę [4]. Do końcowego odcinka nefronu dociera wtedy mniej sodu i wody, co osłabia ucieczkę spod działania aldosteronu, zmniejsza odpowiedź na peptydy natriuretyczne i ogranicza wydalanie wody wolnej [4]. Skutkiem są obrzęki i hiponatremia z rozcieńczenia mimo nadmiaru sodu w ustroju [4].
W przewlekłej chorobie nerek zawodzi efektor, a nie czujnik. Zaburzenia stężenia potasu są częste u chorych z chorobami nerek, zwłaszcza z zaburzeniami czynności kanalików i z niskim współczynnikiem przesączania kłębuszkowego [25]. Przy niskim przesączaniu do końcowego odcinka nefronu trafia mniej płynu i sodu, a to ogranicza wydzielanie potasu w odpowiedzi na jego podaż. Hiperkaliemia pojawia się więc u tych chorych łatwiej niż u osób z prawidłową czynnością nerek [25].
W cukrzycy dochodzi do zaburzeń obu stron pętli osmotycznej. U osób ze źle kontrolowaną cukrzycą typu 2 nerka słabiej zagęszczała mocz w odpowiedzi na wazopresynę, a progi osmolalności dla pragnienia i wydzielania hormonu były podwyższone [15]. Autorzy uznali, że te nieprawidłowości mogą przyczyniać się do odwodnienia przy przewlekłej hiperglikemii [15].
W ośrodkowym układzie nerwowym zaburzenia gospodarki wodno-elektrolitowej są zarówno skutkiem, jak i przyczyną choroby. Uszkodzenie neuronów wazopresynowych podwzgórza wywołuje moczówkę prostą, natomiast zmiany ograniczone do siodła tureckiego zwykle jej nie wywołują, bo przysadka zawiera jedynie zakończenia aksonów [11]. Hiponatremia sama z kolei wywołuje objawy neurologiczne wynikające z obrzęku mózgu, zwłaszcza gdy narasta szybko [18]. Związek między mózgiem a bilansem sodu działa więc w obu kierunkach.
3.4. Modyfikacja behawioralna i dietetyczna
Zachowanie i dieta wpływają na gospodarkę wodno-elektrolitową, ponieważ to one ustalają wejście wody, sodu i potasu do organizmu, a nerka może tylko korygować ich wydalanie. Najlepiej zbadanym przykładem jest hiponatremia związana z wysiłkiem długotrwałym.
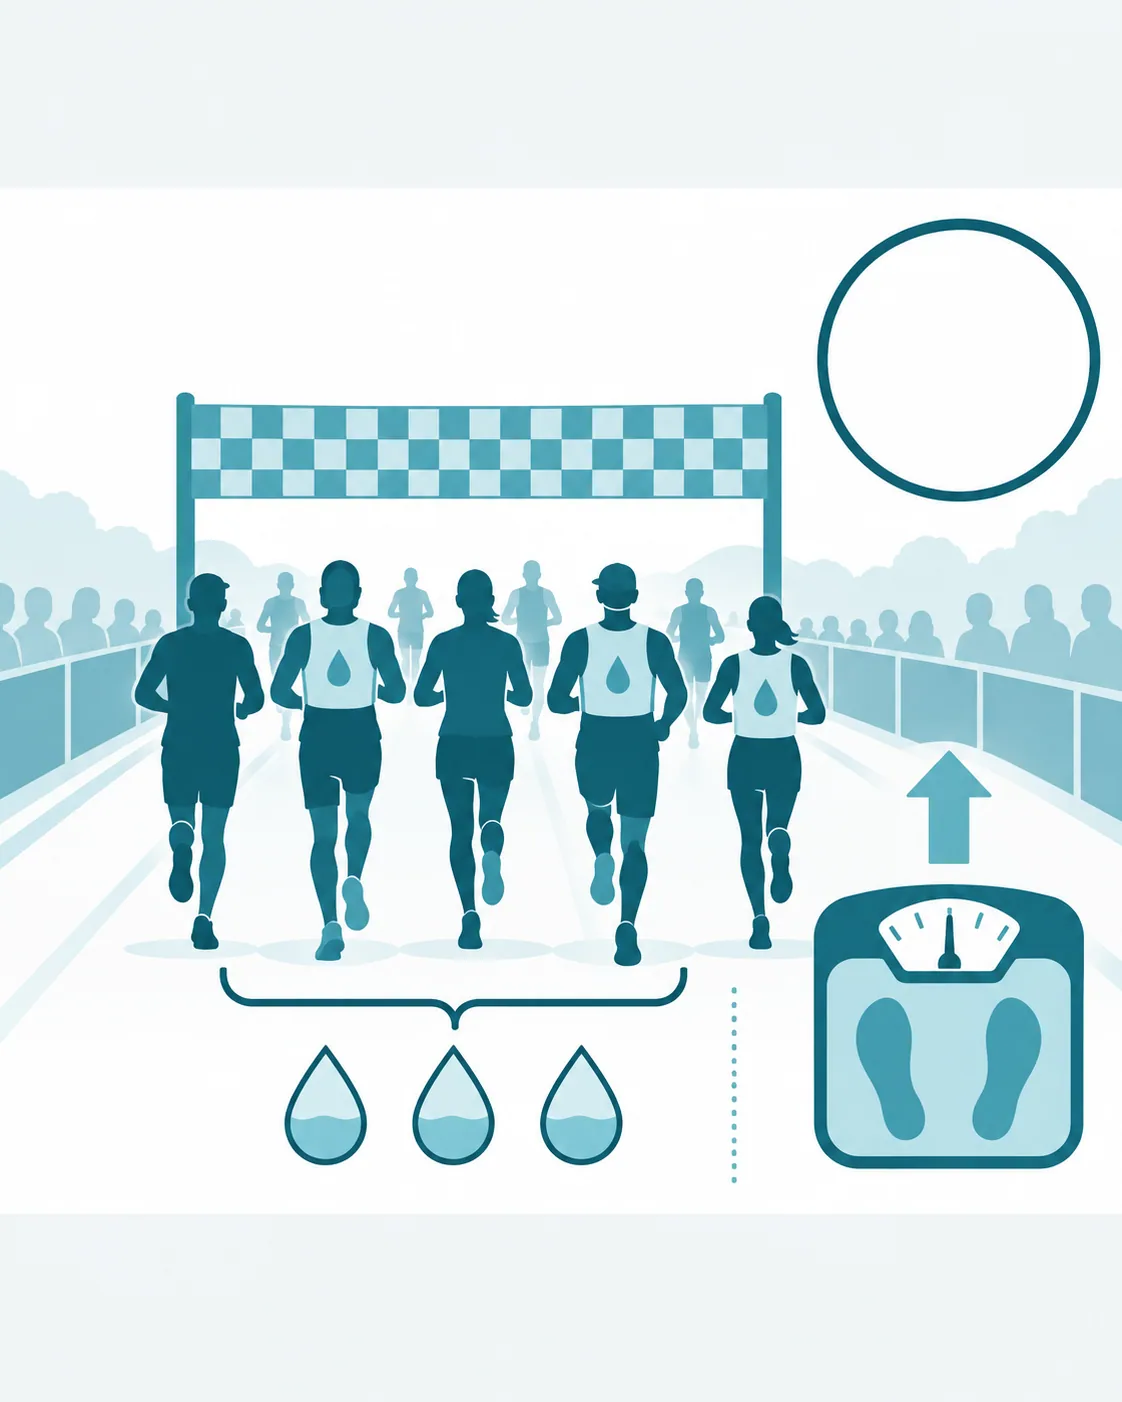
W badaniu kohortowym uczestników maratonu bostońskiego z 2002 roku próbkę krwi na mecie oddało 488 biegaczy, a hiponatremię, czyli stężenie sodu nie wyższe niż 135 mmol/l, stwierdzono u 13% z nich [26]. U 0,6% stężenie sodu spadło do 120 mmol/l lub niżej, co autorzy uznali za hiponatremię krytyczną [26]. W analizie wieloczynnikowej hiponatremia wiązała się z przyrostem masy ciała w trakcie biegu, z czasem biegu dłuższym niż cztery godziny i ze skrajnymi wartościami wskaźnika masy ciała [26]. Płeć żeńska, skład wypijanych napojów i stosowanie niesteroidowych leków przeciwzapalnych nie wiązały się z nią w tej analizie [26].
Przyrost masy ciała w czasie wysiłku ma tu prostą interpretację, bo oznacza, że przyjęta woda przewyższyła jej utratę z potem i moczem. Woda przyjęta ponad możliwości jej wydalenia rozcieńcza sód w płynie zewnątrzkomórkowym, a każdy czynnik ograniczający wydalanie wody, w tym nieosmotyczne wydzielanie wazopresyny, nasila ten efekt [13]. Długi czas biegu wydłuża okres, w którym przyjmowanie płynów może przewyższać ich utratę.
Dieta zmienia przede wszystkim bilans potasu. Fizjologia człowieka ukształtowała się w toku ewolucji przy diecie bogatej w potas i ubogiej w sód [8]. Konferencja uzgodnieniowa organizacji KDIGO (ang. Kidney Disease: Improving Global Outcomes), która przygotowuje wytyczne nefrologiczne, wskazała na korzystne związki diety roślinnej z wynikami sercowo-naczyniowymi i nerkowymi [25]. Ta sama konferencja zwróciła uwagę na niedostatek danych o tym, czy zmiana diety przywraca prawidłowe stężenie potasu u chorych z jego zaburzeniami [25].
Na bilans sodu wpływa natomiast apetyt na sól, którym sterują obwody pnia mózgu, podwzgórza i układu nagrody [2]. Zachowania żywieniowe są więc pełnoprawnym ramieniem wykonawczym tego układu, a nie tylko zakłóceniem, które nerka musi wyrównać.
3.5. Wsparcie suplementacyjne
Substancje stosowane jako suplementy mogą zmieniać stężenie elektrolitów, jeśli działają na wchłanianie, wydalanie albo rozmieszczenie jonu. W przypadku gospodarki wodno-elektrolitowej dotyczy to przede wszystkim potasu, którego stężenie we krwi zależy od czynności kanalika nerkowego.
W metaanalizie 20 badań z randomizacją doustne uzupełnianie potasu podniosło jego stężenie we krwi średnio o 0,14 mmol/l i zwiększyło wydalanie potasu z moczem, nie zmieniając stężenia kreatyniny [27]. Badania te były krótkie i obejmowały osoby względnie zdrowe [27]. Niedobór magnezu nasila natomiast utratę potasu, bo spadek wewnątrzkomórkowego stężenia magnezu znosi jego hamujące działanie na kanały potasowe w końcowym odcinku nefronu [28]. Hipokaliemia współistniejąca z niedoborem magnezu jest przez to oporna na samo uzupełnianie potasu [28]. Kierunek odwrotny wykazuje lukrecja: zawarte w niej pochodne kwasu glicyretynowego hamują w nerce dehydrogenazę 11β-hydroksysteroidową typu 2 i wywołują rzekomy hiperaldosteronizm z hipokaliemią i nadciśnieniem [29].
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Potas | zwiększenie podaży jonu, wzrost wydalania potasu z moczem | ↑ stężenie potasu we krwi (wzrost niewielki) | A [27] |
| Magnez | utrzymanie hamowania kanałów potasowych końcowego odcinka nefronu przez magnez wewnątrzkomórkowy | ↑ stężenie potasu przy współistniejącym niedoborze magnezu (ograniczenie utraty z moczem) | C [28] |
| Lukrecja gładka | hamowanie dehydrogenazy 11β-hydroksysteroidowej typu 2, pobudzenie receptora mineralokortykoidowego przez kortyzol | ↓ stężenie potasu, ↑ zatrzymanie sodu | C [29] |
Najsilniejsze dowody dotyczą potasu, ale zmiana jego stężenia u osób z prawidłową czynnością nerek była w badaniach niewielka [27]. Dane o magnezie mają charakter mechanistyczny: dotyczą mechanizmu hipokaliemii w niedoborze magnezu, a nie wyniku jego suplementacji [28]. Lukrecja działa na bilans potasu i sodu niekorzystnie, a jej wpływ opisano głównie jako działanie niepożądane preparatów zawierających korzeń tej rośliny [29].
4. Uwagi praktyczne
4.1. Jak to zbadać
Stan gospodarki wodno-elektrolitowej ocenia się badaniami krwi i moczu, z których każde odpowiada na inne pytanie o bilans. Stężenia sodu, potasu i chlorków oznacza się w surowicy, a polskie laboratoria podają je w milimolach na litr (mmol/l), czyli w tej samej jednostce, w której formułowane są wytyczne.
Stężenie sodu w surowicy jest przede wszystkim miarą bilansu wody, a nie ilości sodu w ustroju [5]. Europejskie wytyczne przyjmują za hiponatremię wartość poniżej 135 mmol/l [6]. Osmolalność surowicy, wyrażana w mOsm/kg, mierzy toniczność bezpośrednio. W przeglądzie systematycznym badań u osób po 65. roku życia za kryterium odwodnienia z utraty wody przyjęto osmolalność surowicy równą 295 mOsm/kg lub wyższą, a odwodnienie już obecne rozpoznawano przy wartości powyżej 300 mOsm/kg w tych samych badaniach [24].
Badania moczu pokazują, jak nerka odpowiada na stan płynów. Osmolalność moczu informuje o tym, czy nerka zagęszcza mocz, a więc pośrednio o działaniu wazopresyny i o wrażliwości kanalika zbiorczego na ten hormon. Stężenie sodu w moczu pomaga odróżnić utratę sodu przez nerki od jego zatrzymywania, ale u osób przyjmujących leki moczopędne odzwierciedla przede wszystkim działanie leku.
Do różnicowania przyczyn wielomoczu służą testy czynnościowe. W wieloośrodkowym badaniu, w którego analizie uwzględniono 141 chorych z wielomoczem hipotonicznym, klasyczny pośredni test odwodnieniowy postawił trafne rozpoznanie w 76,6% przypadków, a oznaczenie kopeptyny po wlewie hipertonicznego roztworu soli w 96,5% [30]. Kopeptyna pochodzi z tej samej cząsteczki prekursorowej co wazopresyna i służy jako zastępczy wskaźnik jej wydzielania [30]. Stężenie potasu interpretuje się z uwzględnieniem czynności nerek i rozmieszczenia potasu między komórkami a osoczem, bo zaburzenia potasu są częste w chorobach nerek, a insulina i katecholaminy przesuwają ten jon do komórek [17, 25].
4.2. Na co warto zwrócić uwagę
Najczęstszy błąd interpretacji dotyczy niskiego stężenia sodu w surowicy, które bywa odczytywane jako niedobór sodu w organizmie. Stężenie to mówi jednak głównie o proporcji sodu do wody, czyli o bilansie wody [5]. W niewydolności serca i w marskości hiponatremia współistnieje z nadmiarem sodu w ustroju i z obrzękami, bo nerka zatrzymuje jednocześnie sód i jeszcze więcej wody [4]. Ten sam wynik laboratoryjny może więc oznaczać odwodnienie z utratą sodu, nadmiar wody przy prawidłowej ilości sodu albo przewodnienie z nadmiarem obu.
Drugie częste nieporozumienie dotyczy oceny nawodnienia u osób starszych. W przeglądzie systematycznym Cochrane żaden pojedynczy objaw ani prosty test nie był wiarygodny w rozpoznawaniu odwodnienia u osób po 65. roku życia [24]. Ilość wypijanych płynów, ciężar właściwy i barwa moczu, objętość moczu, częstość pracy serca, suchość w ustach, odczucie pragnienia i impedancyjna ocena wody wewnątrz- i zewnątrzkomórkowej okazały się nieprzydatne jako samodzielne wskaźniki [24]. Odczucie pragnienia jest w tej grupie zawodne także z przyczyn fizjologicznych, bo u starszych mężczyzn pozbawionych wody pragnienie było słabsze mimo wyższej osmolalności [23].
Trzecie nieporozumienie dotyczy wysiłku długotrwałego, który bywa łączony wyłącznie z ryzykiem odwodnienia. Dane z maratonu bostońskiego pokazują, że w części biegaczy amatorów zagrożeniem jest przeciwny stan, czyli rozcieńczenie sodu przez wodę przyjętą ponad utratę [26]. O kierunku zaburzenia rozstrzyga więc stężenie sodu we krwi, bo sam przebieg wysiłku nie wskazuje, czy organizm stracił wodę, czy zatrzymał jej nadmiar.
Obraz zaburzeń sodu i potasu zależy często od leków. Leki przeciwdepresyjne z grupy inhibitorów wychwytu zwrotnego serotoniny oraz diuretyki tiazydowe należą do częstych przyczyn hiponatremii, a ryzyko tiazydów rośnie u osób starszych [20, 21]. Lukrecja zawarta w preparatach ziołowych może z kolei obniżać potas i podnosić ciśnienie, przy czym wrażliwość na nią jest osobniczo bardzo zmienna [29].
Ograniczenia dowodowe dotyczą przede wszystkim leczenia hiponatremii przewlekłej. Przyjęte granice tempa wyrównywania sodu są przedmiotem sporu, bo w badaniach obserwacyjnych zespół osmotycznej demielinizacji okazał się rzadki i niekonsekwentnie związany z szybkością wyrównania [18]. Spór ten dotyczy decyzji klinicznych podejmowanych w szpitalu, a interpretacja wyników badań sodu, potasu i osmolalności wymaga oceny lekarza, który zna przyjmowane leki i choroby współistniejące.