1. Profil substancji
1.1. Definicja i klasyfikacja
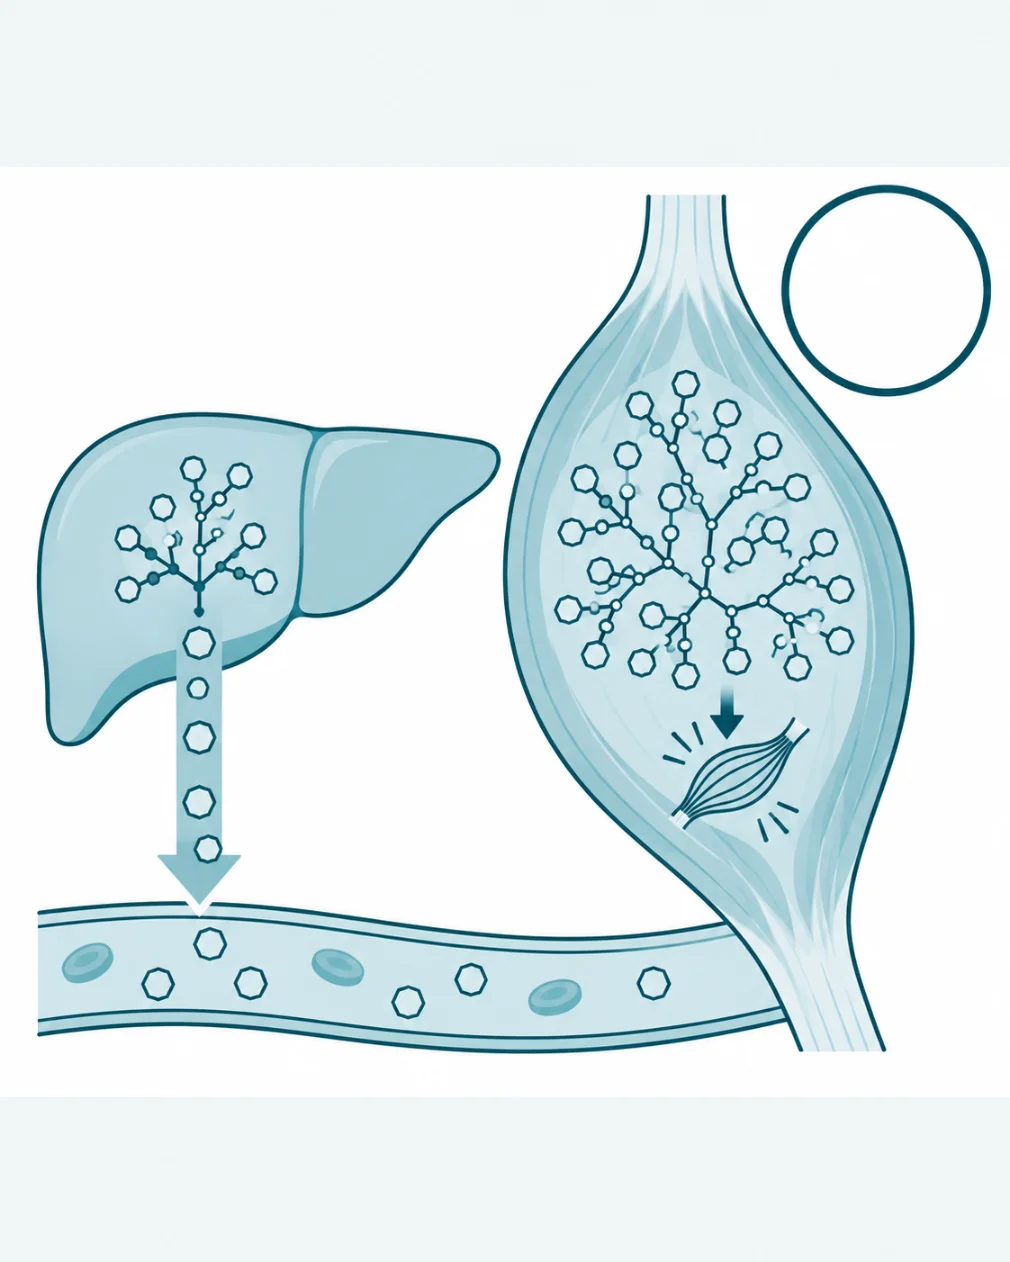
Glikogen to polisacharyd zapasowy należący do węglowodanów złożonych, zbudowany z reszt glukozy [1]. Reszty łączą się w łańcuchy wiązaniami alfa-1,4-glikozydowymi, a w punktach rozgałęzień wiązaniami alfa-1,6-glikozydowymi [2]. Powstaje w ten sposób silnie rozgałęziony polimer, w którym organizmy zwierzęce, w tym człowiek, magazynują glukozę [1]. W podziale czynnościowym glikogen jest substancją zapasową: komórka odkłada go w okresie dostatku pożywienia i zużywa w okresie niedoboru [3].
Glikogen bywa mylony ze skrobią, z glukozą we krwi i z węglowodanami w diecie. Skrobia jest zapasem roślin, a jej główny składnik, amylopektyna, ma te same wiązania co glikogen, lecz rzadsze rozgałęzienia alfa-1,6 [3]. Kryterium różnicującym jest więc gęstość rozgałęzień, a nie rodzaj cukru. Claude Bernard, który wyizolował glikogen, nazwał go skrobią zwierzęcą, ponieważ z obu związków powstaje cukier [4]. Glukoza we krwi jest pojedynczą cząsteczką krążącą w osoczu, a glikogen pozostaje wewnątrz komórki, w cytoplazmie [5]. Glukoza odcinana od glikogenu przez fosforylazę może opuścić komórkę dopiero po odłączeniu fosforanu przez glukozo-6-fosfatazę [1]. Węglowodany w diecie są pojęciem żywieniowym, a glikogen jest jedną z postaci, w których organizm przechowuje wchłoniętą glukozę [1].
Największe zapasy glikogenu znajdują się w wątrobie i w mięśniach szkieletowych [1]. Mniejsze ilości wykryto w mózgu, sercu, nerkach, tkance tłuszczowej i erytrocytach [1]. W dorosłym mózgu glikogen gromadzą przede wszystkim astrocyty, czyli komórki glejowe otaczające synapsy i naczynia [6]. Czynność glikogenu w tych mniejszych magazynach jest w większości słabo poznana [1].
Glikogen wątroby dostarcza glukozy do krwi między posiłkami, a glikogen mięśni zasila pracujące włókna [1]. Wrodzone wady enzymów jego syntezy i rozkładu wywołują glikogenozy [1]. Upośledzona synteza glikogenu w mięśniach jest natomiast jednym z głównych ogniw oporności na insulinę w cukrzycy typu 2 [7]. Glikogen łączy więc fizjologię wysiłku, regulację stężenia glukozy we krwi i choroby metaboliczne.
1.2. Budowa
Glikogen ma budowę, która pozwala zmieścić dużo glukozy w małej objętości i szybko ją uwolnić. Model matematyczny cząsteczki pokazał, że rzeczywisty stopień rozgałęzienia i długość łańcuchów odpowiadają wartościom optymalnym [8]. Przy tych wartościach cząsteczka mieści najwięcej glukozy w najmniejszej objętości i ma najwięcej końców łańcuchów, od których zaczyna się rozkład [8]. Zarazem największa możliwa część glukozy jest dostępna dla fosforylazy jeszcze przed usunięciem rozgałęzień [8].
Analiza chemiczna glikogenu ssaków wskazuje, że przeciętny łańcuch liczy około 13 reszt glukozy [3]. Rozgałęzienia wypadają średnio co około 12 reszt [3]. Łańcuchy wewnętrzne niosą zwykle po dwa rozgałęzienia, a łańcuchy zewnętrzne są nierozgałęzione [3]. W pełnej cząsteczce zewnętrzna warstwa skupia połowę wszystkich reszt glukozy [3]. Cząsteczka narasta warstwami, a model przewiduje najwyżej 12 warstw, bo trzynasta wymagałaby niemożliwej gęstości upakowania [3]. Pełna cząsteczka zawierałaby około 55 000 reszt glukozy i miałaby średnicę około 44 nm [3]. W mięśniu szkieletowym pełne cząsteczki są rzadkie, a średnica przeciętnej cząstki jest bliższa 25 nm [3].
Rdzeniem każdej cząstki jest białko glikogenina. Przyłącza ono pierwsze reszty glukozy do własnej tyrozyny i tworzy krótki łańcuch startowy, który przejmuje syntaza glikogenowa [3]. Pojedyncza cząsteczka glikogenu nosi nazwę cząstki beta [2]. W wątrobie i w sercu cząstki beta łączą się w większe cząstki alfa o wyglądzie rozetki [2]. U myszy średnica cząstek beta wynosiła około 20 nm, a cząstek alfa od 50 do 300 nm [9]. Sposób wiązania cząstek beta w cząstki alfa nie został wyjaśniony [2].
Glikogen zawiera też śladowe ilości fosforanu. Oczyszczona syntaza glikogenowa wprowadzała do glikogenu jedną resztę fosforanu na około 10 000 reszt glukozy [3]. Glikogen wiąże ponadto wodę: w przeglądzie fizjologii wysiłku podano, że z każdym gramem glikogenu magazynowane są co najmniej 3 g wody [5]. Szybki spadek masy ciała na początku diety ubogiej w węglowodany wynika w dużej mierze z utraty wody uwalnianej przy rozkładzie glikogenu [5]. Budowa ma zatem bezpośredni skutek czynnościowy: liczba końców łańcuchów wyznacza tempo, w jakim komórka może uwolnić glukozę [8].
1.3. Rys historyczny
Glikogen odkryto, badając pochodzenie cukru w organizmie zwierzęcia. W 1848 roku Claude Bernard i chemik Barreswil stwierdzili, że wątroba zawiera cukier, podczas gdy inne tkanki go nie zawierały [4]. W tym samym roku Bernard opisał glukogenną czynność wątroby, co zmieniło ówczesny pogląd na przemiany materii zwierząt [4]. Rozstrzygnięcie przyniósł przypadek z 1855 roku. Wątroba przepłukana zimną wodą, pozbawiona w ten sposób glukozy, następnego dnia znów zawierała jej dużo [4]. Bernard ustalił, że cukier powstaje z materiału nierozpuszczalnego w alkoholu i wrażliwego na ciepło, a w 1857 roku opisał metodę jego izolacji [4].
Kolejne pytanie dotyczyło sposobu, w jaki glikogen się rozkłada. Carl i Gerty Cori wykazali, że rozkład glikogenu daje glukozo-1-fosforan, nazwany estrem Coriego, oraz mleczan [10]. Odkryli enzym katalizujący ten rozkład, czyli fosforylazę, i wyodrębnili jej dwie postaci [10]. W 1947 roku otrzymali za te prace Nagrodę Nobla [10]. W 1955 roku Fischer i Krebs opisali w wyciągach z mięśnia przejście fosforylazy b w aktywną fosforylazę a [11]. Dwa lata później ustalono, że cykliczny AMP jest przekaźnikiem wtórnym adrenaliny [12]. Prace Coriów nad fosforylazą otworzyły więc drogę badaniom nad fosforylacją enzymów i układem cyklicznego AMP [10].
1.4. Synteza i źródła
Glikogen powstaje z glukozy dostarczanej krwią i najintensywniej gromadzi się w wątrobie po posiłku, a w mięśniach szkieletowych po wysiłku [1]. Synteza wymaga najpierw wniknięcia glukozy do komórki. W wątrobie przenosi ją transporter glukozy typu 2 (GLUT2), białko błonowe działające zgodnie z różnicą stężeń między krwią a hepatocytem [3]. W mięśniu i w tkance tłuszczowej działa transporter glukozy typu 4 (GLUT4), którego obecność w błonie zwiększa insulina [3].
W komórce glukoza przechodzi kilka etapów, zanim stanie się częścią glikogenu [1]. Najpierw heksokinaza w mięśniu albo glukokinaza w wątrobie przyłącza do niej fosforan i powstaje glukozo-6-fosforan (G6P) [3]. G6P, czyli ufosforylowana glukoza, nie opuszcza komórki i może wejść do kilku szlaków [1]. Fosfoglukomutaza przenosi fosforan na pierwszy atom węgla, tworząc glukozo-1-fosforan [1]. Pirofosforylaza przekształca go następnie w urydynodifosforan glukozy (UDP-glukozę), czyli aktywną postać cukru, zużywając urydynotrifosforan [3]. UDP-glukoza jest bezpośrednim dawcą glukozy dla wszystkich kolejnych reakcji [1].
Glikogenina tworzy krótki łańcuch startowy, a syntaza glikogenowa wydłuża go, dołączając kolejne reszty wiązaniami alfa-1,4 [1]. Enzym rozgałęziający przenosi fragmenty łańcucha i wiąże je wiązaniem alfa-1,6, wprowadzając rozgałęzienia w regularnych odstępach [1]. Każde rozgałęzienie tworzy nowy koniec, który syntaza może dalej wydłużać.
glukoza → glukozo-6-fosforan → glukozo-1-fosforan → UDP-glukoza → (glikogenina) → łańcuch α-1,4 → rozgałęzienia α-1,6
Glukoza trafia do glikogenu wątroby dwiema drogami. W drodze bezpośredniej pochodzi z posiłku, a w drodze pośredniej z glukozy wytworzonej na nowo w samej wątrobie [13]. U dorosłego człowieka w wątrobie jest około 100 g glikogenu, a w mięśniach szkieletowych około 400 g [14]. Glikogen zajmuje 5–6% objętości hepatocytu i 1–2% objętości komórki mięśniowej [5]. Mięśnie mają zatem większy zapas łącznie, ale glikogen zajmuje większą część objętości komórki wątroby.
2. Mechanizm działania i funkcje
2.1. Wejście do przemian i punkty regulacji
Glikogen oddaje zmagazynowaną glukozę dwiema drogami: w cytoplazmie i w lizosomach [1]. Drogę cytoplazmatyczną prowadzą fosforylaza i enzym usuwający rozgałęzienia, a drogę lizosomalną autofagia i kwaśna alfa-glukozydaza [1, 15].
W cytoplazmie stanem wyjściowym jest cząstka glikogenu z wieloma nierozgałęzionymi końcami łańcuchów. Fosforylaza glikogenowa odcina od tych końców kolejne reszty glukozy, używając fosforanu nieorganicznego zamiast wody, i uwalnia glukozo-1-fosforan [1, 14]. Enzym zatrzymuje się cztery reszty przed punktem rozgałęzienia [3]. Dalszy rozkład wymaga enzymu usuwającego rozgałęzienia, który przenosi krótki odcinek łańcucha i rozcina wiązanie alfa-1,6 [1, 3]. Fosfoglukomutaza przekształca następnie glukozo-1-fosforan w glukozo-6-fosforan [1].
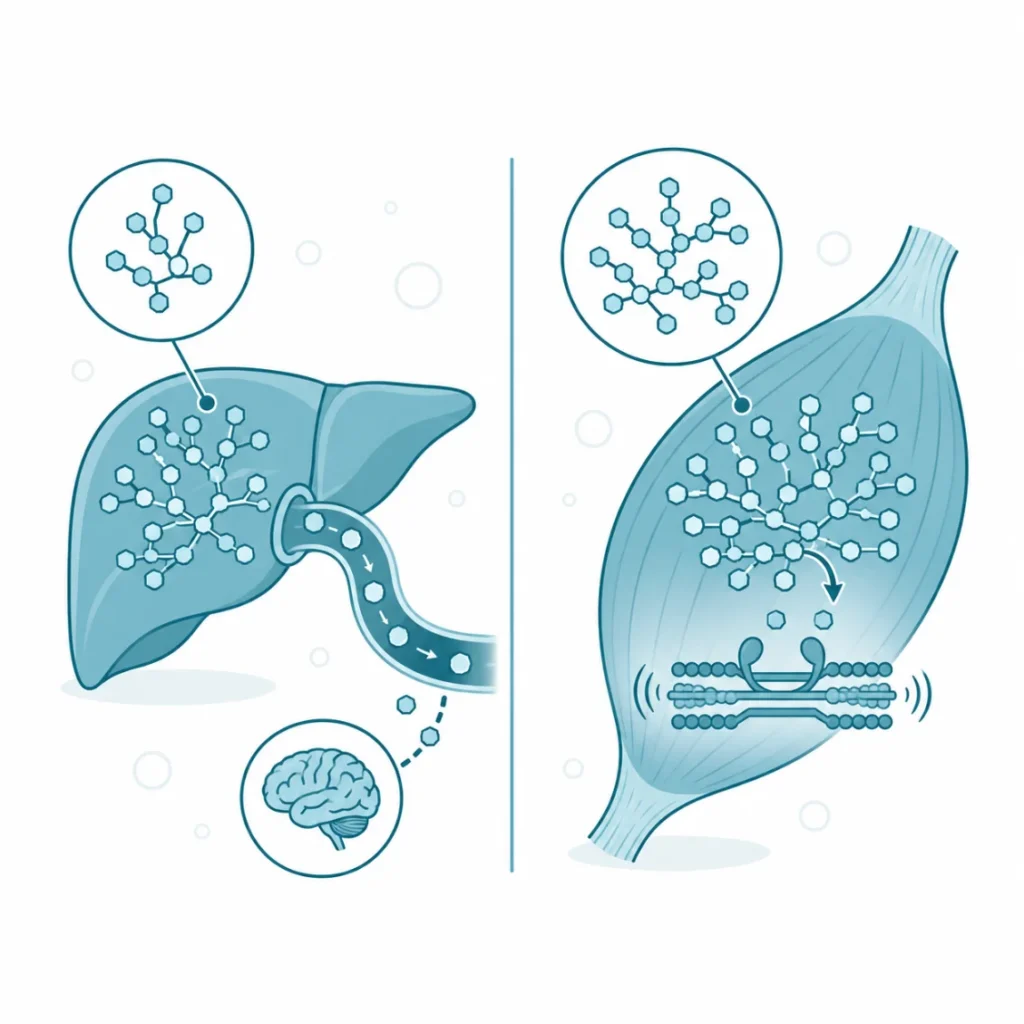
Od tego miejsca wątroba i mięsień postępują odmiennie. W wątrobie układ glukozo-6-fosfatazy odłącza fosforan, a wolna glukoza opuszcza komórkę i trafia do krwi [1]. Glikogen mięśniowy służy wyłącznie jako paliwo dla pracy samego mięśnia [16]. Glukozo-6-fosforan pozostaje więc we włóknie mięśniowym i wchodzi do glikolizy, dostarczając energii do skurczu [5]. Z tej różnicy wynika podział ról: glikogen wątroby chroni stężenie glukozy we krwi, a glikogen mięśni pracę mięśnia.
Druga droga prowadzi przez lizosom i nosi nazwę glikofagii. Białko STBD1, czyli białko z domeną wiążącą skrobię, wiąże glikogen i kieruje go do autofagosomu, pęcherzyka, który zlewa się z lizosomem [15]. W lizosomie kwaśna alfa-glukozydaza rozkłada glikogen do wolnej glukozy [3, 15]. Glikofagia nasila się w czasie głodzenia i wysiłku, a jej sterowanie obejmuje szlaki kinazy aktywowanej przez AMP, kinazy mTOR regulującej wzrost komórki oraz cyklicznego AMP [15]. W hepatocytach w lizosomach może się znajdować nawet 10% glikogenu komórki [3].
Głównymi punktami regulacji są syntaza glikogenowa i fosforylaza glikogenowa [3]. Fosforylacja hamuje syntazę, a fosforylazę przeprowadza w postać bardziej aktywną [3, 14]. W mięśniu tempo syntezy zależy też od transportu glukozy przez GLUT4 i od heksokinazy [3]. Te same sygnały przestawiają oba enzymy w przeciwnych kierunkach, więc komórka w danej chwili przeważnie buduje albo rozkłada glikogen.
2.2. Działanie sygnałowe i strukturalne
Glikogen nie jest biernym magazynem, lecz rusztowaniem, na którym gromadzą się białka jego przemian. Z cząstką glikogenu wiążą się glikogenina, syntaza, fosforylaza, enzym usuwający rozgałęzienia, kinaza fosforylazy i fosfataza białkowa 1 z podjednostkami kierującymi [3]. Wiążą się z nią także laforyna i białko STBD1 [3]. Enzymy syntezy i rozkładu działają więc razem ze swoimi regulatorami w bezpośrednim sąsiedztwie substratu.
Glikogen może także przekazywać informację o stanie zapasów. Podjednostki beta kinazy aktywowanej przez AMP (AMPK), czyli enzymu, który wyczuwa niedobór energii w komórce, mają domenę wiążącą glikogen [3, 17]. Hipoteza McBride i Hardiego zakłada, że AMPK związana z pełną cząstką glikogenu fosforyluje syntazę i hamuje dalsze wydłużanie łańcuchów [17]. Po wyczerpaniu glikogenu odsłonięte rozgałęzienia miałyby hamować AMPK, co pozwala fosfatazie uruchomić syntazę i szybko odbudować zapas [17]. U ludzi rozpoczynających wysiłek z niskim zapasem glikogenu w mięśniu aktywność AMPK po wysiłku była większa niż przy zapasie wysokim [14]. Przegląd fizjologii wysiłku opisuje glikogen jako silny regulator szlaków sygnałowych, które kształtują tlenowy profil włókien mięśniowych [14].
Rola strukturalna dotyczy położenia glikogenu we włóknie mięśniowym. Część ziaren leży między miofibrylami, blisko siateczki sarkoplazmatycznej, która uwalnia wapń potrzebny do skurczu [3, 14]. W badaniu u narciarzy niska zawartość glikogenu w mięśniu wiązała się z upośledzonym uwalnianiem wapnia z siateczki [18]. Wyczerpanie glikogenu w długim wysiłku może więc osłabiać skurcz nie tylko przez brak paliwa, lecz także przez zaburzenie sygnału wapniowego [18].
2.3. Funkcje
2.3.1. Zapas glukozy dla organizmu
Glikogen wątroby jest jedynym dużym magazynem glukozy, z którego glukoza trafia bezpośrednio do krwi [1, 16]. Wątroba syntetyzuje go po posiłku, gdy stężenie glukozy w żyle wrotnej rośnie, i rozkłada między posiłkami [19]. Stanem wyjściowym jest więc wypełniony zapas po jedzeniu, a bodźcem spadek glukozy we krwi i zmiana sygnałów hormonalnych. Wątroba rozkłada wtedy glikogen i oddaje wolną glukozę do krwi [1]. Glukoza ta dociera do mózgu, erytrocytów i innych tkanek.
Skalę tego zapasu dobrze oddaje porównanie liczbowe. Glikogen wątroby zawiera ponad 80 g glukozy, a we krwi krąży jej około 4 g [5]. Wątroba uwalnia glukozę w tempie zbliżonym do jej poboru przez tkanki [5]. Dzięki temu stężenie glukozy we krwi mieści się między 70 a 100 mg/dl, czyli między 4,0 a 5,5 mmol/l, a mózg ma stały dopływ paliwa [5]. Gdy zapas glikogenu maleje, wątroba zwiększa udział glukoneogenezy, czyli wytwarzania glukozy z aminokwasów i glicerolu [5]. Glikogen wątroby jest więc buforem pierwszej linii, który chroni mózg przed niedocukrzeniem w krótkich przerwach między posiłkami.
2.3.2. Paliwo lokalne mięśnia
Glikogen mięśni szkieletowych jest największym zapasem węglowodanów w organizmie, lecz służy wyłącznie pracy mięśnia, w którym się znajduje [14, 16]. Jego rozkład uruchamiają skurcz i katecholaminy, czyli hormony rdzenia nadnerczy [16]. Tempo zużycia zależy przede wszystkim od intensywności wysiłku: im większa intensywność, tym szybciej maleje zapas [5]. Powtarzane sprinty mogą znacznie obniżyć glikogen w pracujących włóknach mimo krótkiego łącznego czasu pracy [5].
Mięsień rozkłada glikogen w glikolizie i w mitochondriach, a uzyskana energia odtwarza adenozynotrifosforan (ATP), nośnik energii potrzebny do skurczu [5]. Przemiany glikogenu mają większe znaczenie we włóknach szybkokurczliwych typu II niż we włóknach wolnokurczliwych [3]. Po wysiłku synteza glikogenu w mięśniu przebiega w dwóch fazach [5]. Pierwsza jest szybka, nie wymaga insuliny i przy dużym ubytku glikogenu trwa 30–40 minut, a druga zależy od insuliny i przebiega wolniej [5]. Mięsień magazynuje więc glukozę dla siebie, a jego glikogen wyznacza, jak długo włókna mogą utrzymać intensywną pracę.
2.3.3. Rezerwa energetyczna mózgu
Glikogen mózgu występuje w stężeniu znacznie niższym niż w wątrobie i mięśniach, a w dorosłym mózgu gromadzą go głównie astrocyty [6]. Astrocyty leżą między naczyniem krwionośnym a synapsą, więc ich zapas znajduje się blisko neuronów, które zużywają najwięcej energii. Stężenie glikogenu w astrocytach zmienia się pod wpływem niektórych neuroprzekaźników i stężenia glukozy w otoczeniu [6].
W hipoglikemii astrocyty rozkładają glikogen do mleczanu, który przejmują sąsiednie neurony i aksony jako paliwo tlenowe [6]. W istocie białej takie źródło energii podtrzymuje przewodzenie w aksonach przez 20 minut lub dłużej [6]. Ten sam mechanizm działa w okresach bardzo intensywnej pracy neuronów, gdy zapotrzebowanie przewyższa dopływ glukozy z krwi [6].
Glikogen astrocytów uczestniczy także w pamięci. W badaniu na szczurach uczenie się podnosiło stężenie mleczanu w hipokampie, a mleczan ten pochodził z glikogenu astrocytów [20]. Zahamowanie rozkładu glikogenu upośledzało pamięć długotrwałą, ale nie krótkotrwałą [20]. Dane o udziale glikogenu astrocytów w pamięci pochodzą z modelu zwierzęcego i nie zostały potwierdzone bezpośrednio u ludzi. Glikogen mózgu jest więc niewielką rezerwą, ale chroni neurony przed skutkami krótkotrwałego niedoboru glukozy.
2.3.4. Zapas w sercu i innych tkankach
Glikogen serca zajmuje około 2% objętości komórki mięśnia sercowego [5]. W odróżnieniu od glikogenu mięśni szkieletowych, na który krótkotrwały post nie wpływa, zapas w sercu może w czasie głodzenia rosnąć [5]. Przegląd tłumaczy to magazynowaniem w sercu glukozy wytworzonej z aminokwasów i glicerolu, dzięki czemu serce zachowuje własny zapas energii [5]. W sercu, podobnie jak w wątrobie, cząstki beta glikogenu łączą się w większe cząstki alfa [2].
Glikogen występuje także w nerkach, tkance tłuszczowej i erytrocytach, lecz jego czynność w tych tkankach jest w większości nieznana [1]. Część danych dotyczy stanów chorobowych. Zaburzenie glikofagii, czyli lizosomalnego rozkładu glikogenu, wiąże się między innymi z kardiomiopatią cukrzycową [15]. W glikogenozie typu I glikogen i tłuszcz gromadzą się nadmiernie w wątrobie, nerkach i błonie śluzowej jelita [21]. Dane o mniejszych magazynach glikogenu dotyczą więc w dużej części stanów, w których ich przemiana jest zaburzona.
2.4. Regulacja przemian i zmienność dobowa
Glikogen jest syntetyzowany i rozkładany pod kontrolą trzech rodzajów sygnałów: hormonalnych, allosterycznych i związanych z porą posiłków [3, 19]. Sygnały hormonalne zmieniają fosforylację enzymów. Sygnały allosteryczne to małe cząsteczki, które wiążą się z enzymem i zmieniają jego kształt.
Insulina pobudza syntezę glikogenu przez łańcuch kinaz. Receptor insuliny uruchamia kinazę fosfatydyloinozytolu 3 (PI3K), a ta aktywuje kinazę białkową B, zwaną też AKT [22]. AKT fosforyluje kinazę syntazy glikogenu 3 (GSK3) i w ten sposób ją wyłącza [22]. GSK3 w stanie aktywnym fosforyluje syntazę glikogenową i obniża jej aktywność [3]. Po wyłączeniu GSK3 fosfataza białkowa 1 z podjednostkami kierującymi do glikogenu usuwa fosforany z syntazy [3]. Syntazę aktywuje też allosterycznie glukozo-6-fosforan, który znosi nawet hamujący skutek fosforylacji [3]. U myszy z syntazą mięśniową niewrażliwą na glukozo-6-fosforan synteza glikogenu pod wpływem insuliny była mniejsza o około 80% [23]. W mięśniu właśnie ta allosteryczna aktywacja okazała się głównym mechanizmem działania insuliny na zapas glikogenu [23].
Rozkład glikogenu uruchamiają glukagon w wątrobie i adrenalina w wątrobie i mięśniu. Oba hormony podnoszą w komórce stężenie cyklicznego AMP (cAMP), przekaźnika wtórnego, który aktywuje kinazę białkową A (PKA) [3, 12]. PKA fosforyluje kinazę fosforylazy, a ta przekształca fosforylazę b w aktywną fosforylazę a [3, 14]. Kinazy tej kaskady są enzymami, więc na każdym z tych etapów sygnał ulega wzmocnieniu.
W mięśniu przeważa kontrola lokalna. Jony wapnia uwalniane przy skurczu wiążą się z podjednostką kalmodulinową kinazy fosforylazy i aktywują ją allosterycznie [14]. Adenozynomonofosforan (AMP), adenozynodifosforan i fosforan nieorganiczny, które przybywają przy rozkładzie ATP, dodatkowo pobudzają fosforylazę [14]. Rozkład glikogenu przyspiesza więc w tym samym tempie, w jakim rośnie zużycie energii przez włókno.
W wątrobie rolę sygnału lokalnego pełni sama glukoza. Glukoza, glukozo-6-fosforan i nukleotydy adeninowe zmieniają kształt fosforylazy, a od tego kształtu zależy tempo przejścia aktywnej fosforylazy a w nieaktywną fosforylazę b [19]. Przejście to jest jednym z głównych ogniw, przez które glukoza uruchamia syntezę glikogenu w wątrobie [19]. Fosforylaza a hamuje podjednostkę fosfatazy, która aktywuje syntazę glikogenową [19]. Synteza glikogenu w wątrobie rusza zatem dopiero po inaktywacji fosforylazy, co zapobiega jednoczesnej budowie i rozkładowi zapasu.
Kierunek działania głównych sygnałów na oba enzymy zestawia tabela.
| Sygnał | Tkanka | Syntaza glikogenowa | Fosforylaza glikogenowa |
| insulina (przez AKT i GSK3) | wątroba, mięsień | aktywacja | hamowanie |
| glukagon (przez cAMP i PKA) | wątroba | hamowanie | aktywacja |
| adrenalina (przez cAMP i PKA) | wątroba, mięsień | hamowanie | aktywacja |
| jony wapnia | mięsień | – | aktywacja przez kinazę fosforylazy |
| AMP, fosforan nieorganiczny | mięsień | – | aktywacja |
| glukozo-6-fosforan | wątroba, mięsień | aktywacja allosteryczna | hamowanie |
| glukoza | wątroba | aktywacja pośrednia | inaktywacja |
Z zestawienia wynika, że insulina i glukoza przesuwają równowagę ku syntezie, a hormony stresu i skurcz mięśnia ku rozkładowi.
Zapas glikogenu wątroby zmienia się w rytmie posiłków i doby [19]. W badaniu ze spektroskopią rezonansu magnetycznego węgla 13 mierzono glikogen wątroby co 3–12 godzin w czasie 68-godzinnego postu [24]. W pierwszych 22 godzinach postu glukoneogeneza dostarczała 64% glukozy wytwarzanej przez organizm, a w kolejnych okresach 82% i 96% [24]. Glikogen wątroby pokrywa więc tylko część potrzeb już w pierwszej dobie postu. Po nocnym poście zapas glikogenu w wątrobie jest mniejszy, a w mięśniach pozostaje niezmieniony [14]. Różnica wynika z podziału ról: wątroba oddaje glukozę całemu organizmowi, a mięsień w spoczynku prawie nie zużywa swojego zapasu.
2.5. Przemiany końcowe i wydalanie
Glikogen kończy przemianę jako glukoza albo jej produkty rozkładu, a drogę wyznacza tkanka, w której się znajdował. Glukoza z glikogenu wątroby trafia do krwi i jest zużywana przez inne narządy [1]. Glukoza z glikogenu mięśni zostaje we włóknie i ulega glikolizie [5, 16].
Pirogronian z glikolizy w mięśniu ulega spaleniu w mitochondriach do dwutlenku węgla i wody albo zamienia się w mleczan [5]. Mleczan przechodzi do krwi i dociera do wątroby, która wytwarza z niego glukozę. Ta glukoza może wrócić do mięśnia i posłużyć do odbudowy glikogenu, a obieg ten opisali w 1929 roku Carl i Gerty Cori [10]. W mózgu mleczan z glikogenu astrocytów przechodzi do neuronów i tam ulega spaleniu [6].
Niewielka część glikogenu rozkłada się w lizosomach do wolnej glukozy [15]. Produkt częściowego rozkładu glikogenu, czterocukier glukozy, pojawia się w moczu, a jego podwyższone wydalanie wykorzystuje się jako biomarker choroby Pompego [25]. Czterocukier w moczu jest więc śladem przemian glikogenu, który można oznaczyć bez pobierania tkanki.

3. Zaburzenia i modyfikacja
3.1. Zaburzenia dostępności
Glikogen jest zapasem ograniczonym, więc jego wyczerpanie zdarza się także u zdrowego człowieka. Dotyczy to przede wszystkim mięśni w długim wysiłku [26].
Związek między glikogenem mięśni a wytrzymałością ustalono w latach sześćdziesiątych ubiegłego wieku, gdy do badań wprowadzono igłową biopsję mięśnia [5, 14]. W 1967 roku Bergström, Hermansen, Hultman i Saltin opisali zależność między dietą, zawartością glikogenu w mięśniu a zdolnością do wysiłku [27]. Stanem wyjściowym jest mięsień z pełnym zapasem, a bodźcem wysiłek o umiarkowanej intensywności trwający dłużej niż półtorej godziny. W takim wysiłku wyczerpanie zbiega się zwykle z krytycznie niską zawartością glikogenu, około 25 mmol na kilogram mokrej masy mięśnia [26]. Przegląd interpretuje to tak, że zwiększone spalanie glukozy z krwi nie zastępuje energii z rozkładu glikogenu [26]. Do zmęczenia przyczynia się też upośledzone uwalnianie wapnia z siateczki sarkoplazmatycznej przy niskim zapasie glikogenu [18]. Zapas glikogenu wyznacza więc czas, przez który mięsień utrzymuje umiarkowaną intensywność pracy.
Wątroba traci glikogen w czasie głodzenia, lecz zdrowy organizm uzupełnia niedobór glukozy przez glukoneogenezę [24]. Skutki braku glukozy z wątroby ujawniają się najwyraźniej w glikogenozie typu I, w której zablokowane są obie drogi [21]. Nadmierne gromadzenie glikogenu nie występuje u zdrowego człowieka jako osobny stan, lecz jest cechą części glikogenoz, w których zablokowany rozkład powoduje odkładanie glikogenu w wątrobie lub w mięśniach [28].
3.2. Rola glikogenu w patogenezie chorób
Glikogenozy to grupa rzadkich chorób jednogenowych, w których wada dotyczy syntezy albo rozkładu glikogenu [28]. W przeglądzie z 2021 roku wymieniono 19 typów wywołanych brakiem jednego lub kilku enzymów przemian glikogenu [25]. Wszystkie dziedziczą się autosomalnie recesywnie, z wyjątkiem części postaci typu IX, sprzężonych z chromosomem X [25, 29]. Klinicznie dzieli się je na glikogenozy wątrobowe i mięśniowe [28]. W postaciach wątrobowych wątroba nie oddaje glukozy do krwi, co prowadzi do niedocukrzeń na czczo i do jej powiększenia [21, 29]. W postaciach mięśniowych włókno nie może zużyć własnego glikogenu i nie toleruje wysiłku [30].
Najlepiej poznane typy, ich wadliwy enzym i główne objawy zestawia tabela.
| Typ | Wadliwe ogniwo | Główne narządy | Główne objawy |
| I | glukozo-6-fosfataza (Ia) albo transporter glukozo-6-fosforanu (Ib) | wątroba, nerki, jelito | hipoglikemia, powiększenie wątroby, kwasica mleczanowa, hiperlipidemia, hiperurykemia, w typie Ib neutropenia |
| II (choroba Pompego) | kwaśna alfa-glukozydaza (lizosomalna) | mięśnie szkieletowe, serce | kardiomiopatia i wiotkość w postaci niemowlęcej, osłabienie mięśni oddechowych i kończyn w postaci późnej |
| III | enzym usuwający rozgałęzienia | wątroba, serce, mięśnie | powiększenie wątroby, hipoglikemia, hiperlipidemia, opóźnienie wzrostu, w typie IIIa miopatia |
| V (choroba McArdle’a) | fosforylaza mięśniowa | mięśnie szkieletowe | nietolerancja wysiłku, bóle mięśni, mioglobinuria, stale podwyższona kinaza kreatynowa |
| VI | fosforylaza wątrobowa | wątroba | powiększenie wątroby, podwyższone aminotransferazy, hipoglikemia z ketozą |
| IX | kinaza fosforylazy | wątroba (IXa–IXc), mięśnie (IXd) | jak w typie VI, w typie IXd objawy mięśniowe |
Z zestawienia wynika, że wady enzymów wątrobowych prowadzą głównie do niedocukrzeń, a wady enzymów mięśniowych do objawów wysiłkowych i osłabienia mięśni.
W glikogenozie typu I wadą jest brak glukozo-6-fosfatazy albo transportera, który wprowadza glukozo-6-fosforan do siateczki śródplazmatycznej [21]. Wątroba nie może wtedy uwolnić glukozy ani z glikogenu, ani z glukoneogenezy. Glikogen i tłuszcz gromadzą się w wątrobie, nerkach i błonie śluzowej jelita [21]. Nadmiar glukozo-6-fosforanu kieruje się do innych szlaków, a chorzy mają kwasicę mleczanową, hiperlipidemię i hiperurykemię [21]. Objawy niedocukrzenia pojawiają się w niemowlęctwie, gdy przerwy między karmieniami wydłużają się do 3–4 godzin [21]. W typie Ib dochodzą neutropenia i upośledzona czynność neutrofilów [21]. Inhibitory kotransportera sodowo-glukozowego 2 (SGLT2), leki zmniejszające wchłanianie zwrotne glukozy w nerkach, stosuje się w typie Ib w leczeniu neutropenii i dysfunkcji neutrofilów [28].
W chorobie Pompego glikogen gromadzi się w lizosomach, bo brakuje kwaśnej alfa-glukozydazy [3]. W najcięższej postaci choroba prowadzi do zgonu w pierwszym roku życia z powodu kardiomiopatii i wiotkości mięśni [3]. Leczeniem przyczynowym jest enzymatyczna terapia zastępcza, czyli podawanie rekombinowanego enzymu [28]. W badaniu z randomizacją COMET u 100 chorych z późną postacią choroby porównano nowszy enzym, awalglukozydazę alfa, z alglukozydazą alfa [31]. Nowszy enzym ma zwiększone powinowactwo do receptora mannozo-6-fosforanu, który wprowadza go do komórek mięśniowych [31]. Po 49 tygodniach natężona pojemność życiowa zmieniła się o 2,89 i 0,46 punktu procentowego wartości należnej, co spełniło kryterium nie gorszej skuteczności, ale nie przewagi [31]. Dystans w teście 6-minutowego marszu był większy o 30 m w grupie leczonej awalglukozydazą [31].
W chorobie McArdle’a brakuje fosforylazy mięśniowej, więc pracujący mięsień nie może rozłożyć własnego glikogenu. W serii 15 chorych bóle i męczliwość wysiłkowa występowały u wszystkich, a zjawisko tak zwanego drugiego oddechu u 53% [30]. Aktywność kinazy kreatynowej była podwyższona w 930 z 931 pomiarów, a mioglobinurię stwierdzono u 60% chorych [30]. Mediana opóźnienia rozpoznania wyniosła 11 lat [30]. Wysiłek bez rozkładu glikogenu nie daje wzrostu mleczanu we krwi [32]. W glikogenozie typu III niedobór enzymu usuwającego rozgałęzienia powoduje odkładanie glikogenu o nieprawidłowej budowie w wątrobie i mięśniach [33]. Typy VI i IX dotyczą fosforylazy wątrobowej i kinazy fosforylazy, a klinicznie są często nie do odróżnienia [29]. W przeglądzie systematycznym 400 chorych z typem IX powiększenie wątroby występowało u 91,7% chorych z typem IXc [34].
Choroba Lafory pokazuje, że zaburzona może być także budowa glikogenu. Wywołują ją mutacje genów laforyny, fosfatazy usuwającej fosforan z glikogenu, albo maliny, ligazy ubikwitynowej współpracującej z laforyną [35]. W chorobie powstaje glikogen za słabo rozgałęziony i o zbyt długich łańcuchach [35]. Taki glikogen wytrąca się jako nierozpuszczalne ciała Lafory, zbudowane z tak zwanych poliglukozanów [3, 35]. W neuronach złogi te wyzwalają zapalenie, zwyrodnienie i lekooporną padaczkę [35]. Postępujące otępienie prowadzi do zgonu zwykle w ciągu 10 lat od pierwszych objawów [3]. Badane kierunki leczenia obejmują zastąpienie brakującego genu, spowolnienie syntazy glikogenowej i enzymy trawiące ciała Lafory [35].
Glikogen jest też ogniwem cukrzycy typu 2. W badaniu z klamrą hiperglikemiczno-hiperinsulinemiczną zmierzono syntezę glikogenu w mięśniu łydki spektroskopią rezonansu magnetycznego u 5 chorych i 6 osób zdrowych [7]. Synteza wynosiła 78 i 183 µmol reszt glukozy na kilogram mięśnia na minutę, a synteza glikogenu mięśniowego okazała się główną drogą usuwania glukozy z krwi [7]. W kolejnym badaniu tej grupy ograniczeniem okazał się transport glukozy do włókna, a nie aktywność heksokinazy [36]. Upośledzona synteza glikogenu jest więc wyrazem insulinooporności mięśni. W wątrobie chorzy na cukrzycę słabiej magazynują glukozę w glikogenie zarówno drogą bezpośrednią, jak i pośrednią [13]. Zubożenie zapasu nasila glukoneogenezę i zwiększa oddawanie glukozy do krwi na czczo i po posiłku [13]. U myszy z cukrzycą cząstki alfa glikogenu wątroby rozpadały się łatwiej na mniejsze cząstki beta [9]. Znaczenie tej kruchości dla regulacji glikemii u ludzi pozostaje przypuszczeniem [2].
3.3. Modyfikacja behawioralna i dietetyczna
Glikogen jest zapasem, którego wielkość zależy od diety i aktywności fizycznej [5]. W mięśniu gromadzi się głównie po wysiłku [1]. Poprawa wydolności fizycznej jest dodatkowym bodźcem do zwiększania zapasów glikogenu w mięśniach [5].
Odbudowa glikogenu po wysiłku zależy przede wszystkim od podaży węglowodanów i od czasu [5]. W przytaczanym w przeglądzie badaniu dieta bogata w węglowodany przywróciła w ciągu 24 godzin 93% glikogenu zużytego w 2-godzinnym wysiłku na rowerze [5]. Dieta uboga w węglowodany przywróciła w tym czasie tylko 13% [5]. Dieta bogata w węglowodany, połączona z odpoczynkiem i zmniejszeniem objętości treningu, prowadzi do superkompensacji, czyli zapasu większego niż wyjściowy [5].
Dieta niskowęglowodanowa nie musi wyczerpywać glikogenu mięśni. W badaniu przekrojowym porównano 10 sportowców wytrzymałościowych stosujących dietę niskowęglowodanową przez średnio 20 miesięcy z 10 sportowcami na diecie wysokowęglowodanowej [37]. Szczytowe spalanie tłuszczu było w pierwszej grupie 2,3 raza większe [37]. Zawartość glikogenu w mięśniu w spoczynku i jej spadek po 180 minutach biegu nie różniły się między grupami [37]. Badanie miało charakter przekrojowy, więc nie wyjaśnia, jakimi drogami mięsień odtwarzał zapas.
W sporcie badano też trening przy niskim zapasie glikogenu. Wysiłek po nocnym poście zwiększał aktywność AMPK i ekspresję genów przemian tłuszczów i mitochondriów w porównaniu z wysiłkiem po posiłku węglowodanowym [14]. Wzmocnienie sygnałów komórkowych i poprawa wyników sportowych nie występowały jednak we wszystkich badaniach [14]. Zawartość glikogenu jest więc zmienną, którą organizm dostosowuje do diety, a nie stałą cechą mięśnia.
3.4. Wsparcie suplementacyjne
Kilka substancji dostępnych jako suplementy zmieniało zawartość albo tempo syntezy glikogenu w badaniach u ludzi lub zwierząt. Kreatyna zwiększała superkompensację glikogenu mięśniowego. W badaniu u 14 mężczyzn kreatyna przyjmowana z dietą bogatą w węglowodany podnosiła zawartość glikogenu w mięśniu ponad wartości w grupie placebo już po pierwszej dobie odpoczynku po wyczerpującym wysiłku [38]. Efekt nie wynikał ze zmian wrażliwości na insulinę ani objętości komórki, więc jego mechanizm pozostaje niewyjaśniony [38]. We wcześniejszym badaniu u 12 mężczyzn po nasyceniu mięśnia kreatyną zawartość glikogenu po superkompensacji wzrosła z 597 do 694 mmol na kilogram suchej masy [39].
Kofeina przyjmowana z węglowodanami przyspieszała odbudowę glikogenu. W badaniu z randomizacją w układzie naprzemiennym u 7 wytrenowanych osób po wyczerpującej jeździe na rowerze tempo syntezy w ciągu 4 godzin było o 66% większe niż po samych węglowodanach [40]. Towarzyszyła temu silniejsza fosforylacja kinazy zależnej od wapnia i kalmoduliny [40]. W przeglądzie systematycznym siedmiu prac przyspieszenie resyntezy glikogenu po kofeinie opisano w jednym badaniu u ludzi, a autorzy podkreślili małą liczbę badań [41]. Chrom nie zwiększał syntezy glikogenu po wysiłku w badaniu z randomizacją u 16 mężczyzn z nadwagą [42].
Pozostałe dane pochodzą z modeli zwierzęcych. U otyłych szczurów Zucker kwas alfa-liponowy podawany pozajelitowo zwiększał pobudzaną insuliną syntezę glikogenu w mięśniu o 38% i zawartość glikogenu o 21% [43]. U myszy z cukrzycą wywołaną alloksanem berberyna przywracała zawartość glikogenu w wątrobie przez aktywację kinazy AKT [44]. Przeniesienie tych wyników na człowieka wymaga badań z pomiarem glikogenu u ludzi.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Kreatyna | zwiększa superkompensację glikogenu w mięśniu po wysiłku, mechanizm niewyjaśniony | ↑ | B |
| Kofeina | przyspiesza resyntezę glikogenu mięśniowego przy podaży węglowodanów, silniejsza fosforylacja kinazy zależnej od wapnia i kalmoduliny | ↑ | B |
| Kwas alfa-liponowy | zwiększa pobudzaną insuliną syntezę glikogenu w mięśniu (szczur, podanie pozajelitowe) | ↑ | C |
| Berberyna | przywraca glikogen wątroby w cukrzycy doświadczalnej przez aktywację AKT (mysz) | ↑ | C |
Najmocniejsze dane u ludzi dotyczą kreatyny i kofeiny, a dane dla kwasu alfa-liponowego i berberyny pochodzą z modeli zwierzęcych.
4. Uwagi praktyczne
4.1. Jak to zbadać
Glikogen jest składnikiem wnętrza komórek, dlatego jego zawartość mierzy się w tkance, a nie we krwi [5]. Wiedza o glikogenie mięśni pochodzi głównie z igłowej biopsji mięśnia [5]. Przez niewielkie nacięcie skóry wprowadza się igłę do mięśnia, najczęściej do mięśnia obszernego bocznego uda, i pobiera fragment tkanki, który zostaje szybko zamrożony [5]. Wynik podaje się w milimolach reszt glukozy na kilogram mokrej albo suchej masy mięśnia, a wartości w suchej masie są 4,325 raza wyższe [5]. W homogenacie całego mięśnia zawartość mieści się między 50 a 800 mmol na kilogram suchej masy, zależnie od wytrenowania, zmęczenia i diety [14]. Porównanie wyników z różnych badań wymaga więc sprawdzenia, czy podano je w tej samej jednostce.
Glikogen wątroby ocenia się pośrednio, najczęściej spektroskopią rezonansu magnetycznego [5]. Metoda ta z izotopem węgla 13 pozwoliła śledzić glikogen wątroby w czasie postu i syntezę glikogenu w mięśniu łydki bez pobierania tkanki [7, 24]. W fizjologii wysiłku oba pomiary są narzędziami badań naukowych [5, 14].
W diagnostyce glikogenoz ocenia się nie sam zapas glikogenu, lecz przyczynę jego zaburzenia. Wykorzystuje się obraz kliniczny, biomarkery, badania obrazowe, testy genetyczne, pomiar aktywności enzymu i badanie histologiczne tkanki [28]. W glikogenozie typu IX sekwencjonowanie nowej generacji zwiększyło trafność rozpoznania w porównaniu z tradycyjną biopsją [34]. Do stosowania klinicznego dopuszczono dwa biomarkery: kalprotektynę w wątrobowych glikogenozach i czterocukier glukozy w moczu w chorobie Pompego [25]. W chorobie McArdle’a wskazówką jest podwyższona aktywność kinazy kreatynowej w surowicy [30]. Wartości tej aktywności wahały się jednak u wszystkich chorych ponad pięciokrotnie między pomiarami, więc pojedynczy wynik słabo oddaje przebieg choroby [30]. Brak wzrostu mleczanu we krwi w nieniedokrwiennej próbie wysiłkowej przedramienia kieruje do badania genetycznego, które potwierdza rozpoznanie [32].
4.2. Na co warto zwrócić uwagę
Pierwsze częste przekonanie głosi, że nadmiar glikogenu zamienia się w tłuszcz. Glikogen nie jest jednak półproduktem syntezy tłuszczu, lecz odrębnym magazynem glukozy. W badaniu bilansu metabolicznego u trzech mężczyzn zapasy glikogenu mogły przyjąć około 500 g glikogenu, zanim synteza tłuszczu z węglowodanów zaczęła zwiększać masę tkanki tłuszczowej [45]. Dopiero po wypełnieniu zapasów nadmiar węglowodanów był spalany i przekształcany w tłuszcz w dużej ilości [45]. Synteza tłuszczu z węglowodanów nasila się więc wtedy, gdy glukozy nie można już zmagazynować w glikogenie.
Drugie przekonanie zakłada, że zwiększenie zapasu glikogenu przed wysiłkiem poprawia każdy wynik sportowy. Przegląd badań wskazał na brak albo znikomy wpływ podniesienia glikogenu powyżej wartości spoczynkowych w jednorazowym wysiłku o dużej intensywności trwającym krócej niż 5 minut [26]. Korzyści nie było także w biegu lub jeździe na rowerze o umiarkowanej intensywności trwających 60–90 minut, bo po takim wysiłku w mięśniach zostaje dużo glikogenu [26]. W wysiłku trwającym ponad 90 minut większy zapas opóźniał zmęczenie o około 20%, a w próbach na czas poprawiał wynik o 2–3% [26]. Korzyść zależy zatem od czasu trwania i intensywności wysiłku.
Trzecie przekonanie mówi, że mięśnie mogą oddać swój glikogen do krwi, gdy spada stężenie glukozy. Glikogen mięśniowy służy jednak wyłącznie pracy samego mięśnia [16]. Mięsień wzbogaca krew w glukozę tylko drogą okrężną, gdy mleczan z glikolizy trafia do wątroby i tam zostaje przekształcony w glukozę [10, 16]. Duży zapas glikogenu w mięśniach nie chroni więc przed niedocukrzeniem, a za stężenie glukozy we krwi odpowiada przede wszystkim wątroba [1].
Wiedza o glikogenie ma też ograniczenia. Większość danych o glikogenie mięśni pochodzi z biopsji mięśnia obszernego bocznego uda [5]. Pomiary biochemiczne i spektroskopowe nie oddają różnic między typami włókien ani między strefami wątroby [3]. Kluczowe badania spektroskopowe i badania suplementów obejmowały od kilku do kilkunastu osób [7, 40]. Rola glikogenu mózgu w pamięci opiera się na doświadczeniach na zwierzętach [20]. Rozpoznanie glikogenozy i decyzje o jej leczeniu należą do lekarza specjalisty chorób metabolicznych.