1. Profil substancji
1.1. Definicja i klasyfikacja interleukin
Interleukiny to białka sygnałowe należące do klasy cytokin, oznaczone symbolem IL i kolejnym numerem nadawanym po ustaleniu sekwencji aminokwasowej. Nazwa pochodzi od przekazywania sygnału „między leukocytami”, przy czym określenie to okazało się za wąskie: interleukiny wydzielają i odbierają również komórki nabłonka, fibroblasty, komórki śródbłonka i komórki glejowe [6].
Zasada nazewnictwa jest specyficzna i niekiedy może wprowadzać w błąd. Numer wskazuje kolejność opisania białka, nie pokrewieństwo. Interleukina 1 i interleukina 18 należą do jednej rodziny mimo odległych numerów, natomiast interleukina 17 i interleukina 18 nie mają ze sobą nic wspólnego poza nazwą [3, 4]. Wnioskowanie o działaniu z sąsiedztwa numerów jest zatem błędem, a właściwym kryterium porządkującym jest rodzina strukturalna i typ receptora.
Trzy pojęcia sąsiadujące wymagają rozgraniczenia. Cytokiny są klasą nadrzędną, obejmującą poza interleukinami także interferony, chemokiny i czynniki martwicy nowotworów, a reguły wspólne dla całej tej klasy opisuje osobne hasło. Interferony zostały nazwane przed wprowadzeniem numeracji interleukin i zachowały odrębne nazewnictwo, mimo że część z nich, w tym interferony typu III, bywa równolegle oznaczana numerami interleukin [21]. Czynniki wzrostu krwiotworzenia, w tym erytropoetyna, działają przez receptory z tej samej rodziny co część interleukin, natomiast ich nazwa wywodzi się z funkcji, nie z numeracji.
Zakres pojęcia obejmuje obecnie ponad czterdzieści białek, przy czym liczba ta rośnie wraz z opisywaniem kolejnych. Osobne hasło jest uzasadnione tym, że interleukiny stanowią najliczniejszą i najlepiej przebadaną grupę cytokin, a leki blokujące poszczególne interleukiny należą do najczęściej stosowanych leków biologicznych. Zrozumienie zasady ich podziału na rodziny jest warunkiem odczytania, dlaczego jeden lek działa w kilku chorobach naraz, a inny wyłącznie w jednej.
1.2. Budowa i właściwości interleukin
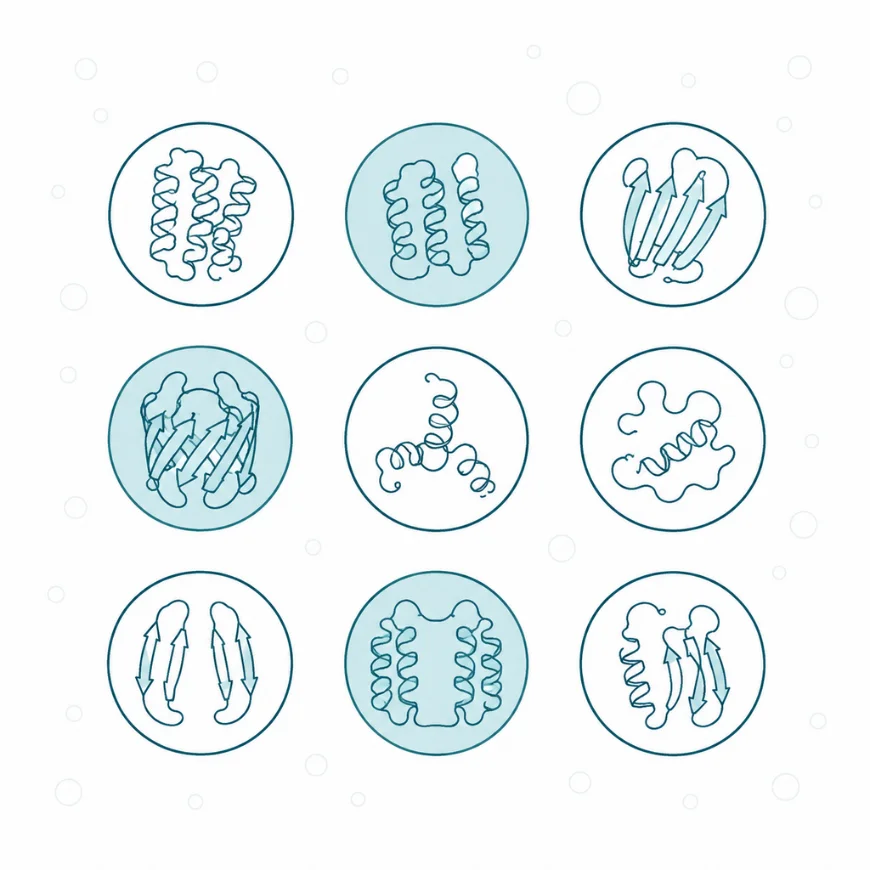
Budowa interleukin nie jest jednorodna, a trzy podstawowe wzory zwinięcia łańcucha odpowiadają trzem odrębnym rodzinom i trzem sposobom wiązania receptora.
Wzór pierwszy to wiązka czterech helis alfa, występująca w interleukinie 2, 4, 6, 7, 10, 15 i w czynnikach krwiotwórczych. Cząsteczki o tej budowie wiążą receptory klasy I i II, czyli receptory przekazujące sygnał przez kinazy janusowe [20]. Wzór drugi to beta-trójlistek, czyli układ dwunastu nici beta, charakterystyczny dla rodziny interleukiny 1 oraz dla czynników wzrostu fibroblastów [3]. Wzór trzeci to dimer stabilizowany mostkami cysteinowymi, występujący w rodzinie interleukiny 17.
Dwie cechy wspólne decydują o sposobie działania niezależnie od wzoru zwinięcia. Cechą pierwszą jest bardzo wysokie powinowactwo do receptora, mierzone stałymi dysocjacji rzędu pikomoli, dzięki czemu stężenia czynne są o kilka rzędów wielkości niższe niż stężenia hormonów. Cechą drugą jest budowa receptora z dwóch lub trzech podjednostek, w której jedna wiąże ligand, a pozostałe przekazują sygnał. Podjednostka przekazująca bywa wspólna dla kilku interleukin: białko gp130 obsługuje interleukinę 6 i pokrewne, a wspólny łańcuch gamma interleukiny 2, 4, 7, 9, 15 i 21 [1, 20].
Trzecia cecha dotyczy części przedstawicieli i rozstrzyga o sposobie regulacji. Interleukina 1β i interleukina 18 powstają jako prekursory pozbawione peptydu sygnałowego, przez co nie przechodzą zwykłą drogą wydzielniczą i wymagają przecięcia przez kaspazę 1 [3, 4]. Skutkiem takiego rozwiązania jest podwójne zabezpieczenie: samo pobudzenie transkrypcji nie wystarcza do uwolnienia cytokiny o silnym działaniu gorączkotwórczym.
1.3. Powstawanie i źródła interleukin
Interleukiny powstają na żądanie, w odpowiedzi na bodziec, i nie są magazynowane w postaci gotowej do wydzielenia. Droga od bodźca do wydzielenia obejmuje trzy kroki, a ich rozdzielenie ma znaczenie dla regulacji.
Krok pierwszy to rozpoznanie bodźca. Receptory rozpoznające wzorce drobnoustrojów, receptory limfocytów T i B, cytokiny działające wcześniej oraz sygnały uszkodzenia tkanki uruchamiają czynniki transkrypcyjne, przede wszystkim NF-κB i AP-1. Krok drugi to transkrypcja i translacja, trwające od kilkudziesięciu minut do kilku godzin, co wyznacza czas narastania odpowiedzi. Krok trzeci to wydzielenie, w większości przypadków drogą klasyczną przez siateczkę i aparat Golgiego.
Źródła komórkowe różnią się między rodzinami i wyznaczają miejsce działania. Makrofagi i komórki dendrytyczne wydzielają interleukiny 1, 6, 12 i 23, a limfocyty T pomocnicze interleukiny 2, 4, 5, 17 i 21. Limfocyty regulatorowe wydzielają interleukinę 10 i transformujący czynnik wzrostu beta, natomiast komórki nabłonka interleukiny 25 i 33 oraz limfopoetynę zrębu grasicy [4, 6]. Komórki nabłonka są przy tym źródłem najwcześniejszym, ponieważ wydzielają interleukiny alarmowe natychmiast po uszkodzeniu bariery, bez udziału komórek odpornościowych.
Osobną drogą powstaje interleukina 6 w mięśniu szkieletowym podczas wysiłku fizycznego. Wydzielanie to nie zależy od zapalenia i ma charakter metaboliczny, co odróżnia je od wydzielania w przebiegu odczynu zapalnego.
1.4. Rodziny i przedstawiciele interleukin
Podział na rodziny opiera się na budowie cząsteczki i typie receptora, a nie na numerze porządkowym. Zestawienie poniżej obejmuje rodziny o ustalonym znaczeniu klinicznym.
| Rodzina | Przedstawiciele | Typ receptora i szlak | Główny skutek |
| Rodzina IL-1 | IL-1α, IL-1β, IL-18, IL-33, IL-36, IL-37 | receptory z domeną TIR, adaptor MyD88, NF-κB | gorączka, pobudzenie śródbłonka, alarm po uszkodzeniu bariery |
| Rodzina IL-2 (wspólny łańcuch gamma) | IL-2, IL-4, IL-7, IL-9, IL-15, IL-21 | receptory klasy I, JAK-STAT | podziały i przeżycie limfocytów, ukierunkowanie odpowiedzi |
| Rodzina IL-6 (gp130) | IL-6, IL-11, IL-27, IL-31, onkostatyna M | receptory klasy I z gp130, JAK-STAT | odpowiedź ostrej fazy, regeneracja, różnicowanie Th17 |
| Rodzina IL-10 | IL-10, IL-19, IL-20, IL-22, IL-24, IL-26 | receptory klasy II, JAK-STAT | wygaszanie odpowiedzi, obrona i naprawa nabłonka |
| Rodzina IL-12 | IL-12, IL-23, IL-27, IL-35 | receptory klasy I, heterodimery, JAK-STAT | ukierunkowanie odpowiedzi na drobnoustroje wewnątrzkomórkowe albo na Th17 |
| Rodzina IL-17 | IL-17A, IL-17C, IL-17E (IL-25), IL-17F | receptory IL-17R, adaptor Act1, NF-κB | napływ neutrofilów, obrona nabłonka przed grzybami i bakteriami |
Rodzina interleukiny 1 jest najstarsza ewolucyjnie i najsilniej działająca. Obejmuje zarówno cytokiny pobudzające (IL-1α, IL-1β, IL-18, IL-33, IL-36), jak i hamujące (IL-37, antagonista receptora IL-1), przez co sama w sobie zawiera oba kierunki regulacji [3, 4]. Interleukina 33 wyróżnia się tym, że przebywa w jądrze komórki nabłonka i zostaje uwolniona dopiero po jej śmierci, pełniąc rolę sygnału alarmowego [4]. Rodzina ta uczestniczy w chorobach autozapalnych, w dnie moczanowej i w miażdżycy [5].
Rodzina wspólnego łańcucha gamma obejmuje interleukiny sterujące losem limfocytów. Interleukina 2 pobudza podziały limfocytów efektorowych, a równocześnie jest niezbędna limfocytom regulatorowym, które mają receptor o wyższym powinowactwie [13, 15]. Ta różnica powinowactwa leży u podstaw zależności od dawki, przy której mała dawka hamuje odpowiedź, a duża ją nasila.
Rodzina interleukiny 6 działa przez wspólną podjednostkę gp130 i łączy odpowiedź odpornościową z metabolizmem oraz regeneracją. Interleukina 6 wiąże receptor błonowy obecny na nielicznych komórkach, a przez postać rozpuszczalną tego receptora także komórki, które go nie mają, co poszerza zakres jej działania i zmienia jego kierunek [1, 2].
Rodzina interleukiny 10 obejmuje cytokiny wygaszające odpowiedź oraz cytokiny działające na nabłonki. Interleukina 22 nie działa na komórki odpornościowe wcale, tylko na komórki nabłonka jelita, skóry i dróg oddechowych, pobudzając wytwarzanie peptydów przeciwdrobnoustrojowych [20].
Rodziny interleukiny 12 i 17 tworzą razem oś sterującą odpowiedzią przeciw grzybom i bakteriom zewnątrzkomórkowym. Interleukina 23 podtrzymuje limfocyty Th17, a te wydzielają interleukiny 17A i 17F działające na nabłonek [7]. Oś ta okazała się głównym punktem uchwytu w leczeniu łuszczycy.
2. Mechanizm działania i funkcje interleukin
2.1. Receptory i punkty regulacji wytwarzania
Sygnał interleukiny biegnie zawsze tą samą drogą: związanie liganda, zbliżenie podjednostek receptora, uruchomienie kinaz i zmiana ekspresji genów. Różnice dotyczą wykonawców, a te wynikają z typu receptora.
Receptory klasy I i II przekazują sygnał przez kinazy janusowe związane z ich częścią wewnątrzkomórkową. Receptory rodziny interleukiny 1 mają domenę TIR i działają przez adaptor MyD88 prowadzący do czynnika NF-κB, czyli tą samą drogą co receptory rozpoznające wzorce drobnoustrojów. Receptory rodziny interleukiny 17 używają adaptora Act1 [7].
Punkty regulacji tego układu są cztery, a każdy bywa punktem uchwytu leku. Punktem pierwszym jest dostępność liganda, regulowana wydzielaniem oraz obecnością naturalnych hamulców, w tym antagonisty receptora interleukiny 1 i rozpuszczalnych postaci receptorów [3]. Punktem drugim jest ekspresja receptora na komórce docelowej, rozstrzygająca o tym, które komórki w ogóle odpowiadają na sygnał. Punktem trzecim jest aktywność kinaz janusowych, wspólna dla wielu interleukin naraz [22, 23]. Punktem czwartym jest wygaszanie przez białka SOCS, powstające jako produkt samego pobudzenia.
Konsekwencją takiej budowy jest możliwość przerwania sygnału na czterech poziomach, od których zależy szerokość działania leku: zablokowanie liganda dotyczy jednej cytokiny, a zahamowanie kinazy janusowej kilkunastu naraz.
2.2. Działanie sygnałowe i strukturalne
Najlepiej poznanym mechanizmem jest szlak kinaz janusowych i białek STAT. Po związaniu liganda kinazy fosforylują reszty tyrozynowe receptora, tworząc miejsca przyłączenia dla białek STAT. Przyłączone białka STAT zostają ufosforylowane, łączą się w pary i przechodzą do jądra, gdzie wiążą określone odcinki DNA.
Wybiórczość tej drogi opiera się na doborze białka STAT, nie na doborze kinazy. Interleukina 6 uruchamia przede wszystkim STAT3, interleukina 12 i interferon gamma STAT4 i STAT1, a interleukina 4 STAT6 [20, 21]. Ponieważ każde z tych białek wiąże inne odcinki DNA, ta sama kinaza daje odmienny zestaw pobudzonych genów w zależności od tego, który receptor ją uruchomił. Zysk dla komórki polega na tym, że jeden zestaw enzymów obsługuje kilkanaście sygnałów bez ich mieszania.
Drugą drogą jest szlak czynnika NF-κB, uruchamiany przez rodzinę interleukiny 1 i rodzinę interleukiny 17. Adaptory wewnątrzkomórkowe uruchamiają kompleks kinaz, ten fosforyluje białko hamujące, a uwolniony czynnik NF-κB przechodzi do jądra i pobudza geny cytokin, chemokin i cząsteczek adhezyjnych. Efektem jest kaskada: interleukina pobudza wytwarzanie kolejnych interleukin, a odpowiedź narasta.
Trzecim mechanizmem, wyróżniającym rodzinę interleukiny 1, jest regulacja na poziomie uwalniania, nie transkrypcji. Prekursor interleukiny 1β gromadzi się w cytozolu i czeka na złożenie inflamasomu, a złożenie to wymaga drugiego bodźca, niezależnego od pierwszego [29]. Konsekwencją jest odporność układu na fałszywe uruchomienie.
2.3. Funkcje interleukin
2.3.1. Ukierunkowanie odpowiedzi odpornościowej
Podstawową funkcją interleukin jest rozstrzyganie o tym, jaki typ odpowiedzi zostanie uruchomiony po rozpoznaniu zagrożenia. Ten sam zestaw komórek zwalcza wirusa, bakterię zewnątrzkomórkową i pasożyta odmiennymi sposobami, a wybór między nimi zapada na poziomie interleukin wydzielanych przez komórki prezentujące antygen.
Interleukina 12 kieruje limfocyty T w stronę odpowiedzi przeciw drobnoustrojom wewnątrzkomórkowym, interleukina 4 w stronę odpowiedzi przeciwpasożytniczej i alergicznej, a interleukina 23 podtrzymuje odpowiedź przeciw grzybom i bakteriom zewnątrzkomórkowym [7, 20]. Każdy z tych kierunków wyklucza pozostałe, ponieważ cytokiny jednej drogi hamują różnicowanie w stronę drugiej. Skutkiem jest odpowiedź dopasowana do rodzaju drobnoustroju, a zarazem podatna na błąd: uruchomienie niewłaściwej drogi daje chorobę alergiczną albo przewlekłe zapalenie.
2.3.2. Wywoływanie odpowiedzi ostrej fazy i gorączki
Interleukiny 1 i 6 oraz czynnik martwicy nowotworów działają układowo po przedostaniu się do krwiobiegu. Interleukina 1β działa na podwzgórze i podnosi nastawienie ośrodka termoregulacji, a interleukina 6 pobudza hepatocyty do wytwarzania białek ostrej fazy, w tym białka C-reaktywnego i hepcydyny [1, 3].
Skutki tej odpowiedzi wykraczają poza gorączkę. Hepcydyna blokuje uwalnianie żelaza z makrofagów, przez co obniża jego dostępność dla drobnoustrojów i zarazem wywołuje niedokrwistość chorób przewlekłych. Zmiana zachowania obejmująca senność, utratę apetytu i wycofanie z aktywności jest odpowiedzią przystosowawczą oszczędzającą zasoby. Konsekwencją jest to, że gorączka i osłabienie są częścią odpowiedzi obronnej, a nie wyłącznie objawem uszkodzenia.
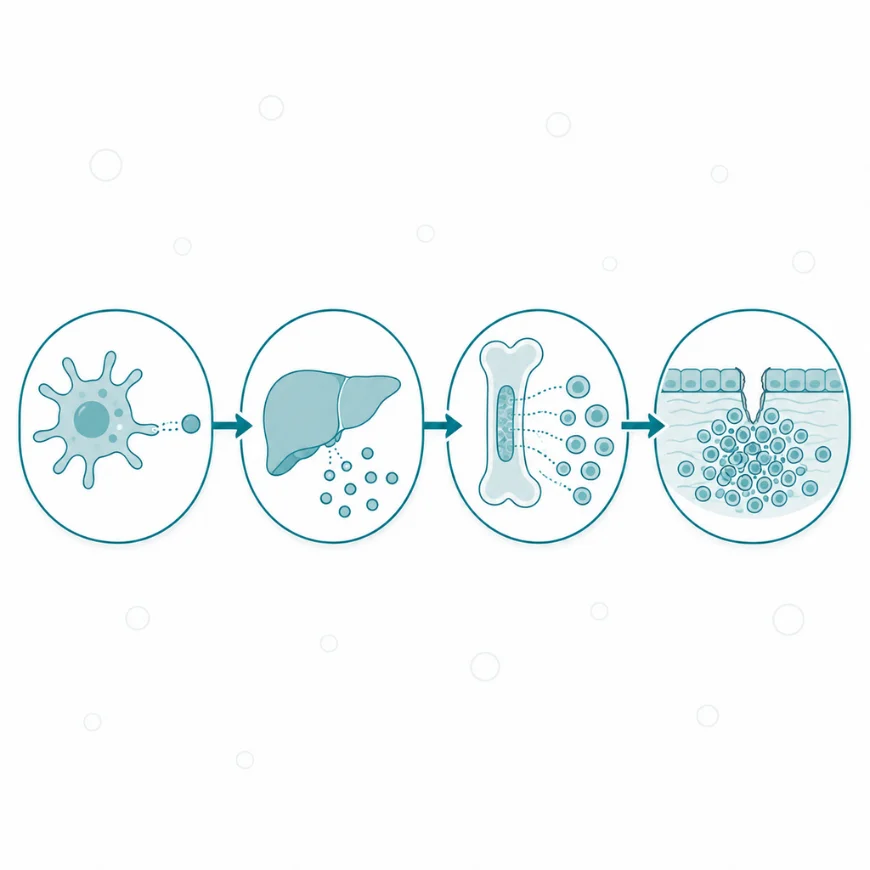
Oś zapalna prowadzi od pojedynczego inicjatora przez wątrobową odpowiedź ostrej fazy do napływu komórek do tkanki. Każdy etap nasila poprzedni.
2.3.3. Wygaszanie odpowiedzi i utrzymanie tolerancji
Trzecią funkcją jest zatrzymanie odpowiedzi po opanowaniu zagrożenia. Odpowiadają za to interleukina 10 oraz transformujący czynnik wzrostu beta, wydzielane przez limfocyty regulatorowe i przez makrofagi w fazie naprawczej [18, 19].
Interleukina 10 hamuje wytwarzanie cytokin prozapalnych oraz prezentację antygenu, a jej działanie na komórki odporności wrodzonej wystarcza do utrzymania tolerancji w błonie śluzowej jelita, co wykazano w modelu z wybiórczym usunięciem receptora [18]. Interleukina 2 pełni tę funkcję inaczej: podtrzymuje przeżycie limfocytów regulatorowych, które mają receptor o wyższym powinowactwie niż limfocyty efektorowe [15, 16]. Wynika stąd, że wygaszanie odpowiedzi nie jest biernym zanikiem sygnału, tylko osobnym, czynnym programem.
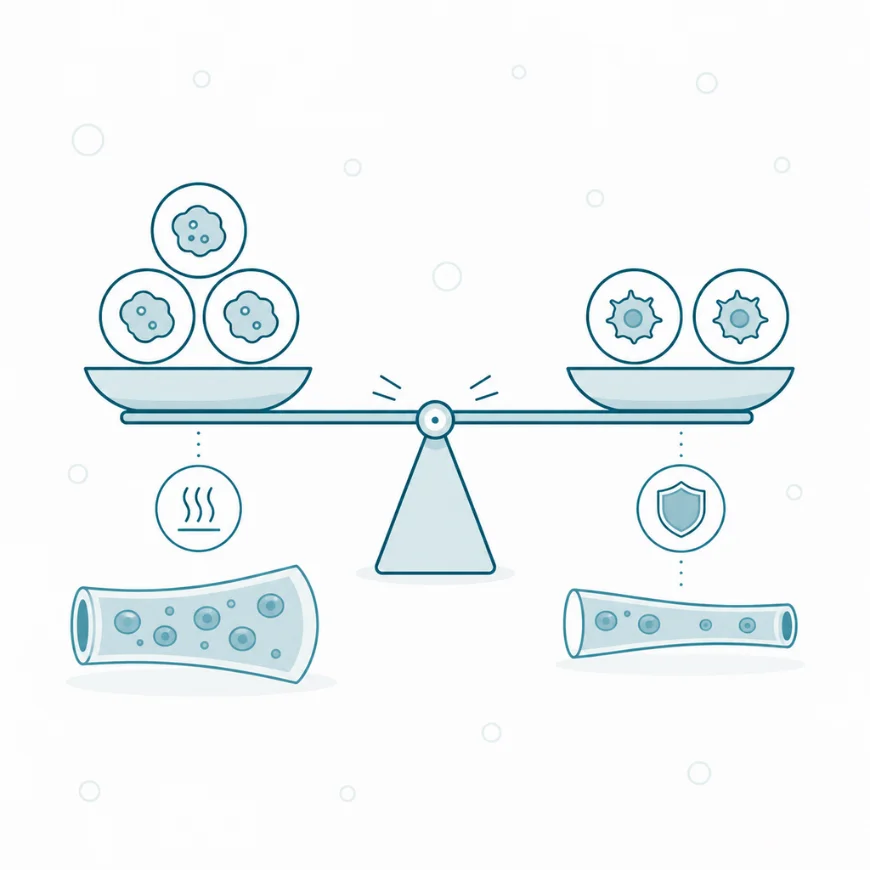
Podział na interleukiny prozapalne i przeciwzapalne opisuje nie same cząsteczki, lecz układ, w którym działają — kilka z nich zmienia rolę zależnie od kontekstu.
2.3.4. Obrona bariery nabłonkowej i naprawa tkanki
Czwarta funkcja dotyczy nabłonków i została rozpoznana najpóźniej. Interleukiny 17 i 22 działają na komórki nabłonka jelita, skóry i dróg oddechowych, pobudzając je do wytwarzania peptydów przeciwdrobnoustrojowych i chemokin ściągających neutrofile [7, 20].
Interleukiny alarmowe, czyli 25, 33 i limfopoetyna zrębu grasicy, uruchamiają tę odpowiedź natychmiast po uszkodzeniu bariery, bez udziału limfocytów [4, 6]. Ich wspólną cechą jest przebywanie w komórce nabłonka i uwalnianie dopiero po jej uszkodzeniu, co czyni je czujnikiem naruszenia ciągłości, a nie obecności drobnoustroju. Konsekwencją jest odpowiedź uruchamiana w minutach, zanim ruszy odpowiedź swoista.
2.4. Wygaszanie sygnału interleukin
Sygnał interleukinowy wygasa trzema drogami działającymi równolegle, a żadna z nich nie wymaga osobnego bodźca hamującego.
Droga pierwsza to wygaszanie wbudowane w szlak. Białka SOCS powstają jako produkt pobudzenia białek STAT i hamują kinazy janusowe, przez co sygnał wyłącza sam siebie po kilku godzinach. Droga druga to usunięcie liganda: interleukiny są wychwytywane przez receptory, rozkładane przez proteazy i filtrowane w nerkach, a ich okres półtrwania w osoczu liczy się w minutach.
Droga trzecia to hamowanie przez cząsteczki pokrewne. Antagonista receptora interleukiny 1 wiąże receptor bez przekazania sygnału, receptor IL-1 typu II wiąże ligand bez części sygnałowej, a rozpuszczalne postaci receptorów przechwytują ligand w przestrzeni pozakomórkowej [3]. Układ ma zatem hamulce wbudowane w tę samą rodzinę, którą hamuje, i właśnie one stały się pierwowzorem leków biologicznych.
3. Zaburzenia i modyfikacja poziomu interleukin
3.1. Zaburzenia stężenia i dostępności
Wrodzone zaburzenia dotyczące pojedynczych interleukin są rzadkie, a przez to szczególnie pouczające, ponieważ pokazują skutek usunięcia jednego ogniwa.
Niedobór receptora interleukiny 10 albo samej interleukiny 10 powoduje ciężkie zapalenie jelit ujawniające się w pierwszych miesiącach życia, z ropniami okołoodbytniczymi i opornością na leczenie standardowe [18]. Obraz ten wskazuje, że wygaszanie odpowiedzi w błonie śluzowej wymaga tej jednej cytokiny i nie ma zastępstwa.
Niedobór antagonisty receptora interleukiny 1 daje zespół z uogólnionym zapaleniem kości i skóry ujawniający się u noworodka, ustępujący po podaniu rekombinowanego antagonisty [3, 5]. Jednostka ta pokazuje, że brak hamulca daje obraz równie ciężki jak nadmiar bodźca.
Nadmiar wytwarzania obserwuje się w chorobach autozapalnych, w których mutacje białek inflamasomu prowadzą do niekontrolowanego uwalniania interleukiny 1β. Napadowe gorączki, wysypka i zapalenie błon surowiczych ustępują po zablokowaniu tej cytokiny, co potwierdza jej rolę przyczynową [3, 5].
Osobnym zaburzeniem jest gwałtowne uwolnienie wielu interleukin naraz, opisywane jako zespół uwalniania cytokin. Występuje po podaniu limfocytów z chimerycznym receptorem antygenowym oraz w ciężkim przebiegu zakażeń, a jego nasilenie ocenia się według skal stopniujących [25, 26]. Leczenie polega na blokadzie receptora interleukiny 6, a w postaciach opornych rozważa się blokadę receptora interleukiny 1 [26, 27].
3.2. Rola interleukin w patogenezie chorób
W łuszczycy oś interleukin 23 i 17 okazała się ogniwem przyczynowym, co wykazano skutecznością jej zablokowania. Sieciowa metaanaliza badań z randomizacją porównała leki skierowane przeciw interleukinie 17, przeciw wspólnej podjednostce interleukin 12 i 23 oraz przeciw samej interleukinie 23 i wskazała tę grupę jako skuteczniejszą od wcześniejszych [8, 9]. Kolejne leki tej grupy obejmują przeciwciało przeciw receptorowi interleukiny 17 oraz przeciwciało wiążące równocześnie interleukiny 17A i 17F [10, 11].
Zjawiskiem pouczającym jest łuszczyca paradoksalna, czyli pojawienie się zmian łuszczycowych u chorych leczonych lekami przeciw czynnikowi martwicy nowotworów z powodu innej choroby. Zmiany te ustępują po zmianie leczenia na skierowane przeciw osi interleukin 23 i 17 [12]. Obserwacja ta pokazuje, że zablokowanie jednej cytokiny przesuwa równowagę całej sieci, a nie tylko usuwa jeden sygnał.
W reumatoidalnym zapaleniu stawów rolę przyczynową ma interleukina 6 obok czynnika martwicy nowotworów, a blokada jej receptora jest jedną z ustalonych metod leczenia [22, 24]. W chorobach zapalnych jelit znaczenie mają interleukiny 12, 23 i 10, przy czym pierwsze dwie działają pobudzająco, a trzecia hamująco [18, 19].
W chorobach alergicznych i w astmie ciężkiej rolę wiodącą mają interleukiny 4, 5 i 13, a leki skierowane przeciw nim albo przeciw ich receptorom zmniejszają liczbę zaostrzeń. W miażdżycy udział ma rodzina interleukiny 1, a blokada interleukiny 1β obniżała liczbę zdarzeń sercowo-naczyniowych w badaniu z randomizacją, przy zwiększonym ryzyku zakażeń [5].
W chorobach ośrodkowego układu nerwowego interleukina 1β uwalniana z mikrogleju po pobudzeniu inflamasomu przez złogi amyloidu beta przyczyniała się do postępu zmian w modelu zwierzęcym choroby Alzheimera [28]. Przeniesienie tej obserwacji na człowieka pozostaje nierozstrzygnięte.
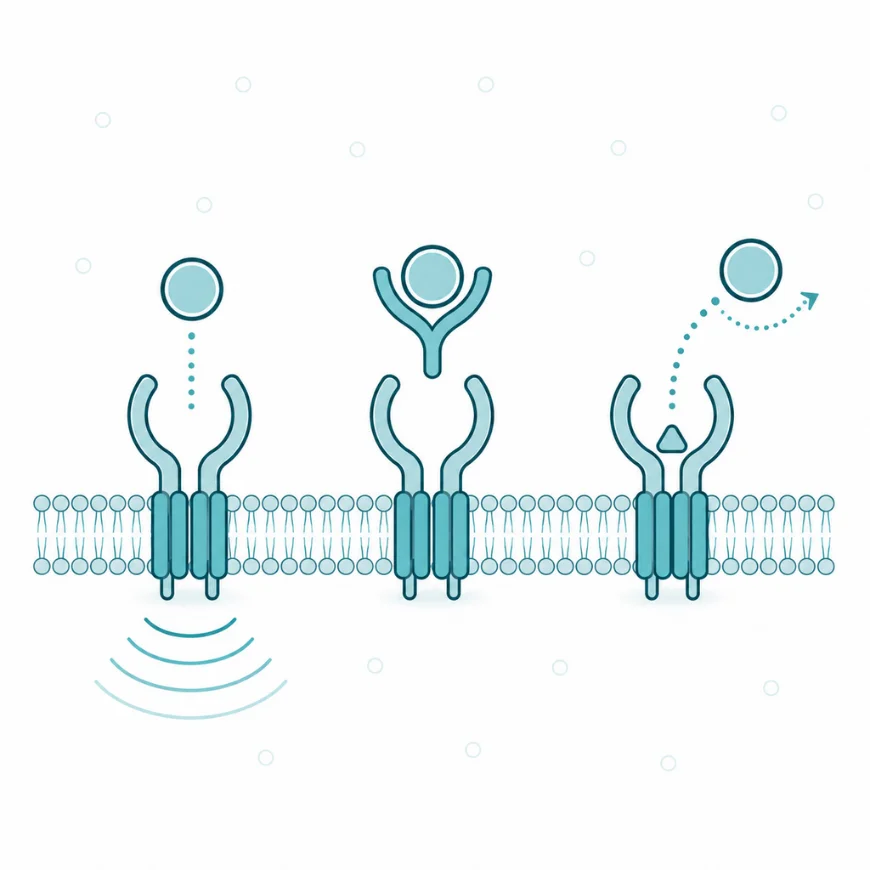
Niektóre leki przechwytują interleukinę przed receptorem albo blokują sam receptor. Skutek jest ten sam, ale konsekwencje kliniczne mogą być różne.
3.3. Czynniki wpływające na działanie interleukin
Grupa pierwsza to obecność bodźca. Zakażenie, uszkodzenie tkanki i bodziec autoimmunizacyjny podnoszą wytwarzanie interleukin prozapalnych w ciągu godzin. Obecność drugiego sygnału rozstrzyga dodatkowo o uwolnieniu interleukiny 1β, ponieważ bez złożenia inflamasomu prekursor pozostaje w cytozolu [29].
Grupa druga to czynniki ustrojowe zmieniające próg odpowiedzi. Masa tkanki tłuszczowej trzewnej podnosi stężenie interleukiny 6 bez ogniska zapalnego, wiek podnosi stężenia interleukin prozapalnych i obniża sprawność ich wygaszania, a przewlekły niedobór snu działa w tym samym kierunku. Skład mikrobioty jelitowej wpływa na równowagę między interleukiną 10 a interleukinami prozapalnymi w błonie śluzowej, co wykazano w modelach zwierzęcych [19].
Grupa trzecia to leczenie. Glikokortykosteroidy hamują transkrypcję genów wielu interleukin naraz, leki biologiczne blokują pojedyncze cytokiny albo ich receptory, a inhibitory kinaz janusowych przerywają szlak wspólny dla kilkunastu z nich [22, 23]. Osobnym zagadnieniem są reakcje nadwrażliwości na same leki biologiczne, będące białkami obcymi dla ustroju [30].
4. Uwagi praktyczne
4.1. Jak to zbadać
Oznaczanie interleukin w surowicy wykonuje się metodami immunoenzymatycznymi oraz panelami wielooznaczeniowymi pozwalającymi zmierzyć kilkanaście cytokin w jednej próbce. Wynik takiego badania odpowiada na pytanie o stężenie w chwili pobrania, nie o natężenie procesu w tkance.
Cztery ograniczenia dotyczą wszystkich tych metod. Pierwszym jest zasięg miejscowy: interleukiny działają w przestrzeni międzykomórkowej, a ich stężenie w osoczu odzwierciedla przelanie się sygnału poza tkankę. Drugim jest zmienność w czasie, ponieważ stężenia zmieniają się w ciągu godzin i zależą od pory pobrania. Trzecim jest wpływ przygotowania próbki: czas do odwirowania, rodzaj probówki i liczba cykli zamrażania zmieniają wynik. Czwartym jest brak porównywalności między metodami, przez co wartości uzyskane w różnych pracowniach nie dają się zestawiać [31].
W praktyce klinicznej oznacza się zatem częściej skutki działania interleukin niż je same. Białko C-reaktywne odzwierciedla działanie interleukiny 6 na hepatocyty, a stężenie ferrytyny i niedokrwistość chorób przewlekłych działanie hepcydyny uruchomionej tą samą drogą. W zespole uwalniania cytokin monitoruje się stężenie interleukiny 6 razem z parametrami narządowymi, ponieważ tam pomiar ma ustalone odniesienie do postępowania [25, 26].
Badania czynnościowe, w tym pomiar wytwarzania interleukin przez komórki jednojądrowe po pobudzeniu w hodowli, pozostają narzędziem badawczym i służą rozpoznawaniu wrodzonych zaburzeń odporności, nie ocenie nasilenia zapalenia.
4.2. Na co zwrócić uwagę
Najczęstszym nieporozumieniem jest odczytywanie numeru interleukiny jako wskazówki co do jej działania. Numeracja odzwierciedla kolejność opisania, wobec czego sąsiadujące numery bywają białkami o odmiennej budowie i przeciwnym kierunku działania [3, 20]. Właściwym kryterium porządkującym jest rodzina strukturalna i typ receptora.
Drugie zastrzeżenie dotyczy podziału na interleukiny prozapalne i przeciwzapalne. Podział ten porządkuje opis kliniczny, natomiast nie opisuje własności cząsteczki: interleukina 6 działa naprawczo przez receptor błonowy i prozapalnie przez jego postać rozpuszczalną [1, 2], a interleukina 2 pobudza odpowiedź w dużej dawce i hamuje ją w małej [13, 15, 16].
Trzecie zastrzeżenie dotyczy zależności od dawki. Interleukina 2 podana w małej dawce pobudza wybiórczo limfocyty regulatorowe, ponieważ ich receptor ma wyższe powinowactwo, i przez to działa hamująco na odpowiedź. Podejście to badano w toczniu rumieniowatym układowym oraz w zespole Sjögrena z wynikami zachęcającymi [14, 16], natomiast w przeszczepieniu wątroby wybiórcze zwiększenie liczby limfocytów regulatorowych nie przełożyło się na tolerancję przeszczepu [17]. Rozbieżność ta pokazuje, że zmiana liczby komórek nie dowodzi zmiany wyniku klinicznego.
Czwarte zastrzeżenie dotyczy oznaczeń oferowanych komercyjnie jako panele cytokinowe. Nadmiarowość grupy sprawia, że wynik prawidłowy nie wyklucza toczącego się procesu, a wynik podwyższony nie wskazuje ani ogniska, ani przyczyny [31]. Poza określonymi wskazaniami wartość rozpoznawcza takich paneli pozostaje nieustalona.
Piąte zastrzeżenie dotyczy leków. Skuteczność blokady jednej interleukiny dowodzi, że jest ona ogniwem koniecznym w danej chorobie, natomiast nie czyni jej ogniwem jedynym: część chorych nie odpowiada na leczenie, a zablokowanie jednej cytokiny przesuwa równowagę całej sieci, czego przykładem jest łuszczyca paradoksalna [12]. Każda blokada obniża ponadto odporność przeciwzakaźną w stopniu proporcjonalnym do zablokowanego zakresu [24, 30].
Szóste zastrzeżenie dotyczy przenoszenia wyników. Znaczna część rozstrzygnięć dotyczących roli poszczególnych interleukin pochodzi z modeli zwierzęcych z wybiórczym usunięciem genu [18, 19, 28]. Dane u ludzi obejmują głównie wyniki leczenia, a udział ilościowy poszczególnych interleukin w patogenezie chorób człowieka pozostaje w większości nieokreślony.