1. Charakterystyka cytokin
1.1. Definicja cytokin i kluczowe cechy
Cytokiny to białka lub glikoproteiny o masie zwykle poniżej trzydziestu kilodaltonów, wydzielane przez komórki w odpowiedzi na bodziec i zmieniające zachowanie innych komórek przez związanie z receptorem na ich powierzchni. Cytokiny łączy sposób działania, natomiast ich budowa może być różna. Klasa obejmuje białka o odmiennym zwinięciu łańcucha i odmiennym pochodzeniu ewolucyjnym.
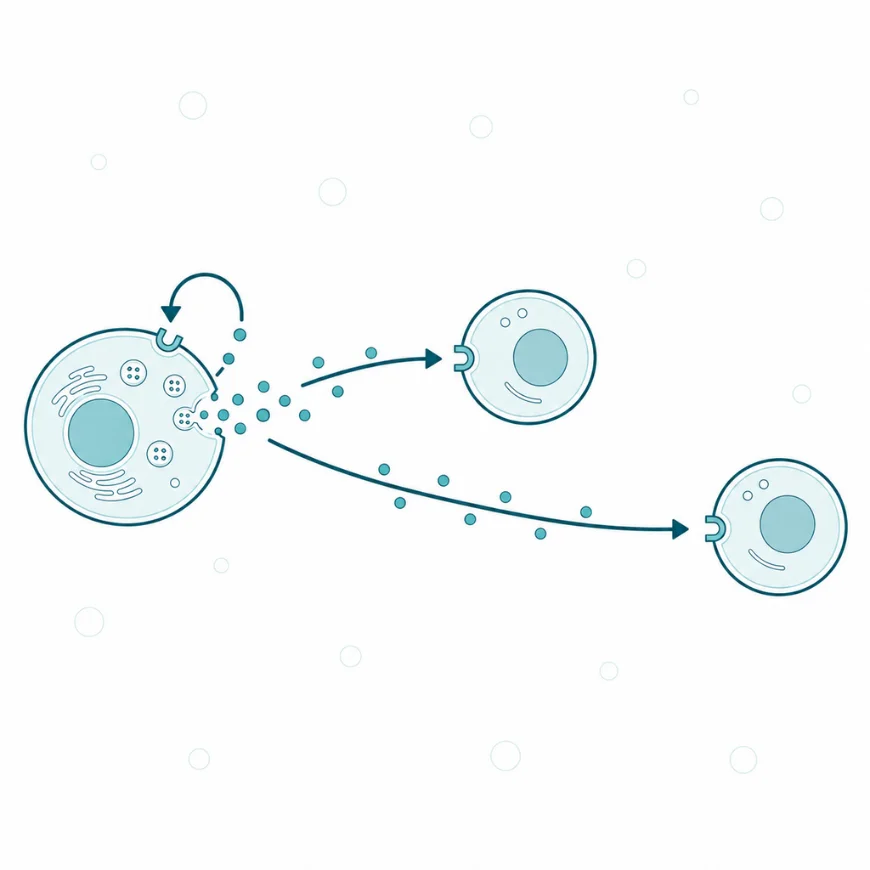
Warunkiem przynależności do klasy są cztery cechy występujące łącznie. Cecha pierwsza to wydzielanie na żądanie: cytokiny nie są magazynowane w ziarnistościach, tylko powstają po pobudzeniu przez transkrypcję i translację, wobec czego odpowiedź trwa co najmniej przez kilka godzin. Cecha druga to działanie przez swoisty receptor błonowy, wymagający bardzo niskiego stężenia liganda. Cecha trzecia to zasięg miejscowy: cytokina działa na komórkę sąsiednią albo na komórkę, która ją wydzieliła, natomiast do krwiobiegu przedostaje się w ilościach istotnych dopiero przy nasilonej odpowiedzi [1]. Cecha czwarta to krótki czas działania, wynikający z szybkiego rozkładu i z wychwytu przez receptory.
Cztery pojęcia sąsiadujące bywają z cytokinami mylone. Hormony działają przez krew na odległe narządy, są wydzielane przez wyspecjalizowane gruczoły i utrzymują stężenie względnie stałe, podczas gdy cytokiny powstają w wielu typach komórek i działają miejscowo. Neuroprzekaźniki działają w szczelinie synaptycznej w skali milisekund i podlegają wychwytowi zwrotnemu, czego przy cytokinach nie ma. Czynniki wzrostu w ścisłym znaczeniu pobudzają podziały komórek niebędących komórkami odpornościowymi, przy czym granica ta jest umowna i część białek zalicza się do obu klas. Adipokiny są cytokinami wydzielanymi przez tkankę tłuszczową, czyli podzbiorem tej klasy wyodrębnionym ze względu na źródło, nie na mechanizm.
Zakres pojęcia obejmuje interleukiny, interferony, chemokiny, czynniki martwicy nowotworów, czynniki wzrostu krwiotworzenia oraz transformujące czynniki wzrostu. Osobne hasło dla całej klasy jest uzasadnione tym, że reguły rządzące działaniem tych białek są wspólne i wyjaśniają, dlaczego pomiar pojedynczej cytokiny rzadko odpowiada na pytanie kliniczne, a zablokowanie jednej z nich bywa skuteczne mimo działania wielu innych.
1.2. Podział i kryteria klasyfikacji
Klasę dzieli się według trzech kryteriów, a każde odpowiada na inne pytanie i prowadzi do innego podziału.
| Kryterium | Podział | Przykłady | Do czego służy |
| Budowa i rodzina receptora | hematopoetyny (receptory klasy I) · rodzina IL-1 · nadrodzina TNF · rodzina IL-17 · chemokiny · interferony (receptory klasy II) | IL-2, IL-6, erytropoetyna · IL-1β, IL-18 · TNF, ligand FAS · IL-17A · CXCL8, CCL2 · IFN-α, IFN-γ | przewiduje szlak wewnątrzkomórkowy i punkt uchwytu leku |
| Skutek czynnościowy | prozapalne · przeciwzapalne · krwiotwórcze · chemotaktyczne | IL-1β, IL-6, TNF · IL-10, TGF-β · erytropoetyna, G-CSF · chemokiny | porządkuje opis kliniczny |
| Szlak przekazu sygnału | JAK-STAT · zależne od adaptorów i NF-κB · receptory sprzężone z białkiem G | interleukiny i interferony · rodzina IL-1 i TNF · chemokiny | wskazuje, które cytokiny zablokuje jeden lek |
Podział według rodziny receptora ma największą wartość praktyczną, ponieważ rodzina receptora rozstrzyga o szlaku wewnątrzkomórkowym. Cytokiny wiążące receptory klasy I i II przekazują sygnał przez kinazy janusowe i białka STAT, wobec czego inhibitor kinazy janusowej hamuje je wszystkie naraz [14, 15]. Rodzina IL-1 i nadrodzina TNF używają adaptorów wewnątrzkomórkowych prowadzących do czynnika NF-κB, a chemokiny działają przez receptory sprzężone z białkiem G, czyli tak samo jak wiele neuroprzekaźników [6].
Podział czynnościowy na cytokiny prozapalne i przeciwzapalne jest wygodny w opisie klinicznym, natomiast wprowadza w błąd przy wnioskowaniu o mechanizmie. Ta sama cytokina bywa w jednym układzie prozapalna, a w innym przeciwzapalna, czego najlepszym przykładem jest interleukina 6 [1]. Przypisanie etykiety jest zatem skrótem opisowym, a nie własnością cząsteczki.
1.3. Różnice względem podobnych pojęć
Pierwszą klasą sąsiednią są hormony. Granicę wyznacza nie budowa, lecz sposób działania: hormon jest wydzielany przez wyspecjalizowany gruczoł, krąży we krwi w stężeniu podlegającym regulacji i działa na odległe narządy. Erytropoetyna spełnia oba zestawy kryteriów i bywa opisywana raz jako hormon nerkowy, raz jako cytokina krwiotwórcza, co pokazuje umowność tej granicy.
Drugą klasą sąsiednią są chemokiny, czyli cytokiny o działaniu chemotaktycznym. Stanowią one podzbiór klasy wyodrębniony ze względu na budowę, opartą na charakterystycznym układzie reszt cysteinowych, oraz na działanie przez receptory sprzężone z białkiem G [6]. Zaliczenie ich do klasy jest powszechne, a wyodrębnienie wynika z liczebności rodziny, przekraczającej pięćdziesiąt białek.
Trzecią klasą sąsiednią są białka ostrej fazy, w tym białko C-reaktywne. Nie są one cytokinami, tylko produktami wątroby wytwarzanymi w odpowiedzi na cytokiny, przede wszystkim na interleukinę 6. Rozróżnienie ma znaczenie praktyczne, gdyż w diagnostyce oznacza się zwykle białko ostrej fazy, a nie samą cytokinę, i wnioskuje z niego o aktywności układu.
Czwartą klasą sąsiednią są cząsteczki adhezyjne, takie jak selektyny i integryny. Uczestniczą w tej samej odpowiedzi co chemokiny, natomiast działają przez kontakt komórek, a nie przez wydzielanie [7, 8].
1.4. Rys historyczny
Do końca lat pięćdziesiątych XX wieku nie znano białek przekazujących sygnał między komórkami odpornościowymi. Alick Isaacs i Jean Lindenmann opisali w 1957 roku substancję uwalnianą przez komórki zakażone wirusem i chroniącą komórki sąsiednie przed zakażeniem, którą nazwali interferonem [4]. Przedtem zakładano, że oporność na zakażenie wynika wyłącznie z przeciwciał i z komórek żernych.
Drugie rozstrzygnięcie dotyczyło nazewnictwa i miało skutki dalsze niż porządkowe. W latach siedemdziesiątych opisywano liczne czynniki rozpuszczalne pod nazwami wywiedzionymi z ich działania w probówce, przez co ta sama cząsteczka nosiła kilka nazw. Wprowadzenie w 1979 roku określenia „interleukina” wraz z numeracją nadawaną po ustaleniu sekwencji uporządkowało pole i pozwoliło stwierdzić, że wiele rzekomo odrębnych czynników jest jednym białkiem o wielu działaniach.
Trzecie rozstrzygnięcie przyniosło leczenie. Wykazanie w latach dziewięćdziesiątych, że zablokowanie jednej cytokiny, czynnika martwicy nowotworów, hamuje zapalenie stawów u chorych na reumatoidalne zapalenie stawów, dowiodło, że cytokina jest ogniwem przyczynowym choroby, a nie jej następstwem [13]. Przedtem podwyższone stężenia cytokin w chorobach zapalnych traktowano jako wskaźnik aktywności procesu. Po tym rozstrzygnięciu powstała cała grupa leków biologicznych skierowanych przeciw pojedynczym cytokinom i ich receptorom.
2. Budowa i mechanizm działania cytokin
2.1. Budowa cytokin
Przedstawicieli klasy łączy nie tyle wspólne zwinięcie łańcucha, lecz zestaw rozwiązań budowy służących jednemu celowi: przekazaniu sygnału przy bardzo niskim stężeniu i na krótkim dystansie.
Rozwiązanie pierwsze to mała masa cząsteczkowa, zwykle od ośmiu do trzydziestu kilodaltonów. Umożliwia ona szybką dyfuzję w przestrzeni międzykomórkowej oraz przechodzenie przez ścianę naczynia, a zarazem sprzyja szybkiemu usuwaniu przez nerki.
Rozwiązanie drugie to wysokie powinowactwo do receptora, mierzone stałymi dysocjacji rzędu pikomoli. Dzięki temu stężenia czynne są o trzy do sześciu rzędów wielkości niższe niż stężenia hormonów, a pojedyncza komórka wydzielająca wystarcza do pobudzenia sąsiadek.
Rozwiązanie trzecie to budowa receptora złożona z podjednostek, w której jedna podjednostka wiąże ligand, a druga przekazuje sygnał. Podjednostka przekazująca bywa wspólna dla kilku cytokin: białko gp130 obsługuje interleukinę 6 i pokrewne, a wspólny łańcuch gamma kilka interleukin limfocytarnych [1, 3]. Właśnie ta wspólność tłumaczy, dlaczego różne cytokiny wywołują podobne skutki.
Rozwiązanie czwarte to istnienie postaci rozpuszczalnych receptorów, powstających przez odcięcie części zewnątrzkomórkowej albo przez alternatywne składanie. Postać rozpuszczalna bywa hamulcem, wiążąc cytokinę bez przekazania sygnału, albo przeciwnie, nośnikiem poszerzającym zakres działania [1, 2].
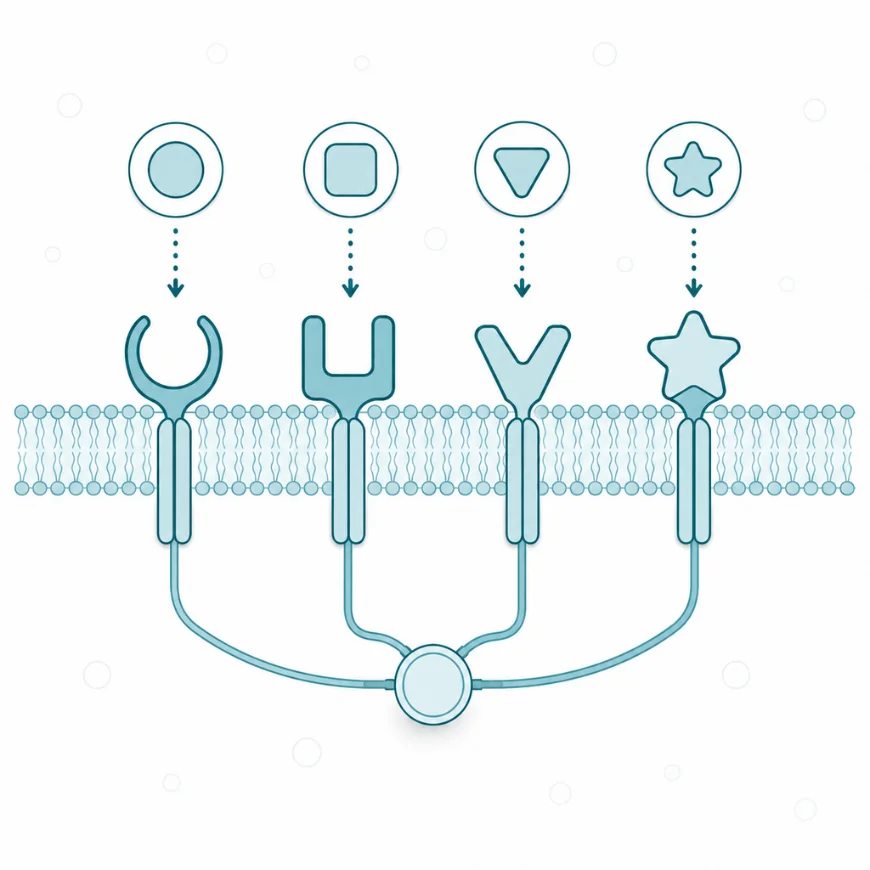
Wspólne łańcuchy receptorowe są przyczyną nadmiarowości układu: różne cytokiny prowadzą do tego samego sygnału wewnątrzkomórkowego, więc zablokowanie jednej rzadko wystarcza.
2.2. Wspólny mechanizm działania cytokin
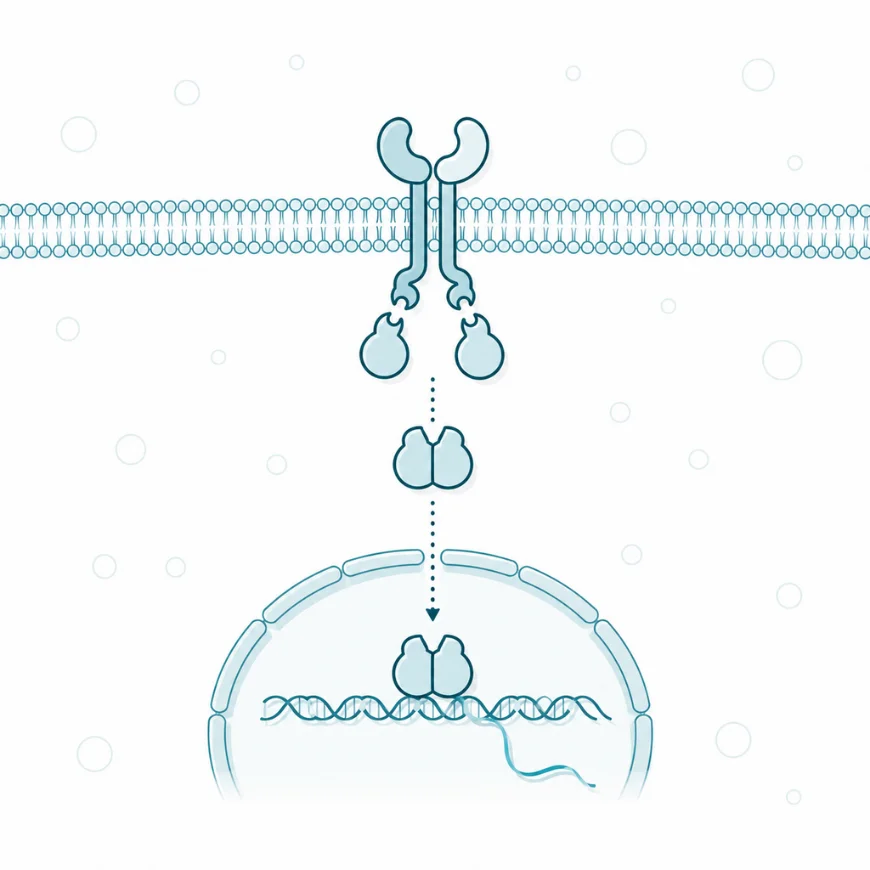
W stanie wyjściowym receptor na powierzchni komórki czeka w uśpieniu, a białka przekaźnikowe w cytozolu pozostają nieaktywne. Dopiero przyłączenie cytokiny działa jak impuls, który fizycznie zbliża do siebie podjednostki receptora i uruchamia całą kaskadę. Krok pierwszy polega na wzajemnej fosforylacji kinaz związanych z częścią wewnątrzkomórkową receptora, czyli kinaz janusowych w przypadku rodzin JAK-STAT. Krok drugi to fosforylacja reszt tyrozynowych receptora, tworząca miejsca przyłączenia dla białek STAT. Krok trzeci to fosforylacja białek STAT, ich łączenie się w pary i przejście do jądra. Stan końcowy to zmiana ekspresji dziesiątek genów, a konsekwencją jest zmiana zachowania komórki: podziału, wydzielania, ruchu albo przeżycia [14, 15].
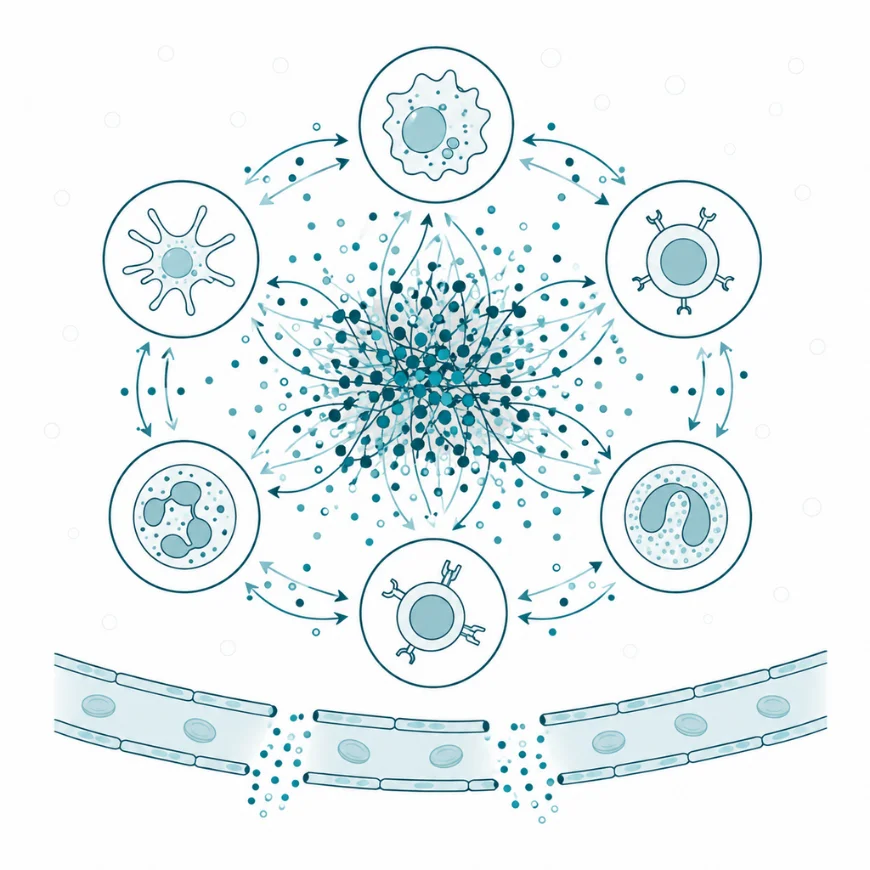
Trzy własności odróżniają ten układ od klasycznej sygnalizacji hormonalnej. Plejotropia oznacza, że jedna cytokina wywołuje różne skutki w różnych komórkach, ponieważ zestaw genów dostępnych do pobudzenia zależy od stanu komórki docelowej. Nadmiarowość oznacza, że kilka cytokin wywołuje ten sam skutek, przez co usunięcie jednej z nich bywa bez następstw. Kaskadowość oznacza, że cytokina pobudza wytwarzanie kolejnych cytokin, dzięki czemu odpowiedź narasta i rozprzestrzenia się [1, 5].
Czwartą własnością jest wygaszanie wbudowane w sam szlak. Białka z rodziny SOCS powstają jako produkt pobudzenia STAT i hamują kinazy janusowe, i tym samym sygnał wyłącza sam siebie po kilku godzinach. Zysk dla organizmu polega na tym, że odpowiedź ma ograniczony czas trwania bez potrzeby osobnego sygnału hamującego.
Szlak JAK-STAT skraca drogę od receptora do genu do kilku kroków — stąd szybkość odpowiedzi cytokinowej.
2.3. Źródło zróżnicowania cytokin
Przedstawiciele klasy różnią się na czterech osiach, a każda ma następstwo praktyczne.
Osią pierwszą jest rodzina receptora, wyznaczająca szlak wewnątrzkomórkowy i tym samym punkt uchwytu leku. Cytokiny działające przez kinazy janusowe daje się zahamować jednym lekiem doustnym, a cytokiny działające przez adaptory i NF-κB wymagają zablokowania samego liganda albo receptora [14, 15].
Osią drugą jest zasięg działania. Większość cytokin działa miejscowo, natomiast interleukina 6, czynnik martwicy nowotworów i interleukina 1 osiągają przy nasilonej odpowiedzi stężenia układowe i wywołują gorączkę oraz odpowiedź ostrej fazy.
Osią trzecią jest kierunek działania na odpowiedź odpornościową. Interleukina 12 i interferon gamma kierują odpowiedź w stronę zwalczania drobnoustrojów wewnątrzkomórkowych, a interleukiny 4 i 5 w stronę odpowiedzi przeciwpasożytniczej i alergicznej. Interleukina 17 kieruje ją przeciw grzybom i bakteriom zewnątrzkomórkowym, natomiast interleukina 10 i transformujący czynnik wzrostu beta odpowiedź wygaszają.
Osią czwartą jest sposób powstawania postaci czynnej. Większość cytokin powstaje od razu w postaci czynnej, natomiast interleukina 1β i interleukina 18 wymagają przecięcia przez kaspazę 1 w kompleksie zwanym inflamasomem, a zatem ich uwolnienie zależy od osobnego, drugiego sygnału [16, 23, 24].
3. Główni przedstawiciele grupy cytokin
Poniższe zestawienie obejmuje najlepiej poznane rodziny, uporządkowane według rodziny receptora. Kolumna działania podaje skutek uruchamiany przez daną rodzinę, a nie etykietę „prozapalna” albo „przeciwzapalna”.
| Rodzina | Główni przedstawiciele | Źródło | Szlak przekazu | Skutek dla komórki docelowej |
| Interleukiny receptorów klasy I | IL-2, IL-6, IL-7, IL-12, IL-15 | limfocyty, makrofagi, komórki dendrytyczne | JAK-STAT | podziały i różnicowanie limfocytów, odpowiedź ostrej fazy |
| Rodzina IL-1 | IL-1α, IL-1β, IL-18, IL-33 | makrofagi, komórki nabłonka | adaptory MyD88, NF-κB | gorączka, pobudzenie śródbłonka, wydzielanie kolejnych cytokin |
| Nadrodzina TNF | TNF, limfotoksyna, ligand FAS | makrofagi, limfocyty T | NF-κB albo kaspazy | zapalenie albo apoptoza komórki docelowej |
| Interferony typu I | IFN-α, IFN-β | komórki zakażone, komórki dendrytyczne plazmacytoidalne | JAK-STAT, receptor klasy II | stan oporności przeciwwirusowej w komórkach sąsiednich |
| Interferon typu II | IFN-γ | limfocyty T, komórki NK | JAK-STAT | pobudzenie makrofagów, wzrost prezentacji antygenu |
| Chemokiny | CXCL8, CCL2, CXCL12 | wiele typów komórek | receptory sprzężone z białkiem G | ukierunkowany ruch leukocytów wzdłuż gradientu |
| Rodzina IL-17 | IL-17A, IL-17F | limfocyty Th17 | adaptor Act1, NF-κB | wytwarzanie chemokin przez nabłonek, napływ neutrofilów |
| Cytokiny hamujące | IL-10, TGF-β | limfocyty regulatorowe, makrofagi | JAK-STAT albo SMAD | wygaszenie odpowiedzi, naprawa tkanki |
| Czynniki krwiotwórcze | erytropoetyna, G-CSF, trombopoetyna | nerka, śródbłonek, wątroba | JAK-STAT | podziały i dojrzewanie komórek szpiku |
Interleukina 6 jest przedstawicielem najlepiej pokazującym zasadę plejotropii. Wiąże receptor błonowy obecny na hepatocytach i części leukocytów, a przez to uruchamia odpowiedź ostrej fazy i regenerację wątroby. Wiąże również postać rozpuszczalną tego receptora krążącą w osoczu, a powstały kompleks pobudza każdą komórkę mającą białko gp130, czyli praktycznie każdą komórkę ustroju [1, 2]. Pierwsza droga wiąże się z działaniem naprawczym, druga z prozapalnym, wobec czego ta sama cząsteczka daje skutki przeciwne w zależności od drogi. Opisano także przenoszenie receptora między komórkami przez pęcherzyki zewnątrzkomórkowe, co poszerza zakres tego zjawiska [3].
Rodzina interleukiny 1 wyróżnia się sposobem uwalniania. Postać nieczynna gromadzi się w cytozolu i wymaga przecięcia przez kaspazę 1 po złożeniu inflamasomu, a sam inflamasom składa się dopiero po drugim bodźcu, niezależnym od pierwszego [24]. Mechanizm ten zabezpiecza przed przypadkowym uwolnieniem cytokiny o silnym działaniu gorączkotwórczym. W chorobie Alzheimera inflamasom NLRP3 w mikrogleju jest pobudzany przez złogi amyloidu beta i przyczynia się do postępu zmian w modelu zwierzęcym [16].
Czynnik martwicy nowotworów działa przez dwa receptory o przeciwstawnym wyniku: jeden uruchamia czynnik NF-κB i zapalenie, drugi kaspazy i śmierć komórki [13]. Wybór między nimi zależy od stanu komórki docelowej, w tym od obecności białek hamujących kaspazy.
Interferony dzielą się na trzy typy o odrębnych receptorach. Typ pierwszy wprowadza komórki sąsiednie w stan oporności przeciwwirusowej przez pobudzenie kilkuset genów, typ drugi pobudza makrofagi do zabijania drobnoustrojów wewnątrzkomórkowych, a typ trzeci działa głównie na nabłonki [4]. W ośrodkowym układzie nerwowym interferony typu pierwszego uczestniczą również w utrzymaniu równowagi tkanki, a nie tylko w obronie przeciwwirusowej [19].
Chemokiny są jedyną rodziną działającą przez receptory sprzężone z białkiem G i jedyną, której zadaniem jest nadanie ruchowi komórki kierunku. Rodzina liczy ponad pięćdziesiąt białek podzielonych według układu reszt cysteinowych, a jej cechą charakterystyczną jest nadmiarowość: jeden receptor wiąże kilka chemokin, a jedna chemokina kilka receptorów [6, 7].
4. Znaczenie kliniczne cytokin
4.1. Rola cytokin w fizjologii
Pierwszą rolą klasy jest kierowanie odpowiedzią odpornościową. Cytokiny rozstrzygają, który typ odpowiedzi zostanie uruchomiony po rozpoznaniu drobnoustroju, przez co ten sam układ komórek zwalcza wirusa, bakterię zewnątrzkomórkową i pasożyta odmiennymi sposobami [5].
Drugą rolą jest ukierunkowanie ruchu komórek. Chemokiny wytwarzane w miejscu uszkodzenia tworzą gradient, wzdłuż którego neutrofile i monocyty przechodzą przez ścianę naczynia i docierają do ogniska [7]. Bez tego ukierunkowania komórki żerne poruszałyby się przypadkowo.
Trzecią rolą jest regulacja krwiotworzenia. Erytropoetyna, czynniki wzrostu kolonii granulocytów i trombopoetyna dostosowują wytwarzanie poszczególnych linii komórkowych do zapotrzebowania, a ich stężenia rosną przy niedoborze odpowiedniej komórki.
Czwartą rolą jest przekazanie informacji o zakażeniu do mózgu. Interleukina 1β, interleukina 6 i czynnik martwicy nowotworów działają na podwzgórze przez narządy okołokomorowe oraz przez nerw błędny i wywołują gorączkę, senność, utratę apetytu i wycofanie z aktywności [17, 18]. Zespół ten, opisywany jako zachowanie chorobowe, jest odpowiedzią przystosowawczą oszczędzającą zasoby na czas zwalczania zakażenia.
Piątą rolą jest naprawa tkanki. Transformujący czynnik wzrostu beta i interleukina 10 wygaszają odpowiedź i uruchamiają odbudowę, a zaburzenie tego etapu prowadzi do włóknienia albo do przewlekłego zapalenia.
4.2. Udział cytokin w chorobach
W chorobach zapalnych o podłożu autoimmunizacyjnym cytokiny stanowią ogniwo przyczynowe, co wykazano nie obserwacją stężeń, lecz skutecznością ich zablokowania [13]. W reumatoidalnym zapaleniu stawów, w łuszczycy i w chorobach zapalnych jelit zahamowanie czynnika martwicy nowotworów, interleukiny 17 albo interleukiny 23 zmienia przebieg choroby.
W zakażeniach nadmierna odpowiedź cytokinowa daje osobny obraz kliniczny. Burza cytokinowa obejmuje gorączkę, spadek ciśnienia, uszkodzenie wielonarządowe i zaburzenia świadomości, a opisano ją w ciężkim przebiegu zakażeń oraz jako powikłanie leczenia limfocytami z chimerycznym receptorem antygenowym [9, 10, 11]. Uszkodzenie mózgu w tym zespole ma odrębny obraz i wiąże się z przechodzeniem cytokin przez uszkodzoną barierę krew-mózg [9].
W chorobach metabolicznych utrzymuje się przewlekłe zapalenie o niskim nasileniu, w którym stężenia interleukiny 6 i białka C-reaktywnego są podwyższone bez uchwytnego ogniska. Stan ten poprzedza rozpoznanie cukrzycy typu 2 i utrzymuje się mimo leczenia, a jego obecność przewiduje powikłania sercowo-naczyniowe [20].
W starzeniu obserwuje się podobne zjawisko, opisywane jako zapalenie związane z wiekiem. Monocyty i makrofagi osób starszych wytwarzają więcej cytokin prozapalnych, a równocześnie gorzej pochłaniają komórki apoptotyczne, a obie te zmiany wzajemnie się wzmacniają [21, 22].
W chorobach ośrodkowego układu nerwowego cytokiny wytwarzane przez mikroglej i astrocyty uczestniczą w postępie zmian zwyrodnieniowych [16, 17]. Kierunek przyczynowy pozostaje w tych chorobach nierozstrzygnięty, ponieważ uszkodzenie tkanki samo pobudza wytwarzanie cytokin.
Burza cytokinowa to pętla dodatniego sprzężenia: komórki nawzajem pobudzają się do momentu, aż uszkodzenie naczyń przeważy nad korzystnymi skutkami odpowiedzi immunologicznej.
4.3. Punkty uchwytu leków i substancji
Punkty uchwytu dzielą się na cztery grupy według miejsca przerwania sygnału.
Grupa pierwsza blokuje samą cytokinę. Przeciwciała monoklonalne przeciw czynnikowi martwicy nowotworów, przeciw interleukinie 17A oraz przeciw interleukinie 23 wiążą białko w przestrzeni pozakomórkowej, zanim dotrze ono do receptora [13, 14]. Osobnym rozwiązaniem jest białko fuzyjne zbudowane z części zewnątrzkomórkowej receptora, działające jako pułapka na ligand.
Grupa druga blokuje receptor. Przeciwciało przeciw receptorowi interleukiny 6 stosuje się w reumatoidalnym zapaleniu stawów oraz w zespole uwalniania cytokin po leczeniu limfocytami z chimerycznym receptorem antygenowym [10, 11]. Antagonista receptora interleukiny 1 jest białkiem naśladującym naturalny hamulec tej cytokiny, a jego wartość w ciężkim przebiegu zakażenia oceniano w metaanalizie badań [12].
Grupa trzecia hamuje szlak wewnątrzkomórkowy. Inhibitory kinaz janusowych są lekami doustnymi hamującymi naraz wszystkie cytokiny działające przez ten szlak, przez co działają szerzej niż leki biologiczne, ale mają też szerszy zakres działań niepożądanych [14, 15].
Grupa czwarta zmienia wytwarzanie cytokin bez blokowania sygnału. Należą do niej glikokortykosteroidy hamujące transkrypcję genów cytokin oraz leki hamujące inflamasom.
Wspólnym ograniczeniem wszystkich tych grup jest to, że blokada cytokiny obniża odporność przeciwzakaźną w stopniu proporcjonalnym do zablokowanego zakresu. Osobnym zagadnieniem są reakcje nadwrażliwości na same leki biologiczne, będące białkami obcymi dla ustroju [25].
4.4. Czynniki wpływające na stężenie cytokin
Najsilniej działającym czynnikiem jest obecność bodźca zapalnego, czyli zakażenia, uszkodzenia tkanki albo bodźca autoimmunizacyjnego. Stężenia cytokin prozapalnych rosną wtedy w ciągu godzin i wracają do wartości wyjściowych po ustąpieniu bodźca.
Drugim czynnikiem jest masa tkanki tłuszczowej. Tkanka tłuszczowa trzewna wytwarza interleukinę 6 i czynnik martwicy nowotworów, i z tego powodu otyłość utrzymuje podwyższone stężenia tych cytokin bez uchwytnego ogniska zapalnego [20].
Trzecim czynnikiem jest wiek. Wraz z nim rośnie odsetek monocytów o fenotypie prozapalnym oraz stężenia interleukiny 6 i białka C-reaktywnego, a maleje sprawność usuwania komórek apoptotycznych [21, 22].
Czwartym są czynniki zależne od zachowania. Aktywność fizyczna o umiarkowanym natężeniu obniża stężenia cytokin prozapalnych w obserwacji długoterminowej, mimo że pojedynczy wysiłek przejściowo podnosi stężenie interleukiny 6 wydzielanej przez mięsień. Sen, palenie tytoniu i skład diety wpływają na te stężenia w kierunku spójnym między badaniami, natomiast wielkość efektu pozostaje nieokreślona, a dane pochodzą głównie z badań obserwacyjnych.
5. Na co zwrócić uwagę
Najczęstszym nieporozumieniem jest przypisywanie cytokinie jednej stałej funkcji. Plejotropia i nadmiarowość sprawiają, że skutek zależy od komórki docelowej, od obecności innych cytokin i od drogi przekazu sygnału [1, 5]. Interleukina 6 jest tego najlepszym przykładem, ponieważ przez receptor błonowy działa naprawczo, a przez postać rozpuszczalną prozapalnie [1, 2]. Etykiety „cytokina prozapalna” i „przeciwzapalna” są zatem skrótem opisowym, nie własnością cząsteczki.
Drugie zastrzeżenie dotyczy oznaczania stężeń w surowicy. Cytokiny działają miejscowo i w stężeniach pikomolowych, a ich stężenie w osoczu odzwierciedla przelanie się sygnału poza tkankę, nie jego natężenie w ognisku. Wyniki zmieniają się w ciągu godzin, zależą od pory pobrania, od sposobu przechowywania próbki i od zastosowanej metody, skoro zaś tak, porównywanie wartości między pracowniami bywa nieuprawnione [22]. Z tego powodu w praktyce klinicznej oznacza się zwykle białka ostrej fazy, a nie same cytokiny.
Trzecie zastrzeżenie dotyczy oferowanych komercyjnie „paneli cytokinowych” jako badania przesiewowego. Nadmiarowość klasy sprawia, że prawidłowy wynik pojedynczego oznaczenia nie wyklucza toczącego się procesu, a wynik podwyższony nie wskazuje ani ogniska, ani przyczyny. Wartość rozpoznawcza takich paneli poza określonymi wskazaniami, w tym poza monitorowaniem zespołu uwalniania cytokin, pozostaje nieustalona.
Czwarte zastrzeżenie dotyczy wnioskowania z blokady jednej cytokiny o roli całej klasy. Skuteczność leków biologicznych dowodzi, że zablokowana cytokina jest ogniwem koniecznym w danej chorobie, natomiast nie pozwala wnioskować, że jest ogniwem jedynym: część chorych nie odpowiada na leczenie mimo podwyższonego stężenia cytokiny docelowej [13, 14].
Piąte zastrzeżenie dotyczy substancji przedstawianych jako obniżające stężenia cytokin prozapalnych. Doniesienia tego rodzaju pochodzą zwykle z badań w hodowlach komórkowych albo z badań u ludzi z punktami końcowymi w postaci stężeń, nie w postaci zdarzeń klinicznych. Obniżenie stężenia wskaźnika nie dowodzi zmiany przebiegu choroby, ponieważ zależność między stężeniem cytokiny a wynikiem klinicznym nie jest liniowa.
Szóste zastrzeżenie dotyczy przenoszenia wyników. Znaczna część mechanizmów przedstawionych powyżej została ustalona w modelach zwierzęcych i w hodowlach, w tym udział inflamasomu w chorobach neurozwyrodnieniowych [16, 18]. Dane u ludzi obejmują głównie pomiary stężeń oraz wyniki leczenia, wobec czego udział ilościowy poszczególnych cytokin w patogenezie chorób człowieka pozostaje w większości nieokreślony.