
1. Charakterystyka białka
1.1. Definicja i klasyfikacja
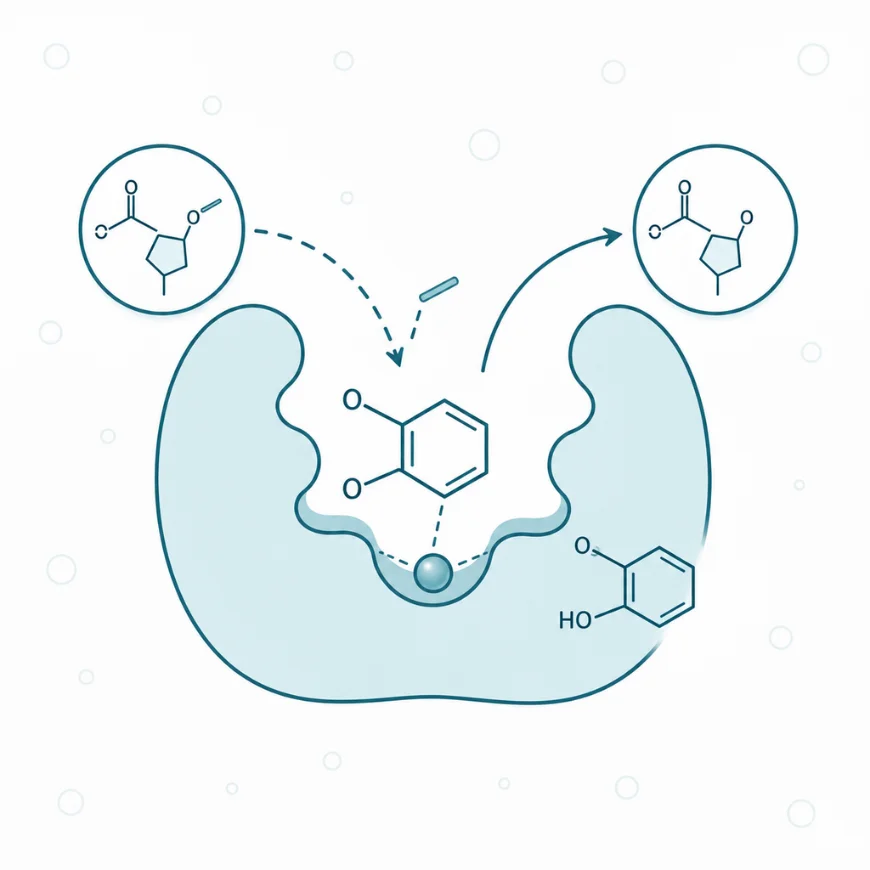
Katecholo-O-metylotransferaza (ang. catechol-O-methyltransferase, COMT) to enzym należący do transferaz metylowych, który przenosi grupę metylową na grupę hydroksylową pierścienia katecholowego. Katechol to benzen z dwiema sąsiednimi grupami hydroksylowymi, a taki układ mają dopamina, noradrenalina, adrenalina, lewodopa i wiele związków roślinnych. W klasyfikacji Komisji Enzymatycznej (EC), która porządkuje enzymy według typu katalizowanej reakcji, COMT nosi numer EC 2.1.1.6 [1, 2]. Dawcą grupy metylowej jest S-adenozylometionina (SAM) [2]. SAM to pochodna metioniny, która jest głównym dawcą grup metylowych w reakcjach metylacji zachodzących w komórce. Domena wiążąca SAM w cząsteczce COMT przypomina budową domeny metylotransferaz DNA, co wskazuje na wspólny plan budowy enzymów korzystających z tego dawcy [2].
COMT bywa mylona z innymi białkami szlaku katecholamin, choć każde z nich wykonuje inną operację chemiczną. Monoaminooksydaza (MAO) także rozkłada katecholaminy, ale odłącza od nich grupę aminową przez utlenienie, a nie dołącza grupę metylową. Fenyloetanoloamino-N-metylotransferaza (PNMT) również metyluje katecholaminę, lecz przyłącza grupę metylową do atomu azotu noradrenaliny i w ten sposób wytwarza adrenalinę, czyli uczestniczy w syntezie, a nie w rozkładzie. Transportery wychwytu zwrotnego, na przykład transporter dopaminy, przenoszą przekaźnik z powrotem do zakończenia nerwowego bez zmiany jego budowy [3]. Kryterium rozróżniającym jest więc produkt: spośród enzymów szlaku katecholamin tylko COMT wytwarza pochodne 3-metoksylowe, takie jak metanefryna czy 3-metoksytyramina [4].
Pojęcie COMT obejmuje jedno białko kodowane przez jeden gen w dwóch postaciach, rozpuszczalnej i błonowej, oraz warianty tego genu występujące w populacji [5, 6]. Hasło nie obejmuje całego metabolizmu katecholamin ani chorób, w których enzym jest tylko jednym z wielu ogniw. Osobnego opisu COMT wymaga z trzech powodów. Enzym w dużej mierze wyznacza stężenie dopaminy w korze przedczołowej, jest celem leków stosowanych w chorobie Parkinsona, a jego wariant Val158Met badano w genetyce psychiatrycznej w setkach zbiorów danych [7–9].
1.2. Budowa i formy
COMT występuje w dwóch postaciach, które powstają z tego samego genu na długim ramieniu chromosomu 22, w regionie 22q11 [10, 11]. Forma rozpuszczalna (S-COMT, od ang. soluble) pozostaje w cytoplazmie, a forma błonowa (MB-COMT, od ang. membrane-bound) jest zakotwiczona w błonie komórkowej. Łańcuch MB-COMT jest dłuższy o 50 aminokwasów na końcu aminowym i ten odcinek tworzy kotwicę błonową [4]. Stąd bierze się podwójna numeracja tej samej pozycji w białku: aminokwas 108 w S-COMT odpowiada aminokwasowi 158 w MB-COMT [12].
Obie formy powstają dzięki dwóm promotorom, czyli odcinkom DNA, od których rozpoczyna się przepisywanie genu. Gen COMT składa się z sześciu eksonów, a dwa pierwsze nie kodują białka [5]. Promotor bliższy P1 daje krótszy transkrypt o długości 1,3 tysiąca nukleotydów (kb), z którego powstaje głównie S-COMT. Promotor dalszy P2 daje transkrypt dłuższy, o długości 1,5 kb, który koduje MB-COMT [5]. Oba kodony startowe leżą w trzecim eksonie, a ilość krótszego transkryptu różni się między tkankami, co świadczy o regulacji ekspresji na poziomie transkrypcji [5].
Strukturę przestrzenną enzymu ustalono krystalograficznie z rozdzielczością 2,0 Å [2]. Cząsteczka ma jedną domenę katalityczną, w której obok siebie leżą miejsce wiązania SAM, miejsce wiązania katecholu i jon magnezu. Jon Mg²⁺ wiąże obie grupy hydroksylowe substratu i ustawia go tak, aby grupa metylowa trafiła na właściwy tlen [2, 4]. Z tego układu wynika zależność enzymu od magnezu: bez jonu metalu reakcja nie zachodzi.
W MB-COMT domena katalityczna leży po zewnętrznej stronie błony. W badaniu neuronów kory szczura ustalono to trzema niezależnymi metodami, choć wcześniej orientacja enzymu była przedmiotem sporu [13]. Taka orientacja oznacza, że błonowy enzym może metylować dopaminę w przestrzeni synaptycznej i poza nią, bez potrzeby wcześniejszego wychwytu przekaźnika do komórki [13].
1.3. Rozmieszczenie tkankowe i komórkowe
COMT występuje niemal we wszystkich tkankach, ale jej ilość i przewaga jednej z form zmieniają się między narządami. Najwyższą aktywność ma wątroba, a po niej nerka i przewód pokarmowy [4]. W narządach obwodowych przeważa forma rozpuszczalna, dlatego to ona metabolizuje większość katecholi krążących we krwi i przyjmowanych doustnie [4].
W mózgu proporcje się odwracają. W tkance kory przedczołowej człowieka przeważa MB-COMT, co potwierdzono w badaniu 108 próbek pośmiertnych [14]. W neuronach kory szczura enzym błonowy znaleziono w ciele komórki, aksonach i dendrytach [13]. Według modelu opisanego w badaniach kory przedczołowej część dopaminy wychwytują też komórki glejowe i neurony postsynaptyczne, a następnie metylują ją z udziałem COMT [7].
Szczególne miejsce zajmują komórki chromochłonne rdzenia nadnerczy. W guzie chromochłonnym COMT występuje w tych samych komórkach, które magazynują katecholaminy w pęcherzykach, i przeważa w nich forma błonowa [15]. Z tego rozmieszczenia wynika znaczenie diagnostyczne enzymu: produkty COMT powstają wewnątrz guza, zanim katecholaminy trafią do krwi.
1.4. Rys historyczny
Enzym metylujący katechole opisał Julius Axelrod w 1957 roku, badając losy adrenaliny in vitro i u zwierząt [16]. Rok później wraz z Tomchickiem scharakteryzował enzymatyczną O-metylację adrenaliny i innych katecholi [17]. W tym samym 1958 roku LaBrosse, Axelrod i Kety pokazali u człowieka, że główną drogą przemiany adrenaliny jest jej przekształcenie w nieaktywną metanefrynę. Uznali wówczas COMT za enzym, który w największym stopniu kończy działanie adrenaliny w organizmie [18].
Ten obraz szybko się zmienił. Axelrod ustalił następnie, że noradrenalina uwolniona z zakończeń nerwowych jest w dużej mierze wychwytywana z powrotem, a wychwyt zwrotny okazał się nowym sposobem unieczynniania przekaźnika. Za to odkrycie otrzymał w 1970 roku Nagrodę Nobla, a rozkład przez COMT przestał być postrzegany jako jedyny sposób kończenia działania katecholamin [3]. W latach dziewięćdziesiątych wyjaśniono budowę przestrzenną enzymu i zidentyfikowano jego częsty wariant Val158Met [2, 6].
2. Działanie molekularne
2.1. Reakcja katalizowana – substraty i produkty
COMT katalizuje jedną reakcję, ale na wielu substratach, bo rozpoznaje sam układ katecholowy, a nie resztę cząsteczki. Enzym przenosi grupę metylową z SAM na tlen grupy hydroksylowej w pozycji 3 pierścienia [2, 4]. Produktem jest pochodna 3-metoksylowa oraz S-adenozylohomocysteina (SAH), czyli SAM pozbawiona grupy metylowej [4]. Do reakcji potrzebne są trzy składniki: substrat katecholowy, SAM i jon Mg²⁺.
Reakcja przebiega w ustalonej kolejności. Najpierw w miejscu aktywnym wiąże się SAM, potem jon magnezu, a na końcu katechol [1, 4]. Jon Mg²⁺ ułatwia oddysocjowanie protonu z grupy hydroksylowej substratu, dzięki czemu tlen atakuje grupę metylową SAM [4]. Po przeniesieniu grupy uwalnia się produkt metylowany i SAH. Metylacja zmienia właściwości cząsteczki: metanefryna, czyli produkt metylacji adrenaliny, jest fizjologicznie nieaktywna [18].
Lista substratów obejmuje związki endogenne, leki i składniki pożywienia. Najważniejsze znaczenie fizjologiczne ma metylacja katecholamin, a klinicznie metylacja lewodopy [1, 4]. COMT metyluje również katecholoestrogeny, czyli 2- i 4-hydroksylowe pochodne estrogenów, między innymi w łożysku [19]. Substratami są także katechiny herbaty i flawonoidy o budowie katecholu, a ich metylacja zużywa SAM i wytwarza SAH [20].
Najważniejsze substraty COMT różnią się pochodzeniem, a ich produkty znaczeniem fizjologicznym i diagnostycznym.
| Substrat | Produkt O-metylacji | Znaczenie produktu |
| Dopamina | 3-metoksytyramina | nieaktywny metabolit, dalej rozkładany przez MAO |
| Noradrenalina | normetanefryna | marker diagnostyczny guza chromochłonnego |
| Adrenalina | metanefryna | marker diagnostyczny guza chromochłonnego |
| Kwas 3,4-dihydroksyfenylooctowy | kwas homowanilinowy | końcowy metabolit dopaminy |
| Lewodopa | 3-O-metylodopa | produkt, który nie przechodzi w dopaminę, miara obwodowej aktywności COMT |
| 2-hydroksyestradiol | 2-metoksyestradiol | metabolit estrogenu powstający między innymi w łożysku |
| Katechiny herbaty | katechiny metylowane | reakcja zużywa SAM i wytwarza SAH |
Wszystkie produkty COMT łączy jedno: grupa metylowa na tlenie, która wyłącza cząsteczkę z dotychczasowej funkcji. Dla katecholamin oznacza to koniec działania sygnałowego, a dla lewodopy utratę części leku przed dotarciem do mózgu [4, 21].
2.2. Kinetyka i regulacja aktywności
Dwie formy COMT różnią się powinowactwem do substratów, co przesądza o tym, która z nich pracuje przy danym stężeniu katecholamin. Stała Michaelisa (Km), czyli stężenie substratu, przy którym enzym pracuje z połową szybkości maksymalnej, jest dla S-COMT około 15 razy wyższa niż dla MB-COMT [1]. S-COMT ma za to nieco większą szybkość maksymalną wobec dopaminy, noradrenaliny i lewodopy [1]. MB-COMT silniej wiąże też SAM: stała dysocjacji wynosi dla niej 3,4 µM, a dla formy rozpuszczalnej 20,2 µM [1].
Z tych liczb wynika podział pracy. MB-COMT metyluje katecholaminy już przy niskich stężeniach, jakie panują w tkance nerwowej. S-COMT osiąga pełną wydajność dopiero przy stężeniach wysokich, na przykład w wątrobie po doustnym przyjęciu lewodopy [1, 4].
Aktywność enzymu hamuje przede wszystkim SAH, produkt samej reakcji [4]. Gdy SAH gromadzi się szybciej, niż komórka zdoła ją przekształcić w homocysteinę w cyklu metioninowym, metylacja zwalnia. Aktywność COMT zależy też od temperatury: wariant z metioniną w pozycji 158 szybciej niż wariant z waliną traci aktywność po ogrzaniu [1, 6]. Kolejną grupę regulatorów tworzą inhibitory z grupy nitrokatecholi, które wiążą się w miejscu aktywnym zamiast substratu. Ta właściwość stała się podstawą leków stosowanych w chorobie Parkinsona [4].
2.3. Miejsce w szlaku metabolicznym
COMT jest jednym z dwóch enzymów rozkładu katecholamin, a drugi z nich, MAO, jest związany z zewnętrzną błoną mitochondriów. Oba enzymy przekształcają przekaźnik kolejno, a porządek ich działania bywa różny [4]. Dopamina może być najpierw utleniona przez MAO do kwasu 3,4-dihydroksyfenylooctowego (DOPAC), który COMT metyluje do kwasu homowanilinowego (HVA). Może też najpierw zostać zmetylowana przez COMT do 3-metoksytyraminy, którą MAO przekształca następnie w ten sam HVA [4]. Noradrenalina przechodzi analogiczne przemiany do normetanefryny, a adrenalina do metanefryny [4, 18].
Udział COMT w usuwaniu dopaminy zależy od okolicy mózgu, a decyduje o tym gęstość transportera dopaminy (DAT), czyli białka, które zwraca przekaźnik do zakończenia nerwowego. W prążkowiu transportera jest dużo i to on usuwa większość dopaminy [7]. W korze przedczołowej DAT występuje w małej ilości, więc dopamina zostaje w przestrzeni pozakomórkowej dłużej [7]. Część przekaźnika przejmuje tam transporter noradrenaliny (NET), czyli białko wychwytujące noradrenalinę, dlatego leki hamujące NET podnoszą w korze stężenie obu katecholamin [7, 22].
Znaczenie COMT sprawdzono u myszy pozbawionych genu enzymu. Stężenie dopaminy w korze przedczołowej wzrosło u nich o 60%, podczas gdy w prążkowiu i jądrze półleżącym pozostało bez zmian [7]. Autorzy oszacowali, że w korze przedczołowej myszy COMT odpowiada za około połowę całkowitego usuwania dopaminy [7]. Zmiany dotyczyły głównie kory czołowej i różniły się między płciami, co zauważono już w pierwszym opisie tych zwierząt [23]. Dane te pochodzą z modelu zwierzęcego, a u człowieka ten sam kierunek zależności potwierdzają pośrednio badania wariantów genu i leków hamujących enzym [12, 24].
Skutki zmiany aktywności COMT wyznacza kształt zależności między dopaminą a pracą kory przedczołowej. Zależność ta ma postać odwróconej litery U: zarówno za mało, jak i za dużo sygnału dopaminowego pogarsza pamięć roboczą i kontrolę poznawczą [25]. Ilustruje to badanie z amfetaminą, która zwiększa uwalnianie dopaminy. U osób z genotypem Val/Val, czyli przy wysokiej aktywności COMT, amfetamina poprawiała sprawność kory przedczołowej podczas zadania pamięciowego. U osób z genotypem Met/Met ten sam lek przy dużym obciążeniu pamięci pracę kory pogarszał [26]. Obniżenie aktywności COMT nie jest zatem korzystne ani szkodliwe samo w sobie, a jego skutek zależy od wyjściowego poziomu dopaminy w korze.
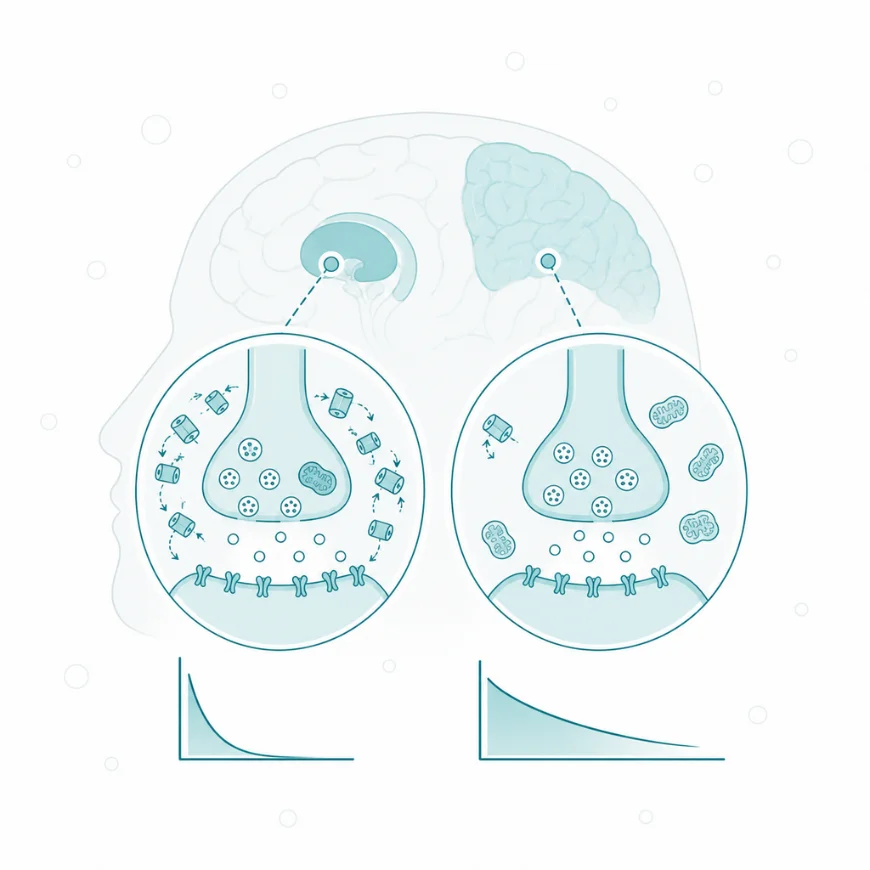
W prążkowiu dopaminę usuwają głównie wyspecjalizowane transportery, natomiast w korze przedczołowej zadanie to przypada enzymowi COMT. To dlatego wpływ wariantów genu COMT ujawnia się przede wszystkim w obszarze funkcji wykonawczych.
2.4. Zmienność genetyczna i fenotypy metaboliczne
Aktywność COMT różni się między ludźmi w dużej mierze z powodów dziedzicznych. Głównym źródłem tej zmienności w korze przedczołowej jest wariant oznaczany numerem rs4680 [14]. Polega on na zamianie guaniny na adeninę w kodonie 158 genu, przez co w białku walina zostaje zastąpiona metioniną [6]. Enzym z metioniną jest mniej odporny na temperaturę, a różnica aktywności między homozygotami wynosi trzy- do czterech razy [6, 10, 12]. W badaniu pośmiertnym kory przedczołowej wariant zmieniał ilość białka i jego aktywność, ale nie ilość mRNA, czyli informacyjnego RNA przenoszącego zapis genu do rybosomów [14]. Wskazuje to na mniejszą trwałość cząsteczki białka, a nie na słabszą ekspresję genu. Płeć i wariant w promotorze P2 miały na aktywność wpływ niewielki [14].
Pojedynczy wariant nie wyczerpuje jednak zmienności genu. Diatchenko i współpracownicy opisali trzy główne haplotypy, czyli zestawy wariantów dziedziczonych razem, i nazwali je od wrażliwości na ból: LPS (niska), APS (przeciętna) i HPS (wysoka) [27]. Te trzy haplotypy obejmują 96% badanej populacji, a haplotyp LPS daje znacznie wyższą aktywność enzymu niż dwa pozostałe [27]. Haplotypy różnią się w dwóch pozycjach synonimicznych, które nie zmieniają aminokwasu, i w jednej pozycji zmieniającej białko [28]. Największą różnicę aktywności dawały właśnie warianty synonimiczne. Zmieniały one kształt pętli w cząsteczce mRNA, a najtrwalsza pętla ograniczała translację i obniżała ilość białka [28].
Trzy genotypy rs4680 różnią się aktywnością enzymu, przewidywanym stężeniem dopaminy w korze przedczołowej i wynikami testów poznawczych.
| Genotyp rs4680 | Aktywność enzymu | Dopamina w korze przedczołowej | Wyniki w testach funkcji wykonawczych |
| Val/Val | najwyższa | najniższa | u zdrowych nieco słabsze niż przy Met/Met |
| Val/Met | pośrednia | pośrednia | pośrednie |
| Met/Met | trzy- do czterokrotnie niższa niż przy Val/Val | najwyższa | u zdrowych nieco lepsze niż przy Val/Val |
Stężenie dopaminy w korze przedczołowej jest tu kierunkiem wyprowadzonym z aktywności enzymu, a nie wartością zmierzoną u konkretnej osoby. Genotyp wpływał na wyniki testu funkcji wykonawczych proporcjonalnie do liczby alleli Met, lecz wyjaśniał około 4% zmienności tych wyników [12]. W metaanalizie u zdrowych osób różnica między homozygotami była mała, a standaryzowana wielkość efektu wynosiła 0,29, a u chorych na schizofrenię nie wystąpiła [29]. Genotyp COMT wiąże się więc z położeniem na krzywej zależności między dopaminą a pracą kory przedczołowej, ale nie przesądza o sprawności poznawczej.
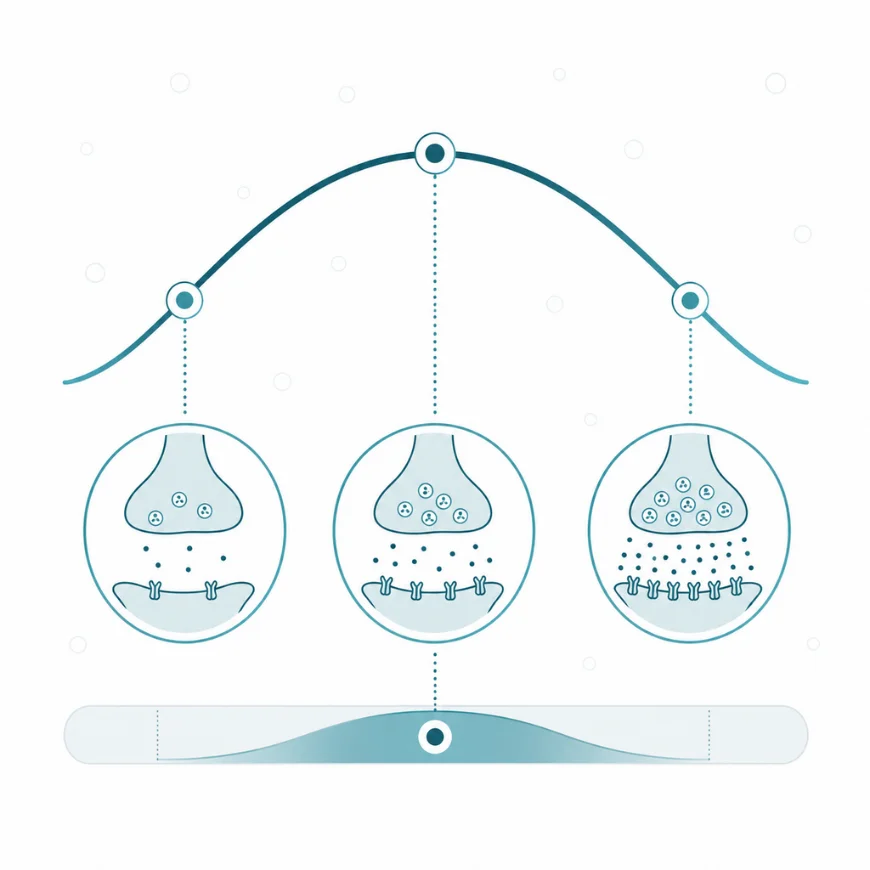
Wpływ dopaminy na korę przedczołową opisuje krzywa odwróconego U. Oznacza to, że istnieje optymalne okno jej stężenia – zarówno niedobór wywołany zbyt szybkim rozkładem, jak i nadmiar będący skutkiem zbyt wolnej pracy enzymu, mogą upośledzić funkcje wykonawcze.
3. Znaczenie kliniczne
3.1. Następstwa obniżonej aktywności
Obniżona aktywność COMT występuje u nosicieli allelu Met, przy haplotypach APS i HPS oraz w zespole delecji 22q11.2, w którym brakuje jednej kopii genu [6, 11, 27]. Wolniejszy rozkład podnosi stężenie katecholamin tam, gdzie enzym ma duży udział w ich usuwaniu. Następstwa obejmują co najmniej trzy obszary: przetwarzanie bólu, reakcje emocjonalne i funkcje poznawcze.
Związek niskiej aktywności z bólem opisano zarówno u zwierząt, jak i u ludzi. U szczurów zahamowanie COMT wyraźnie zwiększało wrażliwość na bodźce bólowe [27]. U ludzi obecność choćby jednego haplotypu LPS zmniejszała do 2,3 razy ryzyko przewlekłego bólu mięśni żucia w zaburzeniu stawu skroniowo-żuchwowego [27]. Metaanaliza zespołów bólu przewlekłego wskazała allel Met jako czynnik ryzyka fibromialgii i przewlekłego bólu uogólnionego. Nie potwierdziła natomiast związku z migreną ani z przewlekłym bólem mięśniowo-szkieletowym [30]. Ta sama praca opisała korzystną stronę niskiej aktywności: w niektórych bólach nowotworowych nosiciele allelu Met silniej reagowali na opioidy [30]. Postulowanym mechanizmem jest wzmożona aktywność adrenergiczna i dopaminergiczna w układzie przewodzenia bólu, a niska aktywność COMT zwiększa też liczbę receptorów opioidowych [30].
Niska aktywność COMT wpływa też na zachowanie. Samice myszy pozbawione obu kopii genu wykazywały zaburzoną reaktywność emocjonalną w teście lęku. Samce z jedną kopią genu były bardziej agresywne [23]. U ludzi dane o związku genotypu z lękiem są niespójne [9, 31]. Allel Met wiąże się z lepszymi wynikami w zadaniach wykonawczych, ale efekt ten jest mały [29]. Przy nadmiarze dopaminy, na przykład po amfetaminie, genotyp Met/Met sprzyjał pogorszeniu pracy kory przedczołowej [26].
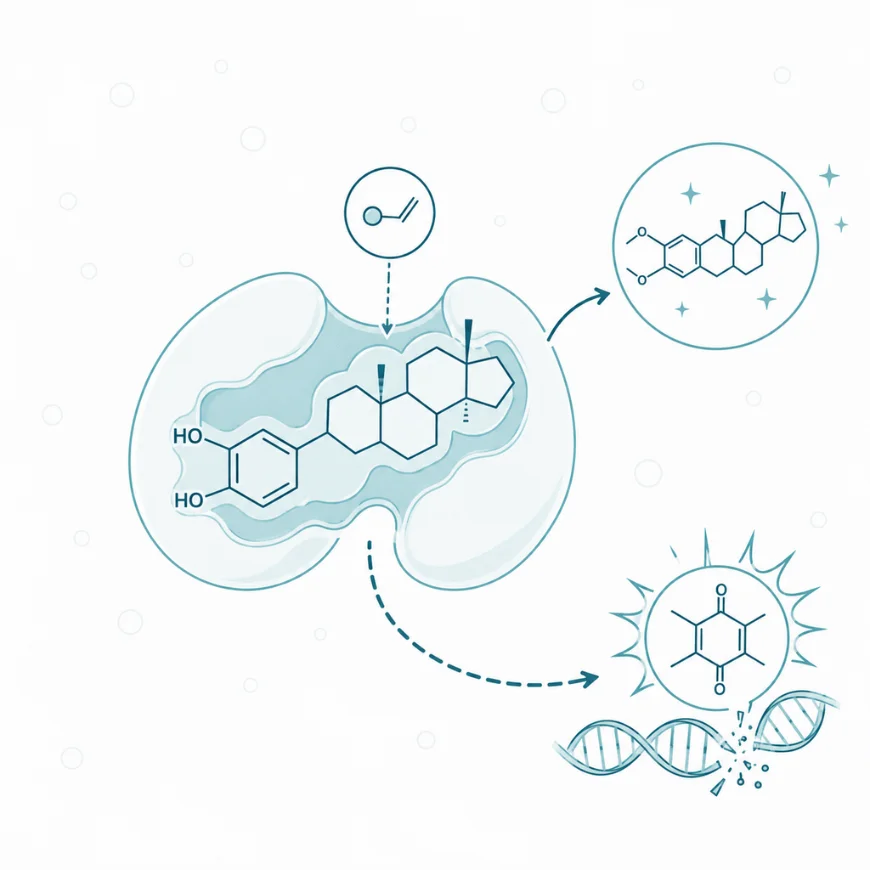
COMT unieczynnia również metabolity estrogenów. Przy jego niskiej aktywności wzrasta ryzyko, że związki te przekształcą się w reaktywne chinony, które mogą uszkadzać komórkowe DNA.
3.2. Następstwa podwyższonej aktywności
Wysoką aktywność COMT mają homozygoty Val/Val oraz nosiciele haplotypu LPS [6, 27]. Szybszy rozkład obniża stężenie dopaminy w korze przedczołowej, więc następstwa są odwrotnością tych opisanych przy aktywności niskiej. W badaniu chorych na schizofrenię, ich rodzeństwa i osób zdrowych każdy dodatkowy allel Val wiązał się z większą liczbą błędów perseweracyjnych w teście sortowania kart [12]. W badaniu czynnościowym rezonansem magnetycznym kora przedczołowa nosicieli allelu Val pracowała mniej wydajnie przy tym samym zadaniu pamięciowym [12].
Wysoka aktywność enzymu nie jest jednak wyłącznie niekorzystna. Stein i współpracownicy zaproponowali hipotezę „wojownika i zmartwionego” (ang. warrior/worrier) [31]. Zgodnie z nią allel Val daje przewagę w przetwarzaniu bodźców awersyjnych i w warunkach stresu, gdy dopaminy uwalnia się dużo. Allel Met ma dawać przewagę w zadaniach pamięciowych i uwagowych w warunkach spokoju [31]. Metaanaliza badań neuroobrazowych znalazła przeciwstawne efekty genotypu na aktywność kory przedczołowej. Przy zadaniach wykonawczych korzystniejszy był allel Met, a przy zadaniach emocjonalnych allel Val [32].
Replikacja tej hipotezy jest jednak niepełna. Późniejsza metaanaliza nie znalazła wpływu genotypu na aktywację mózgu podczas zadań pamięci roboczej [33]. Efekty behawioralne w testach funkcji wykonawczych były tym mniejsze, im nowsze było badanie [29]. Hipoteza „wojownika i zmartwionego” pozostaje więc modelem porządkującym dane, a nie ustaleniem pozwalającym przypisać konkretnej osobie profil psychologiczny.
3.3. Udział COMT w chorobach
Gen COMT badano w wielu chorobach, w których podejrzewano zaburzenie przekaźnictwa katecholaminowego. Wyniki są w większości słabe, niejednorodne i często zależne od pochodzenia etnicznego badanej grupy [9]. Metaanaliza obejmująca wszystkie zaburzenia psychiczne, dla których istniały dane, objęła 363 zbiory danych z piętnastu zaburzeń i znalazła związki ograniczone do podgrup [9].
Wiele prac dotyczy schizofrenii. Zespół delecji 22q11.2 obejmuje utratę jednej kopii fragmentu chromosomu o długości od 1,5 do 3 milionów par zasad i silnie zwiększa ryzyko schizofrenii oraz zaburzeń ze spektrum autyzmu [11]. COMT leży w usuwanym regionie, dlatego badano ją jako gen kandydujący w tej chorobie [10, 23]. W zespole delecji allel Met wiązał się w jednym badaniu z zaburzeniem dwubiegunowym o szybkiej zmianie faz [10]. W populacji ogólnej allel Val był częściej przekazywany potomstwu chorującemu na schizofrenię [12]. Metaanaliza 67 badań obejmujących 15 565 chorych i 17 251 osób zdrowych znalazła związek słaby: iloraz szans w modelu recesywnym wynosił 1,08, a w grupach azjatyckich związku nie było [34]. Przegląd historycznych genów kandydujących, uwzględniający wyniki badań genomowych, stwierdził, że badania takich genów, w tym COMT, nie wyjaśniły genetycznego podłoża schizofrenii [35]. Genotyp może natomiast mieć znaczenie farmakogenetyczne: w metaanalizie 30 badań wariant rs4680 wiązał się z odpowiedzią na leki przeciwpsychotyczne [36].
W bólu przewlekłym efekty genotypu są małe i zależą od rodzaju bólu [30, 37]. W metaanalizie badań bólu pooperacyjnego rs4680 wiązał się ze słabo wyższym natężeniem bólu przewlekłego po zabiegu, przy standaryzowanej różnicy średnich 0,26 [37]. Większość innych związków genetycznych opisanych w tej dziedzinie nie powtórzyła się w kolejnych badaniach [37].
W zespole nadpobudliwości psychoruchowej z deficytem uwagi (ADHD) wyniki są sprzeczne. Metaanaliza wszystkich zaburzeń psychicznych wiązała allel Val z ADHD i z zaburzeniem panicznym w grupach europejskiego pochodzenia [9]. Metaanaliza siedemnastu badań poświęconych wyłącznie ADHD nie znalazła związku w żadnym modelu genetycznym [38]. W zaburzeniach lękowych kierunek też nie jest jednoznaczny. Hipoteza „wojownika i zmartwionego” łączyła lęk z allelem Met, a metaanaliza wiązała zaburzenie paniczne z allelem Val [9, 31].
3.4. Punkt uchwytu leków
W chorobie Parkinsona COMT jest przeszkodą w leczeniu, bo rozkłada lewodopę, czyli prekursor dopaminy podawany w miejsce utraconego przekaźnika. Lewodopę podaje się razem z inhibitorem dekarboksylazy, który chroni ją przed przemianą w dopaminę poza mózgiem. Wówczas COMT staje się główną drogą jej obwodowego rozkładu do 3-O-metylodopy [4]. Inhibitor COMT hamuje tę drogę, przez co więcej lewodopy pozostaje we krwi dłużej i dociera do mózgu. Działanie lewodopy na przekaźnictwo dopaminergiczne w prążkowiu nasila się i wydłuża [21]. Okresy słabszego działania leku, tak zwane okresy „off”, ulegają wówczas skróceniu [8].
Dostępne są trzy inhibitory o różnych właściwościach. Entakapon i opikapon działają obwodowo i należą do zalecanych leków pierwszego wyboru dodawanych do lewodopy przy fluktuacjach ruchowych końca dawki [8]. Opikapon zaprojektowano tak, aby uniknąć dwóch wad starszych leków: uszkodzenia wątroby i krótkiego czasu działania [39]. W badaniu z randomizacją porównano go z placebo i z entakaponem u chorych z fluktuacjami ruchowymi [40]. Sieciowa metaanaliza 18 badań z udziałem 7564 chorych wskazała, że wszystkie trzy leki mogą wydłużać okresy dobrego działania lewodopy w porównaniu z placebo, przy czym wzrost istotny statystycznie wykazano dla opikaponu [41].
Tolkapon, trzeci inhibitor, jest inhibitorem COMT drugiego wyboru, ponieważ wymaga regularnej kontroli czynności wątroby [8]. U czterech chorych leczonych tolkaponem wystąpiło ciężkie uszkodzenie wątroby, co doprowadziło do ostrzeżenia w informacji o leku [42]. Panel ekspertów zauważył, że u chorych kontrolowanych zgodnie z pierwotnymi zasadami uszkodzenia wątroby nie stwierdzono, a prawie wszystkie nieprawidłowości pojawiały się w pierwszych sześciu miesiącach leczenia [42]. W odróżnieniu od leków obwodowych tolkapon działa także w mózgu. W przeglądzie 13 badań z randomizacją poprawiał on pamięć roboczą, lecz kierunek efektu zależał od genotypu COMT i był najbardziej spójny u osób Val/Val [24].
3.5. Czynniki wpływające na aktywność COMT
Aktywność COMT u danej osoby wyznaczają głównie czynniki niemodyfikowalne, a wpływ czynników zewnętrznych jest słabo udokumentowany. Największą część zmienności tłumaczą warianty genu i haplotypy [14, 27]. Niewielki wpływ ma płeć [14]. W łożysku aktywność metylowania katecholoestrogenów różniła się między kobietami do czterech razy [19].
Spośród czynników zewnętrznych badano głównie polifenole roślinne o budowie katecholu. Galusan epigallokatechiny (EGCG) z zielonej herbaty hamował ludzką COMT z wątroby in vitro już przy stężeniu 0,36 µM [43]. Podany doustnie szczurom umiarkowanie obniżał powstawanie 3-O-metylodopy [43]. Kwercetyna i katechiny herbaty również silnie hamowały enzym w probówce. U szczurów metylację lewodopy obniżała jednak tylko (+)-katechina, co autorzy wiązali z jej lepszą biodostępnością [44]. EGCG i kwercetyna hamują enzym różnymi mechanizmami, a wrażliwość na nie różniła się między próbkami ludzkiego łożyska [19].
Dane u ludzi nie potwierdzają hamowania COMT przez EGCG. W badaniu 24 zdrowych ochotników duża pojedyncza podaż EGCG nie obniżyła aktywności enzymu w krwinkach czerwonych, a nawet podniosła ją o 24% [45]. W tym samym badaniu aktywność enzymu wyraźnie obniżał genotyp Met/Met, a nie podaż EGCG [45].
Aktywność COMT zależy też od dostępności SAM i od usuwania SAH. Metylacja katechin z pożywienia zużywa SAM i zwiększa ilość SAH, która hamuje inne metylotransferazy [20]. Magnez jest niezbędnym kofaktorem reakcji [4]. Spośród substancji dostępnych jako suplementy wpływ na sam enzym udokumentowano dla EGCG i kwercetyny, i to głównie w warunkach laboratoryjnych [43–45]. Dawkowanie i interakcje tych substancji opisują karty działu Suplementy.
4. Uwagi praktyczne
4.1. Jak to zbadać
Aktywności COMT w mózgu nie da się zmierzyć u żywego człowieka, więc w praktyce oznacza się genotyp, aktywność enzymu we krwi albo produkty jego działania. Genotyp rs4680 oznacza się w wyizolowanym DNA metodą łańcuchowej reakcji polimerazy, a pierwszy opis testu wykorzystywał trawienie enzymem restrykcyjnym [6]. Wynik podaje jeden z trzech genotypów: Val/Val, Val/Met albo Met/Met. Genotyp jest cechą dziedziczną, więc jego wynik nie zmienia się w ciągu życia.
Wynik genotypowania określa, jaki wariant białka ktoś wytwarza, ale nie określa, ile dopaminy ma w korze przedczołowej. O tym decydują także synteza dopaminy, jej uwalnianie, transportery i pozostałe warianty genu [7, 28]. Pojedynczy wariant wyjaśniał w badaniach około 4% zmienności funkcji wykonawczych, a jego związki z chorobami psychicznymi są słabe [12, 34]. Genotyp nie jest więc podstawą rozpoznania ani decyzji o leczeniu poza badaniami naukowymi. W badaniach naukowych służy między innymi do przewidywania reakcji na tolkapon w zadaniach pamięciowych [24].
Aktywność COMT w krwinkach czerwonych mierzono w badaniach naukowych, na przykład przy ocenie wpływu EGCG na enzym [45]. Pomiar ten odzwierciedla formę rozpuszczalną, a nie błonową, która przeważa w mózgu [4, 14].
Najważniejszym zastosowaniem klinicznym są produkty COMT. Oznaczenie wolnych metanefryn w osoczu albo frakcjonowanych metanefryn w moczu jest według wytycznych Towarzystwa Endokrynologicznego badaniem pierwszego wyboru w rozpoznawaniu guza chromochłonnego i przyzwojaka [46]. Ponad 93% podwyższonych metanefryn w osoczu tych chorych pochodzi z metylacji katecholamin wewnątrz guza [15]. Wyjaśnia to, dlaczego metanefryny wykrywają także guzy, które katecholamin do krwi wydzielają niewiele. Na wynik wpływają czynniki przedanalityczne, dlatego każdy wynik dodatni wymaga dalszej weryfikacji [46]. W badaniach farmakologicznych miarą obwodowej aktywności COMT bywa stężenie 3-O-metylodopy we krwi [4, 43].
4.2. Na co warto zwrócić uwagę
Wokół COMT narosły przekonania z pogranicza tak zwanej nutrigenomiki, czyli dziedziny badającej związki między genami a dietą. Jedno z nich głosi, że osoba z genotypem Met/Met jest „wolnym metylatorem”, który wymaga specjalnej diety lub suplementów. Określenie to łączy dwie różne rzeczy: aktywność jednego enzymu i ogólną sprawność metylacji w organizmie. Wariant Met dotyczy wyłącznie białka COMT i obniża jego trwałość [6, 14], więc nie opisuje ilości SAM ani aktywności innych metylotransferaz. Dostępne metaanalizy dotyczą samego genotypu i wskazują na efekty małe [29, 35]. Z tak małych efektów nie da się wyprowadzić diety dobranej do genotypu konkretnej osoby.
Drugie przekonanie zakłada, że allel Met jest „lepszy”, bo daje więcej dopaminy w korze przedczołowej. Krzywa odwróconego U pokazuje, że korzyść zależy od punktu wyjścia i od sytuacji [25]. Ten sam genotyp sprzyjał pracy kory w spokoju i utrudniał ją po amfetaminie [26]. Nie ma więc wariantu korzystnego w każdych warunkach.
Trzecie przekonanie dotyczy produktów roślinnych, które miałyby „hamować COMT” i w ten sposób podnosić dopaminę. Dane z probówki i z badań na szczurach nie przenoszą się wprost na człowieka, bo o działaniu decyduje stężenie związku osiągalne w tkankach [44]. W badaniu u zdrowych ochotników duża podaż EGCG enzymu nie zahamowała [45].
Ograniczenia dowodowe dotyczą całej genetyki COMT. Wczesne badania podawały większe efekty niż późniejsze, a nowsze metaanalizy dają wyniki mniejsze lub zerowe [29, 33]. Związki różnią się między płciami i grupami etnicznymi, dlatego wynik z jednej populacji nie przenosi się na inną [9]. Leki hamujące COMT działają skutecznie, ale ich stosowanie wymaga nadzoru lekarskiego, a tolkapon kontroli czynności wątroby [8, 42]. Treść hasła ma charakter edukacyjny i nie zastępuje konsultacji lekarskiej.