
1. Profil substancji
1.1. Definicja i klasyfikacja
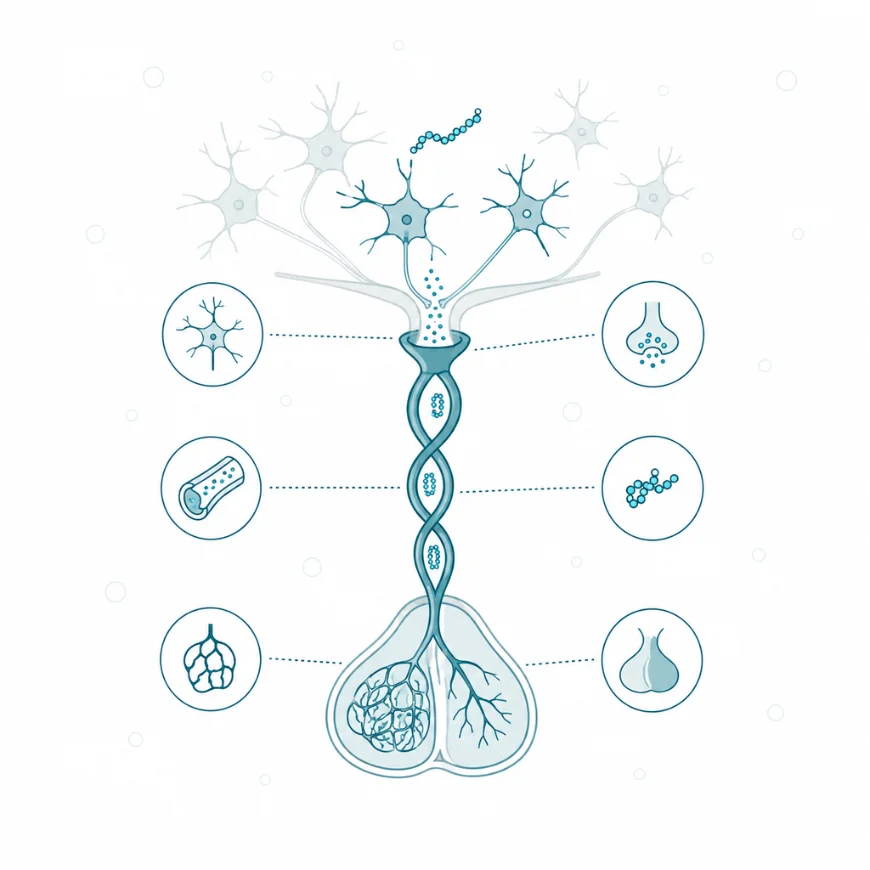
Gonadoliberyna (ang. gonadotropin-releasing hormone, GnRH) to dekapeptyd wytwarzany przez neurony podwzgórza, należący do liberyn, czyli hormonów podwzgórzowych pobudzających wydzielanie hormonów przysadki. GnRH działa na komórki gonadotropowe przedniego płata przysadki i pobudza w nich syntezę oraz uwalnianie dwóch gonadotropin [1, 2]. Pierwszą z nich jest hormon luteinizujący (LH), który w gonadach pobudza wytwarzanie hormonów płciowych. Drugą jest hormon folikulotropowy (FSH), który wspiera dojrzewanie pęcherzyków jajnikowych i plemników. Jedna cząsteczka GnRH steruje więc obiema gonadotropinami, a na proporcję między nimi wpływa rytm jej wydzielania [2]. W klasyfikacji hormonów GnRH jest ogniwem nadrzędnym osi podwzgórze–przysadka–gonady.
Gonadoliberyna bywa mylona z gonadotropinami, choć nazwa opisuje jej funkcję, a nie tożsamość. Kryterium różnicującym jest miejsce powstawania i wielkość cząsteczki: GnRH to krótki peptyd podwzgórza, a LH i FSH to duże glikoproteiny przedniego płata przysadki. Drugim pojęciem mylonym jest kispeptyna, która działa o piętro wyżej i pobudza neurony GnRH, a dopiero one przekazują sygnał do przysadki [3]. Od GnRH w ścisłym znaczeniu odróżnia się też gonadoliberynę II, odrębny peptyd obecny w mózgu poza podwzgórzem i w tkankach rozrodczych [4].
Zakres pojęcia obejmuje hormon podwzgórzowy, nazywany też GnRH I, jego receptor na komórkach przysadki oraz syntetyczne analogi, które wykorzystują ten receptor jako punkt uchwytu leków [4, 5]. Znaczenie GnRH wynika z tego, że bez jej impulsów przysadka nie podtrzymuje wydzielania gonadotropin, co pokazały doświadczenia na małpach z uszkodzonym podwzgórzem [6]. Wrodzony niedobór GnRH objawia się u człowieka brakiem pokwitania i niepłodnością [7]. Analogi GnRH stały się jedną z podstawowych klas leków w urologii, ginekologii i endokrynologii dziecięcej [5].
1.2. Budowa i właściwości
Cząsteczka GnRH składa się z dziesięciu aminokwasów o sekwencji pGlu-His-Trp-Ser-Tyr-Gly-Leu-Arg-Pro-Gly-NH₂, identycznej u świni i owcy [1, 8]. Oba końce łańcucha są zablokowane: na początku stoi cykliczny kwas piroglutaminowy, a na końcu glicyna w postaci amidu. Budowa hormonu jest silnie zachowana w ewolucji, bo u strunowców i kręgowców opisano 23 warianty strukturalne tego peptydu [4]. U człowieka obok hormonu podwzgórzowego występuje gonadoliberyna II, zachowana u wszystkich wyższych kręgowców [4].
Krótki łańcuch peptydowy decyduje o najważniejszej właściwości farmakologicznej GnRH, czyli o podatności na rozkład przez peptydazy. Zmiana budowy w pozycji 6 i na końcu łańcucha tę podatność zmniejsza. W cytozolu łożyska ludzkiego agonista [D-Trp⁶]GnRH z etyloamidem na końcu ulegał inaktywacji wolniej niż gonadoliberyna II, a inhibitory peptydaz hamowały ten rozkład [9]. Oporność na rozkład jest cechą, dzięki której długo działające agonisty utrzymują receptor w stanie ciągłego pobudzenia [5, 9]. Budowa cząsteczki wyznacza więc dwie drogi jej użycia w medycynie: naturalny hormon naśladuje krótkie impulsy, a analog oporny na rozkład zamienia je w sygnał ciągły.
1.3. Rys historyczny
Do 1971 roku otwarte pozostawało pytanie, czy wydzielaniem LH i FSH sterują odrębne czynniki podwzgórzowe [1]. W 1971 roku zespół Schally’ego wyizolował z podwzgórzy świń polipeptyd, ustalił jego sekwencję i otrzymał go syntetycznie [1]. Peptyd naturalny i syntetyczny pobudzały uwalnianie obu gonadotropin z przysadek kilku gatunków, dlatego autorzy uznali go za jeden hormon regulujący wydzielanie LH i FSH [1]. W styczniu 1972 roku zespół Guillemina opisał identyczną sekwencję czynnika uwalniającego LH z podwzgórzy owiec, a peptyd syntetyczny działał jak naturalny [8].
Drugie rozstrzygnięcie dotyczyło sposobu działania hormonu. W 1978 roku zespół Knobila badał rezusy, u których uszkodzenie podwzgórza zniosło wydzielanie gonadotropin [6]. Ciągły wlew syntetycznej GnRH nie przywracał trwałego wydzielania, a podawanie jej raz na godzinę, z naturalną częstością impulsów u tych zwierząt, przywracało je [6]. Rozpoczęcie wlewu ciągłego u zwierząt z przywróconym wydzielaniem prowadziło z kolei do odwrażliwienia przysadki [6]. Z tych doświadczeń wyrosły dwa kierunki leczenia: pompy podające GnRH impulsowo i długo działające agonisty wyłączające oś [5].
1.4. Synteza i źródła
Neurony wydzielające GnRH nie powstają w mózgu, lecz różnicują się w plakodach węchowych zarodka i jeszcze przed urodzeniem wędrują z okolicy nosa do podwzgórza [10]. Badanie przejrzystych mózgów płodów ludzkich z pierwszego trymestru ciąży wykazało, że neuronów tych jest więcej, niż wcześniej sądzono [10]. Część z nich dociera także do obszarów mózgu położonych poza podwzgórzem [10]. Wspólna droga rozwojowa łączy neurony GnRH ze zmysłem węchu, co ma bezpośrednie następstwa kliniczne w zespole Kallmanna [11].
W neuronie GnRH powstaje z większego prekursora, prohormonu o masie około 10–12 kDa, który enzymy dzielą na dekapeptyd i peptyd towarzyszący, nazywany GAP (ang. GnRH-associated peptide) [12]. Obróbka prekursora obejmuje co najmniej cztery etapy enzymatyczne [12]. Konwertaza prohormonów 2 i karboksypeptydaza E wycinają łańcuch hormonu z prekursora. Cyklaza glutaminylowa tworzy pierścień piroglutaminowy na początku łańcucha, a monooksygenaza amidująca peptydy tworzy amid na jego końcu [12]. Dane te pochodzą z unieśmiertelnionych neuronów GnRH i z podwzgórza szczura, więc ich przeniesienie na neurony ludzkie opiera się na analogii, nie na bezpośrednim pomiarze.
Gotowy hormon zostaje zmagazynowany w zakończeniach aksonów, które docierają do wyniosłości pośrodkowej na dnie podwzgórza. Z włókien wyniosłości pośrodkowej GnRH przechodzi do naczyń wrotnych przysadki [13]. Krew wrotna niesie hormon bezpośrednio do przedniego płata przysadki, zanim rozcieńczy się on w krążeniu ogólnym. Dzięki temu krótkie impulsy wydzielnicze docierają do komórek gonadotropowych jako wyraźne, oddzielone od siebie sygnały.
2. Mechanizm działania i funkcje
2.1. Receptory
Receptor GnRH (GnRHR, receptor typu I) to receptor metabotropowy o siedmiu domenach przezbłonowych, o wysokim powinowactwie do hormonu, obecny na komórkach gonadotropowych przedniego płata przysadki [2]. U człowieka hormon podwzgórzowy reguluje wydzielanie gonadotropin właśnie przez ten receptor, który przekazuje sygnał głównie przez białko Gq [4]. Receptor może też sprzęgać się z innymi białkami G, a wybór szlaku może zależeć od budowy liganda [4]. U wielu kręgowców gonadoliberyna II ma własny receptor typu II. Ludzki gen tego receptora zawiera jednak przesunięcie ramki odczytu i kodon stop, dlatego gonadoliberyna II działa u człowieka przez receptor typu I [4].
Receptor typu I występujący u ssaków wyróżnia się wśród receptorów sprzężonych z białkami G brakiem końcowego odcinka karboksylowego, czyli tak zwanego ogona C-końcowego [14]. W większości takich receptorów fosforylacja ogona przyciąga β-arestynę, białko, które osłabia aktywację białka G i kieruje receptor do internalizacji [14]. Receptor GnRH bez ogona zachowuje się jak naturalny mutant pozbawiony szybkiego odwrażliwienia i internalizacji [14]. Mimo to ciągłe pobudzenie komórek gonadotropowych silnie hamuje wydzielanie gonadotropin. Odpowiadają za to mechanizmy położone za receptorem, między innymi zmniejszenie liczby receptorów dla trifosforanu inozytolu w siateczce śródplazmatycznej [14]. Odwrażliwienie przysadki na GnRH zależy więc w dużej mierze od zmian wewnątrzkomórkowych położonych za receptorem [14].
2.2. Kaskada sygnałowa
Komórka gonadotropowa w przerwie między impulsami GnRH przechowuje gotowe LH w ziarnistościach wydzielniczych, a jej receptory GnRH pozostają wolne. Bodźcem jest impuls hormonu, który przez naczynia wrotne dociera do przysadki i wiąże się z receptorem typu I na błonie komórkowej. Związanie zmienia konformację receptora, który aktywuje białko Gq/11 z rodziny białek G [4]. Podjednostka α tego białka pobudza fosfolipazę C β, enzym błonowy, który rozkłada fosfatydyloinozytolo-4,5-bisfosforan. Z rozkładu powstają dwa przekaźniki wtórne: trifosforan inozytolu (IP3) i diacyloglicerol.
IP3 otwiera kanały wapniowe siateczki śródplazmatycznej, a wzrost stężenia wapnia w cytozolu uruchamia egzocytozę ziarnistości z LH. Diacyloglicerol wraz z wapniem aktywuje kinazę białkową C, która przenosi sygnał dalej, do kaskad kinaz aktywowanych mitogenami. Kaskady te docierają do jądra komórkowego i zmieniają transkrypcję genów podjednostek gonadotropin [2]. Rodzaj uruchamianych szlaków i czynników transkrypcyjnych zależy od częstości impulsów GnRH [2]. Stanem końcowym jest komórka, która uwolniła część zapasu LH i jednocześnie zaczęła odtwarzać go przez syntezę nowych cząsteczek. Jeden impuls GnRH daje więc dwa skutki o różnej skali czasu: szybkie uwolnienie hormonu zmagazynowanego i wolniejsze uzupełnienie zapasu na kolejny impuls.
2.3. Funkcje gonadoliberyny
2.3.1. Pulsacyjne sterowanie gonadotropinami
Pulsacyjne wydzielanie GnRH jest podstawowym trybem pracy osi rozrodczej u obu płci. Przysadka reaguje na wzorzec dopływu hormonu, a nie na samą jego ilość, bo przerwy między impulsami chronią komórki gonadotropowe przed odwrażliwieniem [6, 14]. Komórka gonadotropowa odczytuje też częstość impulsów, bo różne częstości uruchamiają odmienne szlaki sygnałowe i przesuwają proporcję między syntezą LH a FSH [2]. Przyspieszenie impulsów GnRH sprzyja wydzielaniu LH, co najlepiej opisano w zespole policystycznych jajników [15].
Na syntezę gonadotropin wpływają jednak także aktywina, inhibina i hormony płciowe, dlatego częstość impulsów nie jest jedynym czynnikiem, który decyduje o proporcji LH do FSH [2]. Rytm GnRH jest mimo to jednym z sygnałów, przez które podwzgórze może zmieniać skład wydzielania przysadki bez zmiany samego hormonu. Dzięki temu jedna cząsteczka może w różnych fazach życia i cyklu przekazywać gonadom odmienne polecenia.
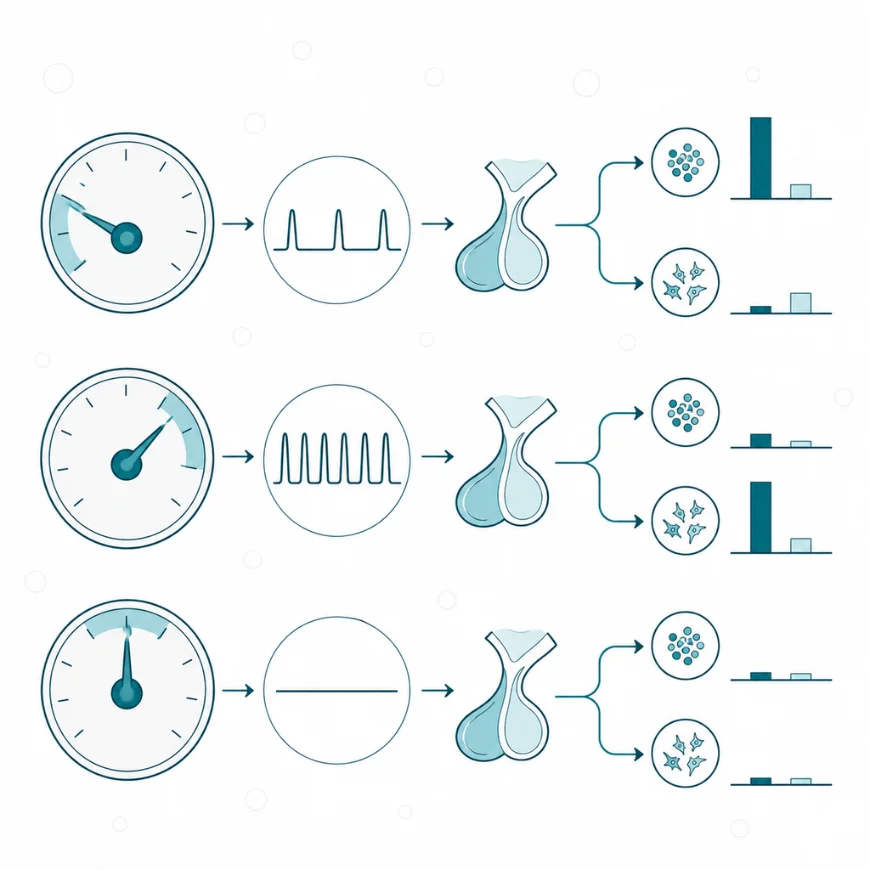
Informacja jest kodowana częstotliwością impulsów. Podanie ciągłe zamiast pulsacyjnego wyłącza oś zamiast ją pobudzać.
2.3.2. Wyzwolenie wyrzutu przedowulacyjnego
Wyrzut przedowulacyjny to drugi, obok impulsów, tryb pracy sieci neuronów GnRH, występujący u samic ssaków. Sieć ta generuje zarówno impulsy, które podtrzymują podstawowe wydzielanie gonadotropin, jak i wyrzut, który wyzwala owulację [3]. U samic gryzoni wyrzut generują neurony kispeptynowe okolicy przedwzrokowej, które unerwiają ciała komórkowe i proksymalne dendryty neuronów GnRH [3]. U innych gatunków ich udział jest prawdopodobny, ale słabiej udokumentowany [3]. Sygnałem uruchamiającym wyrzut w cyklu jest narastające stężenie estradiolu wydzielanego przez dojrzewający pęcherzyk jajnikowy.
Generator wyrzutu dojrzewa później niż generator impulsów. U samic rozwój pulsacyjnego wydzielania gonadotropin umożliwia ostateczne dojrzewanie generatora wyrzutu, który wyzwala pierwszą owulację [3]. Sam przebieg wyrzutu LH i pęknięcia pęcherzyka jest procesem przysadkowo-jajnikowym, w którym GnRH pełni rolę sygnału wyzwalającego. Dopiero połączenie obu trybów, impulsowego i wyrzutowego, zamienia stałą czynność osi rozrodczej w cykliczną płodność.
2.3.3. Działanie poza przysadką
Działanie GnRH poza przysadką wynika z obecności neuronów i receptorów tego układu w innych okolicach mózgu i w tkankach rozrodczych. U płodów ludzkich neurony GnRH docierają do kilku obszarów mózgu poza podwzgórzem, co autorzy uznali za przesłankę pozarozrodczych funkcji hormonu [10]. Gonadoliberyna II występuje w pozapodwzgórzowych okolicach mózgu i w wielu tkankach rozrodczych [4]. W mysim modelu zespołu Downa zaburzenia węchu i funkcji poznawczych narastały równolegle z pokwitaniowym spadkiem ekspresji GnRH w podwzgórzu i poza nim [16]. Przywrócenie prawidłowego poziomu GnRH znosiło u tych myszy zaburzenia węchu i funkcji poznawczych [16].
W tej samej pracy pulsacyjne podawanie GnRH dorosłym chorym z zespołem Downa poprawiało funkcje poznawcze i łączność mózgową [16]. Wynik kliniczny pochodzi z jednej pracy i przed uznaniem go za stałe działanie GnRH wymaga potwierdzenia w badaniach z randomizacją. Hipoteza pozarozrodczej roli GnRH zakłada, że ten sam hormon, który steruje płodnością, wpływa na dojrzewanie sieci węchowych i poznawczych.
2.4. Regulacja wydzielania i zmienność w ciągu życia
Rytm impulsów GnRH nadaje sieć neuronów jądra łukowatego podwzgórza, które wytwarzają kispeptynę, neurokininę B i dynorfinę. Od pierwszych liter tych peptydów pochodzi nazwa neuronów KNDy (ang. kisspeptin, neurokinin B, dynorphin). U samic myszy neurony te mają również receptory dla neurokininy B i dla dynorfiny, czyli receptor opioidowy κ [13]. Autorzy zaproponowali model, w którym oba peptydy działają zwrotnie na same neurony KNDy, synchronizują ich wyładowania i nadają kształt impulsowemu wydzielaniu kispeptyny [13]. W doświadczeniu optogenetycznym na myszach jednominutowe pobudzenie neuronów kispeptynowych jądra łukowatego wywoływało impuls LH, a ich wyciszenie hamowało pulsacyjność [17]. Zsynchronizowana aktywność neuronów trwała około minuty i u myszy po usunięciu gonad powtarzała się nawet co 9 minut, niemal dokładnie w rytmie impulsów LH [17].
Hormony płciowe hamują wydzielanie GnRH, ale same neurony GnRH nie mają receptorów steroidowych, więc sprzężenie zwrotne biegnie przez sieć położoną wyżej [18]. U myszy estradiol zmniejsza w jądrze łukowatym ekspresję kispeptyny, neurokininy B, dynorfiny i ich receptorów [13]. Oś rozrodcza rozwija się już w życiu płodowym, a po krótkim okresie aktywacji tuż po urodzeniu pozostaje wyciszona aż do pokwitania [3]. Na początku pokwitania generator impulsów ponownie się uaktywnia, prawdopodobnie pod wpływem sygnałów z komórek glejowych i neuroprzekaźników oraz odnowionego pobudzenia kispeptynowego [3]. Zmienność wydzielania GnRH w ciągu życia wynika więc nie z budowy hormonu, lecz z tego, kiedy sieć KNDy i sprzężenie steroidowe dopuszczają impulsy do przysadki.
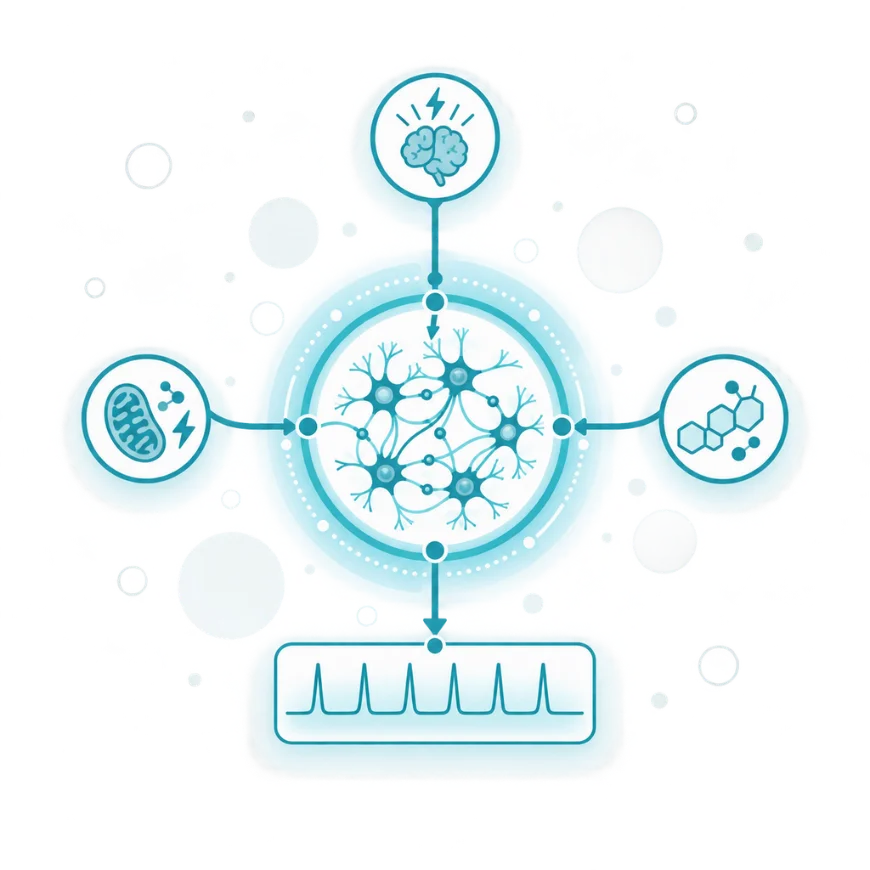
Neurony GnRH tworzą generator impulsów. Sygnały metaboliczne i stresowe działają na całą sieć, nie na pojedyncze komórki.
2.5. Inaktywacja i wydalanie
Inaktywacja GnRH polega na rozkładzie peptydu przez enzymy proteolityczne tkanek, przez które hormon przepływa. Ilość GnRH docierająca do przysadki zależy nie tylko od syntezy i wydzielania, lecz także od stopnia rozkładu przez swoiste endopeptydazy [19]. W tkance podwzgórza i przysadki szczura in vitro hormon ulegał takiemu rozkładowi, a bacytracyna, kompetycyjny inhibitor endopeptydazy prolilowej, chroniła przed nim zmodyfikowaną postać GnRH związaną z miedzią [19]. W cytozolu łożyska ludzkiego rozkład gonadoliberyny II i analogów GnRH hamowały inhibitory peptydaz [9]. Po wypłynięciu z przysadki pozostały hormon rozcieńcza się w całej objętości krwi. Przytoczone dane o drogach rozkładu pochodzą z tkanek szczura i z łożyska ludzkiego, a rozkład GnRH w krążeniu człowieka opisują one tylko pośrednio.
Szybkie usuwanie hormonu jest warunkiem sygnału impulsowego. Przysadka odróżnia kolejne impulsy tylko wtedy, gdy hormon z poprzedniego impulsu zdąży zniknąć z jej otoczenia. Analog oporny na peptydazy, uwalniany stopniowo z postaci depot, znosi te przerwy i dlatego działa na przysadkę odwrotnie niż hormon naturalny [5].
3. Zaburzenia i modyfikacja
3.1. Niedobór – przyczyny i następstwa
Niedobór GnRH oznacza brak albo osłabienie impulsów docierających do przysadki, niezależnie od tego, czy zawodzi wytwarzanie, wydzielanie czy działanie hormonu. Wrodzony hipogonadyzm hipogonadotropowy to rzadka choroba wynikająca właśnie z upośledzonego wytwarzania, wydzielania lub działania GnRH, a jej przyczyną może być ponad 25 genów [7]. Objawia się brakiem pokwitania i niepłodnością, a u około połowy chorych towarzyszy mu brak albo osłabienie węchu, co określa się jako zespół Kallmanna [7]. Zespół Kallmanna jest następstwem niepełnej wędrówki neuronów GnRH w życiu zarodkowym [7]. W mózgu płodu z tym zespołem nie znaleziono neuronów GnRH, a ich skupiska kończyły się w oponach na blaszce sitowej kości sitowej [11].
Wrodzony niedobór bywa też skutkiem uszkodzenia sieci, która pobudza neurony GnRH. W rodzinie z pięciorgiem chorego rodzeństwa przyczyną była homozygotyczna delecja w genie GPR54, kodującym receptor kispeptyny [20]. W czterech rodzinach z ciężkim wrodzonym niedoborem gonadotropin chorzy mieli mutacje genu neurokininy B (TAC3) albo jej receptora (TACR3) [21]. Oba odkrycia pokazują, że u człowieka neurony GnRH wymagają pobudzenia z sieci kispeptyny i neurokininy B. Choroba zwykle wymaga leczenia przez całe życie, ale u około 10–20% chorych czynność osi rozrodczej powraca samoistnie [7].
Czynnościowy podwzgórzowy brak miesiączki to nabyta postać niedoboru, czyli przewlekły brak owulacji bez przyczyny organicznej, związany ze stresem, utratą masy ciała, nadmiernym wysiłkiem albo ich połączeniem [22]. Rozpoznaje się go po wykluczeniu innych przyczyn, a jego powikłaniami są między innymi utrata masy kostnej i niepłodność [22]. W obu postaciach niedoboru przysadka i gonady zwykle zachowują zdolność do pracy i brakuje im głównie sygnału z podwzgórza. Impulsowe podawanie GnRH przez przenośną pompę przywraca bowiem zdolność rozrodczą kobietom i mężczyznom z zaburzonym wydzielaniem własnego hormonu, a u większości chorych z postacią wrodzoną płodność daje się wywołać leczeniem [5, 7].
3.2. Nadmiar – przyczyny i następstwa
Nadmiar GnRH w znaczeniu klinicznym oznacza przede wszystkim przedwczesne uruchomienie impulsów, a nie podwyższone stężenie mierzone we krwi. Ośrodkowe przedwczesne dojrzewanie płciowe wynika z przedwczesnej aktywacji osi podwzgórze–przysadka–gonady [23]. Odtwarza ono przebieg fizjologicznego pokwitania w nieodpowiednim wieku, czyli przed 8. rokiem życia u dziewcząt i przed 9. rokiem życia u chłopców [23]. Przyczyną bywają wrodzone wady mózgu albo nabyte uszkodzenia, ale u większości dziewcząt przyczyny nie udaje się ustalić [23].
W postaciach rodzinnych przedwczesnego dojrzewania opisano uszkodzenia genu MKRN3 (ang. makorin ring finger 3), a jego badanie weszło do diagnostyki postaci rodzinnych i idiopatycznych [23]. Przedwczesne dojrzewanie wskutek utraty funkcji genu pokazuje, że przed pokwitaniem oś rozrodcza nie jest po prostu niedojrzała. Utrzymują ją w wyciszeniu mechanizmy gonadowe i pozagonadowe, których osłabienie uwalnia generator impulsów GnRH [3]. Dziewczęta z ośrodkowym przedwczesnym dojrzewaniem miały w porównaniu z dziewczętami z izolowanym przedwczesnym rozwojem piersi bardziej zaawansowany wiek kostny [24]. Przedwczesne impulsy GnRH przyspieszają więc nie tylko rozwój cech płciowych, lecz także dojrzewanie kośćca.
3.3. Rola gonadoliberyny w patogenezie chorób
W zespole policystycznych jajników GnRH jest ogniwem błędnego koła, choć chorobę rozpoznaje się po cechach jajnikowych. U chorych neurony GnRH słabiej poddają się hamowaniu przez hormony płciowe, co przyspiesza impulsy gonadotropin i napędza jajnikowe cechy choroby [18]. Szybsze impulsy GnRH sprzyjają wydzielaniu LH, a przewaga LH zaburza czynność jajników i wytwarzanie hormonów płciowych [15]. Osłabione sprzężenie zwrotne nie hamuje wówczas impulsów, więc zaburzenie samo się podtrzymuje [15]. W modelach zwierzęcych celem upośledzającego działania androgenów są neurony KNDy albo neurony GABA-ergiczne jądra łukowatego, a u kobiet ten mechanizm pozostaje hipotezą [18]. Na neurony GnRH w tym zespole wpływają także insulinooporność i otyłość [15].
Z siecią regulującą GnRH wiąże się też mechanizm uderzeń gorąca w okresie menopauzy. Sam spadek estrogenów nie tłumaczy w pełni tych objawów, a utrata kontroli termoregulacji współistnieje ze zmienioną sygnalizacją neuronów KNDy jądra łukowatego, której początek wyznacza menopauza [25]. W tym przypadku ogniwem choroby nie jest sam hormon, lecz neurony położone o piętro wyżej, które w wieku rozrodczym nadawały mu rytm.
W chorobach zależnych od hormonów płciowych, takich jak rak gruczołu krokowego, endometrioza i mięśniaki macicy, GnRH działa pośrednio. Jej impulsy podtrzymują wydzielanie steroidów gonadowych, które nasilają przebieg tych chorób [5]. Z tego powodu wyłączenie osi na poziomie receptora GnRH usuwa wpływ hormonów płciowych na chorą tkankę [5].
3.4. Punkt uchwytu leków
Receptor GnRH w przysadce jest punktem uchwytu trzech grup leków o odmiennym mechanizmie: samego hormonu podawanego impulsowo, agonistów i antagonistów. Hormon podawany impulsowo naśladuje wydzielanie fizjologiczne i przywraca czynność osi [5]. Długo działające agonisty podawane w postaci depot pobudzają receptor w sposób ciągły, co wywołuje paradoksalne odwrażliwienie przysadki i odwracalne wyłączenie osi rozrodczej [5]. Agonisty stosuje się w chorobach zależnych od hormonów płciowych oraz w ośrodkowym przedwczesnym dojrzewaniu płciowym, w którym są leczeniem z wyboru [5, 23]. Zanim nastąpi odwrażliwienie, agonista przez pewien czas pobudza receptor, dlatego na początku leczenia raka gruczołu krokowego stężenie testosteronu przejściowo rośnie [26].
Antagonisty blokują receptor GnRH bez fazy pobudzenia, więc obniżają wydzielanie gonadotropin od pierwszych dni leczenia [26]. W badaniu z randomizacją HERO u 930 mężczyzn z zaawansowanym rakiem gruczołu krokowego doustny antagonista relugoliks utrzymał kastracyjne stężenie testosteronu przez 48 tygodni u 96,7% chorych [26]. W grupie leczonej agonistą leuproreliną odsetek ten wyniósł 88,8% [26]. W czwartym dniu leczenia kastracyjne stężenie testosteronu miało 56,0% chorych otrzymujących relugoliks i żaden chory leczony leuproreliną [26]. Poważne incydenty sercowo-naczyniowe wystąpiły u 2,9% chorych w grupie relugoliksu i u 6,2% w grupie leuproreliny [26].
Na sieć regulującą GnRH działa też osobna klasa leków, antagoniści receptora neurokininy 3 (NK3R), czyli receptora neurokininy B w neuronach KNDy [13]. W badaniu z randomizacją SKYLIGHT 1 fezolinetant z tej klasy zmniejszał w porównaniu z placebo częstość i nasilenie objawów naczynioruchowych menopauzy w 4. i 12. tygodniu [27]. Ten sam układ może więc służyć do przywrócenia osi rozrodczej albo do jej wyłączenia, a o kierunku działania leku decyduje wzorzec ekspozycji receptora i poziom sieci, na który lek działa.

Na tej właściwości opiera się leczenie: pulsacyjne podanie przywraca czynność osi, ciągłe ją hamuje — w obu przypadkach inne skutki może wywoływać ten sam lek.
3.5. Czynniki wpływające na stan i czynność
Wydzielanie GnRH zależy od sygnałów, które informują podwzgórze o stanie organizmu: o zasobach energii, o obciążeniu stresem i o stężeniu hormonów płciowych. Niedobór energii związany z wyczerpującym wysiłkiem albo niską masą ciała wiąże się z niskim stężeniem leptyny, hormonu tkanki tłuszczowej, i może prowadzić do podwzgórzowego braku miesiączki [28]. W badaniu klinicznym u ośmiu kobiet z takim brakiem miesiączki rekombinowana leptyna zwiększała po dwóch tygodniach średnie stężenie LH i częstość jego impulsów [28]. U trzech z tych kobiet wystąpił cykl owulacyjny, a w grupie kontrolnej sześciu kobiet bez leczenia parametry osi się nie zmieniły [28]. Autorzy uznali, że leptyna, sygnał wystarczalności zapasów energii, jest potrzebna do prawidłowej czynności osi rozrodczej [28].
Stres hamuje oś rozrodczą na kilku poziomach jednocześnie. Glikokortykoidy, takie jak kortyzol, zmniejszają w podwzgórzu syntezę i uwalnianie GnRH, w przysadce hamują wydzielanie LH i FSH, a w gonadach modulują wytwarzanie steroidów [29]. Do czynników niemodyfikowalnych należą warianty genów neuronów GnRH i sieci KNDy oraz etap życia, który wyznacza, czy generator impulsów jest aktywny [3, 7]. Neurony GnRH wstrzymują więc impulsy, gdy organizmowi brakuje energii albo gdy przewlekle podwyższone są glikokortykoidy, a przywrócenie sygnału leptynowego może je ponownie uruchomić [28].
4. Na co warto zwrócić uwagę
Gonadoliberyna nie jest parametrem, który ocenia się w zwykłej próbce krwi żylnej. Bezpośredni pomiar impulsów GnRH wymaga pobierania krwi z naczyń wrotnych przysadki, co wykonuje się u zwierząt doświadczalnych, na przykład u owiec [30]. W takiej krwi impulsy LH następowały po impulsach GnRH średnio po 1,26 minuty, a stężenie LH w naczyniach wrotnych wielokrotnie przewyższało stężenie w żyle szyjnej [30]. U człowieka czynność neuronów GnRH ocenia się pośrednio, na podstawie częstości impulsów LH w seriach próbek krwi, jak w badaniu z leptyną [28]. Pojedyncze oznaczenie LH niewiele więc mówi o rytmie wydzielania GnRH.
Test z GnRH ocenia odpowiedź przysadki na podany hormon, a nie wydzielanie hormonu własnego. W diagnostyce ośrodkowego przedwczesnego dojrzewania płciowego standardem jest pomiar LH po dożylnym podaniu gonadoreliny, czyli syntetycznej GnRH [24]. U dziewcząt z tym rozpoznaniem szczyt LH występował 30–60 minut po podaniu gonadoreliny, a gdy lek jest niedostępny, stosuje się podskórny test z agonistą, tryptoreliną [24]. Wysoki wzrost LH świadczy o przysadce przygotowanej przez wcześniejsze impulsy GnRH, więc test pośrednio potwierdza wcześniejsze uruchomienie generatora impulsów.
Nazwa „agonista GnRH” bywa rozumiana jako określenie leku pobudzającego oś rozrodczą, co odpowiada tylko pierwszym dniom leczenia. Długotrwale podawany agonista wyłącza oś, a przejściowy wzrost testosteronu na początku leczenia jest śladem krótkiej fazy pobudzenia [5, 26]. O skutku decyduje zatem wzorzec ekspozycji receptora, a nie sama przynależność leku do agonistów.
Większość wiedzy o generatorze impulsów pochodzi z doświadczeń na myszach i owcach [13, 17, 30]. U człowieka jego znaczenie potwierdzają przede wszystkim następstwa mutacji genów receptora kispeptyny, neurokininy B i jej receptora [20, 21]. Dane o pozarozrodczych działaniach GnRH u ludzi są wstępne i pochodzą z jednej pracy klinicznej [16]. Diagnostyka i leczenie zaburzeń osi rozrodczej wymagają konsultacji lekarskiej, zwykle endokrynologicznej.