1. Charakterystyka białka
1.1. Definicja i klasyfikacja
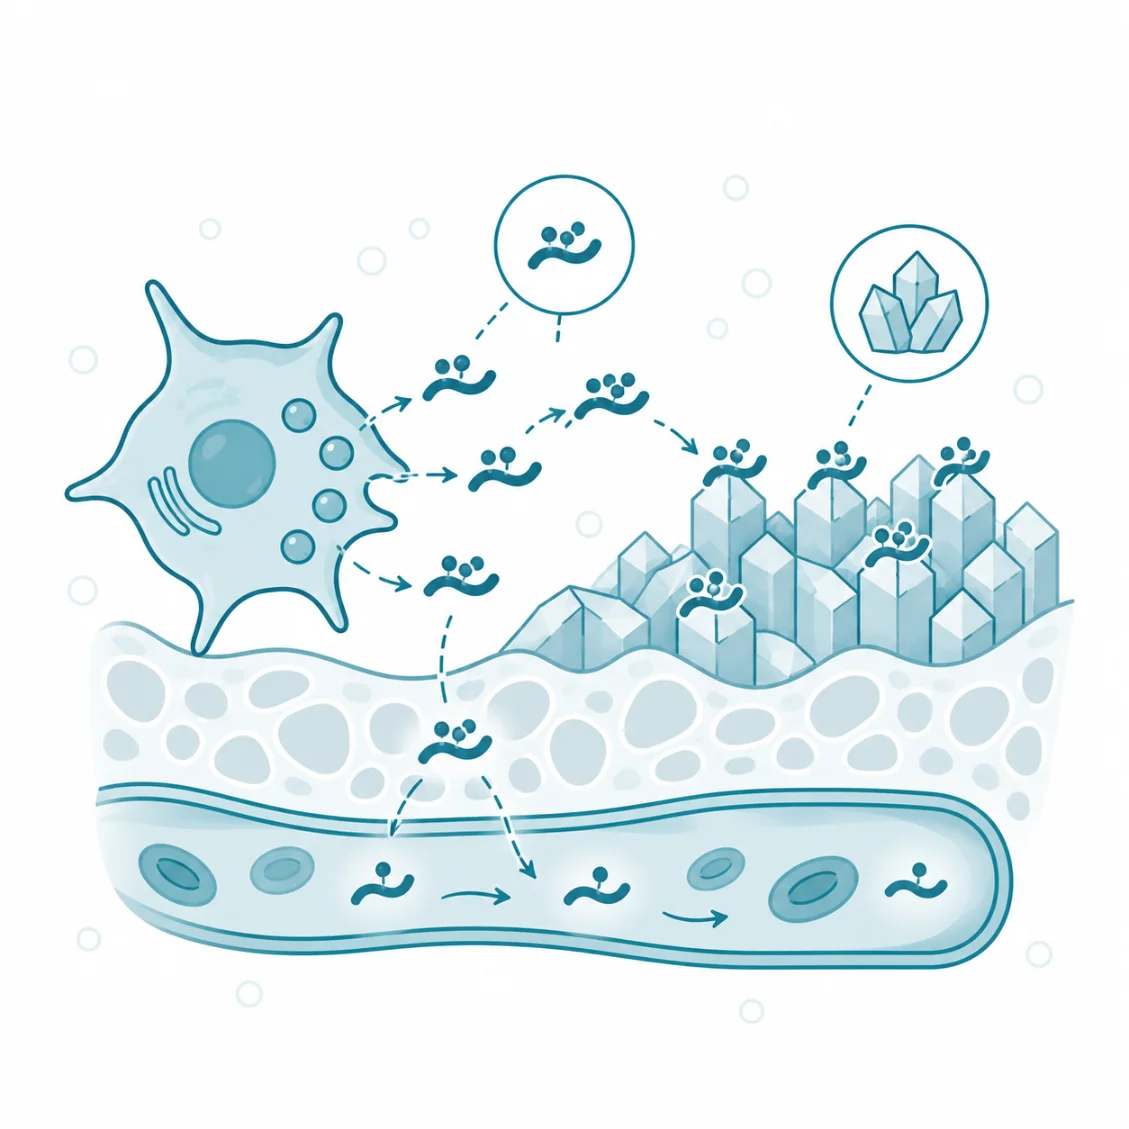
Osteokalcyna (ang. osteocalcin) to niekolagenowe białko macierzy kostnej należące do białek zależnych od witaminy K, wytwarzane przez osteoblasty [1, 2]. Wśród niekolagenowych białek kości występuje w największej ilości [3, 4]. Druga nazwa, białko Gla kości, pochodzi od trzech reszt kwasu γ-karboksyglutaminowego, w skrócie Gla, które wiążą jony wapnia [1, 5]. Od tej nazwy pochodzi symbol genu BGLAP [6]. Osteoblasty część osteokalcyny wbudowują w macierz kostną, a część oddają do krwi [5].
Reszty Gla osteokalcyny powstają w tej samej reakcji zależnej od witaminy K, która tworzy miejsca wiązania wapnia w protrombinie, czynniku krzepnięcia krwi [1, 7]. Mimo wspólnego mechanizmu modyfikacji osteokalcyna nie jest homologiczna z odcinkami Gla czynników krzepnięcia [1]. W klasyfikacji hormonów bywa opisywana jako hormon kości, jednak ten status pozostaje sporny. W modelach mysich zespołu Gérarda Karsenty’ego działała na trzustkę, jądra, mózg i mięśnie [8, 9]. W dwóch innych, niezależnie wytworzonych liniach myszy pozbawionych osteokalcyny takich działań nie stwierdzono [3, 4].
Osteokalcyna bywa mylona z kalcytoniną, choć różni je miejsce powstawania i rola. Kalcytonina jest hormonem peptydowym komórek C tarczycy, który hamuje osteoklasty, a osteokalcyna powstaje w kości i jest wbudowywana w jej macierz [5]. Osteokalcynę myli się też z innymi markerami tworzenia kości: kostną fosfatazą zasadową i N-końcowym propeptydem prokolagenu typu I, czyli P1NP, uwalnianym przy syntezie kolagenu [10, 11]. Kryterium różnicującym jest charakter cząsteczki: fosfataza jest enzymem, P1NP produktem ubocznym syntezy kolagenu, a osteokalcyna białkiem wiążącym minerał [12]. Z osteokalcyną bywa też mylone białko Gla macierzy, które również wymaga witaminy K, ale hamuje zwapnienie tkanek miękkich, na przykład ściany naczyń [13].
Pojęcie osteokalcyny obejmuje całą cząsteczkę, jej postacie różniące się liczbą reszt Gla oraz fragmenty krążące we krwi [5, 10]. Postać z kompletem trzech reszt Gla nazywa się karboksylowaną. Postać, w której części reszt brakuje, nazywa się niedokarboksylowaną i oznacza skrótem ucOC (ang. undercarboxylated osteocalcin) [5]. Rozróżnienie to jest osią sporu o funkcję osteokalcyny: hipoteza hormonalna zakłada, że czynnym hormonem jest właśnie ucOC [14, 15]. U ludzi odsetek ucOC w osteokalcynie całkowitej służy natomiast jako wskaźnik zaopatrzenia organizmu w witaminę K w badaniach naukowych [5].
Osteokalcyna ma zatem dwie odrębne role w piśmiennictwie. Jest markerem tworzenia kości oznaczanym we krwi od lat osiemdziesiątych dwudziestego wieku [10, 16]. Jest też głównym argumentem w sporze o to, czy szkielet działa jako narząd wydzielania wewnętrznego [8, 17].
1.2. Budowa i właściwości
Osteokalcyna jest małym białkiem, którego długość zależy od gatunku i wynosi od 47 do 50 aminokwasów [1]. Ludzka osteokalcyna jest łańcuchem 49 aminokwasów [2]. O jej działaniu decydują dwie cechy budowy: rozmieszczenie reszt Gla i kształt, który nadaje cząsteczce związany wapń. Od nich zależy, że tak małe białko przylega do minerału kości w określonym ułożeniu [12].
W osteokalcynie bydlęcej trzy reszty Gla zajmują pozycje 17, 21 i 24 [18]. Po związaniu jonów wapnia ten odcinek przyjmuje postać zwartej helisy, w której reszty Gla ustawiają się po jednej stronie [1, 18]. Odległości między nimi odpowiadają odległościom między jonami wapnia w krysztale hydroksyapatytu, czyli fosforanu wapnia tworzącego minerał kości [18]. Struktura krystaliczna osteokalcyny świńskiej pokazała ujemnie naładowaną powierzchnię, która wiąże pięć jonów wapnia w układzie dopasowanym do sieci hydroksyapatytu [12]. Osteokalcyna rozpoznaje więc powierzchnię kryształu przez przestrzenne dopasowanie swoich ładunków do jonów wapnia w jego sieci [12].
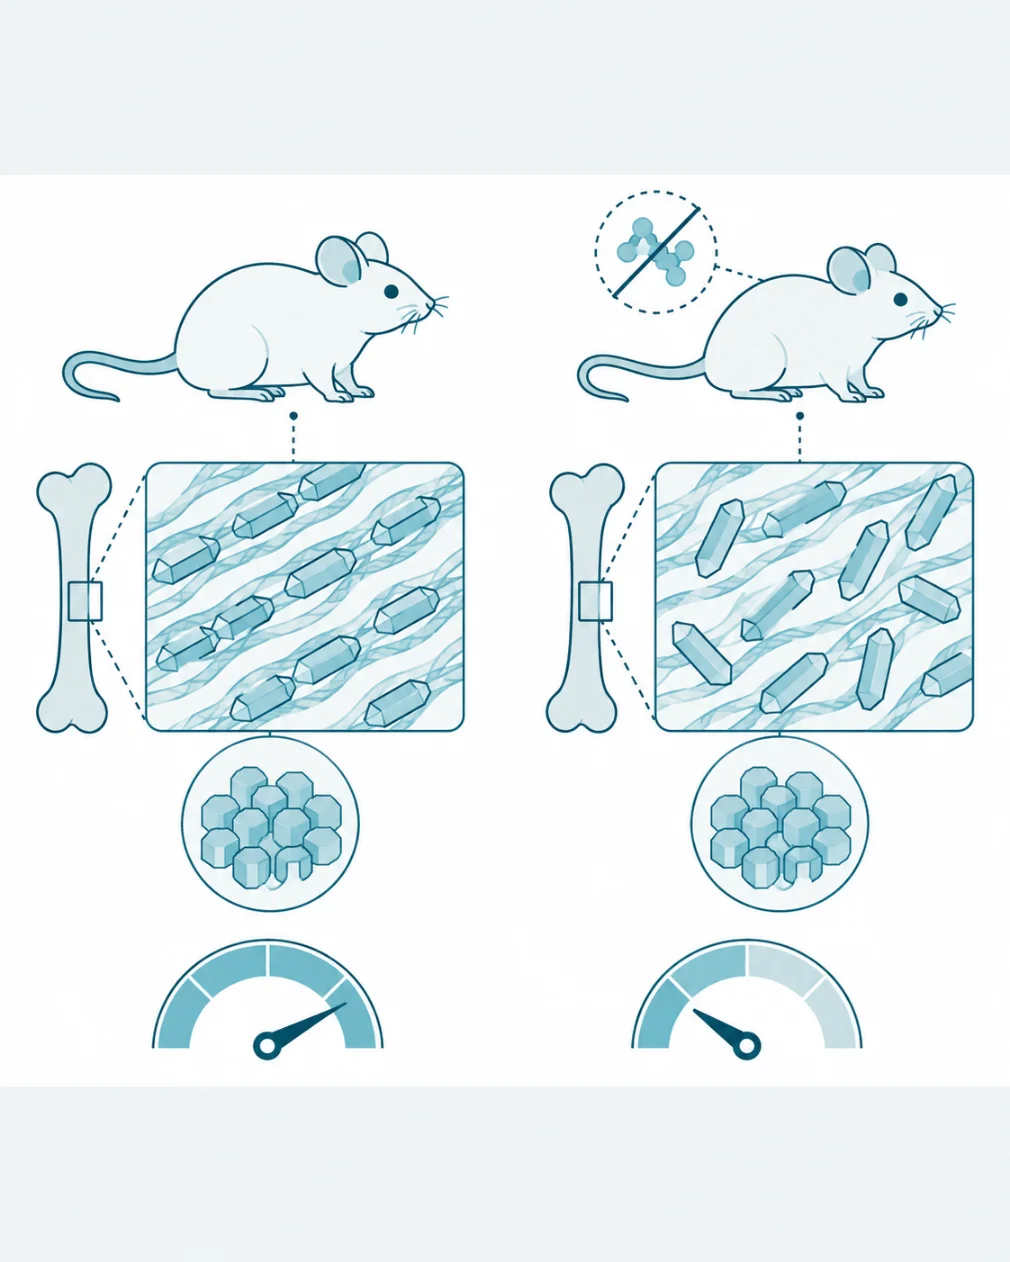
Reszty Gla nie są jednak warunkiem samego przylegania do minerału. Rekombinowana ludzka osteokalcyna wytworzona w bakteriach, a więc pozbawiona reszt Gla, wiązała hydroksyapatyt tak samo jak białko wyizolowane z kości [2]. Autorzy tej pracy wnioskowali, że reszty Gla odpowiadają za ukierunkowane wiązanie o dużym powinowactwie [2]. Ta obserwacja zgadza się z późniejszymi danymi, w których brak osteokalcyny u myszy zaburzał ułożenie kryształów, a nie ilość kości ani wielkość kryształów [3].
Budowa osteokalcyny różni się między gatunkami, a różnice te mają znaczenie dla przenoszenia wyników badań na człowieka. Mysz ma dwa geny osteokalcyny, Bglap i Bglap2, więc model pozbawiony białka wymaga usunięcia obu [3, 4]. Autorzy modelu szczurzego zwrócili uwagę, że różnice między osteokalcyną mysią i ludzką dotyczą zarówno genomu, jak i białka [6]. Otoczenie genu osteokalcyny u szczura jest bardziej podobne do ludzkiego niż u myszy [6]. Z tego powodu wyniki uzyskane wyłącznie u myszy nie przenoszą się na człowieka wprost.
1.3. Rys historyczny
Historia osteokalcyny to ciąg trzech rozstrzygnięć, z których każde zmieniało pogląd na jej funkcję. Do połowy lat siedemdziesiątych dwudziestego wieku kwas γ-karboksyglutaminowy znano z protrombiny, czynnika krzepnięcia, w którym powstaje z udziałem witaminy K w wątrobie [7]. W 1975 roku Hauschka, Lian i Gallop wykryli ten sam aminokwas bezpośrednio w tkance zmineralizowanej i rozpoznali w nim aminokwas wiążący wapń [7]. Rok później zespół Price’a oczyścił z kości kilku gatunków białko zawierające Gla i wykazał w białku bydlęcym trzy takie reszty [19].
Kierunek wpływu osteokalcyny na ilość kości rozstrzygnął w 1996 roku zespół Patricii Ducy i Gérarda Karsenty’ego. Myszy pozbawione osteokalcyny miały więcej kości o lepszej jakości mechanicznej, a tworzenie kości było u nich nasilone przy niezmienionej resorpcji [20]. Osteokalcynę uznano wtedy za czynnik ograniczający tworzenie kości [20]. W 2007 roku ten sam zespół opisał u myszy pozbawionych osteokalcyny nietolerancję glukozy i oporność na insulinę, co dało początek hipotezie hormonalnej [21]. W 2020 roku dwa zespoły spoza tej grupy wytworzyły nowe linie myszy bez osteokalcyny i nie potwierdziły ani większej masy kości, ani zaburzeń hormonalnych [3, 4]. Jedna z tych prac przypisała osteokalcynie rolę w ułożeniu kryształów minerału [3]. Tym samym wróciła, w zmienionej postaci, hipoteza z lat 70.: osteokalcyna jako białko porządkujące minerał, a nie hormon [17].
1.4. Synteza i źródła
Głównym źródłem osteokalcyny są osteoblasty, czyli komórki budujące kość [2]. Białko występuje też w zębinie, a więc w tkance zęba, która również ulega mineralizacji [1]. Synteza osteokalcyny składa się z czterech etapów: transkrypcji genu, obróbki białka prekursorowego, karboksylacji i wydzielenia. Każdy z tych etapów ma własny punkt kontroli, dlatego skład krążącej osteokalcyny zależy od stanu osteoblastu.
Transkrypcję genu osteokalcyny uruchamiają w osteoblaście dwa sygnały. Pierwszym jest czynnik transkrypcyjny Runx2, dawniej nazywany Osf2/Cbfa1, który wiąże się z OSE2, swoistym dla osteoblastów odcinkiem promotora, i steruje różnicowaniem tych komórek [22]. Drugim jest kalcytriol, czyli czynna postać witaminy D, który przez element odpowiedzi o długości 21 par zasad zwiększa transkrypcję ludzkiego genu [23]. Runx2 wyznacza więc, które komórki wytwarzają osteokalcynę, a kalcytriol wpływa na to, ile jej wytwarzają.
Po translacji osteokalcyna ma postać prekursora, czyli prohormonu z dodatkowym odcinkiem na początku łańcucha [24]. Odcinek ten odcina w osteoblaście furyna, enzym z rodziny konwertaz proprotein [24]. Niezależnie od tego γ-karboksylaza, w skrócie GGCX, przekształca trzy reszty kwasu glutaminowego w reszty Gla jeszcze przed wydzieleniem białka [15]. Reakcja wymaga zredukowanej witaminy K, którą odtwarza reduktaza epoksydu witaminy K, w skrócie VKORC1 [15]. Cięcie przez furynę przebiega niezależnie od karboksylacji [24]. Po wydzieleniu osteokalcyna trafia do macierzy kostnej albo do krwi [5].
Postać niedokarboksylowana może powstawać dwiema drogami. Pierwszą jest niepełna karboksylacja w osteoblaście, gdy brakuje witaminy K albo gdy jej odtwarzanie blokuje lek przeciwkrzepliwy z grupy antagonistów witaminy K, na przykład warfaryna [5, 13]. Drugą drogę opisuje hipoteza zespołu Mathieu Ferrona z 2010 roku. Osteoklasty rozpuszczają kość w kwaśnym środowisku, a kwaśne pH wystarcza do usunięcia grup karboksylowych z białek macierzy [14]. Według tej hipotezy osteokalcyna uwolniona z macierzy przy resorpcji przechodzi do krwi jako ucOC [14]. Dane na poparcie tej drogi pochodzą głównie z modeli mysich, choć autorzy przedstawili też obserwacje u ludzi [14].

2. Mechanizm działania i funkcje
2.1. Receptory i punkty uchwytu
Osteokalcyna ma dwa rodzaje punktów uchwytu, różniące się pewnością danych. Pierwszym jest minerał kości, czyli hydroksyapatyt, z którym osteokalcyna wiąże się bez udziału receptora [12]. Drugim są receptory na powierzchni komórek poza kością, opisane w modelach zwierzęcych i w hodowlach komórek. Karsenty w przeglądzie z 2023 roku wymienia trzy takie receptory [9]. Dwa z nich, GPRC6A i GPR158, mają dokładniej opisaną sygnalizację [25, 26].
GPRC6A to receptor metabotropowy, czyli działający przez białko G, który rozpoznaje kilka ligandów naraz. Poza osteokalcyną pobudzają go testosteron, aminokwasy zasadowe i kationy dwuwartościowe [27]. Ludzkie zarodkowe komórki nerki HEK-293 nabywały odpowiedzi na osteokalcynę dopiero po wprowadzeniu genu GPRC6A [28]. Odpowiedź polegała na fosforylacji kinazy białkowej D1 (PKD1) i kinazy regulowanej sygnałem zewnątrzkomórkowym (ERK), czyli enzymów przenoszących sygnał do wnętrza komórki [28]. U myszy pozbawionych GPRC6A wstrzyknięta osteokalcyna znacznie słabiej pobudzała wydzielanie insuliny niż u myszy prawidłowych [28]. W komórkach Leydiga jąder osteokalcyna działała przez ten sam receptor i czynnik transkrypcyjny CREB, czyli białko wiążące element odpowiedzi na cAMP, zwiększając ekspresję enzymów syntezy testosteronu [25, 29].
GPR158 to receptor sprzężony z białkiem G, obecny w neuronach pola CA3 hipokampu [26]. U myszy przekazywał on wpływ osteokalcyny na pamięć zależną od hipokampu [26]. Sygnał biegł częściowo przez trifosforan inozytolu, przekaźnik wtórny uwalniający wapń z magazynów komórki, oraz przez czynnik neurotroficzny pochodzenia mózgowego, w skrócie BDNF [26]. BDNF jest białkiem, które podtrzymuje przeżycie neuronów i plastyczność synaps.
Rola GPRC6A jako receptora osteokalcyny jest sporna. Zespół, który opisał ten receptor, przyznaje, że nowo wytworzone myszy pozbawione osteokalcyny albo GPRC6A nie mają zaburzeń metabolicznych [30]. Autorzy tłumaczą rozbieżności różnicami szczepów myszy i warunków środowiska, ale nie rozstrzygają sporu [30]. U człowieka pojawił się w toku ewolucji wariant GPRC6A, który według autorów przeglądu może zmieniać transport receptora do błony komórkowej [27]. Wariant pierwotny, obecny u innych gatunków, zachowało około 1% Azjatów, 15% Europejczyków i 40% osób pochodzenia afrykańskiego [27]. Wyniki badań nad czynnością ludzkiego wariantu są niespójne, a rola GPRC6A u człowieka pozostaje niejasna [27, 30]. Sygnalizację osteokalcyny przez receptory opisano więc głównie w hodowlach komórek i u myszy, a jej znaczenie u ludzi nie zostało potwierdzone [27].
2.2. Funkcje osteokalcyny
2.2.1. Mineralizacja macierzy kostnej
W kości osteokalcyna wpływa na to, jak ułożone są kryształy minerału względem włókien kolagenu. W prawidłowej kości oś długa kryształów apatytu biegnie równolegle do włókien kolagenowych [3]. U myszy pozbawionych osteokalcyny to ułożenie było silnie zaburzone, choć orientacja włókien kolagenu i wielkość kryształów pozostały prawidłowe [3]. Kość tych myszy była słabsza mechanicznie, mimo że jej ilość się nie zmieniła [3]. W innej pracy myszy pozbawione osteokalcyny, osteopontyny albo obu tych białek miały zmienioną wielkość i organizację kryształów [31]. Osteokalcyna silniej niż osteopontyna wpływała tam na cechy fizyczne minerału [31].
Wyniki dotyczące ilości i wytrzymałości kości nie są jednak zgodne. W modelu Ducy z 1996 roku brak osteokalcyny zwiększał masę kości, a w modelu szczurzym z 2016 roku zwiększał objętość kości beleczkowej, bez zmiany kości korowej [6, 20]. W obu modelach kość była bardziej wytrzymała mechanicznie [6, 20]. W linii Diegela z 2020 roku masa i wytrzymałość kości nie różniły się od kontroli, a zmieniła się dojrzałość kolagenu i stosunek węglanu do fosforanu w minerale [4]. Prace te zgadzają się więc co do udziału osteokalcyny w jakości minerału, a różnią się co do jej wpływu na ilość tkanki kostnej.
2.2.2. Przemiany glukozy
Hipoteza hormonalna zakłada, że osteokalcyna niedokarboksylowana zwiększa wydzielanie i działanie insuliny. Myszy pozbawione osteokalcyny w pracy Lee z 2007 roku miały mniej namnażających się komórek beta trzustki, nietolerancję glukozy i oporność na insulinę [21]. Ex vivo osteokalcyna zwiększała w komórkach beta ekspresję cykliny D1, białka napędzającego podział komórki, oraz samej insuliny [21]. W komórkach tłuszczowych zwiększała ekspresję adiponektyny, hormonu poprawiającego wrażliwość na insulinę [21]. Kolejne prace tego zespołu wskazały, że czynna jest postać niekarboksylowana, a karboksylacja przez GGCX hamuje działanie hormonalne [15]. Myszy bez furyny w osteoblastach miały mniej ucOC we krwi i gorszą tolerancję glukozy [24].
W dwóch niezależnych liniach myszy pozbawionych osteokalcyny przemiany glukozy były prawidłowe [3, 4]. U szczurów bez osteokalcyny obserwowano różnice w regulacji glukozy, przy niezmienionej masie i składzie ciała [6]. U ludzi dane są pośrednie. W badaniu 348 starszych osób bez cukrzycy stężenie ucOC nie wiązało się z opornością na insulinę, a związek dotyczył osteokalcyny całkowitej i karboksylowanej [32]. Z hipotezy wynika, że witamina K, która obniża ucOC, pogarszałaby wrażliwość na insulinę [5]. Tymczasem w 36-miesięcznym badaniu z randomizacją u 355 starszych osób wskaźnik oporności na insulinę był po witaminie K niższy u mężczyzn, a u kobiet nie różnił się od kontroli [33]. Ograniczone dane u ludzi nie potwierdzają więc przewidywań wyprowadzonych z modeli mysich [5].
2.2.3. Układ rozrodczy mężczyzn
W 2011 roku zespół Karsenty’ego opisał osteokalcynę jako regulator czynności endokrynnej jąder u samców myszy. W hodowlach mieszanych osteoblasty pobudzały wytwarzanie testosteronu przez jądra, ale nie wpływały na wytwarzanie estrogenów przez jajniki [25]. Osteokalcyna działała na komórki Leydiga przez receptor sprzężony z białkiem G i sprzyjała przeżyciu komórek płciowych [25]. W kolejnej pracy ten sam zespół ustalił, że osteokalcyna i hormon luteinizujący działają na komórki Leydiga dwiema równoległymi drogami [29]. Wśród mężczyzn z pierwotną niewydolnością jąder autorzy znaleźli dwóch nosicieli tego samego wariantu GPRC6A, który nie docierał do błony komórkowej [29].
Niezależne dane nie potwierdzają jednak tej funkcji. W linii myszy Moriishiego synteza testosteronu była prawidłowa, a w linii Diegela płodność samców nie różniła się od kontroli [3, 4]. W badaniu 2966 mężczyzn w wieku 70–89 lat stężenie testosteronu nie wiązało się z markerami obrotu kostnego, w tym z ucOC [34]. Autorzy tego badania nie znaleźli dowodów, że ucOC wpływa na krążący testosteron u starszych mężczyzn [34]. Dwa przypadki nosicielstwa wariantu receptora nie wystarczają do ustalenia, czy oś kość–jądra działa u człowieka.
2.2.4. Czynność mózgu
W modelach mysich osteokalcyna działała także na mózg, zarówno w okresie płodowym, jak i u dorosłych zwierząt. Według pracy z 2013 roku przechodziła przez barierę krew-mózg i wiązała się z neuronami pnia mózgu, śródmózgowia i hipokampu [35]. Zwiększała tam syntezę neuroprzekaźników monoaminowych i hamowała syntezę kwasu γ-aminomasłowego (GABA), głównego przekaźnika hamującego [35]. Myszy pozbawione osteokalcyny wykazywały zachowania lękowe i depresyjne oraz gorzej się uczyły [35]. Osteokalcyna matki przechodziła przez łożysko i chroniła neurony płodu przed apoptozą, zanim płód zaczynał wytwarzać własną [35]. U myszy w wieku 16 miesięcy osteokalcyna podawana obwodowo poprawiała pamięć i zmniejszała zachowania lękowe [26].
Wyniki dotyczące mózgu pochodzą z prac jednego zespołu i jego współpracowników [26, 35]. U ludzi dostępne są pojedyncze badania przekrojowe. W badaniu 44 osób, w tym 24 z otyłością, niższe stężenie osteokalcyny wiązało się ze zmianami mikrostruktury mózgu w rezonansie magnetycznym i gorszym wynikiem jednego testu neuropsychologicznego [36]. Badanie tej wielkości i tego rodzaju nie pozwala odróżnić przyczyny od współwystępowania, na przykład z otyłością.
2.2.5. Adaptacja mięśni do wysiłku
Mięśnie szkieletowe to kolejny narząd, na który według hipotezy hormonalnej działa osteokalcyna. W pracy Mery z 2016 roku stężenie niedokarboksylowanej osteokalcyny we krwi podwajało się podczas wysiłku tlenowego, gdy stężenie insuliny spadało [37]. Sygnalizacja osteokalcyny we włóknach mięśniowych sprzyjała wychwytowi i spalaniu glukozy oraz kwasów tłuszczowych [37]. Odpowiadała też za większą część uwalnianej przy wysiłku interleukiny 6, czyli cytokiny wydzielanej przez mięśnie [37]. Interleukina 6 zwrotnie sprzyjała powstawaniu czynnej osteokalcyny, co tworzy sprzężenie między kością a mięśniem [37]. Podawanie osteokalcyny przywracało myszom w wieku 15 miesięcy wydolność wysiłkową myszy 3-miesięcznych [37].
Według tej samej pracy stężenie osteokalcyny spada wcześnie w dorosłości u myszy, małp i ludzi obu płci [37]. W linii myszy Moriishiego brak osteokalcyny nie zmieniał masy mięśni [3]. Masa mięśni nie jest jednak tym samym co adaptacja do wysiłku, więc ta obserwacja nie obala wyników dotyczących wydolności. Metaanaliza badań z randomizacją u ludzi oceniała wpływ treningu na ucOC i wskaźniki metaboliczne, a nie na pracę mięśni [38].
2.3. Regulacja wydzielania i zmienność dobowa
Stężenie osteokalcyny we krwi zmienia się w ciągu doby, po posiłku i pod wpływem hormonów działających na osteoblasty. W badaniu z 1985 roku u 10 młodych dorosłych rytm dobowy wystąpił u 9 osób [39]. Stężenie spadało rano, rosło po południu i wieczorem, a szczyt osiągało w nocy [39]. W grupie placebo innego badania wzrost zaczynał się około 22.30, szczyt przypadał około 2.30, a najniższe wartości około 15.00 [40]. U 37 zdrowych osób w wieku 52–76 lat stężenie osteokalcyny było w nocy wyższe niż w dzień u obu płci [41]. W małym badaniu 10 Masajów osteokalcyna nie miała jednak wyraźnego wzorca dobowego, choć inne markery obrotu kostnego go miały [42].
Glikokortykosteroidy obniżają stężenie osteokalcyny szybko i silnie. U 15 zdrowych osób pojedyncza doustna dawka prednizonu podana wieczorem hamowała, a nawet odwracała nocny wzrost osteokalcyny w ciągu 3–4 godzin [40]. Największy spadek wynosił około 52–54% i nie zależał od wielkości dawki, a zależał od niej czas trwania zahamowania [40]. Autorzy traktowali ten spadek jako odbicie zahamowania czynności osteoblastów przez glikokortykosteroidy [40].
Posiłek również obniża stężenie osteokalcyny. U 27 dorosłych z nadwagą lub otyłością osteokalcyna całkowita spadła o 10%, a ucOC o 6% w ciągu 3 godzin po śniadaniu [43]. W modelach mysich insulina działająca na osteoblasty zwiększała resorpcję kości i w ten sposób ilość niekarboksylowanej osteokalcyny [14]. Przegląd z 2012 roku ocenił dostępne dane ludzkie jako niewystarczające do potwierdzenia tej zależności [5]. Pora pobrania krwi i czas od posiłku są zatem źródłem zmienności wyniku u tej samej osoby.
2.4. Inaktywacja i wydalanie osteokalcyny
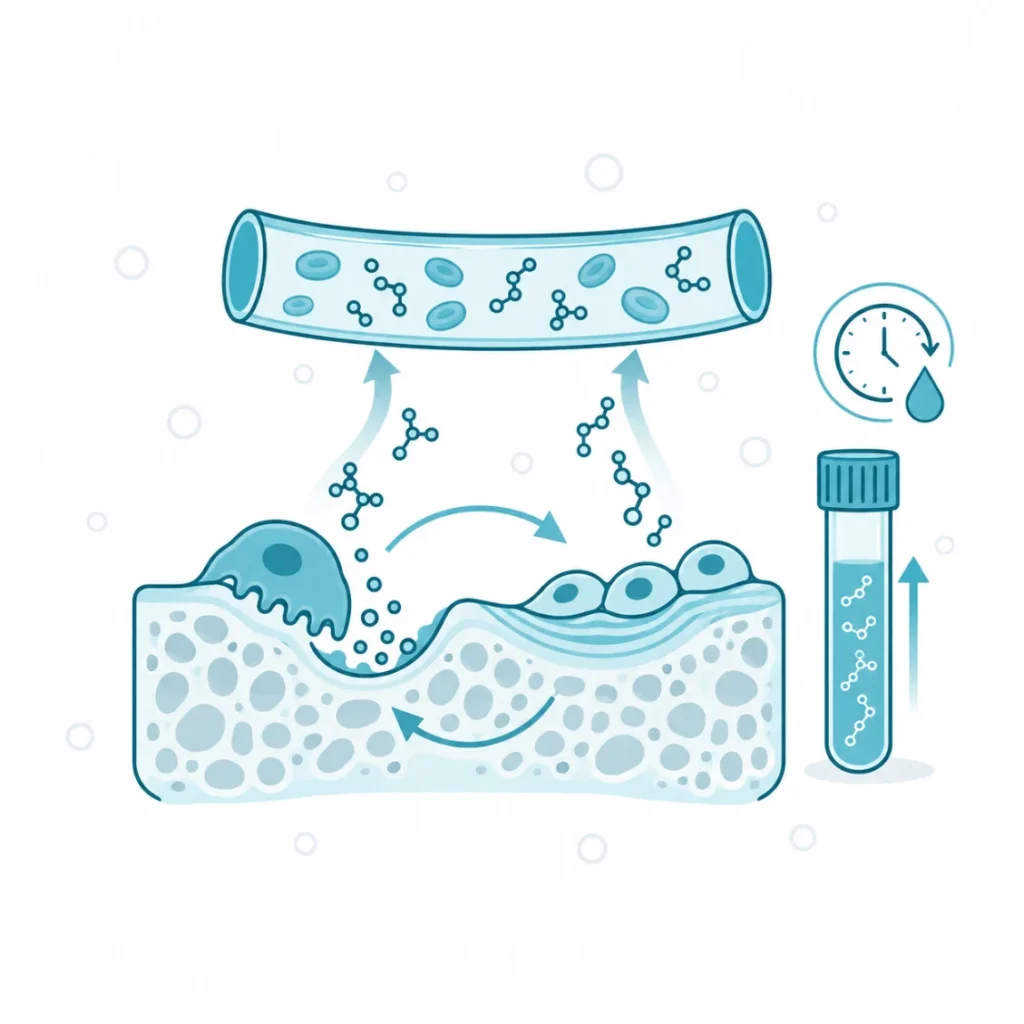
Osteokalcyna krąży we krwi zarówno jako cała cząsteczka, jak i jako fragmenty powstałe z jej rozpadu. Najczulsze testy do oznaczania osteokalcyny wykrywają zarówno całą cząsteczkę, jak i jej główny fragment proteolityczny [10]. Fragmenty trafiają też do moczu, gdzie można oznaczyć środkowe odcinki osteokalcyny [44]. U 19 chorych na osteoporozę ich stężenie w moczu spadało już po pierwszym miesiącu leczenia risedronianem, podobnie jak marker resorpcji, podczas gdy osteokalcyna w surowicy spadała dopiero po trzech miesiącach [44]. Autorzy wnioskowali, że fragmenty w moczu pochodzą w większym stopniu z rozkładu macierzy przy resorpcji niż z wydzielania osteoblastów [44].
W usuwaniu osteokalcyny z krwi uczestniczą nerki [45]. Przy przewlekłej niewydolności nerek osteokalcyna zatrzymuje się w organizmie i gromadzi w surowicy [45]. Mimo tego gromadzenia autorzy przeglądu uznali ją u chorych z niewydolnością nerek za dobry marker obrotu kostnego [45]. Stężenie osteokalcyny zależy więc nie tylko od tempa jej wytwarzania, lecz także od sprawności nerek, które ją usuwają.

3. Zaburzenia i modyfikacja
3.1. Zaburzenia stężenia i dostępności
Zmiany stężenia osteokalcyny we krwi odzwierciedlają przede wszystkim zmianę tempa przebudowy kości [10, 46]. Stężenie rośnie, gdy osteoblasty pracują intensywniej, i spada, gdy ich czynność jest zahamowana [10]. Przesunięcie proporcji między postacią karboksylowaną i niedokarboksylowaną wynika natomiast z tego, ile witaminy K mają do dyspozycji osteoblasty [5].
Wysokie stężenie osteokalcyny występuje w chorobach z szybkim obrotem kostnym. W badaniu z 1984 roku chorzy bez chorób kości mieli średnie stężenie 5,2 ng/ml, czyli wartość odniesienia dla pozostałych grup [16]. Średnie stężenie wynoszące 22,0 ng/ml stwierdzono w pierwotnej nadczynności przytarczyc, a 22,7 ng/ml w chorobie Pageta [16]. We wtórnej nadczynności przytarczyc średnia sięgała 51,6 ng/ml, a więc była prawie dziesięciokrotnie wyższa niż u chorych bez chorób kości [16]. Stężenie było podwyższone także u chorych z nieleczonymi przerzutami do kości i po świeżym złamaniu biodra [16]. Wyższe markery obrotu kostnego stwierdza się również w jawnej nadczynności tarczycy i w akromegalii [46].
Niskie stężenie osteokalcyny towarzyszy stanom, w których czynność osteoblastów jest zahamowana. Zespół Cushinga, czyli nadmiar kortyzolu, cechuje się stale i wyraźnie obniżonym stężeniem osteokalcyny, choć dane o innych markerach są w nim niespójne [46]. W niedoczynności przytarczyc markery obrotu kostnego są nieco obniżone [46]. W niedoczynności tarczycy cały metabolizm kości zwalnia, co odzwierciedlają niższe markery obrotu [46].
Odrębnym zaburzeniem jest przesunięcie proporcji na korzyść postaci niedokarboksylowanej. Dochodzi do niego przy niedoborze witaminy K albo przy leczeniu antagonistami witaminy K, na przykład warfaryną [5, 13]. W badaniu bez grupy kontrolnej u 21 chorych z migotaniem przedsionków stężenie ucOC spadło z 9,5 do 2,7 ng/ml w ciągu 6 miesięcy po zamianie warfaryny na rywaroksaban, lek przeciwkrzepliwy o innym mechanizmie działania niż warfaryna [13].
3.2. Rola osteokalcyny w patogenezie chorób
U ludzi osteokalcyna jest hipotetycznym ogniwem w patogenezie cukrzycy typu 2, a w osteoporozie markerem przebudowy kości. W obu przypadkach dane pochodzą głównie z badań obserwacyjnych, które opisują współwystępowanie, a nie kierunek zależności. Hipoteza hormonalna przewiduje, że mniej osteokalcyny oznacza gorszą regulację glukozy [21]. Badania u ludzi sprawdzały więc, czy niskie stężenie osteokalcyny towarzyszy cukrzycy i czy ją poprzedza.
W metaanalizie 39 badań obejmujących 23 381 osób osteokalcyna całkowita i ucOC wiązały się odwrotnie ze stężeniem glukozy na czczo i z hemoglobiną glikowaną [47]. Współczynniki korelacji wynosiły około −0,16, a więc zależność była słaba [47]. Związek ucOC z glukozą na czczo był silniejszy u mężczyzn niż u kobiet [47]. W metaanalizie 52 badań z udziałem 46 998 osób stężenie osteokalcyny było niższe u chorych na cukrzycę typu 2 niż bez niej [48]. W badaniach przekrojowych skrajne ćwiartki osteokalcyny różniły się ryzykiem cukrzycy wyraźnie, z łącznym oszacowaniem 0,23 [48]. W badaniach kohortowych, które śledzą osoby przed zachorowaniem, oszacowanie wyniosło 0,89 i nie osiągnęło istotności statystycznej [48].
Związek z cukrzycą nie jest swoisty dla osteokalcyny. U 2966 mężczyzn w wieku 70–89 lat mniejsze ryzyko cukrzycy wiązało się z wyższym ucOC, ale także z wyższą osteokalcyną całkowitą, P1NP i C-końcowym telopeptydem kolagenu typu I (CTX), czyli markerem resorpcji [34]. Po łącznym uwzględnieniu wszystkich markerów ucOC pozostała związana z mniejszym ryzykiem cukrzycy, natomiast odsetek ucOC w osteokalcynie całkowitej nie [34]. W metaanalizie badań obserwacyjnych wyższa osteokalcyna i ucOC wiązały się też z mniejszym wskaźnikiem masy ciała i mniejszym udziałem tkanki tłuszczowej [49]. Masa ciała może więc współtworzyć związek między osteokalcyną a cukrzycą. Obserwacje te pasują zarówno do hipotezy hormonalnej, jak i do prostszego wyjaśnienia, że szybszy obrót kostny współwystępuje z lepszym stanem metabolicznym [5, 34].
W osteoporozie osteokalcyna jest jednym z markerów tempa przebudowy kości, stosowanych do oceny ryzyka złamań i odpowiedzi na leczenie [10, 11]. Badania obserwacyjne z odsetkiem ucOC doprowadziły do wniosku, że niedobór witaminy K sprzyja utracie kości z wiekiem [5]. Badania kliniczne nie potwierdziły jednak, że podawanie witaminy K w populacji ogólnej zmniejsza utratę kości albo ryzyko złamań [5]. W trzyletnim badaniu z randomizacją u 142 kobiet z osteopenią witamina K2 obniżyła ucOC po roku o około 65%, ale w ciągu trzech lat nie zmieniła gęstości mineralnej kości ani markerów obrotu [50]. Poprawa karboksylacji osteokalcyny nie przekłada się więc w tych badaniach na lepszą masę kości.
3.3. Modyfikacja behawioralna i dietetyczna
Wysiłek fizyczny jest najlepiej zbadanym czynnikiem behawioralnym, który zmienia stężenie osteokalcyny u ludzi. W metaanalizie 22 badań z randomizacją trening fizyczny zwiększał stężenie ucOC średnio o 0,15 ng/ml w porównaniu z grupami kontrolnymi [38]. Po wyłączeniu badań łączących trening z dietą wzrosła także osteokalcyna całkowita, średnio o 0,36 ng/ml w stosunku do kontroli [38]. Równocześnie malały insulina na czczo i wskaźnik oporności na insulinę, a rosła adiponektyna [38]. Autorzy uznali, że wzrost ucOC wynika raczej ze zmian leptyny i innych czynników niż z bezpośredniego pobudzenia osteoblastów [38].
Pojedynczy wysiłek też zmienia stężenie osteokalcyny, ale jego wpływ zależy od rodzaju wysiłku. U dorosłych z nadwagą lub otyłością ciągły wysiłek o umiarkowanej intensywności, wykonany godzinę po śniadaniu, osłabiał poposiłkowy spadek osteokalcyny całkowitej i ucOC [43]. Krótki wysiłek interwałowy o wysokiej intensywności nie zmieniał tych wartości [43]. Zmiany te są jednak małe na tle różnic między chorobami kości, w których średnie stężenia różnią się kilkukrotnie [16].
Czynnikiem dietetycznym o udokumentowanym wpływie jest witamina K, od której zależy stopień karboksylacji osteokalcyny [5]. Wzrost ucOC może więc wynikać z wysiłku albo z niedoboru witaminy K w diecie, a rozróżnia je dopiero odniesienie ucOC do osteokalcyny całkowitej [5].
3.4. Wsparcie suplementacyjne
Substancje stosowane jako suplementy działają na osteokalcynę na dwa sposoby. Jedne zmieniają stopień jej karboksylacji, inne zmieniają tempo przebudowy kości, a z nim ilość osteokalcyny wydzielanej przez osteoblasty. Najlepiej udokumentowana jest witamina K, kofaktor γ-karboksylacji. W metaanalizie 16 badań z randomizacją z udziałem 6425 kobiet po menopauzie witamina K2 obniżała ucOC i stosunek ucOC do postaci karboksylowanej [51]. W metaanalizie 10 badań witamina K podawana z wapniem również obniżała ucOC [52]. W metaanalizie 9 badań u kobiet z osteoporozą pomenopauzalną witamina K2 obniżała ucOC i podnosiła osteokalcynę całkowitą [53].
Wyniki dla witaminy D są niespójne, mimo że kalcytriol zwiększa transkrypcję genu osteokalcyny w osteoblastach [23]. W metaanalizie badań u kobiet suplementacja witaminy D obniżała osteokalcynę, przy dużej niejednorodności wyników [54]. W metaanalizie 42 badań z randomizacją u dorosłych nie zmieniała jej stężenia [55]. Wapń spowalniał przebudowę kości: w dwuletnim badaniu z randomizacją u 300 kobiet po menopauzie osteokalcyna i CTX spadły po 12 miesiącach bardziej w grupie z wapniem niż w grupie kontrolnej [56]. Spadek osteokalcyny oznacza tu wolniejszy obrót kostny, a nie niedobór hormonu.
Genisteina, izoflawon soi, działała w przeciwnym kierunku. U 90 kobiet wcześnie po menopauzie osteokalcyna wzrosła po genisteinie o 29% po 6 miesiącach i o 37% po 12 miesiącach [57]. W metaanalizie badań z mieszaninami izoflawonów soi wzrost osteokalcyny o 10,3% nie był istotny statystycznie [58]. Magnez, kofaktor aktywacji witaminy D, podawany z nią przez 12 tygodni nie zmienił osteokalcyny całkowitej u 78 osób z nadwagą lub otyłością [59]. Cynk podawany przez 4 tygodnie dziewczętom przed pierwszą miesiączką zwiększył P1NP, ale nie zmienił osteokalcyny [60]. Substancje te różnią się kierunkiem wpływu i siłą dowodu, a strzałka odnosi się do stężenia osteokalcyny albo stopnia jej karboksylacji.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Witamina K | kofaktor γ-karboksylacji osteokalcyny | ↓ ucOC, ↑ stopień karboksylacji | A |
| Cholekalcyferol | prekursor kalcytriolu, który pobudza transkrypcję genu | ~ (metaanalizy sprzeczne) | A |
| Wapń | spowolnienie przebudowy kości | ↓ osteokalcyna całkowita | B |
| Genisteina | fitoestrogen, izoflawon soi | ↑ osteokalcyna całkowita (pojedyncze badanie), ~ w metaanalizie izoflawonów | B |
| Magnez | kofaktor przemian witaminy D (podawany z witaminą D) | ~ | B |
| Cynk | pierwiastek niezbędny do wzrostu | ~ | B |
Dowody najwyższej jakości, z metaanaliz badań z randomizacją, dotyczą witaminy K i stopnia karboksylacji osteokalcyny [51, 53]. Dla pozostałych substancji dane pochodzą z pojedynczych badań z randomizacją albo z niespójnych metaanaliz, a zmiana osteokalcyny odzwierciedla w nich tempo przebudowy kości.
4. Uwagi praktyczne
4.1. Jak to zbadać
Osteokalcynę oznacza się we krwi, w surowicy albo w osoczu, metodami immunochemicznymi [10, 61]. Najczulsze testy wykrywają cząsteczkę całą razem z jej głównym fragmentem [10]. Istnieją też testy mierzące wyłącznie osteokalcynę całą oraz testy fragmentu N-końcowo-środkowego, oznaczanego skrótem N-MID, czyli odcinka od końca aminowego po środek łańcucha [62]. Wynik podaje się najczęściej w nanogramach na mililitr, jak w badaniach klinicznych chorób kości [16]. Zakresy referencyjne zależą od metody, a wyniki różnych testów nie są w pełni porównywalne, bo markery obrotu kostnego nie mają dostatecznej standaryzacji [11]. Dla testu IDS-iSYS N-MID w populacji referencyjnej z północno-wschodnich Niemiec mediana stężenia wyniosła 15,4 ng/ml, czyli 15,4 µg/l, u 1107 mężczyzn i 14,4 ng/ml u 545 kobiet przed menopauzą, a zakres referencyjny kobiet po menopauzie objął 8,0–40,9 ng/ml [64].
Osteokalcyna jest nietrwała poza organizmem. W badaniu stabilności jej stężenie wyraźnie spadało po 24 godzinach przechowywania próbki w temperaturze pokojowej, niezależnie od rodzaju probówki [61]. Autorzy tego badania wskazali analizę w ciągu 3 godzin od pobrania albo zamrożenie próbki [61]. P1NP i kostna fosfataza zasadowa pozostawały w tych samych warunkach stabilne przez 72 godziny [61]. Na wynik wpływa też pora pobrania, a autorzy pierwszego opisu rytmu dobowego osteokalcyny podkreślili znaczenie jej ujednolicenia w badaniach klinicznych [39]. U chorych z niewydolnością nerek wynik odzwierciedla ponadto gromadzenie się osteokalcyny w surowicy [45].
W leczeniu osteoporozy osteokalcyna spada pod wpływem leków hamujących resorpcję, co odzwierciedla zwolnienie całego obrotu kostnego. U 56 kobiet po menopauzie leczonych przez rok alendronianem stężenie osteokalcyny spadło o 29,7% [63]. U kobiet wcześnie po menopauzie hormonalna terapia zastępcza obniżała osteokalcynę o 20–22% w ciągu roku [57]. Międzynarodowa Fundacja Osteoporozy i Międzynarodowa Federacja Chemii Klinicznej wybrały jako markery referencyjne P1NP i CTX, a nie osteokalcynę [11].
Niedokarboksylowaną osteokalcynę oznacza się głównie w badaniach naukowych, na przykład metodą opartą na wiązaniu z hydroksyapatytem [34]. Samo stężenie ucOC zależy zarówno od witaminy K, jak i od aktywności osteoblastów [5]. Wskaźnikiem zaopatrzenia w witaminę K jest dlatego odsetek ucOC w osteokalcynie całkowitej [5]. Pomiar osteokalcyny informuje o tempie obrotu kostnego, a pojedynczy wynik interpretuje się w odniesieniu do pory pobrania, czynności nerek i stosowanych leków [10, 46].
4.2. Na co warto zwrócić uwagę
Często powtarzane przekonanie mówi, że osteokalcyna jest hormonem, który u ludzi reguluje stężenie glukozy i wytwarzanie testosteronu. Stan wiedzy nie pozwala tego przyjąć. Działania hormonalne wykazano u myszy, głównie w pracach jednego zespołu, który w przeglądzie z 2023 roku podtrzymuje je dla gryzoni i naczelnych [9]. Dwie linie myszy wytworzone niezależnie od tego zespołu nie miały zaburzeń glukozy, testosteronu ani płodności [3, 4]. Autorzy jednej z nich przyznali, że nie potrafią wyjaśnić rozbieżności, i udostępnili swoją linię innym badaczom [4]. Komentarz do obu prac podsumował ich wynik tezą, że osteokalcyna sprzyja mineralizacji, ale nie jest hormonem [17].
U ludzi przemawiają za hipotezą słabe korelacje i dwa przypadki wariantu receptora u mężczyzn z niewydolnością jąder [29, 47]. Przeciw niej przemawiają brak związku ucOC z testosteronem u prawie 3 tysięcy starszych mężczyzn i brak istotnego związku z ryzykiem cukrzycy w badaniach kohortowych [34, 48]. Przeciw niej przemawia także badanie z randomizacją, w którym witamina K obniżająca ucOC nie pogorszyła wrażliwości na insulinę [33]. Spór nie jest rozstrzygnięty, a przegląd z 2021 roku traktuje osteokalcynę jako kandydata na hormon kości, a nie jako hormon potwierdzony [8].
Drugie przekonanie łączy wysoką osteokalcynę z mocnymi kośćmi. Osteokalcyna we krwi mierzy jednak tempo obrotu kostnego, a nie ilość ani wytrzymałość kości [10]. Wysokie stężenia towarzyszą między innymi nadczynności przytarczyc i chorobie Pageta, czyli chorobom, które kość osłabiają [16]. Odwrotnie przy skutecznym leczeniu osteoporozy: w badaniu, w którym alendronian obniżył osteokalcynę, gęstość mineralna kręgosłupa lędźwiowego wzrosła po roku o 13,5% [63]. Niska osteokalcyna u osoby leczonej lekiem antyresorpcyjnym jest więc spodziewanym skutkiem leczenia, a nie oznaką słabej kości.
Ograniczeniem całej dziedziny jest to, że doświadczenia rozstrzygające o przyczynowości wykonano na zwierzętach. Zwolennicy hipotezy tłumaczą brak zaburzeń w nowych liniach myszy różnicami szczepów i warunków hodowli [30]. Takie wyjaśnienie oznacza jednak, że ewentualne działanie hormonalne zależy od szczepu i środowiska, co utrudnia przeniesienie go na człowieka. Decyzja o oznaczeniu markerów obrotu kostnego i ocena ich wyniku należą do lekarza prowadzącego leczenie kości.