1. Profil substancji
1.1. Definicja i klasyfikacja
Kwasy tłuszczowe omega-3 i omega-6 (ang. omega-3 and omega-6 fatty acids, n-3 i n-6) to dwie rodziny wielonienasyconych kwasów tłuszczowych. Są to lipidy o długim łańcuchu węglowym z co najmniej dwoma wiązaniami podwójnymi. Nazwa rodziny wskazuje położenie pierwszego wiązania podwójnego liczone od końca metylowego łańcucha: przy trzecim atomie węgla w rodzinie n-3 i przy szóstym w rodzinie n-6. Każdą rodzinę otwiera związek osiemnastowęglowy: kwas alfa-linolenowy (ALA, od ang. alpha-linolenic acid) w rodzinie n-3 i kwas linolowy (LA, od ang. linoleic acid) w rodzinie n-6. Oba należą do niezbędnych kwasów tłuszczowych, ponieważ organizm człowieka nie potrafi ich wytworzyć i musi otrzymywać je z pożywienia [1]. Z nich powstają kwasy dłuższe i bardziej nienasycone. W rodzinie n-6 jest to przede wszystkim kwas arachidonowy (AA), a w rodzinie n-3 kwas eikozapentaenowy (EPA) i kwas dokozaheksaenowy (DHA) [2].
W klasyfikacji lipidów obie rodziny leżą obok kwasów nasyconych i jednonienasyconych. Od kwasu oleinowego z rodziny omega-9 różnią się tym, że kwas oleinowy organizm syntetyzuje sam, a prekursorów rodzin n-3 i n-6 nie. Rodziny n-3 i n-6 nie przechodzą jedna w drugą, bo żaden enzym człowieka nie przesuwa wiązania podwójnego bliżej końca metylowego. Częstym nieporozumieniem jest utożsamianie nazwy „omega-3” z olejem rybim. Olej rybi jest mieszaniną triglicerydów, w której EPA i DHA stanowią tylko część kwasów tłuszczowych. Kwasy n-3 występują także w tłuszczach roślinnych jako ALA [2]. Drugie nieporozumienie dotyczy równoważności członków jednej rodziny. ALA jest substratem do syntezy EPA i DHA, ale u człowieka przekształca się w nie w ograniczonym stopniu [2]. Obecność ALA w tkankach nie zastępuje więc obecności DHA.
Pojęcie obejmuje prekursory osiemnastowęglowe, ich pochodne o łańcuchu dwudziesto- i dwudziestodwuwęglowym oraz miejsce tych związków w fosfolipidach błon. Cząsteczki sygnałowe powstające z tych kwasów, takie jak prostaglandyny, wchodzą w zakres hasła jako produkty przemian, a nie jako osobne mediatory. Obie rodziny konkurują o te same enzymy, wbudowują się w te same miejsca błon i dają mediatory o odmiennym działaniu [3]. O funkcji komórki decyduje więc skład obu rodzin w tkance, a nie obecność jednej z nich.
1.2. Budowa i różnice między postaciami
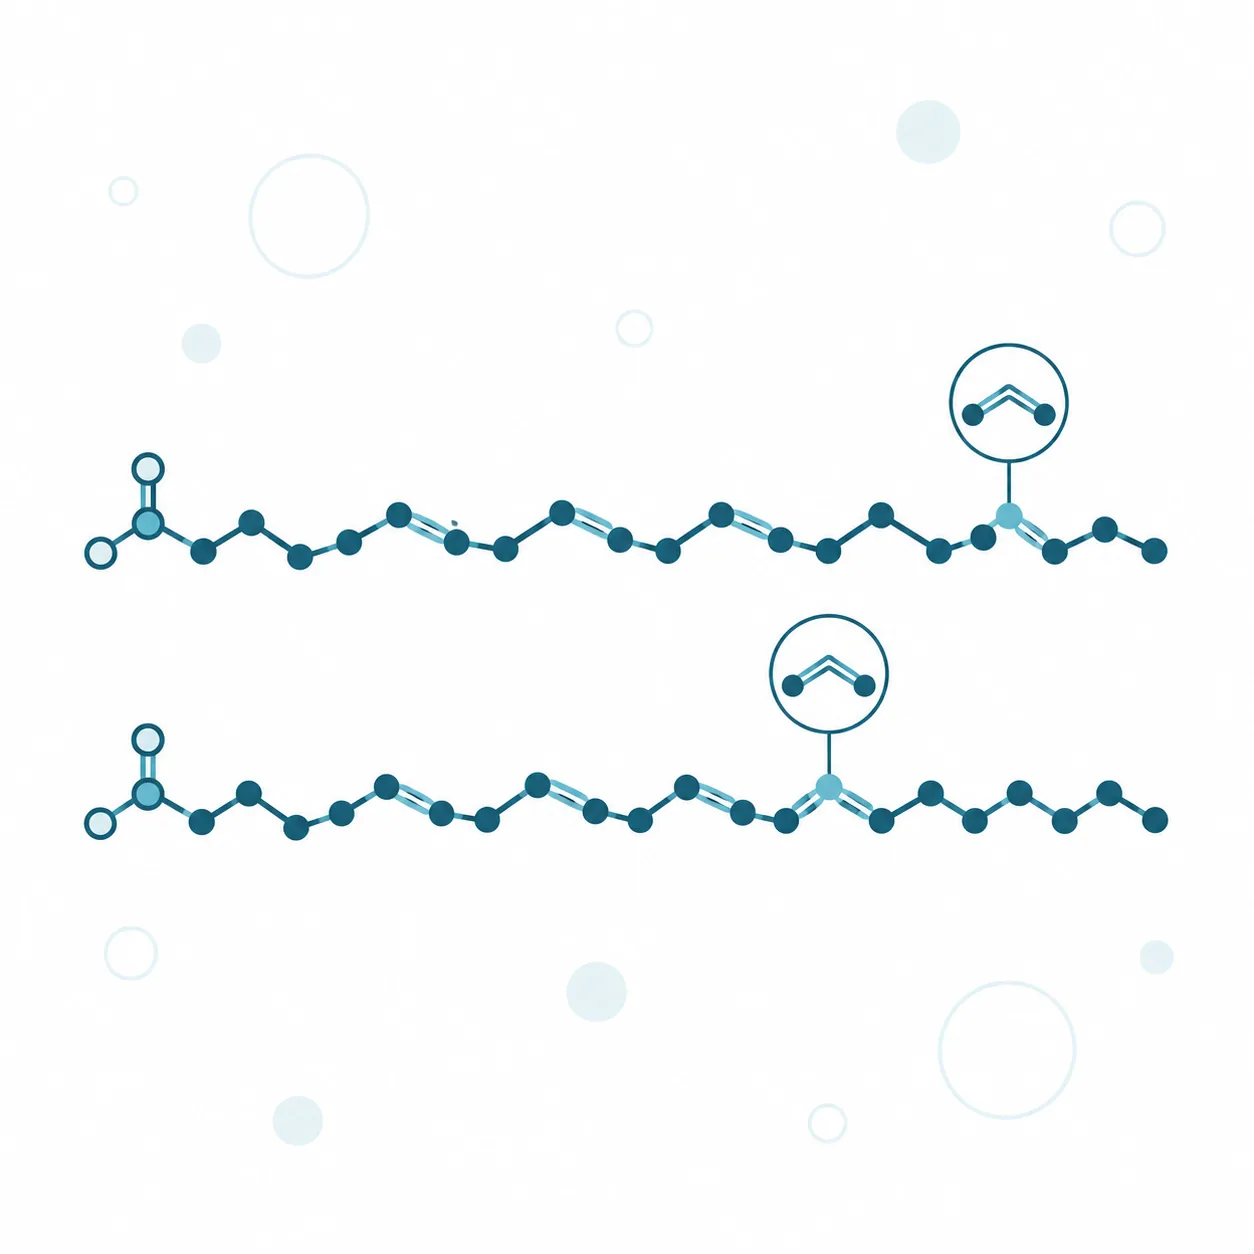
Kwasy tłuszczowe omega-3 i omega-6 opisuje się zapisem skróconym, który podaje trzy cechy budowy. Pierwsza liczba oznacza długość łańcucha w atomach węgla, druga liczbę wiązań podwójnych, a symbol po literze n położenie pierwszego wiązania od końca metylowego. ALA ma zatem zapis 18:3n-3, a LA zapis 18:2n-6. W obu rodzinach wiązania podwójne mają konfigurację cis i są oddzielone pojedynczą grupą metylenową, dlatego każde kolejne wiązanie zagina łańcuch.
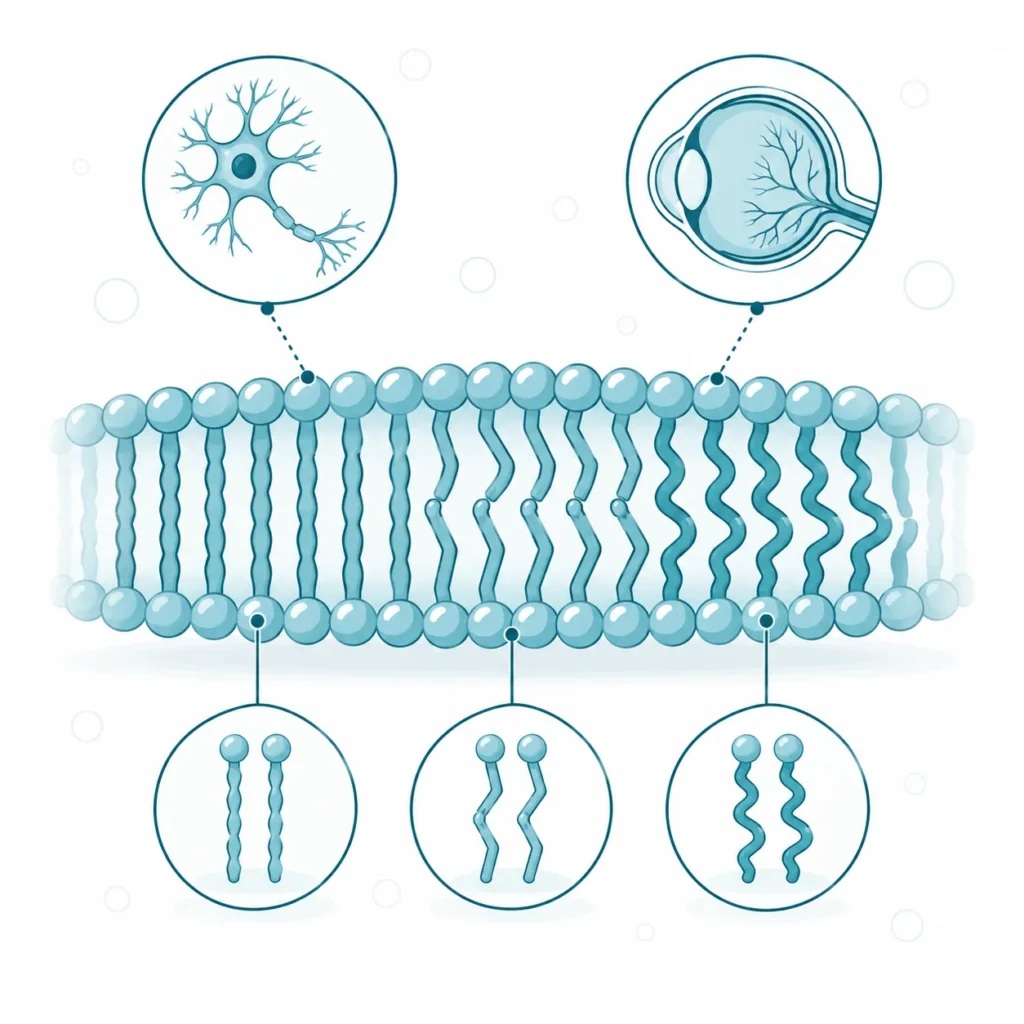
Zagięcia łańcucha mają dwa następstwa. Kwas o wielu wiązaniach podwójnych zajmuje w błonie więcej miejsca i nadaje jej większą podatność na odkształcenie. Zmienia to pracę białek osadzonych w błonie, w tym receptorów i kanałów jonowych [4]. Ta sama budowa czyni łańcuch podatnym na utlenianie, bo atomy wodoru przy grupach metylenowych między wiązaniami podwójnymi łatwo odrywają się pod działaniem wolnych rodników. DHA, mający sześć wiązań podwójnych, łączy więc dużą elastyczność z dużą wrażliwością na utlenianie. Peroksydacja lipidów zaczyna się właśnie w takich łańcuchach i przebiega jako reakcja łańcuchowa.
Najważniejsze postacie obu rodzin różnią się długością łańcucha, liczbą wiązań podwójnych i rolą w organizmie.
| Kwas | Zapis | Rodzina | Rola główna |
| kwas linolowy (LA) | 18:2n-6 | omega-6 | prekursor niezbędny, składnik błon |
| kwas gamma-linolenowy (GLA) | 18:3n-6 | omega-6 | produkt pośredni, prekursor DGLA |
| kwas dihomo-gamma-linolenowy (DGLA) | 20:3n-6 | omega-6 | prekursor AA i własnych eikozanoidów |
| kwas arachidonowy (AA) | 20:4n-6 | omega-6 | główny substrat eikozanoidów, endokannabinoidów |
| kwas alfa-linolenowy (ALA) | 18:3n-3 | omega-3 | prekursor niezbędny, źródło energii |
| kwas eikozapentaenowy (EPA) | 20:5n-3 | omega-3 | substrat eikozanoidów konkurujący z AA |
| kwas dokozapentaenowy (DPA) | 22:5n-3 | omega-3 | produkt pośredni między EPA a DHA |
| kwas dokozaheksaenowy (DHA) | 22:6n-3 | omega-3 | składnik błon neuronów i fotoreceptorów |
W każdej rodzinie wraz z wydłużaniem łańcucha rośnie liczba wiązań podwójnych i zmienia się funkcja kwasu. Prekursor pobierany z pożywienia przechodzi w budulec błon i substrat mediatorów [2, 3]. Kwasy dwudziesto- i dwudziestodwuwęglowe obu rodzin mają przez to większe znaczenie sygnałowe niż ich osiemnastowęglowe prekursory.
1.3. Rys historyczny
Kwasy tłuszczowe omega-3 i omega-6 uznano za składniki niezbędne dopiero w pierwszej połowie XX wieku. Wcześniej tłuszcz pokarmowy traktowano jako źródło energii i nośnik witamin rozpuszczalnych w tłuszczach [5]. Kwasów tłuszczowych nie uważano za niezbędne, bo organizm wytwarza je z węglowodanów [5]. Pogląd ten podważyli w 1929 roku George i Mildred Burrowie, którzy opisali chorobę niedoborową u szczurów karmionych dietą beztłuszczową [5]. Wykazali, że kwas linolowy zapobiega tej chorobie, a następnie, że niezbędny jest także kwas linolenowy, czyli jego odpowiednik z rodziny n-3 [5].
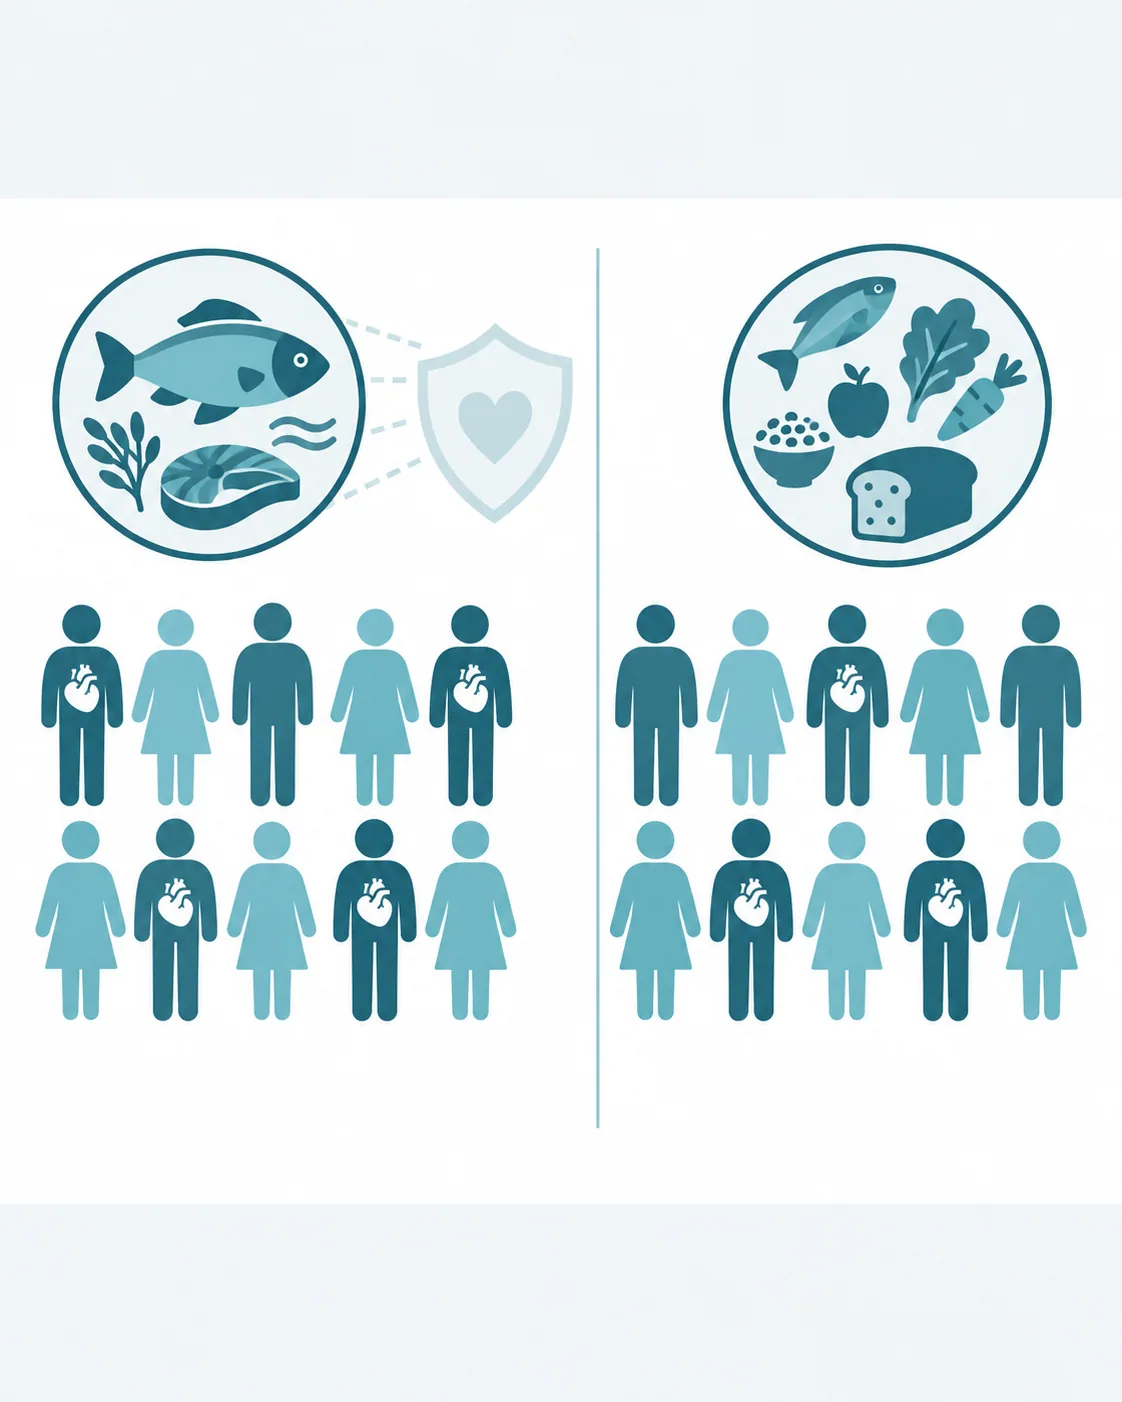
Drugie rozstrzygnięcie dotyczyło znaczenia kwasów n-3 dla serca. W latach siedemdziesiątych XX wieku duńscy badacze Bang i Dyerberg zbadali dietę Inuitów z Grenlandii, wśród których choroba wieńcowa miała być rzadka [6]. Dietę bogatą w tłuszcz fok i wielorybów uznali za czynnik ochronny [6]. Ich prace zapoczątkowały wieloletnie badania nad ochronnym działaniem tej diety [6]. Przegląd Fodora i współpracowników z 2014 roku podważył jednak to założenie. Większość badań odnotowywała chorobę wieńcową u Inuitów z Grenlandii, Kanady i Alaski równie często jak u innych populacji [6]. Autorzy przeglądu zwrócili uwagę, że Bang i Dyerberg nie badali częstości choroby wieńcowej, a ich prace nadal cytowano jako dowód ochronnego działania diety Inuitów [6].
1.4. Synteza i źródła
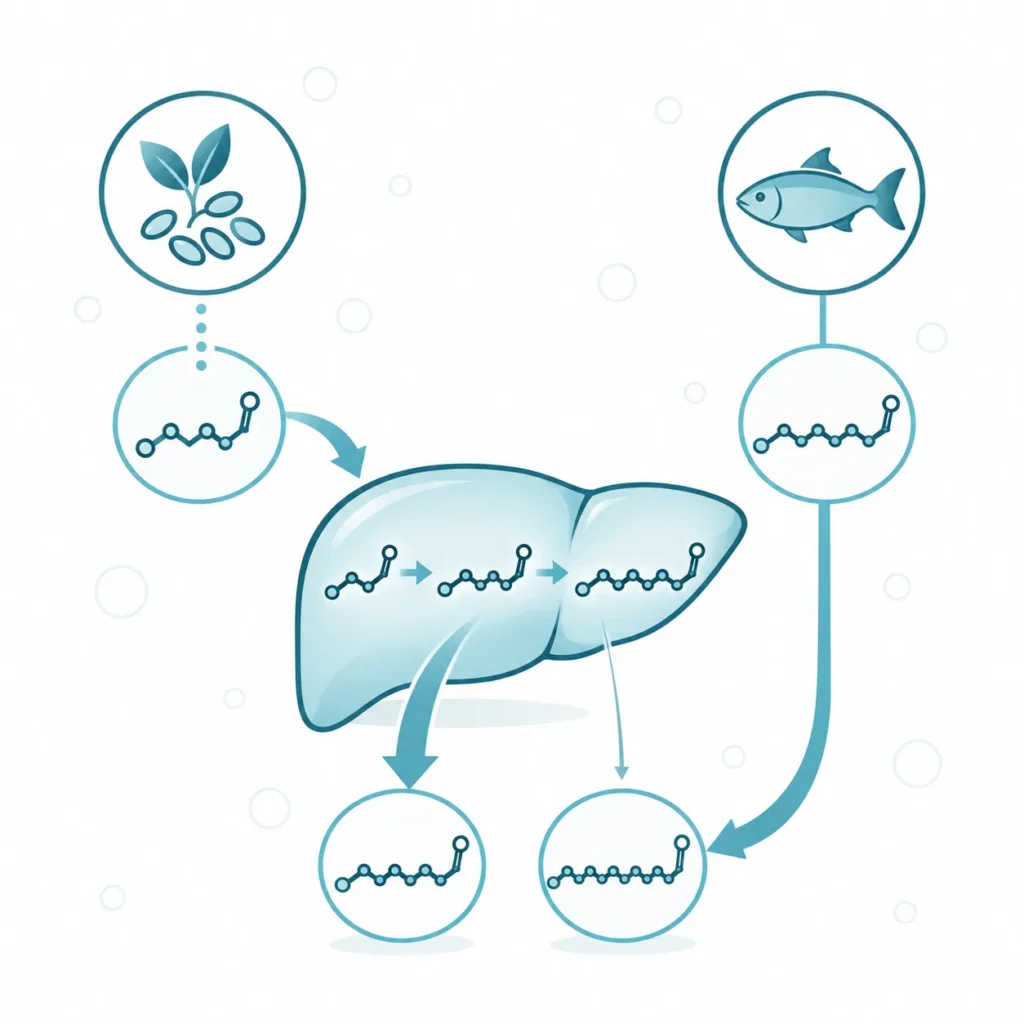
Kwasy tłuszczowe omega-3 i omega-6 trafiają do organizmu z pożywieniem w postaci prekursorów albo gotowych kwasów długołańcuchowych. ALA występuje w dużych stężeniach w niektórych roślinach, a głównym źródłem gotowych EPA i DHA są owoce morza [2]. LA pochodzi przede wszystkim z olejów roślinnych. Organizm wydłuża i desaturuje te prekursory, ale nie potrafi ich wytworzyć od podstaw, bo nie ma enzymów wprowadzających wiązanie podwójne w pozycjach n-3 i n-6 [1].
Synteza kwasów długołańcuchowych przebiega w obu rodzinach według tego samego ciągu reakcji. Komórka osiąga nią przekształcenie krótkiego prekursora pokarmowego w kwas, który może pełnić funkcję budulcową i sygnałową. Pierwszy etap prowadzi delta-6-desaturaza, kodowana przez gen FADS2, która dodaje wiązanie podwójne i z LA wytwarza GLA [7]. Następnie elongaza wydłuża łańcuch o dwa atomy węgla, a z GLA powstaje DGLA. Delta-5-desaturaza, kodowana przez gen FADS1, wprowadza kolejne wiązanie i z DGLA wytwarza AA [7]. Z ALA na tej samej drodze powstaje EPA, a z EPA przez wydłużenie DPA, z którego w dalszych etapach powstaje DHA. Obie rodziny korzystają z tych samych enzymów, więc ich prekursory konkurują o desaturazy i elongazy.
Kinetyka znakowanych izotopowo kwasów we krwi wskazuje, że głównym miejscem desaturacji i wydłużania ALA jest wątroba [8]. U sześciu młodych mężczyzn znakowany ALA przechodził w EPA i DPA, natomiast w DHA nie stwierdzono znakowania w żadnej frakcji osocza przez 21 dni [8]. U młodych kobiet szacowana przemiana netto ALA wynosiła 21% w EPA, 6% w DPA i 9% w DHA [9]. Autorzy badania u kobiet uznali, że kobiety mogą przekształcać ALA sprawniej niż mężczyźni, i powiązali tę zdolność z zapotrzebowaniem płodu i noworodka na DHA [9]. Przegląd Baker i współpracowników potwierdził ograniczoną przemianę ALA w EPA i DHA u ludzi oraz różnice płci w przemianie w DHA [2]. Wynika z tego, że u większości dorosłych zawartość DHA w tkankach zależy od gotowego DHA z pożywienia, a nie od syntezy z ALA [8, 10].
1.5. Transport i wbudowanie w błony
Kwasy tłuszczowe omega-3 i omega-6 krążą we krwi jako składniki triglicerydów, fosfolipidów i estrów cholesterolu w cząstkach lipoproteinowych. Po posiłku ALA opuszcza komórki jelita głównie w triglicerydach chylomikronów, a do fosfatydylocholiny osocza przechodzi później, prawdopodobnie w wątrobie [8]. Poszczególne kwasy trafiają do różnych frakcji lipidów osocza: ALA przeważa w estrach cholesterolu, a DPA i DHA w fosfatydylocholinie [9]. Takie rozdzielenie może kierować poszczególne kwasy n-3 do określonych tkanek [9]. Przegląd badań u ludzi wykazał, że DHA z pożywienia wbudowuje się głównie w triglicerydy, a EPA bardziej równomiernie w triglicerydy, estry cholesterolu i fosfolipidy [11].
Ostatnim etapem drogi jest wbudowanie kwasu w fosfolipidy błony komórkowej, gdzie zajmuje on zwykle drugą pozycję glicerolu. Krwinki czerwone przyjmują znakowane kwasy n-3 w fosfatydylocholinie, prawdopodobnie przez pobieranie gotowych cząsteczek fosfolipidów z lipoprotein [8]. Mózg stanowi szczególny przypadek, bo DHA nie powstaje w nim od podstaw i musi przejść przez barierę krew-mózg [12]. U myszy głównym transporterem DHA do mózgu jest białko MFSD2A, czyli transporter z nadrodziny MFS (ang. major facilitator superfamily), obecny w śródbłonku mikronaczyń tej bariery [12]. MFSD2A przenosi DHA nie jako wolny kwas, lecz w postaci lizofosfatydylocholiny, i działa zależnie od jonów sodu [12]. Myszy pozbawione tego białka miały wyraźnie mniej DHA w mózgu, ubytek neuronów w hipokampie i móżdżku, zaburzenia poznawcze i małogłowie [12]. Dane pochodzą z badań na myszach i na komórkach w hodowli, a znaczenie tej drogi dla ludzkiego mózgu wyprowadza się z tych modeli.
2. Mechanizm działania i funkcje
2.1. Wejście do przemian i punkty regulacji
Kwasy tłuszczowe omega-3 i omega-6 wbudowane w fosfolipidy błon stanowią zapas substratów, z którego komórka w razie potrzeby wytwarza cząsteczki sygnałowe. W stanie spoczynku AA, EPA i DHA pozostają związane estrowo w drugiej pozycji fosfolipidów. Bodźcem uruchamiającym przemiany jest pobudzenie komórki, na przykład sygnałem zapalnym, które aktywuje fosfolipazę A2. Enzym ten odcina kwas tłuszczowy od fosfolipidu i udostępnia go enzymom utleniającym.
Uwolniony AA trafia na dwie główne drogi. Cyklooksygenazy (COX) przekształcają go w nadtlenek prostaglandynowy, z którego powstają prostaglandyny i tromboksany. Lipoksygenazy (LOX) wytwarzają z tego samego kwasu leukotrieny. Związki te razem nazywa się eikozanoidami, od dwudziestu atomów węgla w łańcuchu prekursora. EPA jest substratem tych samych enzymów, ale daje eikozanoidy o zwykle słabszym działaniu niż pochodne AA [3]. Jednocześnie EPA i DHA częściowo hamują wytwarzanie prostaglandyn i leukotrienów z AA [3]. Stanem końcowym jest więc mieszanina mediatorów, której skład zależy od proporcji kwasów n-6 i n-3 w błonie w chwili pobudzenia.
AA jest również substratem endokannabinoidów, czyli lipidowych przekaźników działających na receptory układu endokannabinoidowego [13]. Punkty regulacji przemian kwasów leżą przed uwolnieniem kwasu z błony. Pierwszym jest aktywność desaturaz, zależna od wariantów genów FADS1 i FADS2, która decyduje, ile AA i EPA powstaje z prekursorów [13]. Drugim jest podaż kwasów z pożywienia, która zmienia skład fosfolipidów błon [3]. Niesteroidowe leki przeciwzapalne działają dalej, bo hamują cyklooksygenazy, czyli enzymy przekształcające już uwolniony kwas. Wynika z tego, że skład tłuszczu w błonach wyznacza pulę możliwych mediatorów, zanim komórka otrzyma bodziec.
2.2. Działanie sygnałowe i strukturalne
Kwasy tłuszczowe omega-3 działają na komórkę także bez przekształcania w eikozanoidy, bo zmieniają właściwości błony i aktywują własne receptory. DHA jest silnie wzbogacony w błonach neuronów i w błonach zewnętrznych segmentów pręcików siatkówki [4]. Jego obecność zmienia sprężystość lipidów błony, a przez to pracę osadzonych w niej białek: receptorów, kanałów jonowych bramkowanych napięciem i enzymów [4]. Według przeglądu Sinclaira osłabienie pracy tych białek przenosi się na układy przekaźników wtórnych i na stężenie neuroprzekaźników [4].
Odrębną drogą sygnałową jest receptor GPR120, czyli receptor sprzężony z białkiem G, nazywany też receptorem wolnych kwasów tłuszczowych 4 (FFAR4). W badaniu Oh i współpracowników EPA i DHA pobudzały ten receptor w makrofagach i wywoływały szerokie działanie przeciwzapalne, które znikało po wyciszeniu genu receptora [14]. U otyłych myszy kwasy n-3 hamowały zapalenie tkanek i zwiększały wrażliwość na insulinę, ale tylko u zwierząt z czynnym receptorem [14]. Wyniki dotyczą myszy i komórek w hodowli, a znaczenie tej drogi dla insulinowrażliwości u ludzi nie zostało ustalone. EPA i DHA hamują ponadto aktywację czynnika transkrypcyjnego NF-κB, który uruchamia geny zapalne, oraz aktywują receptor jądrowy PPARγ z rodziny receptorów PPAR [3].
Z EPA i DHA powstają też specjalizowane mediatory prowygaszające, czyli rezolwiny, protektyny i marezyny, którym przypisano udział w wygaszaniu zapalenia [3]. Hipoteza ta ma jednak poważne ograniczenia dowodowe. Według krytycznego przeglądu Schebba i współpracowników leukocyty człowieka wytwarzają te związki w niewielkim stopniu [15]. Ich stężenia u ludzi nie zależały od podaży kwasów n-3 [15]. Receptorów tych mediatorów nie potwierdzono w badaniach na myszach pozbawionych genów [15]. Najczęściej stosowane metody nie pozwalają przy tym wiarygodnie zmierzyć tak niskich stężeń [15]. Rola mediatorów prowygaszających w organizmie człowieka pozostaje więc nierozstrzygnięta.
2.3. Funkcje kwasów omega-3 i omega-6
2.3.1. Budulec błon neuronów i siatkówki
Kwas dokozaheksaenowy jest głównym kwasem n-3 w fosfolipidach błon neuronów i fotoreceptorów siatkówki [4]. Gdy DHA ubywa z błon, jego miejsce prawie w całości zajmuje dwudziestodwuwęglowy kwas dokozapentaenowy z rodziny n-6 [4]. Zastępca ma podobną budowę, ale słabsze właściwości fizyczne i fizjologiczne, więc błona zachowuje ciągłość, a białka w niej osadzone pracują mniej sprawnie [4]. W badaniach na zwierzętach niedobór kwasów n-3 w diecie zmieniał uczenie się, reakcję na stres, zachowanie i funkcję wzroku [4]. U ludzi tak głębokiego niedoboru nie wywołuje się doświadczalnie, więc skutki czynnościowe opisano głównie w modelach zwierzęcych. Funkcja budulcowa DHA wyjaśnia, dlaczego mózg ma własny transporter tego kwasu i dlaczego zapotrzebowanie na DHA rośnie w okresie rozwoju płodowego [9, 12].
2.3.2. Prekursory mediatorów zapalenia
Kwasy arachidonowy, eikozapentaenowy i dokozaheksaenowy są prekursorami cząsteczek, które sterują przebiegiem stanu zapalnego. Pochodne AA, takie jak prostaglandyny i leukotrieny, uczestniczą w rozszerzeniu naczyń, napływie leukocytów i powstawaniu bólu. Według przeglądu Caldera EPA i DHA częściowo hamują wiele etapów zapalenia [3]. Ograniczają ruch leukocytów w kierunku ogniska, wytwarzanie cząsteczek adhezyjnych, przyleganie leukocytów do śródbłonka i wydzielanie cytokin prozapalnych [3]. Przegląd wiąże te działania między innymi ze zmianą składu fosfolipidów błon i z rozbiciem tratw lipidowych, czyli uporządkowanych mikrodomen błony skupiających białka sygnałowe [3]. W badaniach u ludzi kwasy n-3 podawane doustnie przynosiły korzyść w reumatoidalnym zapaleniu stawów i w stabilizowaniu zaawansowanych blaszek miażdżycowych [3]. Funkcja ta nie dzieli jednak kwasów na „dobre” i „złe”. Pochodne AA zapoczątkowują odpowiedź obronną, a DGLA z rodziny n-6 daje metabolity o działaniu przeciwzapalnym [16]. O przebiegu zapalenia decyduje zatem stosunek substratów w błonie, a nie obecność jednej rodziny.
2.3.3. Regulacja stężenia triglicerydów
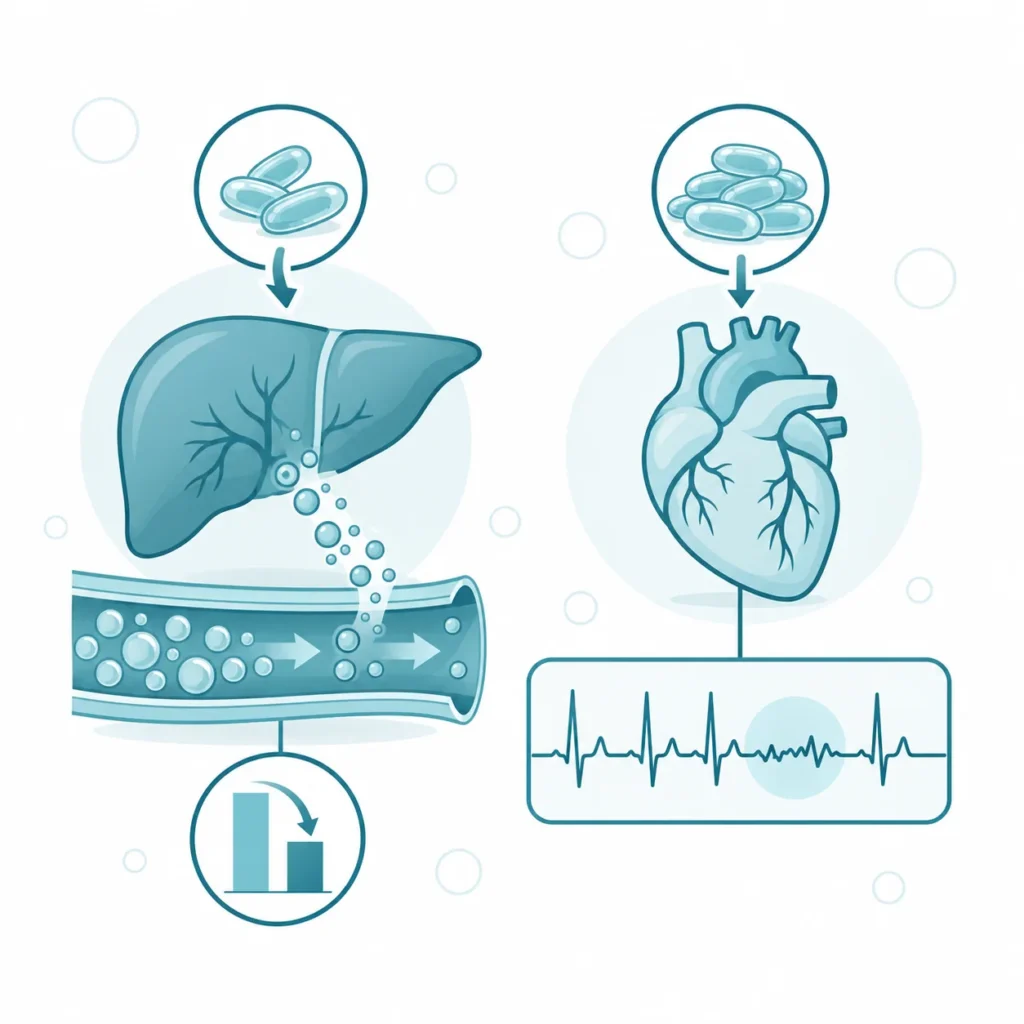
Kwasy eikozapentaenowy i dokozaheksaenowy obniżają stężenie triglicerydów we krwi. Triglicerydy krążą w chylomikronach z jelita i w cząstkach o bardzo małej gęstości (VLDL, ang. very-low-density lipoproteins) wydzielanych przez wątrobę. Przegląd badań u ludzi wykazał, że EPA i DHA zmniejszają stężenie triglicerydów na czczo i po posiłku [11]. Na czczo efekt wynika z mniejszego wytwarzania triglicerydów VLDL przez wątrobę [11]. Wątroba nie zatrzymuje przy tym niewydzielonego tłuszczu, a prawdopodobnym mechanizmem jest nasilone utlenianie kwasów tłuszczowych w hepatocytach [11]. Po posiłku działa drugi mechanizm: rośnie aktywność lipazy lipoproteinowej, enzymu śródbłonka hydrolizującego triglicerydy cząstek, więc chylomikrony są szybciej usuwane z krwi [11]. Autorzy przeglądu nie stwierdzili wyraźnych różnic między EPA a DHA w działaniu na triglicerydy [11]. Według stanowiska Amerykańskiego Towarzystwa Kardiologicznego (AHA) z 2019 roku preparaty EPA i DHA obniżały bardzo wysokie triglicerydy o co najmniej 30% [17]. W tej grupie chorych połączenie EPA z DHA podnosiło cholesterol frakcji LDL, czyli lipoprotein o małej gęstości, a sam EPA go nie podnosił [17]. Na tym działaniu oparto zatwierdzenie w Stanach Zjednoczonych preparatów EPA i DHA na receptę w leczeniu bardzo wysokich triglicerydów [17]. Funkcja metaboliczna kwasów n-3 ma więc u ludzi bezpośrednie zastosowanie kliniczne.
2.4. Przemiany końcowe i wydalanie
Kwasy tłuszczowe omega-3 i omega-6, które nie zostaną wbudowane w błony ani przekształcone w mediatory, ulegają spaleniu w procesie beta-oksydacji. Droga ta dotyczy szczególnie ALA. W badaniach z izotopem stabilnym około 33% znakowanego ALA u młodych mężczyzn pojawiło się w wydychanym dwutlenku węgla w ciągu pierwszej doby [8]. U młodych kobiet odsetek ten wyniósł około 22% [9]. Duża część prekursora zostaje więc zużyta jako źródło energii, zanim zdąży przejść w kwasy długołańcuchowe. Kwasy długołańcuchowe podlegają także przemianom wstecznym. U ludzi DHA z pożywienia przechodzi częściowo w EPA przez skrócenie łańcucha, natomiast przemiany EPA w DHA w tych badaniach nie obserwowano [11].
Mediatory powstałe z tych kwasów działają krótko i miejscowo, bo są szybko unieczynniane w miejscu powstania. Specjalizowane mediatory prowygaszające są przy tym nietrwałe chemicznie, co dodatkowo utrudnia ich oznaczanie [15]. Osobną drogą utraty jest utlenianie nieenzymatyczne łańcuchów wielonienasyconych w błonach, które przebiega jako peroksydacja lipidów. Produkty rozpadu wodoronadtlenków lipidowych wiążą się z białkami i przenoszą uszkodzenie poza miejsce jego powstania. W tkankach bogatych w DHA trwałość błon zależy więc od pojemności układów antyoksydacyjnych, takich jak glutation i witamina E. Bilans każdego kwasu w tkance jest wypadkową podaży, wbudowania, spalania i utleniania.
3. Zaburzenia i modyfikacja
3.1. Zaburzenia stężenia i dostępności
Kwasy tłuszczowe omega-3 i omega-6 rzadko występują w organizmie w ilościach tak małych, by wywołać chorobę niedoborową [1]. Pełny niedobór niezbędnych kwasów tłuszczowych powstaje przy zbyt małej ich podaży, a zagrożeni są przede wszystkim wcześniaki i chorzy długotrwale żywieni pozajelitowo [1]. Jego następstwa obejmują opóźnienie wzrastania i rozwoju, osłabienie odpowiedzi immunologicznej i zaburzenia rozrodu [1]. Organizm odpowiada na brak LA i ALA nasiloną syntezą kwasu Meada, czyli dwudziestowęglowego kwasu z rodziny n-9, którego w warunkach prawidłowych powstaje niewiele [1]. Rośnie wtedy stosunek kwasu Meada do kwasu arachidonowego, który służy jako wskaźnik niedoboru [1].
Od pełnego niedoboru odróżnia się stan, w którym tkanki zawierają mało kwasów długołańcuchowych n-3 przy prawidłowej podaży kwasów n-6. Ubytek DHA w błonach mózgu i siatkówki wyrównuje wtedy kwas dokozapentaenowy n-6, który zachowuje ciągłość błony, ale nie odtwarza w pełni jej właściwości [4]. Na ilość kwasów długołańcuchowych wpływa również budowa genów desaturaz. Warianty w regionie genów FADS1 i FADS2 wiązały się w badaniach populacyjnych ze stężeniem lipidów osocza [7]. Związek wariantu rs174547 ze stężeniem cholesterolu frakcji HDL, czyli lipoprotein o dużej gęstości, zależał przy tym od podaży LA [7].
Różnice genetyczne między populacjami są duże. Przegląd Chiltona i współpracowników opisuje haplotyp „pochodny”, związany ze sprawną przemianą LA w AA [13]. Występuje on znacznie częściej u osób pochodzenia afrykańskiego niż europejskiego, azjatyckiego czy rdzennie amerykańskiego [13]. Haplotyp „przodkowy”, związany z ograniczoną syntezą kwasów długołańcuchowych, jest częsty w niektórych populacjach latynoskich i prawie utrwalony w kilku rdzennych populacjach obu Ameryk [13]. Według autorów ograniczona synteza może u nosicieli tego haplotypu prowadzić do niedoboru długołańcuchowych kwasów n-3 [13]. Ta sama dieta może więc dawać różny skład kwasów w tkankach w zależności od genotypu.
3.2. Udział kwasów omega-3 i omega-6 w chorobach
Kwasy tłuszczowe omega-3 badano w dużych badaniach z randomizacją jako czynnik wpływający na przebieg chorób układu krążenia, a wyniki tych badań są rozbieżne. Badanie REDUCE-IT objęło 8179 chorych z chorobą sercowo-naczyniową albo z cukrzycą i innymi czynnikami ryzyka, leczonych statyną [18]. Stężenie triglicerydów na czczo wynosiło u nich 135–499 mg/dl (1,52–5,63 mmol/l) [18]. Wysoko oczyszczony ester etylowy EPA, nazywany etylem ikozapentu, zmniejszył częstość złożonego pierwszorzędowego punktu końcowego z 22,0% do 17,2% [18]. Mediana obserwacji wyniosła 4,9 roku, a współczynnik ryzyka 0,75 [18]. W badaniu STRENGTH u 13 078 chorych wysokiego ryzyka mieszanina EPA i DHA w postaci kwasów karboksylowych nie różniła się od oleju kukurydzianego [19]. Badanie przerwano przedwcześnie z powodu małego prawdopodobieństwa korzyści [19].
W prewencji pierwotnej wyniki były słabsze. Badanie VITAL objęło 25 871 mężczyzn w wieku co najmniej 50 lat i kobiet w wieku co najmniej 55 lat [20]. Kwasy n-3 pochodzenia morskiego nie zmniejszyły w nim częstości poważnych zdarzeń sercowo-naczyniowych ani nowotworów inwazyjnych [20]. W analizie drugorzędowej tego badania współczynnik ryzyka zawału serca wyniósł 0,72 [20]. W podgrupowej analizie VITAL według zadeklarowanego pochodzenia autorzy przeglądu wskazali możliwą korzyść u Afroamerykanów [13]. Badanie ASCEND objęło 15 480 chorych na cukrzycę bez rozpoznanej miażdżycy [21]. Kwasy n-3 nie zmniejszyły w nim ryzyka poważnych zdarzeń naczyniowych wobec placebo z oliwą z oliwek w ciągu średnio 7,4 roku [21].
Stroną niekorzystną jest wpływ na rytm serca. W metaanalizie siedmiu badań z randomizacją, obejmujących 81 210 osób, kwasy n-3 pochodzenia morskiego wiązały się ze zwiększonym ryzykiem migotania przedsionków, a współczynnik ryzyka wyniósł 1,25 [22]. Ryzyko było większe w badaniach, w których podawano większe ilości kwasów, i w metaregresji rosło wraz z ilością podawanych kwasów [22]. W samym badaniu REDUCE-IT hospitalizacje z powodu migotania lub trzepotania przedsionków dotyczyły 3,1% chorych w grupie EPA i 2,1% w grupie kontrolnej [18].
Poza układem krążenia kwasy n-3 badano w depresji, w ciąży i w starzeniu się mózgu. Przegląd Cochrane z 2021 roku objął 34 badania z placebo u dorosłych z depresją [23]. Kwasy n-3 zmniejszały w nich nasilenie objawów w małym do umiarkowanego stopniu, ale efekt był mało prawdopodobnie istotny klinicznie [23]. Pewność tych dowodów autorzy ocenili jako bardzo niską [23]. W metaanalizie Liao i współpracowników korzyść dotyczyła preparatów, w których EPA stanowił co najmniej 60% kwasów n-3, a nie preparatów z przewagą DHA [24]. Przegląd Cochrane z 2018 roku objął 70 badań u kobiet w ciąży [25]. Kwasy długołańcuchowe n-3 zmniejszały w nich ryzyko porodu przed 37. tygodniem (ryzyko względne 0,89) i przed 34. tygodniem (ryzyko względne 0,58) [25]. Jakość tych dowodów oceniono jako wysoką [25]. Ten sam przegląd wskazał prawdopodobny wzrost odsetka ciąż przenoszonych po 42. tygodniu oraz bardzo nieliczne różnice w rozwoju poznawczym i neurologicznym dzieci [25]. U osób starszych bez zaburzeń poznawczych trzy badania z randomizacją nie wykazały korzyści dla funkcji poznawczych, a wpływu na zachorowanie na otępienie nie badano [26].
3.3. Modyfikacja behawioralna i dietetyczna
Kwasy tłuszczowe omega-3 i omega-6 w tkankach odzwierciedlają przede wszystkim skład tłuszczu w pożywieniu, bo organizm nie wytwarza ich od podstaw. Najsilniej na zawartość EPA i DHA w błonach wpływa spożycie gotowych kwasów długołańcuchowych, których głównym źródłem są owoce morza [2]. Przegląd Brenny i współpracowników dotyczył dorosłych na diecie zachodniej, bogatej w LA [10]. Dodatkowy ALA podnosił u nich we krwi stężenie EPA i DPA, ale prawie nie zmieniał stężenia DHA [10]. Gotowy DHA podnosi natomiast stężenie DHA we krwi skutecznie, a osoby spożywające DHA mają go średnio więcej niż osoby, które go nie spożywają [10].
Zmiana składu tłuszczu w diecie przenosi się na błony z opóźnieniem. Skład kwasów w błonach krwinek czerwonych odzwierciedla długotrwałą podaż EPA i DHA, a nie posiłki z ostatnich dni [27]. Odpowiedź na tę samą zmianę diety zależy przy tym od cech osoby, w tym od wariantów genów FADS, które zmieniają przemianę kwasów n-6 dostarczonych z olejami roślinnymi [16]. W badaniu z randomizacją podawanie oleju sojowego, bogatego w LA, nie zmieniło stężenia żadnego długołańcuchowego kwasu n-6 w surowicy [16]. Skład błon zależy więc od rodzaju dostarczanego kwasu bardziej niż od całkowitej ilości tłuszczu wielonienasyconego.
3.4. Wsparcie suplementacyjne
Kwasy tłuszczowe omega-3 i omega-6 występują także jako składniki preparatów podawanych z zewnątrz. Punkt uchwytu takich substancji leży w samym składzie kwasów we krwi i w błonach. Badania u ludzi opisują zmianę stężenia określonych kwasów albo ich bezpośrednich następstw metabolicznych po podaniu trzech substancji z tej grupy.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Kwasy omega-3 | wbudowanie EPA i DHA w fosfolipidy błon krwinek, mniejsze wytwarzanie VLDL w wątrobie | ↑ EPA i DHA w błonach, ↓ triglicerydy | A |
| Kwas alfa-linolenowy | substrat desaturaz i elongaz szlaku n-3 | ↑ EPA i DPA we krwi, ~ DHA | B |
| Kwas gamma-linolenowy | ominięcie etapu delta-6-desaturazy, wydłużenie do DGLA | ↑ DGLA w surowicy, zależnie od genotypu FADS1 | B |
Najmocniejsze dane dotyczą kwasów omega-3, dla których badania z randomizacją i stanowisko AHA opisują obniżenie triglicerydów, a skład błon krwinek odzwierciedla ich podaż [17, 27]. Wpływ ALA na stężenie EPA i DPA opisano w przeglądzie badań u ludzi, który zarazem wskazał brak istotnego wzrostu DHA [10]. Dla kwasu gamma-linolenowego podstawą jest badanie z randomizacją w układzie naprzemiennym u 64 zdrowych dorosłych [16]. Olej z ogórecznika podniósł w nim stężenie DGLA o 57% u osób z genotypem GG wariantu rs174537 i o 141% u osób z genotypem TT [16]. Stężenie kwasu arachidonowego, wyjściowo zależne od genotypu, wzrosło w tym badaniu umiarkowanie [16]. Wynik ten pokazuje, że kierunek działania jest wspólny, ale jego wielkość zależy od genotypu desaturazy.
4. Uwagi praktyczne
4.1. Jak to zbadać
Kwasy tłuszczowe omega-3 i omega-6 oznacza się we krwi jako udział każdego kwasu w puli wszystkich kwasów tłuszczowych próbki, wyrażony w procentach. Jedną z miar zawartości kwasów n-3 jest indeks omega-3, zaproponowany w 2004 roku przez Harrisa i von Schacky’ego [27]. Indeks ten podaje sumę EPA i DHA jako odsetek wszystkich kwasów tłuszczowych w błonach krwinek czerwonych [27]. Materiałem są krwinki, a nie osocze, bo ich błony wymieniają skład powoli i nie odzwierciedlają posiłku z dnia pobrania [27]. W analizie autorów indeks omega-3 wynoszący co najmniej 8% wiązał się z najmniejszym ryzykiem zgonu z powodu choroby wieńcowej, a wynoszący 4% lub mniej z największym [27].
Wynik indeksu opisuje skład błon, a nie stan zdrowia, i nie stanowi rozpoznania. Progi 4% i 8% wyprowadzono z badań opisujących związek indeksu z ryzykiem w grupach chorych i osób zdrowych [27]. Nie przesądzają więc o skutkach zmiany indeksu u konkretnej osoby. Pełny profil kwasów tłuszczowych w błonach krwinek albo w osoczu podaje także zawartość LA, AA i kwasów pośrednich, co pozwala ocenić stosunek rodzin n-6 i n-3. Do rozpoznania niedoboru niezbędnych kwasów tłuszczowych służy stosunek kwasu Meada do kwasu arachidonowego w osoczu, nazywany indeksem Holmana [1]. Wartość 0,20 lub wyższa jest progiem rozpoznania niedoboru, a oznaczenie ma znaczenie głównie u wcześniaków i u chorych żywionych pozajelitowo [1].
4.2. Na co warto zwrócić uwagę
Kwasy tłuszczowe omega-6 bywają przedstawiane jako prozapalne, a ich duże spożycie jako szkodliwe. Przekonanie to wynika z obserwacji, że AA jest prekursorem prozapalnych eikozanoidów. W przeglądzie systematycznym 15 badań z randomizacją u zdrowych osób żadne z badań nie wykazało istotnych zmian wielu markerów zapalenia, w tym białka C-reaktywnego, fibrynogenu i cytokin, po zwiększeniu podaży LA [28]. Istotne różnice dotyczyły jedynie wydalania niektórych metabolitów eikozanoidów w dwóch badaniach, których autorzy nie uznali ich za wskaźnik nasilenia zapalenia [28]. Metaanaliza badań kohortowych objęła 310 602 osoby [29]. Najwyższe spożycie LA wiązało się w niej z ryzykiem zdarzeń wieńcowych mniejszym o 15% i ryzykiem zgonu wieńcowego mniejszym o 21% w porównaniu z najniższym [29]. Przegląd Cochrane badań z randomizacją dał obraz ostrożniejszy: zwiększenie podaży kwasów n-6 obniżało cholesterol całkowity, ale mogło nie zmieniać ogólnej śmiertelności ani częstości zdarzeń sercowo-naczyniowych [30]. Ten sam przegląd wskazał możliwe zmniejszenie ryzyka zawału serca, przy dowodach niskiej jakości [30].
Drugie nieporozumienie dotyczy rozbieżnych wyników badań nad EPA. W badaniu REDUCE-IT grupę kontrolną otrzymującą olej mineralny porównano z grupą otrzymującą EPA [31]. W analizie dodatkowej tego badania stężenia markerów związanych z miażdżycą wzrosły po 12 miesiącach w grupie oleju mineralnego [31]. Interleukina 1β wzrosła o 28,9%, a białko C-reaktywne o 21,9%, podczas gdy w grupie EPA markery prawie się nie zmieniły [31]. Autorzy uznali wpływ tej obserwacji na interpretację korzyści klinicznej za niepewny [31]. W badaniu STRENGTH, z neutralnym wynikiem, porównaniem był olej kukurydziany zamiast oleju mineralnego [19]. Różnica wyników REDUCE-IT i STRENGTH może zatem wynikać z rodzaju preparatu, z rodzaju porównania albo z obu tych czynników jednocześnie.
Trzecie zastrzeżenie dotyczy przenoszenia wyników między postaciami kwasów. ALA, EPA i DHA nie są wymienne, bo przemiana ALA w DHA jest u mężczyzn śladowa albo niewykrywalna, a dodatkowy ALA nie podnosi istotnie stężenia DHA we krwi [8, 10]. Wynik badania nad jednym preparatem nie opisuje więc działania innej postaci kwasów n-3. Działania niepożądane opisane w badaniach obejmują migotanie przedsionków i dolegliwości żołądkowo-jelitowe, które w badaniu STRENGTH występowały u 24,7% chorych wobec 14,7% w grupie porównawczej [19]. W badaniu REDUCE-IT poważne krwawienia wystąpiły u 2,7% chorych w grupie EPA i u 2,1% w grupie kontrolnej, a różnica nie osiągnęła istotności statystycznej [18]. Decyzja o stosowaniu preparatów kwasów n-3 w chorobach serca i przy zaburzeniach rytmu wymaga oceny lekarza, który zna pełny obraz chorego.