
1. Charakterystyka faz NREM i REM
1.1. Definicja i zakres pojęcia
Fazy snu NREM i REM (ang. non-rapid eye movement sleep i rapid eye movement sleep, NREM i REM) to dwa stany snu należące do procesów regulacji snu i czuwania. Skrót NREM oznacza sen bez szybkich ruchów gałek ocznych, a skrót REM sen, w którym takie ruchy pojawiają się seriami. Oba stany rozpoznaje się w jednoczesnym zapisie czynności elektrycznej mózgu, ruchów gałek ocznych i napięcia mięśni. Czynność mózgu rejestruje elektroencefalografia (EEG), czyli zapis fal mózgowych z elektrod umieszczonych na skórze głowy.
W klasyfikacji Amerykańskiej Akademii Medycyny Snu (ang. American Academy of Sleep Medicine, AASM), towarzystwa naukowego ustalającego reguły oceny zapisu snu, sen NREM dzieli się na trzy stadia: N1, N2 i N3 [1]. Sen REM stanowi osobne stadium. Pełna noc składa się z kilku cykli, w których stadia NREM poprzedzają okres snu REM [2]. Kolejność stadiów i ich udział w nocy tworzą razem architekturę snu.
Sen różni się od śpiączki i znieczulenia ogólnego odwracalnością, czyli zdolnością do szybkiego przejścia w czuwanie pod wpływem bodźca [3]. Chory w śpiączce takiego przejścia nie wykonuje, nawet przy silnym bodźcu. Fazy snu nie są też tym samym co rytm dobowy. Rytm dobowy wyznacza porę, o której organizm zasypia i się budzi, a fazy snu opisują stany mózgu między tymi chwilami. Potoczne określenie „sen głęboki” odpowiada stadium N3 snu NREM, a nie fazie REM.
Pojęcie faz snu obejmuje kryteria rozpoznawania stadiów, ich następstwo w cyklu i rozkład w ciągu nocy. Nie obejmuje mechanizmu zegara biologicznego, który ustala porę snu. Fazy snu wymagają odrębnego opisu, ponieważ wiele chorób ujawnia się jako zmiana jednej fazy, a nie całego snu. Utrata atonii mięśni w fazie REM pojawia się na przykład na lata przed rozpoznaniem choroby Parkinsona [4]. Skrócenie czasu od zaśnięcia do pierwszej fazy REM towarzyszy depresji [5].
1.2. Lokalizacja
Fazy snu NREM i REM powstają w mózgu jako stan rozległych sieci neuronów, a nie pojedynczego ośrodka. Jedne struktury wytwarzają rytmy widoczne w EEG, a inne rozstrzygają, czy mózg śpi i w której fazie się znajduje.
Rytmy snu NREM wytwarza układ wzgórzowo-korowy, czyli wzgórze połączone pętlami z korą mózgu. Wrzeciona senne są powierzchniowym odbiciem oscylacji neuronów wzgórza [6]. Fale wolne powstają w samej korze, gdzie neurony piramidowe naprzemiennie się pobudzają i milkną w rytmie wolniejszym niż jeden cykl na sekundę [7]. Rytm ten opisano w badaniach na kotach w znieczuleniu. U ludzi odpowiadające mu wyciszenie sieci korowej zarejestrowano bezpośrednio w korze podczas zespołów K [8].
O przełączaniu między czuwaniem, snem NREM i snem REM decydują ośrodki położone głębiej. W polu przedwzrokowym podwzgórza leży jądro przedwzrokowe brzuszno-boczne (ang. ventrolateral preoptic nucleus, VLPO), którego neurony w badaniach na szczurach były aktywne w czasie snu i wysyłały włókna do ośrodków czuwania [9]. W moście i śródmózgowiu leżą skupiska neuronów sterujących wejściem w fazę REM. W rdzeniu przedłużonym znajdują się natomiast neurony, które w tej fazie hamują neurony ruchowe [10].
Poza mózgiem fazy snu ujawniają się w mięśniach i w narządzie wzroku. Napięcie mięśni bródki i ruchy gałek ocznych należą do sygnałów, na których opiera się rozpoznanie stadiów [1]. Z takiego rozmieszczenia wynika, że w czasie snu mózg nie przestaje działać, tylko zmienia układ sieci aktywnych i wyciszonych.
1.3. Rys historyczny
Wiedza o fazach snu powstała w latach 1953–1968 [1]. Wcześniej sen opisywano jako jednolity stan stopniowo słabnącej czynności mózgu [11]. W 1953 roku Aserinsky i Kleitman opisali u śpiących ludzi regularnie powracające okresy szybkich ruchów gałek ocznych [12]. Cztery lata później Dement i Kleitman powiązali te okresy z aktywnym zapisem EEG i z marzeniami sennymi. Wykazali też, że pojawiają się one w ciągu nocy cyklicznie [2].
W 1962 roku Jouvet opisał u kotów stan, w którym kora pracuje jak w czuwaniu, a mięśnie tracą napięcie, i powiązał go ze strukturami mostu [13]. Ze względu na tę sprzeczność stan ten nazwano snem paradoksalnym. Doświadczenia z przecięciem pnia mózgu pokazały, że cięcie poniżej mostu znosi atonię, a cięcie powyżej mostu usuwa szybki zapis kory [10].
W 1968 roku Rechtschaffen i Kales opublikowali pierwszy wspólny podręcznik oceny zapisu snu, który dzielił sen NREM na cztery stadia [1]. Ten podział obowiązywał do 2007 roku. Wtedy zespół AASM połączył stadia 3 i 4 w jedno stadium N3, bo przegląd piśmiennictwa nie dostarczył podstaw do ich rozdzielania [1].
1.4. Warunki i bodźce uruchamiające
Fazy snu NREM i REM zaczynają się dopiero wtedy, gdy mózg przechodzi z czuwania w sen. Do tego przejścia potrzebne są presja snu, narastająca z każdą godziną czuwania, i odpowiednia pora doby.
Presję snu przenosi między innymi adenozyna, cząsteczka powstająca przy zużywaniu energii przez komórki. W badaniu na kotach jej stężenie w przodomózgowiu podstawnym rosło w czasie czuwania, narastało przy przedłużonym czuwaniu i powoli spadało w śnie wyrównawczym [14]. Adenozyna hamowała w tych doświadczeniach neurony cholinergiczne, które podtrzymują pobudzenie kory [14]. U ludzi rolę tego sygnału potwierdzają pośrednio badania z kofeiną, która działa na receptory adenozyny i zmniejsza udział stadium N3 [15].
Model dwuprocesowy opisuje senność jako wynik współdziałania presji homeostatycznej i sygnału z zegara dobowego [16]. Zegar ten leży w jądrze nadskrzyżowaniowym podwzgórza i wyznacza przede wszystkim porę snu [16]. Wpływa jednak także na budowę snu: gdy ośmiu mężczyzn spało o wszystkich porach cyklu dobowego, udział fazy REM był największy wkrótce po dobowym minimum temperatury ciała [17].
Trzecim warunkiem jest spadek temperatury ciała. Zaśnięcie zbiega się ze spadkiem temperatury wewnętrznej, a przejście w sen NREM jest najbardziej prawdopodobne wtedy, gdy temperatura spada najszybciej [18].
Faza REM ma inny warunek wejścia niż sen NREM. U zdrowego dorosłego pojawia się dopiero po okresie snu NREM [2]. Przejście to kontroluje przełącznik w pniu mózgu, podatny jednak na nagłe, niepożądane zmiany stanu, na przykład w narkolepsji [19]. O tym, czy i kiedy zaczyna się sen, decyduje więc suma presji snu, pory doby i stanu termoregulacji, a nie jeden sygnał.
2. Przebieg faz NREM i REM
2.1. Etapy i stadia
Fazy snu NREM i REM przebiegają w stałej kolejności, którą rozpoznaje się w polisomnografii (PSG), czyli całonocnym badaniu łączącym kilka zapisów. Obok EEG obejmuje ono elektrookulografię (EOG), czyli zapis ruchów gałek ocznych, i elektromiografię (EMG), czyli zapis napięcia mięśni bródki [1]. Zapis ocenia się w odcinkach 30-sekundowych, zwanych epokami [1].
Stanem wyjściowym jest spokojne czuwanie z zamkniętymi oczami. EEG nad płatem potylicznym wykazuje wtedy rytm alfa, czyli regularne fale typowe dla odprężonego czuwania [1]. Bodźcem do zaśnięcia jest narastająca presja snu przy jednoczesnym wyciszeniu układów czuwania.
Pierwszym krokiem jest stadium N1. Zanik rytmu alfa jest najpewniejszym elektrofizjologicznym wskaźnikiem zaśnięcia i otwiera właśnie to stadium [1]. Zapis staje się wolniejszy i mniej regularny, a stadium N1 trwa krótko i łatwo z niego wybudzić.
Drugim krokiem jest stadium N2, w którym pojawiają się dwa zdarzenia rozpoznawcze. Wrzeciona senne to krótkie serie szybszych fal, które odzwierciedlają oscylacje neuronów wzgórza i najsilniej zaznaczają się nad środkową częścią głowy [1, 6]. Zespoły K to pojedyncze duże fale, najwyraźniejsze nad płatami czołowymi [1]. Zapisy z elektrod wprowadzonych do kory pokazały, że zespół K to krótkie, rozległe wyciszenie neuronów, czyli tak zwany stan dolny (ang. down-state) [8].
Trzecim krokiem jest stadium N3, zwane snem wolnofalowym. Dominują w nim fale wolne z zakresu delta, o dużej amplitudzie [3]. Odzwierciedlają one zsynchronizowane, naprzemienne okresy pobudzenia i ciszy dużych populacji neuronów korowych [7].
Czwartym krokiem jest faza REM. Zapis EEG staje się szybki i niskonapięciowy, podobny do czuwania, gałki oczne wykonują serie szybkich ruchów, a mięśnie szkieletowe tracą napięcie [19]. Wybudzenie z tej fazy wiąże się najczęściej z relacją o marzeniu sennym [2].
Stanem końcowym jest powrót do snu NREM, który otwiera kolejny cykl, albo przebudzenie. Jeden cykl NREM–REM trwa u dorosłego średnio około 90 minut i powtarza się w ciągu nocy kilka razy [2]. Cykle nie są jednak jednakowe. Moc fal wolnych maleje z każdym kolejnym cyklem, więc stadium N3 skupia się w pierwszej części nocy [20]. Okresy REM wydłużają się natomiast ku rankowi, dlatego faza REM przeważa w drugiej połowie snu [2].
Cztery stadia różnią się jednocześnie zapisem EEG, ruchami gałek ocznych i napięciem mięśni, a zestawienie tych trzech sygnałów pozwala je rozróżnić.
| Stadium | EEG | Ruchy gałek ocznych (EOG) | Napięcie mięśni (EMG) | Zdarzenia rozpoznawcze |
| N1 | zanik rytmu alfa, zapis wolniejszy i mieszany | brak szybkich ruchów | zachowane | przejście z czuwania w sen |
| N2 | tło o mieszanej częstotliwości | brak szybkich ruchów | zachowane | wrzeciona senne, zespoły K |
| N3 | fale wolne (delta) o dużej amplitudzie | brak szybkich ruchów | zachowane | przewaga w pierwszej części nocy |
| REM | zapis szybki, niskonapięciowy, podobny do czuwania | serie szybkich ruchów | zniesione (atonia) | marzenia senne, przewaga nad ranem |
Z takiego rozkładu wynika konsekwencja praktyczna. Skrócenie snu od strony poranka odbiera przede wszystkim fazę REM, a sen N3 z początku nocy pozostaje w dużej części zachowany.
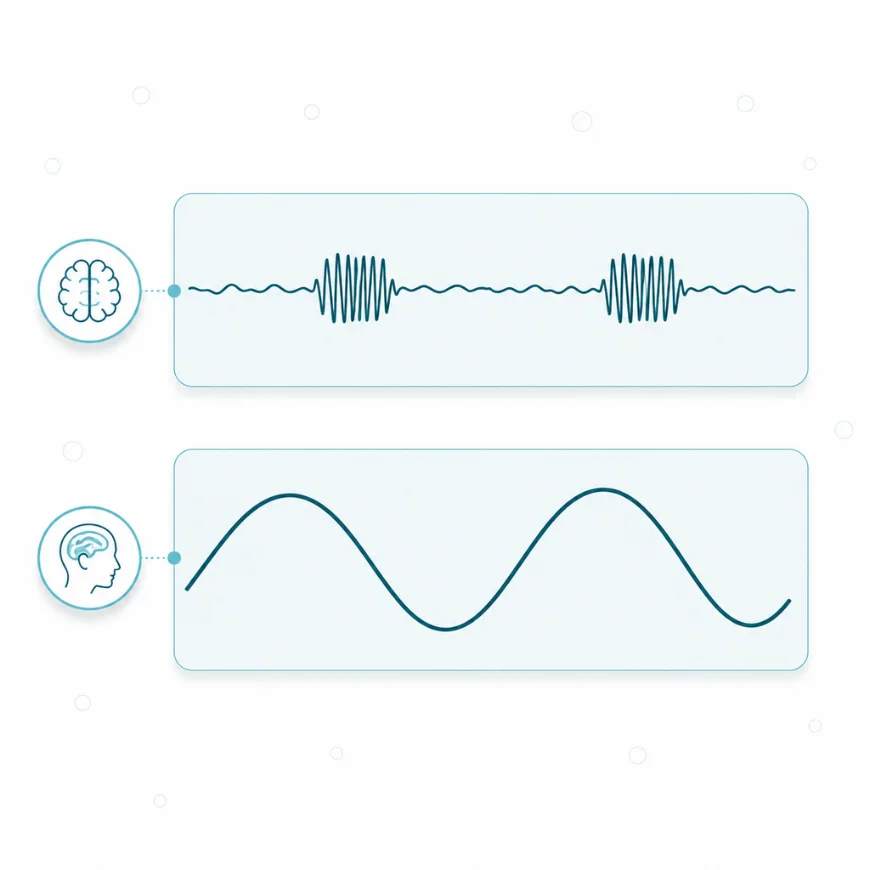
Wrzeciona snu i fale wolne to dwa różne elementy zapisu, o innej amplitudzie i innej funkcji. Nie występują w tych samych stadiach.
2.2. Ośrodki i kluczowe neuroprzekaźniki
Przełączanie między fazami snu NREM i REM zależy nie od enzymów, lecz od sieci jąder podwzgórza i pnia mózgu, które hamują się nawzajem. Dzięki temu stan mózgu zmienia się szybko i w całości, bez długich stanów pośrednich [3].
Po jednej stronie pierwszego przełącznika stoją układy czuwania. Tworzą je między innymi miejsce sinawe, czyli źródło noradrenaliny w moście, oraz jądra szwu, które wydzielają serotoninę [10]. Należy do nich też jądro guzowo-suteczkowe podwzgórza, jedyne neuronalne źródło histaminy w mózgu [10]. Po drugiej stronie stoi VLPO, którego neurony wydzielają dwa hamujące przekaźniki: kwas gamma-aminomasłowy (GABA) i neuropeptyd galaninę [3]. W czasie snu neurony VLPO hamują układy czuwania. W czuwaniu układy czuwania hamują z kolei VLPO przez acetylocholinę, noradrenalinę i serotoninę [3]. Taka wzajemna zależność działa jak tak zwany przełącznik dwustanowy (ang. flip-flop switch): strona, która przeważa, wycisza przeciwną i utrwala własny stan [3].
Drugi przełącznik działa w pniu mózgu i rozstrzyga między snem NREM a fazą REM. Neurony glutaminianergiczne jądra podgrzbietowo-bocznego (ang. sublaterodorsal nucleus, SLD) w moście są aktywne w fazie REM i tworzą obszar REM-on [19]. Neurony GABA-ergiczne istoty szarej okołowodociągowej brzuszno-bocznej (ang. ventrolateral periaqueductal gray, vlPAG) są aktywne poza fazą REM i ją hamują, czyli tworzą obszar REM-off [3, 19]. Obie grupy hamują się nawzajem, dlatego wejście w fazę REM i wyjście z niej trwa krótko [19]. Model ten opracowano na podstawie badań na szczurach. U ludzi model ten wspierają pośrednio obserwacje zaburzeń snu REM, które wynikają z uszkodzenia tych obwodów [11]. Neurony oreksynowe bocznego podwzgórza pobudzają obszar REM-off i układy czuwania, dlatego ich utrata ułatwia niekontrolowane wejście w fazę REM [3].
W fazie REM neurony noradrenergiczne i serotoninergiczne niemal milkną [10]. Neurony cholinergiczne przodomózgowia podstawnego i nakrywki pnia mózgu pracują natomiast podobnie jak w czuwaniu [10]. Uwalniana przez nie acetylocholina pobudza korę i nadaje zapisowi EEG szybki charakter [10]. Noradrenalina i serotonina hamują neurony aktywne w fazie REM, więc ich wyciszenie ułatwia utrzymanie tej fazy [10].
Atonię mięśni wytwarza droga zstępująca. Neurony SLD pobudzają komórki brzuszno-przyśrodkowej części rdzenia przedłużonego, które wydzielają glicynę i GABA i hamują neurony ruchowe [10]. W badaniu na szczurach porażenie mięśni ustępowało dopiero po wyłączeniu jednocześnie receptorów GABA-A i glicynowych, czyli kanałów jonowych, oraz metabotropowych receptorów GABA-B [21]. Żaden z tych mechanizmów nie wystarczał więc sam. Hipoteza autorów zakłada, że zanik tego hamowania leży u podstaw zaburzeń zachowania w czasie snu REM u ludzi [21].
Ośrodki sterujące fazami snu różnią się położeniem, przekaźnikiem i wzorem aktywności w trzech stanach mózgu.
| Ośrodek | Położenie | Główny mediator | Aktywność: czuwanie / NREM / REM | Rola |
| VLPO | pole przedwzrokowe podwzgórza | GABA, galanina | niska / wysoka / wysoka (część rozszerzona) | hamowanie układów czuwania |
| Miejsce sinawe, jądra szwu | most, pień mózgu | noradrenalina, serotonina | wysoka / niska / prawie zerowa | podtrzymanie czuwania, hamowanie REM |
| Neurony cholinergiczne przodomózgowia i nakrywki | przodomózgowie podstawne, pień mózgu | acetylocholina | wysoka / niska / wysoka | szybki zapis kory |
| SLD | most | glutaminian | niska / niska / wysoka | obszar REM-on, atonia |
| vlPAG | śródmózgowie | GABA | wysoka / wysoka / niska | obszar REM-off |
| Rdzeń przedłużony brzuszno-przyśrodkowy | rdzeń przedłużony | glicyna, GABA | bardzo niska / niska / wysoka | hamowanie neuronów ruchowych |
Fazę REM wyróżnia zatem jednoczesna cisza neuronów monoaminergicznych i aktywność neuronów cholinergicznych, czego nie ma ani w czuwaniu, ani w śnie NREM.
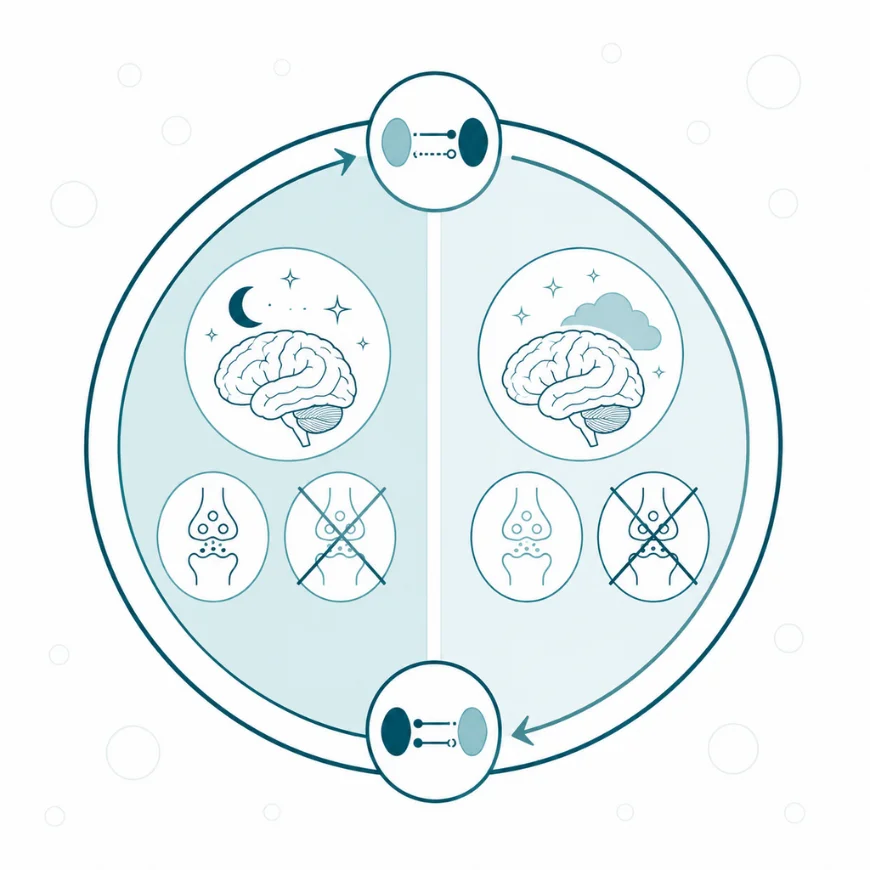
Przejścia między fazami snu NREM i REM mają charakter neurochemiczny: układy cholinergiczny i monoaminergiczny cyklicznie zamieniają się rolami.
2.3. Homeostatyczna regulacja snu NREM i REM
Fazy snu NREM i REM mają regulację homeostatyczną, czyli taką, w której ubytek fazy zwiększa jej natężenie lub udział w następnym śnie. Zjawisko to nazywa się odbiciem (ang. rebound) i dotyczy zarówno snu wolnofalowego, jak i fazy REM.
Odbicie snu wolnofalowego opisano w badaniu z deprywacją snu u ludzi. Po 40,5 godziny czuwania moc fal delta w EEG pierwszej nocy wyrównawczej była wyraźnie wyższa niż w nocach wyjściowych [20]. Wzrost obejmował stadia 2, 3 i 4, a nawet fazę REM, przy czym klasyczna ocena stadiów słabo go oddawała [20]. Autorzy wywnioskowali, że moc fal wolnych odzwierciedla proces, którego wartość początkowa zależy od długości poprzedzającego czuwania [20]. W badaniu na zwierzętach wyłączenie astrocytarnego źródła adenozyny osłabiało sen wyrównawczy po deprywacji [3]. Ten komórkowy mechanizm odbicia opisano wyłącznie w modelu zwierzęcym.
Niedobór fazy REM również jest wyrównywany, choć według innego wzoru. W badaniu 21 zdrowych osób poddanych powtarzanemu skracaniu snu w nocach wyrównawczych wystąpiło odbicie fazy REM [22]. Ilość snu wolnofalowego nie różniła się wtedy od wartości wyjściowych [22]. Odbicie pokazuje więc, że niedobór snu wolnofalowego i niedobór fazy REM są wyrównywane osobno, a nie tylko jako część łącznego czasu snu.
2.4. Czynniki zmniejszające udział snu NREM i REM
Fazy snu NREM i REM hamują przede wszystkim leki działające na przekaźniki sterujące przełącznikami snu. Niemodyfikowalnym czynnikiem hamującym sen wolnofalowy jest wiek.
Leki przeciwdepresyjne zwiększają dostępność serotoniny lub noradrenaliny w synapsach. Te same monoaminy hamują neurony aktywne w fazie REM, więc ich nadmiar w nocy utrudnia wejście w tę fazę [10]. W przeglądzie systematycznym badań z randomizacją tłumienie fazy REM obserwowano przy wszystkich trójpierścieniowych lekach przeciwdepresyjnych z wyjątkiem trimipraminy [23]. Obserwowano je też przy inhibitorach monoaminooksydazy, selektywnych inhibitorach wychwytu zwrotnego serotoniny, wenlafaksynie, trazodonie i bupropionie [23]. Siła efektu różniła się jednak między lekami tej samej klasy [23].
Benzodiazepiny, czyli leki nasilające działanie GABA na receptorze GABA-A, zmieniają architekturę snu w inny sposób. W przeglądzie systematycznym zwiększały udział stadium N2, a skracały czas snu wolnofalowego i fazy REM [24]. Autorzy przeglądu wiążą większy udział N2 bez przebudzeń z subiektywnym poczuciem lepszego snu mimo ubytku N3 [24].
W metaanalizie 65 badań u dorosłych z wiekiem malał odsetek snu wolnofalowego i fazy REM, a rosły odsetki stadiów 1 i 2 [25]. U osób starszych moc fal wolnych nad korą przedczołową w pierwszych cyklach jest średnio o 75–80% niższa niż u młodych dorosłych [26]. Spadek zależy od płci. W badaniu populacyjnym 2685 osób kobiety miały średnio o 106% więcej snu wolnofalowego niż mężczyźni, a pogorszenie snu z wiekiem dotyczyło głównie mężczyzn [27]. Leki działają zatem na przełączniki pnia mózgu i podwzgórza, a wiek przede wszystkim na zdolność kory do wytwarzania fal wolnych.
2.5. Powiązania z innymi szlakami
Fazy snu NREM i REM są sprzężone z wydzielaniem hormonów, termoregulacją i usuwaniem metabolitów z mózgu. Każde z tych sprzężeń dotyczy głównie snu NREM.
Sprzężenie z hormonem wzrostu opisano w 1968 roku [28]. W tym badaniu u młodych dorosłych główny szczyt hormonu wzrostu w osoczu pojawiał się wraz z początkiem snu głębokiego i trwał 1,5–3,5 godziny [28]. Opóźnienie zaśnięcia przesuwało ten szczyt, a ponowne zaśnięcie po kilkugodzinnym wybudzeniu wywoływało kolejny [28]. Wydzielanie hormonu wzrostu jest więc związane z samym snem, a nie z porą zegarową. Początek snu wolnofalowego zbiega się też ze zmianami hormonalnymi, które wpływają na gospodarkę glukozą [29].
Sen NREM przebiega przy obniżaniu się temperatury wewnętrznej ciała i temperatury mózgu [18]. W badaniu na myszach sen zwiększał objętość przestrzeni międzykomórkowej kory o około 60% [30]. Przyspieszało to wymianę płynu mózgowo-rdzeniowego z płynem śródmiąższowym i usuwanie β-amyloidu, białka odkładanego w chorobie Alzheimera [30]. Badanie przeprowadzono na myszach i nie rozstrzyga ono, która faza snu u człowieka odpowiada za ten efekt. Z tych sprzężeń wynika, że zaburzenie proporcji faz odbija się poza korą: na wydzielaniu hormonów, gospodarce glukozą i środowisku płynowym mózgu.
3. Fizjologia a patologia
3.1. Rola snu NREM i REM w warunkach prawidłowych
Fazy snu NREM i REM pełnią różne role, a u ludzi badano przede wszystkim ich udział w utrwalaniu pamięci. Według obecnego modelu w czasie snu wolnofalowego mózg ponownie uruchamia świeżo zapisane ślady pamięciowe [31]. Ta reaktywacja przenosi je z hipokampu do sieci korowych pamięci długotrwałej [31]. Następująca po nim faza REM, według tego samego modelu, może utrwalać przekształcone wspomnienia [31].
Związek przyczynowy wspiera eksperyment u ludzi. Dźwięki podawane w fazie wznoszącej fal wolnych wzmacniały te fale i sprzężone z nimi wrzeciona senne [32]. Następnego dnia badani lepiej odtwarzali materiał pamięci deklaratywnej, a dźwięki podawane poza tą fazą nie działały [32]. Wrzeciona senne należą do najbardziej dziedzicznych cech EEG snu i wiążą się z plastycznością synaptyczną oraz zdolnościami poznawczymi [6]. Autorzy badania zespołów K uznali ich budowę za zgodną z hipotezą, że chronią one ciągłość snu i uczestniczą w utrwalaniu pamięci [8].
Rola fazy REM w przetwarzaniu emocji ma status hipotezy popartej pojedynczymi badaniami. W badaniu z czynnościowym rezonansem magnetycznym czynność EEG fazy REM wiązała się z nocnym osłabieniem reakcji ciała migdałowatego na wcześniej oglądane bodźce emocjonalne [33]. Następnego dnia badani oceniali te bodźce jako mniej poruszające [33]. Hipoteza zakłada, że sprzyja temu brak noradrenaliny w fazie REM przy jednoczesnej aktywności sieci ciała migdałowatego i hipokampu [33]. Obie fazy pełnią więc uzupełniające się funkcje, co tłumaczy, dlaczego niedobór każdej z nich jest wyrównywany osobno.
3.2. Zmiany udziału stadiów – skutki
Zmiany udziału faz snu NREM i REM mają następstwa także wtedy, gdy łączny czas snu pozostaje prawidłowy. Skutki niedoboru snu wolnofalowego zbadano bezpośrednio u ludzi.
W badaniu u młodych zdrowych dorosłych całonocne wybiórcze tłumienie snu wolnofalowego, bez skrócenia całkowitego czasu snu, wyraźnie obniżyło wrażliwość tkanek na insulinę [29]. Trzustka nie zwiększyła odpowiednio wydzielania insuliny, więc tolerancja glukozy się pogorszyła [29]. Spadek wrażliwości na insulinę był tym większy, im bardziej zmniejszył się sen wolnofalowy [29]. Autorzy uznali, że niski udział snu wolnofalowego u osób starszych i otyłych może zwiększać ryzyko cukrzycy typu 2 [29]. U osób starszych ubytek fal wolnych wiąże się ponadto z gorszym utrwalaniem pamięci [26].
Następstwa niedoboru nie zawsze są niekorzystne. W badaniu 17 nieleczonych chorych na depresję wybiórcze tłumienie fal wolnych bez skracania snu zmniejszyło objawy depresyjne w samoocenie i w ocenie badaczy [34]. Badanie objęło wyłącznie chorych na depresję, więc nie opisuje następstw u osób zdrowych.
Po drugiej stronie stoi nadmiar fazy REM, określany jako zwiększone ciśnienie REM. Składają się na nie krótsza latencja REM, większa gęstość ruchów gałek ocznych i większy udział tej fazy. Metaanaliza badań polisomnograficznych powiązała zmiany ciśnienia REM z zaburzeniami afektywnymi, lękowymi, autyzmem i schizofrenią [35]. Proporcje faz są więc zmienną fizjologiczną o własnych następstwach, niezależnych od długości snu.
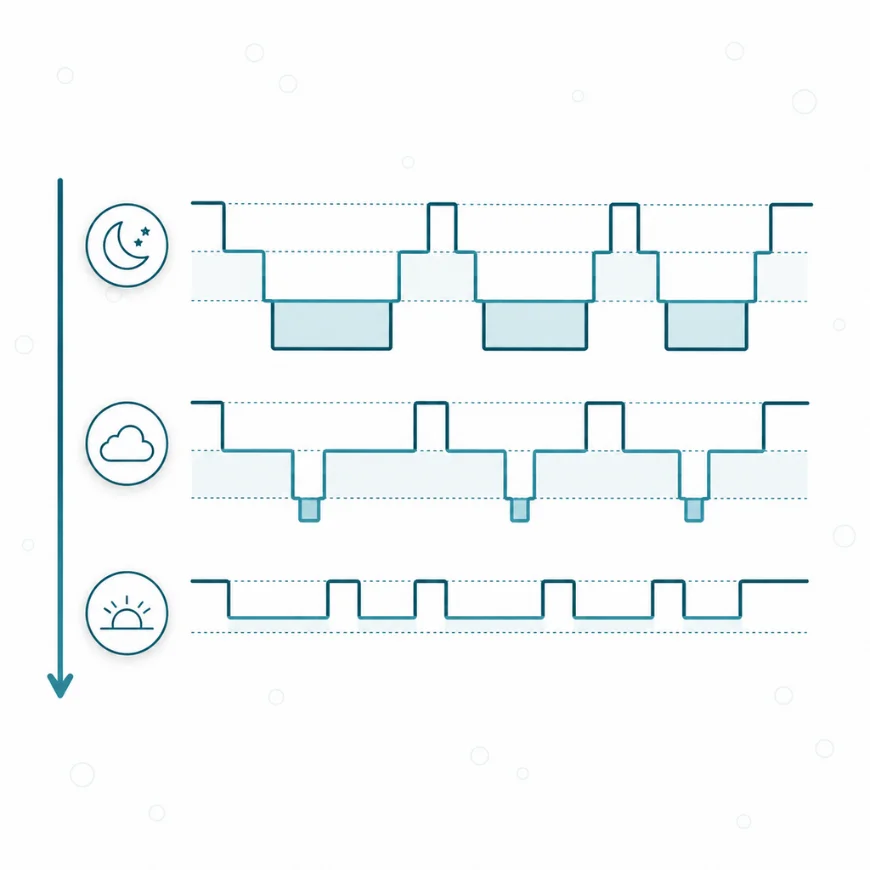
Z wiekiem ubywa przede wszystkim głębokiego snu wolnofalowego, a nie snu w ogóle. Powszechne u starszych pacjentów poczucie, że sen jest płytki, znajduje tu swoje bezpośrednie odzwierciedlenie w zapisie EEG
3.3. Udział faz NREM i REM w chorobach
Fazy snu NREM i REM uczestniczą w chorobach na dwa sposoby. Mogą być obszarem, w którym ujawnia się uszkodzenie układu nerwowego, albo stanem, w którym nasilają się objawy innej choroby.
Zaburzenie zachowania w czasie snu REM (ang. REM sleep behaviour disorder, RBD) polega na utracie atonii w fazie REM, przez co chory wykonuje ruchy odpowiadające treści marzeń sennych [11]. Izolowane RBD jest silnym wczesnym objawem choroby Parkinsona, otępienia z ciałami Lewy’ego i zaniku wieloukładowego [4]. Te trzy choroby łączy odkładanie w neuronach białka alfa-synukleiny. W wieloośrodkowej kohorcie 1280 chorych jawna choroba neurozwyrodnieniowa rozwijała się z częstością 6,3% rocznie, a po 12 latach obserwacji dotyczyła 73,5% chorych [4]. Uszkodzenie obwodów pnia mózgu, które wytwarzają atonię, wyprzedza zatem objawy ruchowe choroby Parkinsona.
Narkolepsja typu 1 wiąże się z utratą neuronów podwzgórza wytwarzających hipokretynę, czyli oreksynę [36]. Od typu 2 odróżnia ją katapleksja, czyli nagła utrata napięcia mięśni w czuwaniu [36]. Model przełącznika REM tłumaczy katapleksję jako wtargnięcie atonii, elementu fazy REM, w stan czuwania [19].
Parasomnie NREM, czyli lunatyzm, lęki nocne i wybudzenia ze splątaniem, są niepełnymi wybudzeniami z najgłębszego snu NREM [37]. Struktury ruchowe i limbiczne działają wtedy jak w czuwaniu, a sieci czołowo-ciemieniowe pozostają w śnie [37]. Epizody pojawiają się zwykle od 30 minut do 3 godzin po zaśnięciu, czyli w okresie przewagi stadium N3 [37]. Częstość parasomnii NREM maleje z 15–30% u dzieci do 2–4% u dorosłych [37].
Obturacyjny bezdech senny jest u wielu chorych cięższy w fazie REM niż w śnie NREM [38]. W fazie REM toniczna aktywność mięśnia bródkowo-językowego, który poszerza gardło, była podczas bezdechów niższa niż w stadium N2, co prawdopodobnie tłumaczy tę różnicę [38]. W depresji faza REM pojawia się wcześniej niż u zdrowych. Metaanaliza badań u chorych nieleczonych i bez chorób współistniejących potwierdziła skrócenie latencji REM i zwiększenie gęstości ruchów gałek ocznych w tej fazie [5].
Pięć chorób wiąże się z odmiennym zaburzeniem faz snu i ma inne znaczenie kliniczne.
| Choroba | Faza | Zmiana w zapisie snu | Znaczenie |
| RBD | REM | utrata atonii, ruchy w czasie snu | wczesny objaw synukleinopatii |
| Narkolepsja typu 1 | REM | wtargnięcie atonii w czuwanie (katapleksja) | utrata neuronów oreksynowych |
| Parasomnie NREM | N3 | niepełne wybudzenie z najgłębszego snu | częstsze u dzieci niż u dorosłych |
| Obturacyjny bezdech senny | REM | cięższe bezdechy | niższe napięcie mięśni gardła |
| Depresja | REM | krótsza latencja, większa gęstość ruchów oczu | zmiana nieswoista dla depresji |
Faza REM jest zatem ogniwem większości tych chorób, a sen NREM przede wszystkim parasomnii, częstszych u dzieci.
3.4. Modyfikacja behawioralna i dietetyczna
Fazy snu NREM i REM zmieniają się pod wpływem zachowań, które oddziałują na presję snu, temperaturę ciała i przekaźnictwo w mózgu. Wpływ alkoholu opisano w przeglądzie wszystkich znanych badań u zdrowych ochotników.
Alkohol w każdej badanej dawce skracał czas zasypiania [39]. Utrwalał sen w pierwszej połowie nocy, ale nasilał jego przerywanie w drugiej połowie [39]. Najbardziej powtarzalnym efektem wobec fazy REM było opóźnienie jej pierwszego okresu [39]. Przy dawkach umiarkowanych i dużych malał też łączny udział fazy REM, a większość badań wykazała więcej snu wolnofalowego w pierwszej połowie nocy [39].
W metaanalizie 66 badań jednorazowy wysiłek fizyczny w niewielkim stopniu wydłużał sen wolnofalowy i skracał stadium 1 [40]. Umiarkowanie zmniejszał czas czuwania po zaśnięciu i słabo wpływał na fazę REM [40]. Regularna aktywność fizyczna poprawiała głównie ciągłość i jakość snu, a siła efektu zależała od wieku, płci, pory i rodzaju wysiłku [40].
Ogrzanie skóry skraca u ludzi i innych ssaków czas zasypiania i sprzyja wejściu w sen NREM [18]. Hipoteza autorów przeglądu zakłada, że ciepło rozszerza naczynia skóry i przyspiesza w ten sposób spadek temperatury wewnętrznej [18]. Wspólną cechą tych czynników jest to, że zmieniają proporcje faz, a nie tylko długość snu.
3.5. Wsparcie suplementacyjne
Fazy snu NREM i REM zmieniały się w badaniach polisomnograficznych pod wpływem trzech substancji mających karty w dziale Suplementy: kofeiny, magnezu i waleriany. Kofeina działa na architekturę snu odwrotnie niż dwie pozostałe.
W metaanalizie 24 badań kofeina skracała całkowity czas snu o 45 minut i wydłużała zasypianie o 9 minut [15]. Zmniejszała też udział snu głębokiego o 1,4 punktu procentowego, a zwiększała udział stadium N1 o 1,7 punktu [15]. Magnez w badaniu z randomizacją u 12 osób w wieku 60–80 lat wydłużał czas snu wolnofalowego i zwiększał moc fal delta i sigma w EEG [41]. Autorzy wiązali to z działaniem magnezu jako naturalnego antagonisty receptora NMDA, czyli receptora glutaminianu przewodzącego pobudzenie, i agonisty receptora GABA-A [41].
Waleriana w badaniu z randomizacją u 16 chorych na bezsenność nie zmieniała struktury snu po jednorazowym podaniu [42]. Po wielokrotnym podawaniu skracała czas do pierwszego snu wolnofalowego z 21,3 minuty przy placebo do 13,5 minuty [42]. Melatonina w metaanalizie skracała zasypianie o około 7 minut, ale oceniane w niej wyniki obejmowały czas zasypiania, całkowity czas snu i jego jakość, a nie udział stadiów [43].
Trzy substancje różnią się kierunkiem i siłą dowodów wpływu na stadia snu.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Kofeina | antagonizm receptorów adenozyny osłabia presję snu | ↓ udział N3, ↑ udział N1, ↑ latencja snu | A |
| Magnez | postulowany antagonizm receptora NMDA i agonizm receptora GABA-A | ↑ czas snu wolnofalowego u osób starszych | B |
| Waleriana | mechanizm nieustalony | ↓ latencja snu wolnofalowego | B |
Dane dla magnezu i waleriany pochodzą z pojedynczych małych badań i wymagają potwierdzenia. Dawkowanie i interakcje wszystkich trzech substancji opisują karty działu Suplementy.
4. Uwagi praktyczne
4.1. Jak to zbadać
Fazy snu NREM i REM rozpoznaje się w praktyce klinicznej w polisomnografii, jedynym badaniu rejestrującym jednocześnie czynność mózgu, ruchy gałek ocznych i napięcie mięśni. Reguły AASM obejmują trzy odprowadzenia EEG, dwa odprowadzenia EOG i jedno odprowadzenie EMG z mięśni bródki [1]. Każdej 30-sekundowej epoce przypisuje się jedno stadium [1].
Wynikiem badania jest hipnogram, czyli wykres stadiów w funkcji czasu, oraz zestaw parametrów. Obejmuje on całkowity czas snu i wydajność snu, czyli odsetek czasu w łóżku spędzony we śnie [44]. Dalsze parametry to latencja snu, czyli czas do zaśnięcia, i czas czuwania po zaśnięciu (ang. wake after sleep onset, WASO) [44]. Raport podaje też odsetki poszczególnych stadiów i latencję REM [44].
Wartości prawidłowe zależą od wieku i płci. W metaanalizie 169 badań z udziałem 5273 zdrowych dorosłych z każdą dekadą życia całkowity czas snu skracał się o 10,1 minuty, a WASO wydłużał się o 9,7 minuty [44]. Odsetek N1 rósł o 0,5 punktu procentowego na dekadę [44]. Pojedynczy hipnogram opisuje jedną noc w warunkach pracowni i sam nie stanowi rozpoznania choroby.
Urządzenia konsumenckie, takie jak opaski, zegarki i czujniki pod materacem, nie rejestrują EEG i szacują stadia z ruchu, tętna lub oddechu. W porównaniu z polisomnografią u 34 młodych dorosłych większość z nich wykrywała sen z czułością co najmniej 0,93 [45]. Czuwanie rozpoznawały ze swoistością 0,18–0,54, a ocena stadiów była niespójna [45]. W innym badaniu jeden z zegarków zaniżał czas snu głębokiego o 43 minuty, a drugi o 15 minut, podczas gdy pierścień nie różnił się od polisomnografii [46].
4.2. Na co warto zwrócić uwagę
Jedno z nieporozumień dotyczy utożsamiania snu głębokiego z fazą REM. Sen głęboki to stadium N3 z falami wolnymi i zachowanym napięciem mięśni [1]. Faza REM ma zapis EEG zbliżony do czuwania i odrębne ośrodki w pniu mózgu [19]. Wynik „dużo snu głębokiego” i wynik „dużo snu REM” opisują więc dwa różne stany mózgu.
Przekonanie o stałym, 90-minutowym cyklu snu upraszcza dane. Wartość 90 minut jest średnią z wielu cykli [2]. Sam okres NREM w pierwszym cyklu trwa u człowieka od 40 minut do ponad godziny [3]. Kolejne cykle różnią się ponadto składem, bo moc fal wolnych maleje z każdym cyklem [20]. Wyznaczanie pory przebudzenia jako wielokrotności 90 minut opiera się zatem na założeniu, którego zapis snu nie potwierdza.
Dane o spadku snu wolnofalowego z wiekiem nie są jednoznaczne. Starsza metaanaliza wykazała taki spadek u dorosłych, zaznaczając jednak, że wielkość efektów zależała od staranności doboru uczestników [25]. Nowsza metaanaliza, ograniczona do zdrowych osób ocenianych według kryteriów AASM, nie wykazała istotnej zmiany odsetka N3 i REM z wiekiem [44]. Rozbieżność sugeruje, że część spadku przypisywanego wiekowi wynika z chorób i leków towarzyszących starzeniu się.
Skrócona latencja REM nie jest swoistym znacznikiem depresji. Metaanaliza badań polisomnograficznych nie znalazła żadnego parametru snu zmienionego wyłącznie w jednym zaburzeniu psychicznym [35]. Wynik polisomnografii opisuje więc zmiany snu, a nie rozpoznanie psychiatryczne.
Ruchy, krzyk lub uderzanie w czasie snu mogą odpowiadać utracie atonii fazy REM. Rozpoznanie RBD wymaga potwierdzenia tej utraty w polisomnografii [4]. Ze względu na związek RBD z chorobami neurozwyrodnieniowymi ocena takich objawów należy do lekarza.