
1. Profil substancji
1.1. Definicja i klasyfikacja
Insulinopodobny czynnik wzrostu 1 (ang. insulin-like growth factor 1, IGF-1) to peptydowy hormon i czynnik wzrostu zbudowany z jednego łańcucha 70 aminokwasów [1]. Należy do rodziny insulinopodobnych czynników wzrostu, którą tworzą trzy ligandy (IGF-1, IGF-2 i insulina), trzy receptory oraz sześć białek wiążących IGF (ang. IGF-binding proteins, IGFBP) [2]. Białka wiążące to białka osocza i płynu tkankowego, które wiążą IGF i decydują o tym, ile z nich dotrze do receptorów. Nazwa rodziny pochodzi od podobieństwa budowy IGF-1 do proinsuliny, czyli prekursora insuliny [1]. Starsze prace nazywają tę samą cząsteczkę somatomedyną C [3].
IGF-1 działa dwiema drogami. Jako hormon krąży we krwi, dokąd trafia głównie z wątroby, a jako czynnik lokalny powstaje w wielu tkankach i działa na komórki, które go wytworzyły, albo na komórki sąsiednie [3, 4]. Pierwszą drogę nazywa się działaniem wewnątrzwydzielniczym, czyli endokrynnym, drugą działaniem autokrynnym i parakrynnym. W osi somatotropowej IGF-1 jest ogniwem następującym po hormonie wzrostu. Hormon wzrostu pobudza wytwarzanie IGF-1, a IGF-1 przenosi na tkanki część jego działań wzrostowych, choć hormon wzrostu działa też niezależnie od IGF-1 [4, 5].
IGF-1 bywa mylony z trzema cząsteczkami, a kryterium różnicującym jest miejsce powstania i receptor, przez który działa dana cząsteczka. Hormon wzrostu (ang. growth hormone, GH) jest hormonem przysadki mózgowej, natomiast IGF-1 powstaje w tkankach docelowych tego hormonu, głównie w wątrobie [5]. Insulina powstaje w komórkach beta trzustki i działa przez receptor insulinowy, IGF-1 zaś przez własny receptor, pokrewny receptorowi insulinowemu [6, 7]. IGF-2 to drugi ligand rodziny, kodowany przez gen podlegający piętnowaniu genomowemu i szczególnie ważny dla wzrostu w okresie rozwoju [8]. Mekasermina nie jest odrębną substancją, lecz rekombinowaną postacią IGF-1 stosowaną jako lek [9].
Pojęcie IGF-1 obejmuje zarówno cząsteczkę krążącą we krwi, jak i IGF-1 wytwarzany lokalnie w tkankach oraz jego postać rekombinowaną. Oznaczenie IGF-1 w surowicy jest podstawą rozpoznawania i monitorowania zaburzeń wydzielania hormonu wzrostu [10]. Sygnalizacja IGF wiąże się też z podstawowymi procesami starzenia, a stężenie IGF-1 we krwi z ryzykiem kilku nowotworów u ludzi [11, 12].
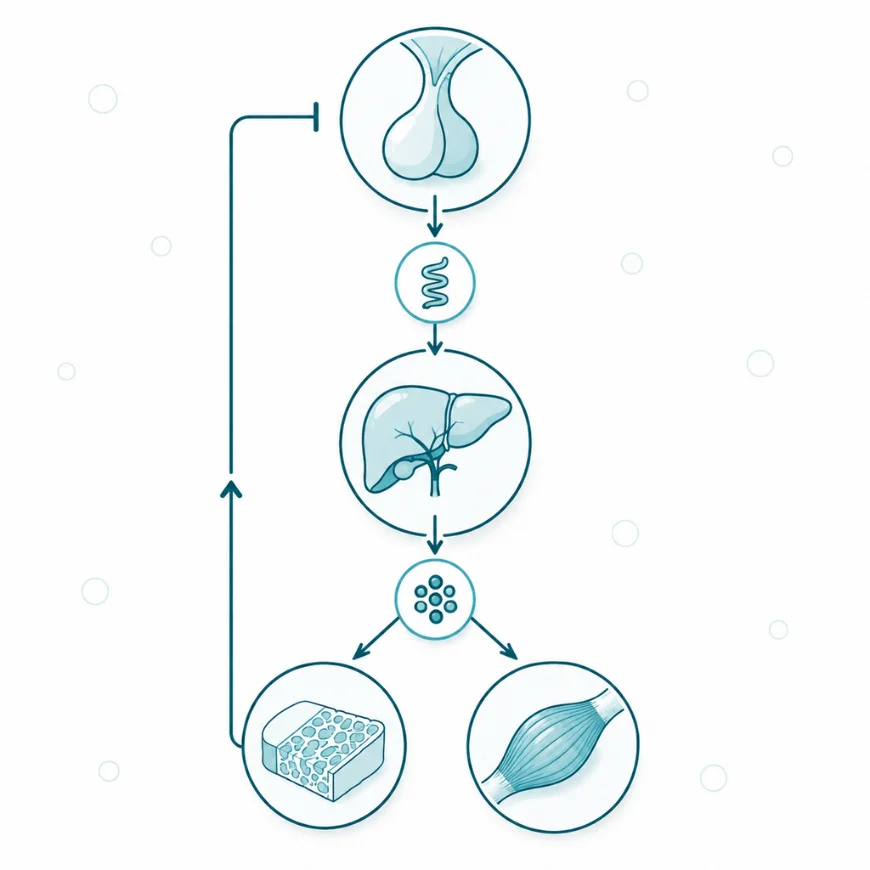
IGF-1 powstaje w wątrobie pod wpływem hormonu wzrostu i pośredniczy w większości jego działań na tkanki.
1.2. Budowa i właściwości
IGF-1 jest małym białkiem o obliczonej masie cząsteczkowej 7649, którego pojedynczy łańcuch spinają trzy mostki disiarczkowe [1]. W sekwencji wyróżnia się odcinki nazwane przez analogię do proinsuliny. Pozycje 1–29 są homologiczne z łańcuchem B insuliny, pozycje 42–62 z łańcuchem A, a łączy je skrócony odcinek C złożony z 12 aminokwasów [1]. Na końcu karboksylowym IGF-1 ma dodatkowo ośmioaminokwasowy odcinek D, którego w proinsulinach nie ma [1].
IGF-1 pozostaje jednym łańcuchem, więc odcinek C jest częścią dojrzałej, czynnej cząsteczki [1]. Zachowane są wszystkie reszty cysteiny i glicyny oraz większość niepolarnych reszt rdzenia insuliny, co odpowiada przestrzennej budowie podobnej do insuliny [1]. Liczba różnic między IGF-1 a insulinami wskazuje, że gen wspólnego przodka uległ podwojeniu jeszcze przed pojawieniem się kręgowców [1]. Podobieństwo przestrzenne ma dwa następstwa czynnościowe. Pierwszym jest pokrewieństwo receptorów obu hormonów, które mogą tworzyć wspólne receptory hybrydowe [13]. Drugim jest hipoglikemizujące działanie wolnego IGF-1, czyli obniżanie stężenia glukozy we krwi podobnie jak przez insulinę [14].
IGF-1 jest peptydem rozpuszczalnym w wodzie, a we krwi krąży prawie w całości związany z białkami wiążącymi. Białka te wiążą IGF-1 z powinowactwem równym powinowactwu receptora albo większym [15]. Budowa decyduje więc o tym, że działanie metaboliczne IGF-1 zależy od proporcji między pulą związaną a pulą wolną.
1.3. Rys historyczny
W 1957 roku Salmon i Daughaday opisali czynnik surowicy, którego aktywność zależała od hormonów i który pobudzał wbudowywanie siarczanu do chrząstki in vitro [16]. Z tej obserwacji wyrosła hipoteza somatomedynowa. Zakładała ona, że wzrost somatyczny kontroluje hormon wzrostu z przysadki, a jego działanie przenosi krążący czynnik wytwarzany wyłącznie w wątrobie [3]. W 1978 roku Rinderknecht i Humbel ustalili pełną sekwencję aminokwasową IGF-1 wyizolowanego z surowicy i opisali jego homologię z proinsuliną [1].
Odkrycie, że IGF-1 powstaje w większości tkanek, postawiło pytanie o udział IGF-1 działającego lokalnie [3]. W 1999 roku dwa zespoły wyłączyły gen Igf1 wyłącznie w hepatocytach myszy [17, 18]. Stężenie IGF-1 w surowicy spadło o 75%, a mimo to wzrost zwierząt po urodzeniu przebiegał prawidłowo [17]. Wynik potwierdził, że wątroba jest głównym źródłem krążącego IGF-1, lecz podważył tezę, że to krążący IGF-1 jest niezbędny do wzrostu [4, 18]. Stężenie wolnego IGF-1 pozostawało u tych myszy prawidłowe, co zostawiło otwartą kwestię, skąd pochodzi IGF-1 potrzebny do wzrostu [3].
1.4. Synteza i źródła
Głównym źródłem IGF-1 krążącego we krwi jest wątroba, w której hepatocyty wytwarzają go w odpowiedzi na hormon wzrostu [5]. Hormon wzrostu wiąże się z receptorami hepatocytu i uruchamia szlak kinazy Janusa (ang. Janus kinase, JAK) oraz białek STAT (ang. signal transducers and activators of transcription) [5]. Białka STAT to przekaźniki sygnału, które po fosforylacji przechodzą do jądra i włączają transkrypcję genów docelowych, w tym genu IGF-1. Kluczowym ogniwem jest białko STAT5b, bo mutacje jego genu wywołują niewrażliwość na hormon wzrostu i niedobór IGF-1 [8, 19].
Udział wątroby w puli krążącej zmierzono w modelach zwierzęcych. U myszy wyłączenie genu IGF-1 w hepatocytach obniżyło stężenie IGF-1 w surowicy o 75%, choć wątroba stanowi mniej niż 5% masy ciała [17]. Przeglądy kliniczne opisują IGF-1 surowicy człowieka jako wytwarzany głównie w wątrobie [5].
Poza wątrobą IGF-1 wytwarza większość tkanek, w tym mózg [4, 20]. Lokalny IGF-1 wystarcza do prawidłowego wzrostu myszy pozbawionych IGF-1 wątrobowego, co wskazuje na jego znaczenie niezależne od puli krążącej [4, 18]. Znaczenie genu IGF-1 dla wzrostu człowieka pokazuje opis chorego z delecją tego genu. Wystąpiło u niego zahamowanie wzrastania wewnątrzmacicznego i niedobór wzrostu po urodzeniu [21].
Stężenie IGF-1 we krwi jest więc przede wszystkim miarą wątrobowej odpowiedzi na hormon wzrostu, a nie całkowitej ilości IGF-1 działającej w tkankach [4].
1.5. Transport, frakcja wolna i klirens
IGF-1 prawie nie krąży we krwi w postaci wolnej. Sześć białek wiążących IGF wiąże około 98% krążącego IGF-1 [15]. Większość IGF-1 tworzy kompleks trójskładnikowy o masie około 150 kDa, złożony z IGF-1, IGFBP-3 i podjednostki kwasolabilnej (ang. acid-labile subunit, ALS) [22]. ALS to glikoproteina wytwarzana głównie przez hepatocyty, której syntezę silnie pobudza hormon wzrostu, a hamuje interleukina 1β [14]. ALS dołącza do IGFBP-3 albo IGFBP-5 dopiero wtedy, gdy białko wiążące jest obsadzone przez IGF [14].
Kompleks trójskładnikowy wydłuża okres półtrwania IGF-1 we krwi i ułatwia jego działanie hormonalne [22]. Stanowi też stabilny rezerwuar, który ogranicza potencjalnie hipoglikemizujące działanie wolnego IGF-1 [14]. U myszy pozbawionych ALS stężenie IGF-1 w surowicy spadło o 65% [22]. U ludzi całkowity niedobór ALS opisano u 61 osób z 31 rodzin. Chorzy mieli wzrost od 2 do 3 odchyleń standardowych poniżej średniej, opóźnione dojrzewanie i insulinooporność [23]. Autorzy tłumaczą łagodny wpływ na wzrost działaniem IGF-1 wytwarzanego lokalnie [23].
IGF-1 dociera do receptorów dopiero po uwolnieniu z białek wiążących. Tę rolę pełnią metaloproteinazy z rodziny pappalizyn, PAPP-A i PAPP-A2 (ang. pregnancy-associated plasma protein A), które tną wybrane IGFBP i zwiększają biodostępność IGF [24]. Ich aktywność hamują stanniokalcyny 1 i 2 [24]. Mutacje genu PAPPA2 u ludzi powodują niski wzrost przy wysokim stężeniu całkowitego IGF-1 i niskim stężeniu wolnego IGF-1 [25].
Z krwi IGF-1 znika szybciej, gdy spada ilość białek wiążących. Niedożywienie zwiększa klirens i rozkład IGF-1 w surowicy przez zmiany stężeń białek wiążących [26]. Rekombinowany IGF-1 ma krótszy okres półtrwania u chorych z niskim IGFBP-3 i ALS niż u osób zdrowych [5]. Całkowite stężenie IGF-1 w surowicy opisuje zatem głównie pulę związaną, a o sile sygnału w tkankach decyduje także tempo uwalniania IGF-1 z tej puli [24, 25].
2. Mechanizm działania i funkcje
2.1. Receptory IGF-1
Głównym receptorem IGF-1 jest receptor IGF-1 (ang. IGF-1 receptor, IGF-1R), czyli receptor błonowy o aktywności kinazy tyrozynowej [6]. Kinaza tyrozynowa to enzym, który przenosi resztę fosforanową na tyrozynę w białkach docelowych. Receptor składa się z podjednostek alfa, które wiążą ligand na zewnątrz komórki, oraz podjednostek beta z domeną kinazową po stronie cytoplazmy [6]. IGF-1R jest w 70% homologiczny z receptorem insulinowym, a w domenie kinazy tyrozynowej w 84% [7].
Receptor insulinowy występuje w dwóch izoformach, IR-A i IR-B, które powstają przez alternatywne składanie eksonu 11 [13]. Izoforma IR-A wiąże z dużym powinowactwem IGF-2, dominuje w życiu płodowym i występuje także w dorosłym mózgu [13]. Podjednostki receptora insulinowego i IGF-1R mogą łączyć się w receptory hybrydowe, które zwiększają wrażliwość komórki na IGF [13]. Rola tych hybryd w fizjologii, w cukrzycy i w komórkach nowotworowych nie jest w pełni poznana [13].
Znaczenie IGF-1R dla wzrostu człowieka pokazują mutacje jego genu. Wywołują one niewrażliwość na IGF-1 z upośledzeniem wzrostu przed urodzeniem i po nim [19]. Chorzy z opornością na IGF-1 mają przy tym podwyższone stężenie IGF-1 i prawidłowe lub wysokie stężenie hormonu wzrostu [19].
Skład receptorów na powierzchni komórki, czyli proporcja IGF-1R, izoform receptora insulinowego i receptorów hybrydowych, wpływa więc na to, jak silnie dana komórka odpowiada na IGF [13].
2.2. Kaskada sygnałowa
W stanie spoczynku kinaza IGF-1R pozostaje nieaktywna. Związanie IGF-1 z podjednostką alfa zmienia konformację podjednostki beta i uruchamia jej aktywność kinazową [6]. Aktywny receptor fosforyluje białka substratowe receptora insulinowego (ang. insulin receptor substrates, IRS) oraz białko adaptorowe SHC (ang. Src homology collagen) [6]. Ufosforylowane reszty tyrozyny w tych białkach stają się miejscami przyłączenia białek z domeną homologii Src 2 (SH2), która rozpoznaje fosfotyrozynę [6].
Pierwsze ramię sygnału służy głównie budowie i przeżyciu komórki. Do białek IRS przyłącza się podjednostka regulatorowa p85 kinazy 3-fosfatydyloinozytolu (PI3K), czyli enzymu, który wytwarza w błonie lipidowy przekaźnik sygnału [6]. Od PI3K sygnał biegnie do kinazy Akt, zwanej też kinazą białkową B [27]. Akt nasila syntezę białek przez kinazę mTOR (ang. mechanistic target of rapamycin) i kinazę syntazy glikogenu 3β (GSK3β) [27]. Jednocześnie hamuje rozkład białek przez unieczynnienie czynników transkrypcyjnych FoxO (ang. forkhead box O), które włączają geny układów rozkładających białka [27].
Drugie ramię prowadzi do jądra komórkowego. Ufosforylowane białko SHC wiąże białko adaptorowe GRB2 (ang. growth factor receptor-bound 2), które uruchamia białko Ras i szlak kinaz aktywowanych mitogenami (ang. mitogen-activated protein kinases, MAPK) [6]. Kinazy MAPK przenoszą sygnał do jądra i zmieniają ekspresję genów związanych z podziałem i różnicowaniem komórki. Aktywność obu szlaków jest potrzebna do biologicznych działań IGF, czyli proliferacji, różnicowania i przeżycia komórek [6]. Sygnał IGF-1R krzyżuje się przy tym z sygnałami insuliny, innych czynników wzrostu i cytokin [28].
Stan końcowy zależy od tego, które ramię przeważa w danej komórce. W mięśniu przewaga szlaku PI3K i Akt przesuwa równowagę między syntezą a rozkładem białek w stronę syntezy [27]. Szlak MAPK sprzyja podziałom komórek, dlatego IGF-1 i IGF-2 opisuje się jako silne mitogeny, czyli czynniki pobudzające podziały [2]. Stąd bierze się zainteresowanie osią IGF zarówno w fizjologii wzrostu, jak i w badaniach nad nowotworami [2].
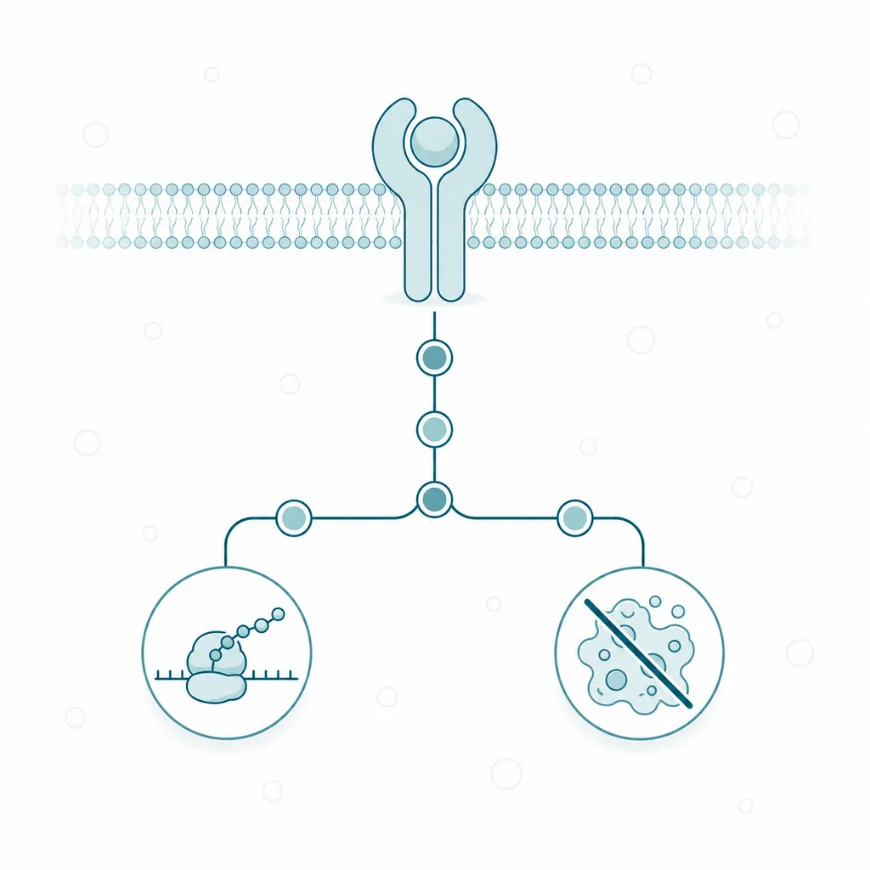
Receptor uruchamia dwie gałęzie: syntezę białek i hamowanie apoptozy. Stąd jednoczesny wpływ na wzrost i przeżycie komórki.
2.3. Funkcje IGF-1
2.3.1. Wzrost liniowy i kość
Wzrost kości na długość zachodzi w płytkach wzrostowych, w których chondrocyty dzielą się, powiększają i zostają zastąpione tkanką kostną. U myszy pozbawionych jednocześnie wątrobowego IGF-1 i ALS stężenie IGF-1 w surowicy spadło poniżej progu potrzebnego do prawidłowego wzrostu [22]. Zwierzęta te miały mniejsze płytki wzrostowe piszczeli, z niższą strefą proliferacji i niższą strefą chondrocytów przerosłych [22]. Podawanie IGF-1 przywróciło wysokość płytki wzrostowej [22]. Myszy te miały też o 10% niższą gęstość mineralną kości oraz o ponad 35% mniejszy obwód okostnowy i grubość warstwy korowej [22].
U ludzi skalę tego działania pokazuje zespół Larona, w którym tkanki nie odpowiadają na hormon wzrostu i brakuje IGF-1. Dorośli chorzy osiągają 120–130 cm wzrostu [29]. Autorzy tego samego przeglądu przypisują osi hormon wzrostu–IGF-1 około jednej trzeciej wzrostu dorosłego człowieka [29]. Chorzy z mutacjami PAPPA2, u których wolny IGF-1 jest niski, mają gęstość mineralną kości poniżej przeciętnej [25].
IGF-1 działa więc na kość dwojako. Wydłuża ją przez płytkę wzrostową i buduje jej masę, a krążąca pula musi przekroczyć pewien próg, żeby oba działania wystąpiły [22].
2.3.2. Mięsień szkieletowy
W mięśniu szkieletowym IGF-1 działa przez receptor IGF-1R, kinazę Akt i kinazę mTOR, które zwiększają syntezę białek włókien mięśniowych [27]. Ta sama kinaza Akt hamuje rozkład białek, bo unieczynnia czynniki FoxO włączające geny układów proteolitycznych [27]. W modelach genetycznych u myszy szlak IGF-1 i Akt okazał się niezbędny do wzrostu mięśnia w okresie rozwoju i do jego regeneracji po uszkodzeniu [27]. Jego udział w przeroście dorosłego mięśnia pod wpływem obciążenia mechanicznego jest mniej jasny [27].
Z tego powodu szlak IGF-1 i Akt jest badany jako cel leczenia zaniku mięśni w chorobach przewlekłych i w starzeniu [27]. Dane z modeli zwierzęcych nie przesądzają jednak, czy podwyższenie IGF-1 we krwi dorosłego człowieka zwiększa masę mięśni. Znaczenie IGF-1 dla mięśnia jest zatem najlepiej udokumentowane dla wzrostu i odnowy tkanki, a słabiej dla reakcji dorosłego mięśnia na trening.
2.3.3. Gospodarka glukozowa
Działanie IGF-1 na metabolizm glukozy wynika z jego podobieństwa do insuliny i z pokrewieństwa ich receptorów. Najwyraźniej widać je podczas leczenia rekombinowanym IGF-1. Połączenie rekombinowanego IGF-1 z rekombinowanym IGFBP-3 wydłużało okres półtrwania leku i mogło ograniczać hipoglikemię [5]. Hipoglikemia jest najczęstszym działaniem niepożądanym mekaserminy u dzieci z ciężkim pierwotnym niedoborem IGF-1 [29]. Ryzyko jest większe u chorych z zespołem Larona i u tych, którzy mieli epizody hipoglikemii przed leczeniem [29].
Niedobór sprawnie działającego IGF-1 łączy się z kolei z gorszą odpowiedzią tkanek na insulinę. Insulinooporność opisano u osób z całkowitym niedoborem ALS [23]. Występowała też u chorych z mutacjami PAPPA2, u których leczenie rekombinowanym IGF-1 poprawiło wrażliwość na insulinę [25]. Modele mysie niedoboru IGF-1 wskazują, że IGF-1 i hormon wzrostu współdziałają w regulacji przemian węglowodanów i lipidów [7].
IGF-1 działa więc jako hormon wspierający działanie insuliny, a jego nadmiar w postaci wolnej niesie ryzyko hipoglikemii.
2.3.4. Mózg
IGF-1 działa w mózgu jako czynnik pochodzący z krwi i jako czynnik wytwarzany na miejscu. Peptydy insulinopodobne, wśród nich IGF-1, uczestniczą w rozwoju i różnicowaniu mózgu [20]. W mózgu dorosłym wpływają na plastyczność neuronów i na pamięć przestrzenną [20].
Najmocniejsze dowody na udział krążącego IGF-1 pochodzą z badań na szczurach. Wysiłek fizyczny zwiększał u nich wychwyt IGF-1 z krwi do wybranych obszarów mózgu, w tym do hipokampa [30]. Przeciwciała blokujące wejście krążącego IGF-1 do mózgu całkowicie znosiły wywołany wysiłkiem wzrost liczby nowych neuronów w hipokampie [30]. Podskórne podanie IGF-1 zwierzętom nietrenującym wyraźnie zwiększało natomiast neurogenezę [30]. IGF-1 z krwi pokonuje zatem barierę krew–mózg w ilości wystarczającej do zmiany czynności hipokampa szczura.
U ludzi dostępne są głównie badania obserwacyjne, które łączą wyższe stężenie IGF-1 z większą objętością mózgu [31]. Przeniesienie mechanizmu z modeli zwierzęcych na człowieka pozostaje więc hipotezą, a nie ustalonym faktem.
2.4. Regulacja stężenia i zmienność dobowa
Najsilniejszym regulatorem wątrobowej syntezy IGF-1 jest hormon wzrostu [5]. IGF-1 zwrotnie hamuje wydzielanie tego hormonu, co widać, gdy spadek IGF-1 zwiększa wydzielanie hormonu wzrostu [32]. Drugim regulatorem jest stan odżywienia. Niedobór energii lub białka wyraźnie obniża stężenie IGF-1, a u dorosłych podaż energii wydaje się ważniejsza niż podaż białka [26]. W modelach zwierzęcych przy głodzeniu wątroba traci część receptorów hormonu wzrostu, a przy niedoborze białka zaburzeniu ulegają etapy sygnału leżące za receptorem [26]. W tych samych modelach spadek IGF-1 przy ograniczeniu diety nie zależał od zmian wydzielania hormonu wzrostu [26]. Mechanizm ten ustalono na zwierzętach, a u ludzi opisano sam spadek stężenia IGF-1 przy niedożywieniu [26].
Estrogeny działają zależnie od drogi podania. W badaniu kobiet po menopauzie doustny etynyloestradiol obniżał IGF-1 z 0,70 do 0,47 U/ml, a średnie dobowe stężenie hormonu wzrostu rosło z 2,0 do 7,0 mIU/l, czyli ponad trzykrotnie [32]. Estradiol podawany przez skórę podnosił natomiast IGF-1 do wartości bliskich stężeniom u kobiet przed menopauzą [32]. Autorzy tłumaczą różnicę efektem pierwszego przejścia przez wątrobę [33]. Estrogen wchłonięty z jelita trafia najpierw do wątroby i hamuje tam syntezę IGF-1, a słabsze sprzężenie zwrotne zwiększa wydzielanie hormonu wzrostu [32]. W ciąży łożysko wytwarza wariant hormonu wzrostu, który stopniowo zastępuje hormon przysadkowy i reguluje stężenie IGF-1 u matki [34].
Stężenie IGF-1 zmienia się wyraźnie z wiekiem. Spada zaraz po urodzeniu, rośnie do szczytu w okresie dojrzewania około 15. roku życia, a potem stale się obniża [10]. Kobiety mają przez całe życie nieco niższe średnie stężenia niż mężczyźni [10]. Zmienność dobowa jest natomiast niewielka. Stężenie IGF-1 jest stabilne w ciągu doby, a jego wrażliwość na podaż składników odżywczych i stosunkowo krótki okres półtrwania czynią z niego marker stanu odżywienia [26]. Pojedyncze oznaczenie IGF-1 jest więc bardziej miarodajne niż pojedyncze oznaczenie hormonu wzrostu, którego okres półtrwania jest bardzo krótki [35].
3. Zaburzenia i modyfikacja
3.1. Niedobór – przyczyny i następstwa
Niedobór IGF-1 bywa pierwotny, gdy zawodzi wytwarzanie lub dostępność samego IGF-1, albo wtórny do niedoboru hormonu wzrostu. Pierwotny niedobór IGF-1 rozpoznaje się, gdy niskiemu IGF-1 towarzyszy prawidłowe lub wysokie stężenie hormonu wzrostu [19]. W postaci ciężkiej zarówno wzrost, jak i stężenie IGF-1 leżą co najmniej 3 odchylenia standardowe poniżej średniej [36].
Najlepiej poznaną postacią pierwotnego niedoboru jest zespół Larona, wywołany mutacjami genu receptora hormonu wzrostu [36]. Zespół niewrażliwości na hormon wzrostu opisał po raz pierwszy w 1966 roku zespół Zvi Larona [8, 19]. W dzieciństwie wzrost chorych leży od 6 do 12 odchyleń standardowych poniżej średniej [29]. Mutacje genów STAT5B, IGF1, IGFALS i PAPPA2 upośledzają wytwarzanie, transport lub uwalnianie IGF-1, a mutacje IGF1R dają obraz niewrażliwości na IGF-1 [8]. Defektom wewnątrzkomórkowego szlaku hormonu wzrostu, na przykład w genie STAT5B, towarzyszą zaburzenia odporności i autoimmunizacja [19]. Badania molekularne rozszerzyły w ten sposób kliniczną definicję niewrażliwości na hormon wzrostu poza mutacje samego receptora [37].
Wtórnie IGF-1 obniża niedobór hormonu wzrostu, a także niedożywienie energetyczne i białkowe [26]. Obniżają go również przewlekłe choroby wątroby. W badaniu opartym na UK Biobank z udziałem 325 981 osób IGF-1 należał do dwóch najsilniejszych czynników prognozujących zgon z przyczyn wątrobowych [38]. W kohortach walidacyjnych tego badania IGF-1 był niższy przy bardziej zaawansowanym zwłóknieniu i marskości wątroby [38]. Głównym następstwem ciężkiego niedoboru u dzieci jest niski wzrost, a rozpoznanie i dostęp do leczenia bywają opóźnione [36].
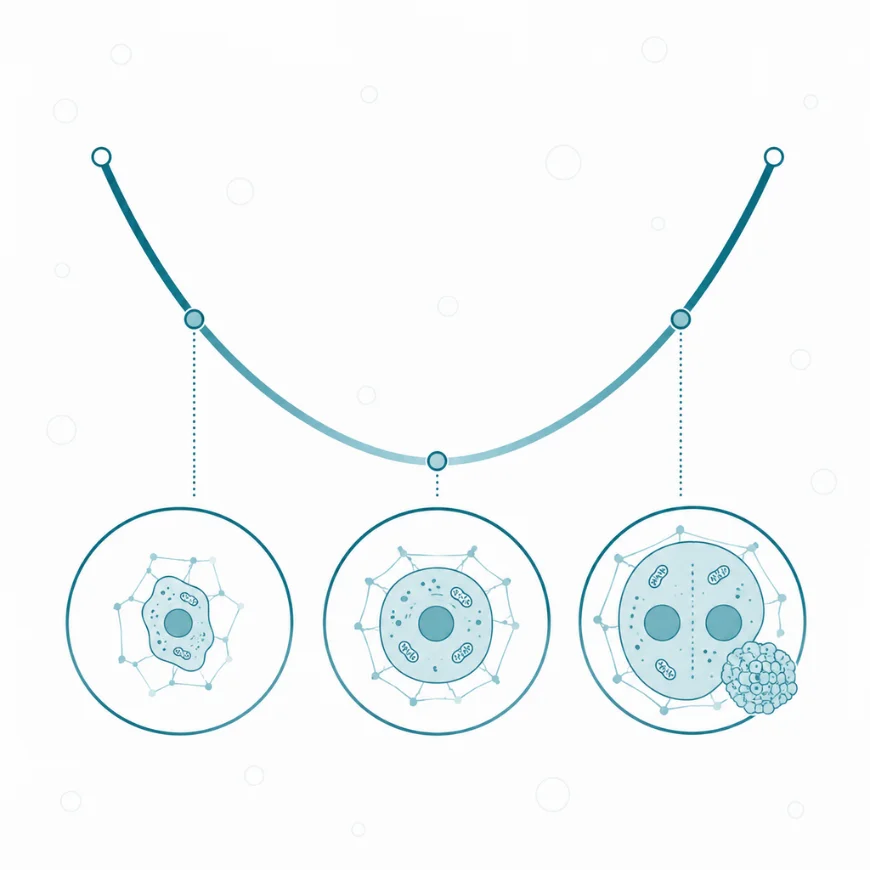
Zależność ma kształt litery U — zarówno niedobór, jak i nadmiar wiążą się z gorszymi wynikami zdrowotnymi.
3.2. Nadmiar – przyczyny i następstwa
Utrwalony nadmiar IGF-1 u dorosłych występuje w akromegalii, czyli chorobie wywołanej nadmiernym wydzielaniem hormonu wzrostu [39]. Hormon wzrostu wydziela w tej chorobie gruczolak przysadki, a obserwacja chorego obejmuje obrazowanie pozostałości lub nawrotu gruczolaka [40]. Nadmiar hormonu wzrostu pobudza wątrobową syntezę IGF-1, a IGF-1 pośredniczy w wielu objawach choroby. Wskazuje na to badanie z randomizacją pegwisomantu, leku blokującego receptor hormonu wzrostu [39]. Obniżenie IGF-1 zmniejszało u chorych obwód palców, obrzęk tkanek miękkich, nadmierne pocenie się i zmęczenie [39].
Nadmiar dotyczy też kości. Akromegalia przyspiesza przebudowę tkanki kostnej i utrzymuje wysokie ryzyko złamań kręgów [41]. Biochemiczna remisja, czyli normalizacja IGF-1 i hormonu wzrostu, jest podstawową miarą skuteczności leczenia, choć wynik ocenia się łącznie z obrazem klinicznym [40].
Wysokie stężenie IGF-1 nie zawsze oznacza chorobę. Fizjologicznie najwyższe wartości przypadają na okres dojrzewania [10]. Mylący bywa też wysoki wynik przy genetycznych zaburzeniach uwalniania IGF-1 z białek wiążących [25]. Wysoki wynik oznaczenia opisuje więc pulę związaną z białkami, a jego znaczenie kliniczne zależy od wieku i od tego, czy tkanki otrzymują sygnał.
3.3. Rola IGF-1 w patogenezie chorób
Mutacje osłabiające sygnalizację insuliny i IGF-1 wydłużają życie drożdży, nicieni, muszek owocowych i myszy [42]. U nicienia Caenorhabditis elegans mutacje genu daf-2, kodującego odpowiednik receptora insulinowego i IGF-1R, wydłużały życie ponad dwukrotnie [43, 44]. Myszy z jedną kopią genu Igf1r żyły średnio o 26% dłużej niż zwierzęta z dwiema kopiami [44]. Wydłużenie było istotne u samic, które żyły o 33% dłużej, a u samców wyniosło 16% i nie osiągnęło istotności statystycznej [44]. Nie miały przy tym karłowatości ani zaburzeń płodności i były bardziej odporne na stres oksydacyjny [44]. U ludzi w grupie aszkenazyjskich stulatków częściej występowały heterozygotyczne mutacje genu IGF1R, związane z wysokim IGF-1 i obniżoną aktywnością receptora [42].
Dane o chorych z zespołem Larona wskazują na ochronę przed częścią chorób związanych z wiekiem. W 22-letniej obserwacji ekwadorskiej grupy chorych wystąpił jeden nowotwór złośliwy, który nie doprowadził do zgonu, i żaden przypadek cukrzycy [45]. W grupie kontrolnej nowotwory występowały u 17%, a cukrzyca u 5% osób [45]. Chorzy mieli niższe stężenie insuliny i wskaźnik insulinooporności HOMA-IR (ang. homeostatic model assessment of insulin resistance) 0,34 wobec 0,96 u krewnych [45]. U kobiet w wieku ponad 90 lat IGF-1 poniżej mediany wiązał się z dłuższym przeżyciem, u mężczyzn takiej zależności nie stwierdzono [46].
W populacji ogólnej zależność nie jest liniowa. Metaanaliza 12 badań z udziałem 14 906 osób wykazała większą śmiertelność zarówno przy niskim, jak i przy wysokim IGF-1 w porównaniu z wartościami środkowymi [47]. Zależność dawki i skutku miała kształt litery U także dla zgonów z powodu nowotworów i chorób sercowo-naczyniowych [47]. W UK Biobank u 380 997 osób najniższy decyl IGF-1 wiązał się z o 39% wyższym ryzykiem zgonu, a najwyższy z o 17% wyższym niż decyl środkowy [48].
Najlepiej zbadany związek IGF-1 z chorobą dotyczy nowotworów. W UK Biobank każde 5 nmol/l wyższego IGF-1 wiązało się z większym ryzykiem raka tarczycy, jelita grubego, piersi i prostaty [12]. Dla raka jelita grubego, piersi i prostaty ryzyko względne rosło o 8–11% na każde 5 nmol/l [12]. Ryzyko raka jajnika i wątroby było przy tym mniejsze, a autorzy nie wykluczają odwrotnego kierunku zależności [12]. Analizy randomizacji mendlowskiej, które wykorzystują warianty genetyczne jako naturalny eksperyment, wspierają związek przyczynowy dla raka piersi z receptorami estrogenowymi [49]. Wspierają go także dla raka jelita grubego i raka prostaty [50, 51]. Część analiz genetycznych dała jednak dla raka piersi i prostaty wyniki niejednoznaczne [52].
Rola IGF-1 w chorobie Alzheimera pozostaje hipotezą. W badaniu Framingham osoby z IGF-1 w najniższym kwartylu miały o 51% większe ryzyko otępienia w chorobie Alzheimera [31]. W badaniu z randomizacją lek pobudzający wydzielanie hormonu wzrostu podniósł jednak IGF-1 o 72,9% i nie spowolnił postępu choroby [53]. Niski IGF-1 może więc towarzyszyć neurodegeneracji, ale samo jego podniesienie nie okazało się leczeniem [53].
3.4. Punkt uchwytu leków
Oś IGF-1 jest celem leków działających w trzech miejscach: na receptorze IGF-1R, na receptorze hormonu wzrostu i przez zastąpienie brakującego IGF-1. Mekasermina, czyli rekombinowany ludzki IGF-1, jest zarejestrowana do leczenia zaburzeń wzrastania w ciężkim pierwotnym niedoborze IGF-1 [5, 9]. W badaniu 76 dzieci z niewrażliwością na hormon wzrostu tempo wzrastania wzrosło w pierwszym roku leczenia średnio z 2,8 do 8,0 cm na rok [9]. Dane rejestru europejskiego potwierdzają poprawę wzrostu u większości leczonych dzieci [29].
Pegwisomant to uzyskany metodami inżynierii genetycznej antagonista receptora hormonu wzrostu, który blokuje działanie tego hormonu i w ten sposób obniża IGF-1 [39]. W badaniu 112 chorych z akromegalią IGF-1 normalizował się, zależnie od dawki, u 54–89% leczonych wobec 10% w grupie placebo [39]. W akromegalii IGF-1 jest więc zarazem markerem choroby i miarą skuteczności leku.
Teprotumumab to przeciwciało monoklonalne blokujące IGF-1R, stosowane w orbitopatii tarczycowej, czyli zapaleniu tkanek oczodołu [54]. Orbitopatia rozwija się u 25–50% chorych z chorobą Gravesa-Basedowa, czyli autoimmunologiczną nadczynnością tarczycy [55]. Lek wprowadzono, ponieważ IGF-1R uczestniczy w patogenezie tej choroby [54]. W badaniu III fazy zmniejszenie wytrzeszczu o co najmniej 2 mm uzyskano u 83% chorych wobec 10% w grupie placebo [54]. Na podstawie dwóch badań wieloośrodkowych lek zarejestrowano w Stanach Zjednoczonych w 2020 roku [56].
3.5. Modyfikacja behawioralna i dietetyczna
Stężenie IGF-1 zależy od diety i aktywności fizycznej. Najsilniej działa niedobór energii i białka, który obniża IGF-1 [26]. Mleko i białko mleka podnoszą IGF-1 w niewielkim stopniu. W przeglądzie systematycznym 31 badań stężenie IGF-1 rosło o 0,10 odchylenia standardowego na każde odchylenie standardowe wyższego spożycia mleka [57]. W metaanalizie badań z randomizacją u dzieci i młodzieży produkty mleczne podnosiły IGF-1 w surowicy [58].
Białko serwatkowe podniosło IGF-1 o 14,2 ng/ml w badaniu z randomizacją u 128 zdrowych osób po 65. roku życia [59]. Wodorowęglan potasu, czyli związek alkalizujący, podniósł w tym samym badaniu IGF-1 o 7,2 ng/ml w porównaniu z placebo [59]. Żadna z tych interwencji nie poprawiła jednak mocy, sprawności ani masy mięśni [59]. Arginina nie zmieniała IGF-1 w metaanalizie dziewięciu badań, zarówno po jednorazowym, jak i po przewlekłym przyjmowaniu [60].
Wysiłek fizyczny również wpływa na IGF-1. W metaanalizie sieciowej 19 badań z randomizacją u osób starszych z kruchością lub sarkopenią trening oporowy i trening łączony podnosiły IGF-1 [61]. Pewność tych danych oceniono jednak jako niską lub bardzo niską [61]. Zmiany IGF-1 wywołane dietą i wysiłkiem są zatem w badaniach niewielkie, a ich związek z efektami zdrowotnymi pozostaje niepotwierdzony [59, 61].
3.6. Wsparcie suplementacyjne
Kilka substancji mających karty w katalogu suplementów badano pod kątem wpływu na stężenie IGF-1 w surowicy u ludzi. Kierunek w tabeli dotyczy stężenia IGF-1, a nie masy mięśni ani samopoczucia. Większość badań obejmowała małe grupy lub szczególne populacje, na przykład osoby starsze zagrożone niedożywieniem albo osoby trenujące.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| DHEA | steroid nadnerczy, prekursor androgenów i estrogenów; mechanizm wpływu na IGF-1 nieustalony; status hormonalny, lekopodobny | ↑ IGF-1, istotnie u kobiet i osób po 60. roku życia [62] | A |
| Cholekalcyferol | witamina D3; wpływ na oś somatotropową hipotetyczny [63] | ~ bez istotnej zmiany w metaanalizach [63–65] | A |
| Cynk | pierwiastek potrzebny do wzrostu; badany jako dodatek do suplementu białkowego [66] | ↑ szybszy wzrost IGF-1 u osób starszych zagrożonych niedożywieniem [66] | B |
| Kwasy omega-3 | mechanizm nieustalony; w jednym badaniu spadek IGFBP-3 [67] | ↑ w jednym badaniu, ~ w drugim [67, 68] | B |
| Kreatyna | nośnik energii w mięśniu; badana łącznie z treningiem oporowym [69] | ↑ w porównaniu z placebo przy treningu [69] | B |
| Kwercetyna | flawonoid; w badaniu obniżał markery uszkodzenia mięśni i interleukinę 6 po wysiłku [70] | ↑ silniejszy wzrost IGF-1 w okresie regeneracji [70] | B |
W metaanalizie 24 badań z randomizacją DHEA, czyli dehydroepiandrosteron, podnosił IGF-1 średnio o 16,36 ng/ml, a efekt był istotny u kobiet i u osób po 60. roku życia [62]. Witamina D nie zmieniała istotnie IGF-1 w metaanalizie 6 badań z udziałem 773 osób ani w metaanalizie 8 badań [63, 64]. Podobny wynik dał przegląd badań u osób po 45. roku życia [65]. U 61 hospitalizowanych osób starszych cynk dodany do suplementu białkowego przyspieszał wzrost IGF-1, który po pierwszym tygodniu wynosił 48,2% wobec 22,4% w grupie kontrolnej [66]. Kwasy omega-3 podniosły IGF-1 u 62 mężczyzn z chorobą sercowo-naczyniową [67]. Dieta niskotłuszczowa z olejem rybim nie zmieniła go natomiast u 48 mężczyzn przed usunięciem prostaty [68]. Kreatynę badano u 40 młodych osób trenujących siłowo, a kwercetynę u 12 mężczyzn w badaniu naprzemiennym [69, 70]. Dawkowanie i interakcje tych substancji opisują karty działu Suplementy.
4. Uwagi praktyczne
4.1. Jak to zbadać
IGF-1 oznacza się w surowicy krwi żylnej metodami immunochemicznymi albo metodą spektrometrii mas [71]. Białka wiążące wiążą IGF-1 z dużym powinowactwem i zaniżają jego oznaczalną ilość, dlatego próbka wymaga wstępnego oddzielenia IGF-1 od IGFBP [15]. Międzynarodowy konsensus z 2011 roku zwraca uwagę na warunki przedanalityczne, wspólny wzorzec kalibracyjny i zakłócenia przez białka wiążące [72]. Wymaga też norm uwzględniających wiek, stadium dojrzewania i wskaźnik masy ciała [72].
Wynik interpretuje się wobec zakresu referencyjnego dla wieku i płci, wyznaczonego dla konkretnej metody. Takie zakresy ustalono na przykład na podstawie próbek od 15 014 osób w wieku od 0 do 94 lat [10]. Wynik bywa też podawany jako liczba odchyleń standardowych od średniej dla wieku, czyli SDS (ang. standard deviation score) [36]. W akromegalii stosuje się także wielokrotność górnej granicy normy [40]. Polskie laboratoria podają IGF-1 zwykle w ng/ml (µg/l), a badania epidemiologiczne, na przykład UK Biobank, w jednostkach molowych (nmol/l) [12]. Przy masie cząsteczkowej 7649 [1] 1 nmol/l odpowiada około 7,65 ng/ml.
Wyniki z różnych platform nie są wymienne. W porównaniu 110 próbek jeden test immunochemiczny dawał wyniki o około 36% niższe niż drugi [71]. Chromatografia cieczowa sprzężona z tandemową spektrometrią mas (LC-MS/MS) dawała wyniki o 34% wyższe niż test o najniższych wartościach [71]. Różnice między metodami rosły wraz ze stężeniem IGF-1 [71]. Pomiar IGF-1 spektrometrią mas zapewnił większą spójność wyników w badaniach antydopingowych [35].
W akromegalii IGF-1 powyżej 1,3-krotności górnej granicy normy dla wieku potwierdza rozpoznanie u chorego z typowymi objawami [40]. Przy wynikach niejednoznacznych oznaczenie powtarza się tą samą zwalidowaną metodą, a pomocny bywa test hamowania hormonu wzrostu glukozą podaną doustnie [40]. W niedoborze hormonu wzrostu u dorosłych wytyczne amerykańskie z 2019 roku opierają rozpoznanie na testach stymulacyjnych hormonu wzrostu [73]. Te same wytyczne podkreślają ostrożność w interpretacji IGF-1 ze względu na różnice między testami [73].
Na wynik wpływają czynniki niezwiązane z chorobą przysadki. Należą do nich niedożywienie i głodzenie [26], estrogeny przyjmowane doustnie [32], ciąża [34], choroby wątroby [38] oraz okres dojrzewania [10]. IGFBP-3 i ALS oznacza się rzadziej, głównie przy podejrzeniu genetycznych zaburzeń transportu IGF-1, w których całkowity IGF-1 bywa mylący [23, 25].
4.2. Na co warto zwrócić uwagę
Często powtarzane przekonanie głosi, że IGF-1 zawarty w mleku przenika do krwi i w ten sposób podnosi jego stężenie. Związek spożycia mleka z wyższym IGF-1 we krwi istnieje, ale jest słaby [57]. Brakuje natomiast dowodów, że IGF-1 z pożywienia wchłania się w postaci czynnej. W badaniu ze znakowanym izotopem IGF-1 przyjęty doustnie krążył we krwi wyłącznie w postaci fragmentów, a autorzy nie znaleźli podstaw do przyjęcia jego wchłaniania [74]. Wzrost IGF-1 po produktach mlecznych nie jest więc dowodem przenikania IGF-1 z przewodu pokarmowego.
Te same dane dotyczą suplementów reklamowanych jako źródło IGF-1. Siara bydlęca podniosła IGF-1 w surowicy u trenujących sportowców, choć równoległa część tego samego badania nie potwierdziła wchłaniania IGF-1 [74]. W badaniu z randomizacją ekstrakt i proszek z poroża jelenia nie zmieniły stężeń hormonów, w tym IGF-1 [75]. Przegląd systematyczny siedmiu badań z randomizacją nie znalazł przekonujących dowodów na korzyści z preparatów z poroża [76].
IGF-1 jest też nadużywany w sporcie jako substancja dopingująca [15]. Przekonanie o przyroście masy mięśni po dawkach ponadfizjologicznych opiera się głównie na doniesieniach nieformalnych, przy niewielkiej liczbie danych z badań u ludzi [77]. Od 2012 roku Światowa Agencja Antydopingowa uznaje test wykrywający podawanie hormonu wzrostu, oparty na pomiarze IGF-1 i propeptydu prokolagenu typu III [35].
Wyniki badań nad długowiecznością bywają upraszczane do tezy, że im niższe IGF-1, tym dłuższe życie. Dane o zespole Larona dotyczą jednak rzadkiej mutacji, z niskim wzrostem jako ceną niskiego IGF-1 [29, 45]. W populacji ogólnej ryzyko zgonu rośnie przy obu krańcach zakresu, więc niski wynik nie jest markerem ochrony [47, 48]. Podobnie zależność między wysokim IGF-1 a nowotworami opisuje ryzyko względne w dużych populacjach i nie pozwala przewidzieć choroby u konkretnej osoby [12]. Wynik IGF-1 interpretuje lekarz, łącząc go z wiekiem, metodą oznaczenia, objawami i innymi badaniami.