
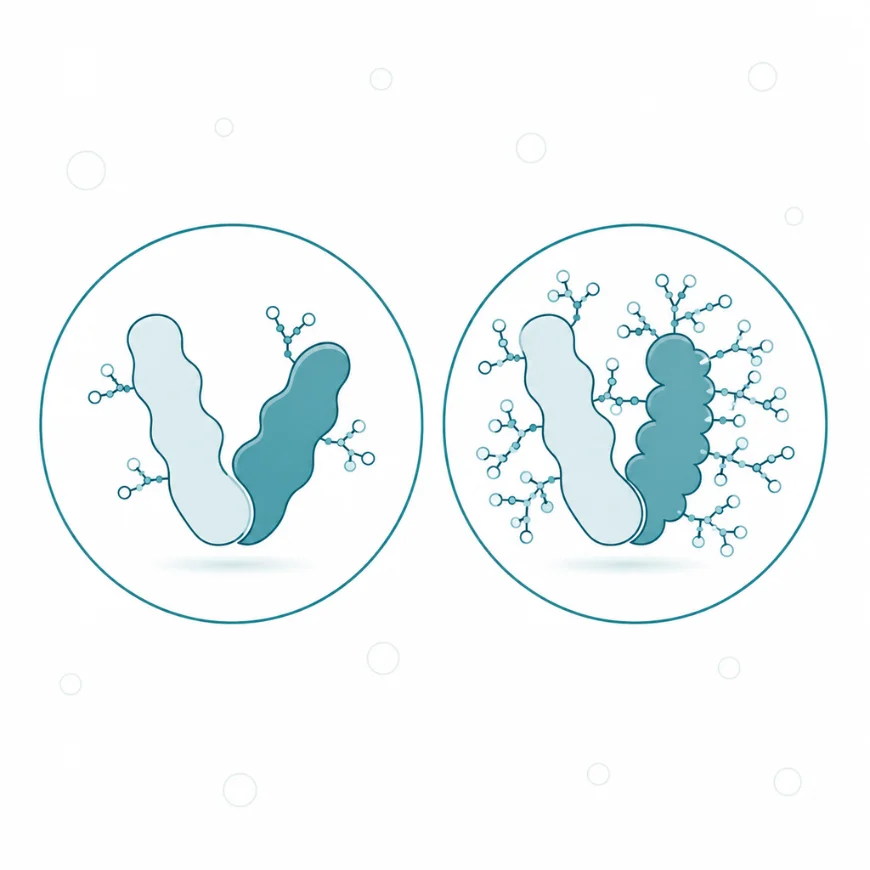
1. Profil substancji
1.1. Definicja i klasyfikacja
Hormon folikulotropowy (ang. follicle-stimulating hormone, FSH) i hormon luteinizujący (ang. luteinizing hormone, LH) to gonadotropiny przysadkowe, czyli hormony białkowe przedniego płata przysadki mózgowej, których narządami docelowymi są gonady. Oba należą do rodziny hormonów glikoproteinowych, do której zalicza się też tyreotropina (TSH), pobudzająca tarczycę, oraz gonadotropina kosmówkowa (ang. human chorionic gonadotropin, hCG), hormon łożyska [1]. Każdy hormon tej rodziny składa się z dwóch podjednostek połączonych wiązaniami niekowalencyjnymi: wspólnej podjednostki alfa i podjednostki beta, swoistej dla danego hormonu [1, 2]. To podjednostka beta decyduje, który receptor rozpozna cząsteczkę i na którą komórkę hormon zadziała.
Nazwa „gonadotropiny” obejmuje w piśmiennictwie także hCG, dlatego przymiotnik „przysadkowe” odróżnia FSH i LH od hormonu łożyskowego. Gonadotropina kosmówkowa działa na ten sam receptor co LH, ale powstaje w innym narządzie i ma inną budowę końca podjednostki beta [1, 3]. FSH i LH różnią się też od gonadoliberyny (GnRH), czyli dekapeptydu podwzgórza, który pobudza komórki przysadki do wytwarzania i uwalniania obu gonadotropin [2]. Gonadotropiny nie są wreszcie hormonami płciowymi. Estradiol, progesteron i testosteron to steroidy wytwarzane w gonadach pod wpływem FSH i LH, a nie same gonadotropiny.
FSH i LH tworzą parę czynnościową, bo powstają w tych samych komórkach przysadki, dzielą podjednostkę alfa i działają przez spokrewnione receptory błonowe [2, 3]. Ich role w gonadach są jednak rozdzielone: FSH steruje przede wszystkim namnażaniem i dojrzewaniem komórek rozrodczych, a LH syntezą steroidów płciowych [4]. Zakres pojęcia obejmuje hormony krążące we krwi, ich odmiany różniące się glikozylacją oraz leki zawierające te hormony, pozyskiwane z moczu albo wytwarzane metodą rekombinacji [1, 5]. Znaczenie gonadotropin wykracza poza fizjologię rozrodu. Ich stężenia we krwi pozwalają odróżnić niewydolność samych gonad od niewydolności przysadki i podwzgórza, a preparaty gonadotropin są podstawą leczenia niepłodności u kobiet i u mężczyzn [5, 6].
1.2. Budowa i właściwości
Podjednostki FSH i LH są łańcuchami białkowymi, do których komórka przysadki przyłącza łańcuchy cukrowe, czyli oligosacharydy. Podjednostka alfa i podjednostka beta FSH niosą po dwa takie łańcuchy przyłączone do asparaginy, a podjednostka beta LH jeden [1]. Łańcuchy te w niewielkim stopniu wpływają na samo wiązanie z receptorem, ale są niezbędne do pobudzenia komórki docelowej. Hormony glikoproteinowe pozbawione ich w doświadczeniach wiązały się z receptorem i nie wywoływały odpowiedzi, czyli zachowywały się jak antagoniści [1]. O aktywności gonadotropiny decyduje więc nie tylko jej stężenie, lecz także budowa łańcuchów cukrowych.
Glikozylacja wpływa także na to, jak długo hormon krąży we krwi i działa w organizmie. Podjednostka beta hCG ma na końcu dodatkowy odcinek, tak zwany peptyd C-końcowy, który niesie cztery łańcuchy cukrowe przyłączone do tlenu seryny lub treoniny [1]. Łańcuchy te mają niewielkie znaczenie dla wiązania z receptorem, ale wydłużają okres półtrwania i aktywność hormonu in vivo [1]. Podjednostka beta LH tego odcinka nie ma, choć LH i hCG pobudzają ten sam receptor. W doświadczeniach przyłączenie peptydu C-końcowego do innych białek wydłużało ich półtrwanie, co autor przeglądu opisał jako sposób projektowania długo działających agonistów hormonów glikoproteinowych [1]. Z budowy wynika zatem, że FSH, LH, TSH i hCG różnią się przede wszystkim podjednostką beta, która kieruje je do receptora. Czas i siłę ich działania modyfikują dodatkowo łańcuchy cukrowe.
1.3. Synteza i źródła
FSH i LH wytwarzają komórki gonadotropowe przedniego płata przysadki, wyposażone na powierzchni w receptor gonadoliberyny [2]. W komórkach tych powstają swoiste podjednostki FSHβ i LHβ, które nadają obu hormonom odrębność [2]. Każda podjednostka powstaje na podstawie osobnego genu, a wspólną podjednostkę alfa koduje gen CGA [2]. Czynny hormon powstaje dopiero po połączeniu podjednostki alfa z podjednostką beta, a to połączenie jest warunkiem jego działania [1].
Łańcuchy cukrowe komórka gonadotropowa przyłącza w trakcie syntezy podjednostek, zanim hormon trafi do pęcherzyków wydzielniczych [1]. Uwalnianie gotowych gonadotropin do krwi, podobnie jak ich synteza, zależy od pobudzenia receptora przez gonadoliberynę docierającą z podwzgórza [2]. W ciąży aktywność podobną do LH zapewnia ponadto hCG z łożyska, działająca przez ten sam receptor co LH [3]. Źródłem leków bywa mocz kobiet po menopauzie, bo po wyczerpaniu zasobu pęcherzyków przysadka wydziela więcej FSH [7]. Z moczu pozyskuje się menotropinę (ang. human menopausal gonadotropin, hMG), czyli mieszaninę gonadotropin, oraz oczyszczone FSH, a obok nich stosuje się FSH rekombinowane [5]. FSH występuje zarówno jako hormon przysadki, jak i jako lek pochodzenia moczowego albo biotechnologicznego.
2. Mechanizm działania i funkcje
2.1. Receptory
Receptor FSH (ang. FSH receptor, FSHR) i receptor LH i hCG (ang. LH/choriogonadotropin receptor, LHCGR) to receptory błonowe sprzężone z białkami G, czyli białkami przekazującymi sygnał do wnętrza komórki [3]. Naturalnym ligandem FSHR jest FSH, a LHCGR rozpoznaje dwa hormony: LH i hCG [3]. Oba receptory występują w komórkach gonad i tam wspierają powstawanie gamet, syntezę steroidów płciowych i utrzymanie ciąży [8]. FSHR znajduje się na komórkach ziarnistych pęcherzyka jajnikowego i na komórkach Sertolego w jądrze [9]. LHCGR występuje w komórkach tekalnych jajnika i w komórkach Leydiga jądra, a w pęcherzyku przedowulacyjnym pojawia się także na komórkach ziarnistych.
Receptory gonadotropin długo uznawano za pojedyncze cząsteczki działające w izolacji. Badania strukturalne i doświadczalne pokazały jednak, że FSHR tworzy pary z drugim FSHR, a także kompleksy z LHCGR [9]. Takie kompleksy mogą modulować odpowiedź na hormon, ale dane pochodzą głównie z badań in vitro i wymagają potwierdzenia w organizmie [8]. Sporna pozostaje też obecność FSHR poza gonadami, zwłaszcza w komórkach kości, bo badania na myszach dały w tej sprawie wyniki sprzeczne [10, 11]. Rozmieszczenie receptorów wyznacza podział pracy obu hormonów: FSH działa na komórki opiekujące się gametami, a LH na komórki wytwarzające steroidy.
2.2. Kaskada sygnałowa
Kaskada sygnałowa gonadotropin zaczyna się od receptora spoczywającego w błonie komórki ziarnistej, tekalnej, komórki Sertolego albo komórki Leydiga. Związanie hormonu zmienia kształt receptora, a zmieniony receptor aktywuje heterotrimeryczne białko G, które uruchamia wytwarzanie przekaźników wtórnych [3]. Główną drogą jest białko Gs, pobudzające cyklazę adenylanową do syntezy cyklicznego AMP (cAMP), czyli przekaźnika wtórnego przenoszącego sygnał z błony do wnętrza komórki [3]. Cykliczny AMP aktywuje kinazę białkową A, która fosforyluje białka enzymatyczne i czynniki transkrypcyjne. Komórka zwiększa wtedy ekspresję enzymów syntezy steroidów i białek potrzebnych do wzrostu pęcherzyka albo do podtrzymania spermatogenezy.
Pobudzony receptor wiąże też β-arestyny, czyli białka rusztowania, które początkowo opisano jako czynniki wygaszające odpowiedź receptora i kierujące go do wnętrza komórki [3]. Białka te potrafią jednak same zapoczątkować sygnał niezależny od białka Gs, bo gromadzą wokół receptora kinazy tworzące osobne moduły sygnałowe [3]. Różne ligandy mogą uruchamiać w różnym stopniu drogę białka G albo drogę β-arestyn, a zjawisko to nazywa się sygnalizacją ukierunkowaną [3]. Dla receptorów gonadotropin taką możliwość potwierdzono doświadczalnie, co otwiera drogę do leków pobudzających wybrane szlaki [3]. Skutek pobudzenia receptora zależy przy tym od wyposażenia enzymatycznego komórki. W komórce ziarnistej ta sama kaskada zwiększa aktywność aromatazy, a w komórce tekalnej i w komórce Leydiga syntezę androgenów [4, 12].
2.3. Funkcje FSH i LH
Funkcje FSH i LH w organizmie zdrowym dotyczą dwóch narządów, jajnika i jądra, a w każdym z nich obie gonadotropiny działają na inne komórki. W jajniku FSH i LH współpracują przy syntezie estradiolu [12], a LH dodatkowo wyzwala owulację. W jądrze LH steruje wytwarzaniem testosteronu, a FSH czynnością komórek podtrzymujących spermatogenezę [13].
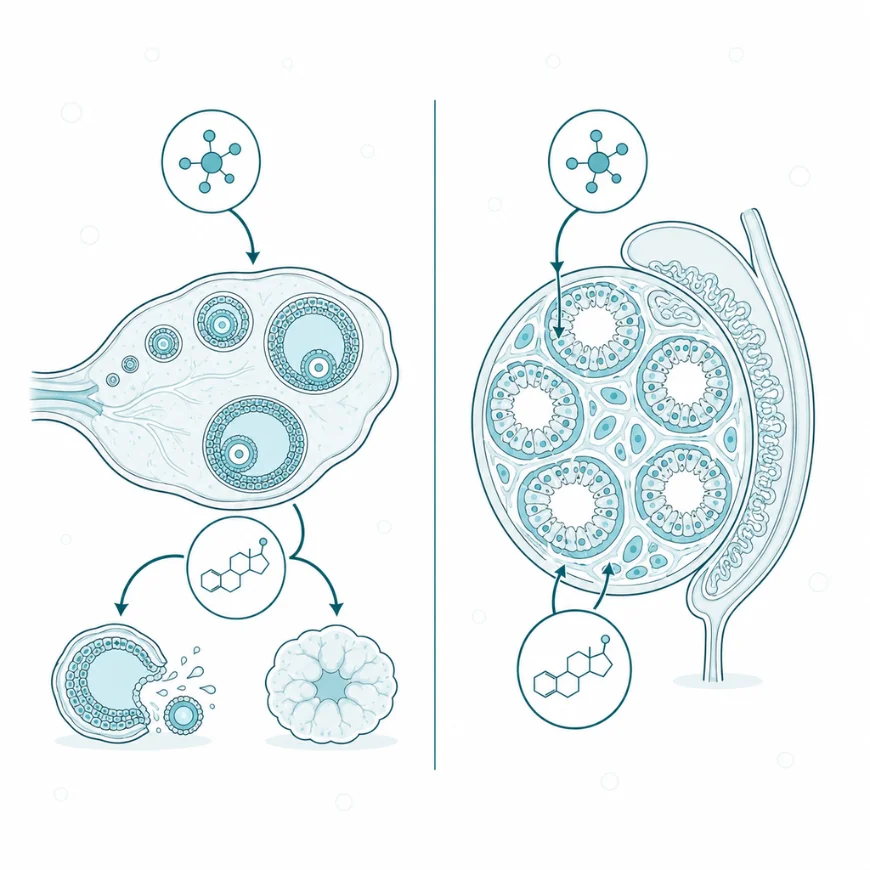
U kobiet FSH prowadzi wzrost pęcherzyka, LH wyzwala owulację; u mężczyzn FSH działa na komórki Sertolego, LH na komórki Leydiga.
2.3.1. Wzrost pęcherzyka i synteza estradiolu
W jajniku FSH pobudza wzrost pęcherzyków i dojrzewanie komórek ziarnistych, a LH dostarcza tym komórkom substratu do syntezy estrogenów (czynność endokrynna jajników). Model dwóch komórek i dwóch gonadotropin opisuje ten podział pracy. Komórki tekalne pod wpływem LH wytwarzają androgeny, a komórki ziarniste pod wpływem FSH przekształcają je w estradiol dzięki aromatazie [12]. W doświadczeniu na niedojrzałych szczurach pozbawionych przysadki samo FSH zwiększało aktywność aromatazy w komórkach ziarnistych bez wydzielania estrogenów [12]. Samo LH zwiększało syntezę androgenów w komórkach tekalnych, a wydzielanie estrogenów rosło dopiero po podaniu obu hormonów jednocześnie [12]. Na podstawie modeli gryzoni zakładano, że wzrost pęcherzyka zależy od gonadotropin dopiero w stadium pęcherzyka z jamką. U kobiet z całkowitą utratą czynności FSHR folikulogeneza zatrzymuje się jednak już na etapie pęcherzyków pierwszorzędowych [4]. Brak którejkolwiek gonadotropiny przerywa więc syntezę estradiolu w pęcherzyku, choć każda z nich działa w innej warstwie jego komórek.
2.3.2. Owulacja i ciałko żółte
Drugą funkcją LH w jajniku jest wyzwolenie owulacji. Pod koniec fazy folikularnej stężenie LH we krwi gwałtownie rośnie, a ten tak zwany wyrzut LH poprzedza pęknięcie pęcherzyka dominującego [14]. LH działa przez LHCGR na komórki pęcherzyka przedowulacyjnego i uruchamia trzy procesy: końcowe dojrzewanie komórki jajowej, pęknięcie ściany pęcherzyka oraz przekształcenie jego komórek w ciałko żółte. Ciałko żółte wydziela progesteron, a jego czynność podtrzymuje dalej LH, w ciąży zaś hCG działająca przez ten sam receptor [3]. Tę samą właściwość wykorzystuje leczenie niepłodności, w którym podanie hCG zastępuje własny wyrzut LH i wyzwala końcowe dojrzewanie komórek jajowych [15]. LH pełni więc w jednym cyklu dwie odmienne role. W fazie folikularnej podtrzymuje syntezę androgenów w komórkach tekalnych, a w szczycie wydzielania kończy wzrost pęcherzyka i otwiera fazę lutealną.
2.3.3. Komórki Leydiga i testosteron
W jądrze LH działa na komórki Leydiga, położone w tkance śródmiąższowej między kanalikami nasiennymi, i pobudza w nich syntezę testosteronu (czynność endokrynna jąder). Testosteron działa miejscowo na komórki Sertolego i rozwijające się komórki rozrodcze, a po przejściu do krwi na narządy docelowe w całym organizmie. Stężenie testosteronu w jądrze znacznie przewyższa ilość potrzebną do pobudzenia receptora androgenowego [4]. Potrzebę tak wysokiego stężenia dla spermatogenezy autorzy przeglądu określają jako dogmat, a zarazem zagadkę [4]. Podważył ją opis mężczyzny z mutacją podjednostki beta LH, u którego wytwarzanie testosteronu spadło do 1–2% wartości prawidłowej. Mimo to nieliczne dojrzałe komórki Leydiga wytwarzały dość testosteronu, żeby zapoczątkować i podtrzymać pełną spermatogenezę [4]. LH jest więc niezbędny do wytwarzania androgenów w jądrze, ale ilość testosteronu potrzebna samej spermatogenezie okazała się mniejsza, niż zakładano.
2.3.4. Komórki Sertolego i spermatogeneza
FSH działa w jądrze na komórki Sertolego, które otaczają rozwijające się komórki rozrodcze i dostarczają im sygnałów regulacyjnych oraz składników odżywczych [13]. FSH wpływa na namnażanie, dojrzewanie i czynność komórek Sertolego samodzielnie i we współdziałaniu z testosteronem [13]. U gryzoni spermatogeneza dobiega końca także bez FSH, ale powstaje wtedy wyraźnie mniej plemników [13]. U mężczyzn utrata czynności genu podjednostki beta FSH prowadzi do azoospermii, czyli braku plemników w nasieniu, a utrata czynności FSHR do osłabienia spermatogenezy [13]. W doświadczeniu na myszach pozbawionych receptora LH stale aktywny mutant FSHR przywracał spermatogenezę i płodność. Spermatogeneza utrzymywała się nawet wtedy, gdy działanie testosteronu całkowicie zahamowano antyandrogenem [4, 13]. FSH i LH działają więc w jądrze na dwie różne komórki, a do prawidłowej liczby plemników potrzebny jest sygnał FSH, którego testosteron nie zastępuje w pełni.
2.4. Regulacja wydzielania
Wydzielanie FSH i LH wyznacza oś podwzgórze–przysadka–gonady, w której podwzgórze uwalnia GnRH pulsami, a nie w sposób ciągły. Różna częstość pulsów uruchamia w komórce gonadotropowej odmienne szlaki sygnałowe i czynniki transkrypcyjne, dlatego ta sama komórka może zmieniać proporcję wydzielanych hormonów [2]. Częstość pulsów tłumaczy jednak tylko część tej różnicy, bo na wydzielanie FSH i LH wpływają też aktywina, inhibina i hormony płciowe [2]. Przyspieszenie pulsów GnRH sprzyja wydzielaniu LH i zwiększa częstość jego pulsów, co najlepiej opisano w zespole policystycznych jajników [16, 17]. Rytm ten nadaje tak zwany generator pulsów GnRH, czyli grupa neuronów podwzgórza zawierających kispeptynę, neurokininę B i dynorfinę, a wiedza o nich pochodzi głównie z modeli zwierzęcych [17].
Gonady hamują wydzielanie gonadotropin zwrotnie dwiema drogami. Steroidy płciowe działają na podwzgórze i przysadkę [2], a inhibina B, glikoproteina wydzielana przez małe pęcherzyki jamiste, jest głównym regulatorem wydzielania FSH [7]. W fazie przedowulacyjnej narastające stężenie estradiolu odwraca kierunek tego sprzężenia i wyzwala wyrzut LH. W przysadce działają też aktywiny, dimery podjednostek beta inhibiny, które wyizolowano jako czynniki pobudzające uwalnianie FSH [18]. Działanie aktywin ogranicza inhibina oraz folistatyna, białko wiążące aktywinę [18]. Z tej regulacji wynika, że przy spadku czynności jajników jako pierwsze rośnie FSH, bo przysadka traci hamowanie przez inhibinę B, zanim wyraźnie spadnie stężenie estradiolu [7].
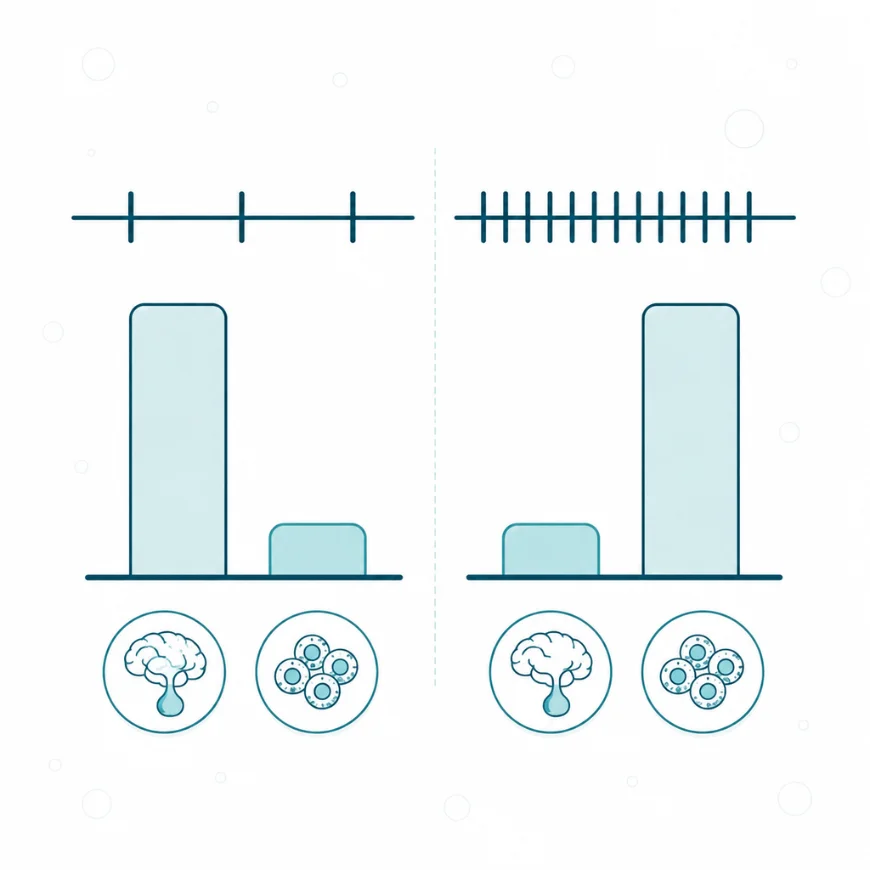
Częstotliwość impulsów GnRH decyduje o proporcji FSH do LH. Ten sam mechanizm wydzielania, zależnie od tempa, daje dwa różne profile hormonalne.
3. Zaburzenia i modyfikacja
3.1. Niedobór – przyczyny i następstwa
Niedobór FSH i LH nazywa się hipogonadyzmem hipogonadotropowym, czyli niedoczynnością gonad wynikającą z niedostatecznego pobudzenia przez przysadkę. Postać wrodzona jest rzadka i wynika z niedostatecznego wytwarzania, wydzielania albo działania GnRH, a do 2015 roku opisano ponad 25 genów, których mutacje ją wywołują [19]. U około połowy chorych towarzyszy jej brak albo osłabienie węchu, a to połączenie nazywa się zespołem Kallmanna [19]. Przyczyną zespołu jest niepełna wędrówka neuronów wytwarzających GnRH w życiu płodowym, przez co nie docierają one do podwzgórza [19]. Choroba objawia się brakiem dojrzewania płciowego i niepłodnością, choć u 10–20% chorych czynność rozrodcza samoistnie wraca [19].
Rzadziej przyczyną jest mutacja samej gonadotropiny, jak u opisanych mężczyzn z mutacją podjednostki beta LH albo beta FSH [4, 13]. Niedobór nabyty powstaje przy uszkodzeniu podwzgórza lub przysadki, na przykład przez guz, przy nadmiarze prolaktyny albo czynnościowo, gdy podwzgórze zwalnia pulsy GnRH. U kobiet stłumienie pulsów GnRH obniża LH, a w następstwie estradiol, co prowadzi do braku owulacji i zatrzymania miesiączek [20]. Ten stan, nazywany czynnościowym podwzgórzowym brakiem miesiączki, wiąże się także z utratą masy kostnej [20, 21]. U mężczyzn niedobór gonadotropin obniża stężenie testosteronu, co odbija się także na zdrowiu kości [21]. Wspólną cechą tych stanów jest niskie albo nieadekwatnie prawidłowe stężenie FSH i LH przy niskim stężeniu steroidów płciowych, co odróżnia je od pierwotnej niewydolności gonad.
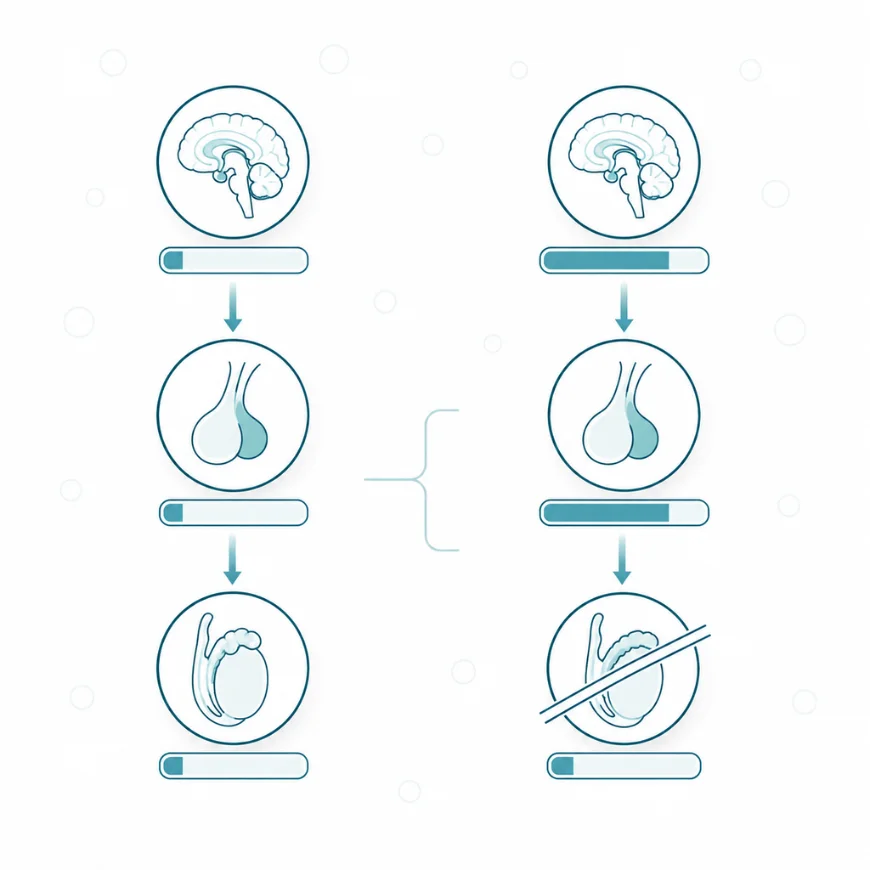
Wysokie gonadotropiny przy niskich hormonach płciowych wskazują na uszkodzenie gonady; niskie poziomy gonadotropin przy niskich hormonach płciowych — na przyczynę przysadkową lub podwzgórzową.
3.2. Nadmiar – przyczyny i następstwa
Podwyższone stężenie FSH i LH jest w typowych stanach odpowiedzią przysadki na utratę hamowania ze strony gonad, a nie pierwotnym zaburzeniem przysadki. Fizjologicznym przykładem takiej odpowiedzi jest przejście menopauzalne. U kobiet po 45. roku życia nieregularne miesiączki pojawiały się, gdy średnia liczba pęcherzyków pierwotnych w jajniku spadała do około 100 [7]. Mniej pęcherzyków oznacza mniej inhibiny B, a to podnosi FSH, które według hipotezy autorów przez pewien czas podtrzymuje wydzielanie estradiolu [7]. W cyklach bezowulacyjnych okresu przejściowego inhibina B jest niska, FSH wyraźnie podwyższone, a estradiol niski. W cyklach owulacyjnych FSH rośnie natomiast niewiele [7].
Ten sam układ wyników daje pierwotna niewydolność gonad, czyli hipogonadyzm hipergonadotropowy. U mężczyzn jego chromosomową przyczyną jest między innymi zespół Klinefeltera, w którym niewydolności jąder towarzyszą wysokie gonadotropiny i azoospermia [22]. U kobiet podobny obraz tworzy przedwczesna niewydolność jajników. Wysokie FSH i LH są w tych stanach znakiem, że przysadka działa sprawnie, a zawodzi narząd docelowy. Czy samo wysokie FSH ma po menopauzie skutki niezależne od niedoboru estrogenów, pozostaje sporne, zwłaszcza w odniesieniu do kości [23, 24]. Nadmiar gonadotropin pochodzenia zewnętrznego, podawanych jako leki, może natomiast nadmiernie pobudzić jajniki i wywołać zespół hiperstymulacji jajników [25].
3.3. Rola FSH i LH w patogenezie chorób
W zespole policystycznych jajników (ang. polycystic ovary syndrome, PCOS), czyli zaburzeniu z nadmiarem androgenów i zaburzeniami owulacji, LH jest ogniwem mechanizmu choroby. Komórki podwzgórza słabiej przekazują neuronom GnRH hamujący sygnał steroidów płciowych, więc pulsy GnRH i LH stają się częstsze [17]. Nadmiar LH pobudza komórki tekalne do syntezy androgenów i zaburza dojrzewanie pęcherzyków oraz komórek jajowych [16]. Zaburzenia wydzielania gonadotropin nakładają się w PCOS na pierwotną dysfunkcję jajnika i na hiperinsulinemię [16]. Przyczyna osłabienia sprzężenia zwrotnego u chorych pozostaje niewyjaśniona [17]. Jednym z kandydatów są zmiany w regulacji neuronów kispeptynowych, wskazywane w obserwacjach klinicznych i w modelach zwierzęcych [17].
Drugą grupą chorób są mutacje receptora LHCGR, których opisano ponad 50 u osób różnego pochodzenia [26]. Mutacje aktywujące sprawiają, że receptor przekazuje sygnał bez hormonu, i wywołują rodzinne przedwczesne dojrzewanie płciowe ograniczone do chłopców. Mutacje inaktywujące powodują niedorozwój komórek Leydiga [26]. U kobiet mutacje LHCGR wiązano z zespołem pustego pęcherzyka, w którym z pęcherzyka nie udaje się pobrać komórki jajowej [26]. Zmutowane receptory mają zaburzoną obecność na powierzchni komórki, wiązanie hormonu albo przekazywanie sygnału [26].
Spór dotyczy także działania FSH poza gonadami, przede wszystkim na kość. Hipotezę bezpośredniego działania sformułowano w 2006 roku na podstawie badań na myszach: zwierzęta pozbawione FSHβ albo FSHR nie traciły masy kostnej mimo ciężkiego hipogonadyzmu [10]. Myszy z jedną kopią genu FSHβ miały większą masę kości przy prawidłowej czynności jajników, a osteoklasty i ich prekursory miały FSHR aktywujący szlaki sprzyjające resorpcji [10]. Inny zespół otrzymał wynik przeciwny: u samic myszy wytwarzających ludzkie FSH masa kostna rosła zależnie od dawki hormonu, a efekt znikał po usunięciu jajników. Autorzy nie wykryli przy tym informacyjnego RNA receptora FSH w kości i uznali, że FSH działa na kość pośrednio, przez jajnik [11].
U ludzi hipotezę sprawdzono bezpośrednio w badaniu z randomizacją 41 kobiet po menopauzie, które otrzymywały agonistę GnRH albo placebo [24]. Obie grupy dostawały dodatkowo inhibitor aromatazy, żeby wyeliminować wpływ zmian stężenia estrogenów. Agonista obniżył FSH o 86%, do zakresu sprzed menopauzy, ale markery resorpcji kości nie zmalały i wzrosły w obu grupach bez istotnej różnicy [24]. Zwolennicy hipotezy opierają się na danych populacyjnych, genetycznych i nielicznych interwencyjnych [23]. Na podstawie badań na gryzoniach przypisują FSH także udział w przyroście tkanki tłuszczowej i w zaburzeniach poznawczych [23]. Dla praktyki klinicznej wynika z tego, że FSH pozostaje markerem stanu jajników, a nie potwierdzoną przyczyną utraty kości u kobiet po menopauzie.
3.4. Czynniki wpływające na stan i czynność
Stężenie i czynność FSH oraz LH zależą od czynników niemodyfikowalnych, takich jak płeć, faza cyklu miesiączkowego, wiek i tło genetyczne. Zależą też od czynników związanych ze stylem życia. Z wiekiem kobiety FSH rośnie, bo zmniejsza się zasób pęcherzyków, a z nim wytwarzanie inhibiny B przez te pęcherzyki [7]. Dobrze opisanym czynnikiem modyfikowalnym jest dostępność energii, czyli ilość energii z pożywienia pozostająca dla organizmu po odjęciu wydatku na wysiłek fizyczny [21]. Przy niskiej dostępności energii podwzgórze uwalnia GnRH rzadziej, a przysadka wydziela mniej FSH i LH [21]. Mechanizm ten dotyczy kobiet i mężczyzn, dlatego zespół względnego niedoboru energii w sporcie opisuje się obecnie u obu płci [21].
Pulsy GnRH tłumią także stres psychiczny, zaburzenia odżywiania, niska masa ciała i nadmierny wysiłek, działające osobno albo łącznie [20]. U kobiet z czynnościowym brakiem miesiączki pochodzenia podwzgórzowego stwierdza się niskie stężenie leptyny oraz podwyższone stężenia greliny, adiponektyny i kortyzolu [20]. Hormony te przekazują podwzgórzu informację o niedoborze energii i o obciążeniu stresem. Zmiany te wiążą się z hamowaniem GnRH, choć ich wzajemne powiązania przyczynowe wymagają dalszych badań [20]. Silnym czynnikiem zewnętrznym są androgeny przyjmowane spoza wskazań lekarskich, w tym anaboliczne steroidy androgenne. Hamują one oś podwzgórze–przysadka–gonady, obniżają stężenie testosteronu w jądrze i mogą prowadzić do zaniku jąder oraz azoospermii [27]. Po odstawieniu tych substancji powrót płodności bywa długotrwały i niekiedy niepełny [27]. Niedobór energii i stres działają więc przez podwzgórze, a przysadka i gonady odpowiadają na zmieniony rytm GnRH wtórnie.
3.5. Gonadotropiny jako leki
Gonadotropiny jako leki działają tym samym mechanizmem co hormony własne, czyli przez FSHR i LHCGR komórek gonad. Preparaty gonadotropin stosuje się w leczeniu niepłodności od początku lat 30. XX wieku, a ciąże po takim leczeniu opisywano pod koniec tej dekady [28]. Ówczesne wyciągi pozyskiwano z przysadek zwierzęcych, z surowicy ciężarnych klaczy, a także z ludzkich przysadek, łożysk i moczu [28]. Dzisiejsze preparaty obejmują gonadotropiny moczowe, czyli menotropinę i oczyszczone FSH, oraz FSH i LH rekombinowane, wytwarzane metodami biotechnologii [5, 25].
U kobiet z PCOS, które nie owulują ani nie zachodzą w ciążę po klomifenie, przegląd systematyczny Cochrane objął 15 badań z randomizacją i 2387 kobiet [5]. FSH rekombinowane i gonadotropiny moczowe dawały podobny odsetek urodzeń, a pewność tego wniosku oceniono jako niską [5]. W jednym badaniu 661 kobiet gonadotropiny prowadziły do większej liczby urodzeń niż dalsze leczenie klomifenem, bez wzrostu liczby ciąż mnogich, ale z większą liczbą poronień [5]. W kontrolowanej stymulacji jajników przed zapłodnieniem pozaustrojowym metaanaliza sieciowa objęła 338 badań i 59 086 kobiet [25]. U kobiet z przewidywaną prawidłową odpowiedzią, leczonych w długim protokole z agonistą GnRH, dodanie rekombinowanego LH do rekombinowanego FSH zmniejszało liczbę pobranych komórek jajowych [25]. U kobiet z przewidywaną silną odpowiedzią, leczonych w protokole z antagonistą GnRH, menotropina mogła rzadziej niż rekombinowane FSH wywoływać zespół hiperstymulacji jajników, ale mogła też częściej prowadzić do odwołania cyklu [25]. Wynik ten pochodził z jednego badania 619 kobiet i ma niską pewność [25]. Zespół hiperstymulacji jajników, czyli nadmierna odpowiedź jajników na stymulację, jest jednym z głównych punktów końcowych bezpieczeństwa w tych badaniach [25].
U mężczyzn z hipogonadyzmem hipogonadotropowym i azoospermią gonadotropiny zastępują brakujący sygnał z przysadki: hCG pobudza komórki Leydiga, a FSH komórki Sertolego. W metaanalizie 44 badań takie leczenie doprowadziło do pojawienia się plemników w nasieniu u 75% chorych, przy średnim stężeniu 5,92 mln plemników w mililitrze [6]. Skuteczność była mniejsza, gdy choroba zaczęła się przed okresem dojrzewania, niż w populacjach mieszanych, i wynosiła odpowiednio 68% i 84% [6]. Lepsze wyniki osiągano przy łącznym stosowaniu hCG i FSH oraz u chorych z niższym wyjściowym stężeniem gonadotropin [6]. W inseminacji domacicznej podanie hCG porównano z oczekiwaniem na własny wyrzut LH w jednym badaniu z randomizacją 392 par [15]. Badanie nie rozstrzygnęło, czy któraś z tych metod daje więcej urodzeń, a pewność danych oceniono jako niską [15]. Leki te nie tworzą nowego mechanizmu, lecz zastępują albo wzmacniają sygnał, który w zdrowym organizmie wysyła przysadka.
4. Uwagi praktyczne
4.1. Jak to zbadać
FSH i LH oznacza się w surowicy krwi żylnej metodami immunochemicznymi. Wynik podaje się w jednostkach międzynarodowych na litr (IU/l) [29], liczbowo równych milijednostkom na mililitr (mIU/ml), stosowanym przez część laboratoriów. U kobiet miesiączkujących wynik zależy od fazy cyklu, dlatego do oceny czynności jajników FSH oznacza się we wczesnej fazie folikularnej, czyli w pierwszych dniach cyklu [7]. W tej fazie FSH najlepiej odzwierciedla hamowanie ze strony małych pęcherzyków, choć w okresie przejściowym jego wartości wahają się znacznie z cyklu na cykl [7]. LH wydzielany jest pulsami, więc pojedyncza próbka pokazuje stężenie z jednej chwili, a nie średnią z całej doby [17]. Wynik interpretuje się łącznie ze stężeniem steroidu płciowego: estradiolu u kobiety albo testosteronu u mężczyzny. Wysokie gonadotropiny przy niskim steroidzie wskazują na niewydolność gonad, a niskie albo prawidłowe przy niskim steroidzie na przyczynę w przysadce lub podwzgórzu.
W różnicowaniu wtórnego braku miesiączki pomocne bywa porównanie LH i FSH. W retrospektywnym badaniu porównano kobiety z czynnościowym podwzgórzowym brakiem miesiączki i kobiety z PCOS [29]. Średnie LH wynosiło w tych grupach odpowiednio 3,46 i 8,79 IU/l, a FSH nie różniło się między nimi [29]. Stosunek LH do FSH odróżniał obie grupy z polem pod krzywą diagnostyczną wynoszącym 0,86 [29]. Lepiej wypadał wskaźnik masy ciała, dla którego pole to wynosiło 0,93 [29]. Domowe testy owulacyjne wykrywają LH w moczu i sygnalizują jego wyrzut, a nie samą owulację. W badaniu 101 kobiet leczonych z powodu niepłodności moczowy wyrzut LH poprzedzał pęknięcie pęcherzyka w każdym cyklu [14]. Z owulacją widoczną w badaniu ultrasonograficznym zgadzał się w 98 ze 101 cykli, choć odstęp czasu był bardzo zmienny [14]. Do potwierdzenia owulacji pojedyncze oznaczenie progesteronu w połowie fazy lutealnej okazało się w tym badaniu równie przydatne jak pomiary powtarzane [14].
4.2. Na co warto zwrócić uwagę
Podwyższony stosunek LH do FSH bywa traktowany jako znak rozpoznawczy PCOS, ale nie jest jednym z kryteriów rozpoznania tego zespołu. Międzynarodowe wytyczne z 2023 roku opierają rozpoznanie na hiperandrogenizmie, zaburzeniach owulacji i obrazie jajników w badaniu ultrasonograficznym [30]. U dorosłych wytyczne dopuszczają w miejsce tego badania oznaczenie hormonu antymüllerowskiego [30]. Stosunek obliczony z jednej próbki niesie przy tym informację przybliżoną, bo odzwierciedla chwilowe stężenie LH w określonym dniu cyklu. Różnice LH i stosunku LH do FSH między chorymi z PCOS a kobietami z czynnościowym brakiem miesiączki widoczne są w porównaniu grup [29]. Nie przesądzają one o rozpoznaniu u pojedynczej pacjentki.
Wysokie FSH u kobiety po menopauzie nie świadczy o chorobie przysadki, bo jest oczekiwaną odpowiedzią na brak inhibiny B i estradiolu z jajników. Mniej oczywiste jest to, że w okresie przejściowym ani FSH, ani estradiol nie wyznaczają wiarygodnie etapu zbliżania się menopauzy [7]. Cykle owulacyjne z niewielkim wzrostem FSH przeplatają się wtedy z bezowulacyjnymi, w których FSH jest wysokie, a owulacje zdarzają się nawet po ostatniej miesiączce [7]. Autorzy przeglądu podkreślają, że menopauza nie ma swoistego markera hormonalnego [7]. Prawidłowy pojedynczy wynik FSH nie wyklucza więc okresu przejściowego, a podwyższony nie oznacza trwałego wygaśnięcia czynności jajników.
Niskie FSH i LH u mężczyzny z prawidłowym albo wysokim testosteronem pasują do przyjmowania androgenów z zewnątrz. Testosteron podawany z zewnątrz hamuje bowiem oś rozrodczą [27]. Taki wynik ma znaczenie dla płodności, ponieważ zahamowanie gonadotropin obniża stężenie testosteronu w jądrze i może prowadzić do azoospermii, choć stężenie testosteronu we krwi pozostaje wysokie z powodu androgenu podawanego z zewnątrz [27]. Wcześniejsze leczenie testosteronem nie pogarszało natomiast w metaanalizie skuteczności późniejszej terapii gonadotropinami u mężczyzn z hipogonadyzmem hipogonadotropowym [6]. Wynik FSH i LH nie jest samodzielnym rozpoznaniem, a jego znaczenie zależy od wieku, fazy cyklu, przyjmowanych leków i objawów. Interpretacja wyniku i decyzje o leczeniu wymagają konsultacji z lekarzem.