
1. Charakterystyka białka
1.1. Definicja i klasyfikacja
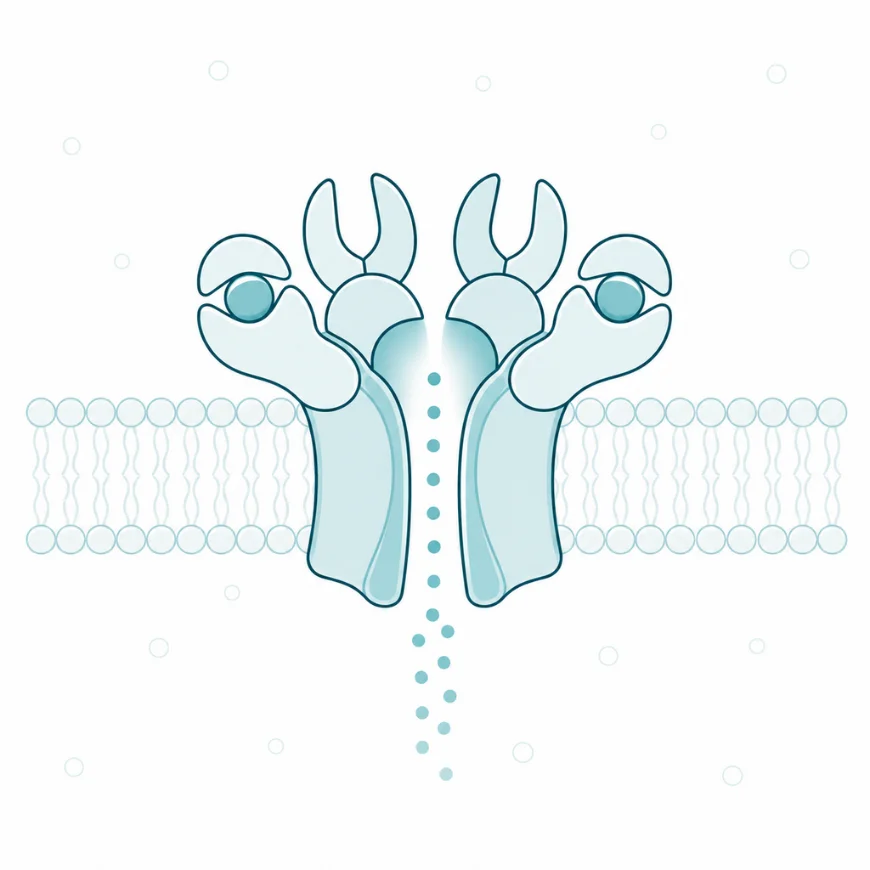
Receptor AMPA to jonotropowy receptor glutaminianu, nazwany od syntetycznego agonisty, czyli kwasu α-amino-3-hydroksy-5-metylo-4-izoksazolopropionowego (ang. α-amino-3-hydroxy-5-methyl-4-isoxazolepropionic acid, AMPA), który pobudza go wybiórczo. Określenie „jonotropowy” oznacza, że miejsce wiązania przekaźnika i kanał jonowy należą do tego samego białka, więc związanie cząsteczki otwiera przejście dla jonów bez pośrednictwa innych cząsteczek [1]. Rodzina receptorów jonotropowych glutaminianu obejmuje trzy grupy: receptory AMPA, receptory NMDA i receptory kainianowe. Pierwsza z nich przenosi w mózgu ssaka większość szybkich sygnałów pobudzających i to ona odpowiada za zasadniczą część prądu płynącego przez synapsę po pojedynczym uwolnieniu przekaźnika [2].
Receptor AMPA bywa mylony z trzema innymi pojęciami. Nie jest tożsamy z receptorem NMDA, choć oba wiążą ten sam przekaźnik: różnią się tym, kiedy przepuszczają jony i jakie jony przepuszczają. Nie jest też receptorem metabotropowym glutaminianu, bo tamten działa przez białka G i nie ma własnego kanału. Myląca bywa również sama nazwa. AMPA nie jest przekaźnikiem ani substancją obecną w organizmie. Jest cząsteczką otrzymaną w laboratorium, która posłużyła do rozdzielenia receptorów glutaminianu na grupy i pozostała w nazwie jednej z nich [1].
Zakres pojęcia obejmuje cały kompleks białkowy, a nie sam kanał. Rdzeń tworzą cztery podjednostki oznaczane GluA1, GluA2, GluA3 i GluA4, kodowane przez geny GRIA1–GRIA4. Do rdzenia dołączają białka pomocnicze, które nie przewodzą jonów, ale zmieniają czas trwania odpowiedzi i miejsce, w którym receptor siedzi [3]. Osobne hasło ma uzasadnienie w tym, że receptor AMPA łączy trzy odległe zagadnienia. Jest ilościową miarą siły synapsy, punktem uchwytu zarejestrowanego leku przeciwpadaczkowego oraz ogniwem obumierania neuronów ruchowych w stwardnieniu zanikowym bocznym [4, 12].
1.2. Budowa, izoformy i podtypy
Receptor AMPA jest czwórką podjednostek zestawioną jak dwie pary, z których każda powstaje osobno i dopiero potem łączy się z drugą. Pojedyncza podjednostka liczy około dziewięciuset reszt aminokwasowych i ma cztery wyraźnie odrębne części, a każda z nich odpowiada za inne zadanie [2]. Rozdzielenie tych części tłumaczy, dlaczego ten sam przekaźnik daje różne odpowiedzi w różnych komórkach.
Domena N-końcowa wystaje najdalej do szczeliny synaptycznej i nie bierze udziału w przewodzeniu jonów. Utrzymuje receptor naprzeciw miejsca uwalniania przekaźnika, a jej rozluźnienie zwiększa ruchliwość receptora w błonie i opóźnia jego powrót do gotowości [6]. Poniżej leży domena wiążąca ligand, zbudowana z dwóch płatów ustawionych jak muszla małża. Zamknięcie tej muszli wokół cząsteczki glutaminianu jest ruchem, który otwiera kanał [7]. Część przezbłonowa składa się z trzech odcinków przechodzących przez błonę oraz z pętli zawróconej od strony cytoplazmy, która wyściela najwęższe miejsce kanału i decyduje, jakie jony przezeń przechodzą [1]. Ogon cytoplazmatyczny jest najkrótszy i najbardziej różni się między podjednostkami: to on wiąże białka kotwiczące i nosi miejsca fosforylacji [20].
Cztery podjednostki nie są wymienne. Podjednostka GluA2 rozstrzyga o czynności receptorów przodomózgowia [6]. Podjednostka GluA1 wchodzi do receptorów dostawianych do synapsy podczas uczenia się [23]. Podjednostka GluA4 występuje głównie w rozwoju i w komórkach o bardzo szybkim przekaźnictwie [5]. Większość receptorów w dojrzałym mózgu to zestawy mieszane, najczęściej GluA1 z GluA2 albo GluA2 z GluA3 [11].
1.3. Rys historyczny
Receptor AMPA przez pierwsze dekady badań uchodził za kanał prostszy, niż jest w istocie. Do końca lat osiemdziesiątych ubiegłego wieku panował pogląd, że receptory nienależące do grupy NMDA przewodzą wyłącznie jony jednowartościowe, a wpuszczanie wapnia do neuronu jest zadaniem receptora NMDA. Podział ról wydawał się czysty: jeden receptor przenosi sygnał, drugi wpuszcza jon pełniący funkcję przekaźnika wewnątrzkomórkowego.
Rozstrzygnięcie przyniósł rok 1991 i dwie prace. Hollmann, Hartley i Heinemann wprowadzili do oocytów żaby różne zestawy podjednostek i zmierzyli prądy wapniowe. Receptory złożone z podjednostek oznaczanych wtedy GluR1 albo GluR3, czyli z dzisiejszych GluA1 i GluA3, przewodziły wapń. Te same podjednostki połączone z GluR2, czyli z GluA2, nie przewodziły go wcale [10]. Przepuszczalność okazała się więc cechą zestawu, nie rodziny. Kilka miesięcy później Sommer, Köhler, Sprengel i Seeburg pokazali, skąd bierze się wyjątkowość GluA2. W komórkach mózgu cząsteczka RNA tej podjednostki jest po przepisaniu genu poprawiana w jednym miejscu, przez co w wyściółce kanału zamiast glutaminy staje się arginina, a jej ładunek odpycha wapń [9].
Odkrycie zmieniło pytanie badawcze. Zamiast pytać, czy receptory AMPA przewodzą wapń, zaczęto pytać, w których komórkach i w jakich okolicznościach brakuje im GluA2. Odpowiedzi na to pytanie stoją dziś za opisem obumierania neuronów ruchowych w stwardnieniu zanikowym bocznym oraz za opisem uszkodzenia po niedokrwieniu [12, 27].
1.4. Ekspresja receptora NMDA i jej regulacja
Receptor AMPA powstaje w wersjach, które komórka ustala jeszcze przed spotkaniem z przekaźnikiem. Dwa mechanizmy działają na poziomie cząsteczki RNA i oba zmieniają czynność gotowego kanału, choć żaden nie zmienia samego genu. Pierwszy odpowiada za przepuszczalność dla wapnia, drugi za tempo wygasania odpowiedzi.
Poprawianie RNA w miejscu zwanym Q/R dotyczy wyłącznie podjednostki GluA2 i przeprowadza je deaminaza adenozynowa działająca na RNA typu 2 (ADAR2), enzym zamieniający adenozynę na inozynę. W zdrowym dojrzałym mózgu poprawce podlega niemal każda cząsteczka RNA tej podjednostki, dlatego GluA2 niesiona przez receptor praktycznie zawsze ma w kanale argininę [12]. Następstwa są trzy: kanał przestaje przepuszczać wapń, jego przewodnictwo maleje, a zależność prądu od napięcia staje się liniowa [11]. Receptor zawierający GluA2 jest więc kanałem ubogim, lecz przewidywalnym, a jego zadaniem jest przenieść sygnał, nie wpuścić jon sygnałowy.
Drugi mechanizm dotyczy krótkiego odcinka w domenie wiążącej ligand, który występuje w dwóch wersjach nazywanych flip i flop. Oba warianty powstają z tego samego genu, a ich proporcja zmienia się między typami komórek i w czasie rozwoju [1]. Wersja flip wygasa wolniej i pozostaje podatna na regulację przez białka pomocnicze, wersja flop wygasa szybciej i tę regulację niemal wyłącza [15, 16]. Receptor zbudowany z wariantów flop ma zatem odpowiedź krótką i mało zmienną, niezależnie od tego, jakie białka pomocnicze go otaczają.
Skutek obu mechanizmów jest wspólny. Komórka nerwowa przystępuje do przekaźnictwa z gotową pulą receptorów o z góry ustalonej przepuszczalności i szybkości, a dalsza regulacja może już tylko zmieniać ich liczbę i rozmieszczenie.
2. Działanie molekularne
2.1. Ligandy endogenne i egzogenne
Receptor AMPA ma w organizmie jeden ligand: glutaminian, główny przekaźnik pobudzający ośrodkowego układu nerwowego. Pęcherzyk uwolniony z zakończenia presynaptycznego podnosi jego stężenie w szczelinie na czas krótszy niż milisekunda, po czym transportery i dyfuzja usuwają przekaźnik [1]. Receptor AMPA jest dopasowany do takiego impulsu: wiąże glutaminian słabo, a przez to odpowiada na krótkie wyrzuty przekaźnika i nie sumuje tła.
Otwarcie kanału wymaga zajęcia co najmniej dwóch z czterech miejsc wiążących. Kolejne zajęte miejsca zwiększają przewodnictwo, dlatego ten sam receptor daje odpowiedzi o kilku możliwych amplitudach zamiast jednej [1]. Zależność ta sprawia, że siła synapsy zmienia się płynnie, a nie skokowo.
Ligandy egzogenne służą wyłącznie badaniom. Sama cząsteczka AMPA pobudza ten receptor wybiórczo i pozwala odróżnić jego prąd od prądu receptora NMDA. Kwas kainowy pobudza go słabiej, ale odpowiedź na niego prawie nie wygasa. Używa się go tam, gdzie potrzebny jest prąd utrzymujący się przez sekundy [1]. Żadna z tych substancji nie ma zastosowania leczniczego, a ich wartość polega na tym, że pozwalają badać jeden typ receptora w tkance zawierającej wszystkie trzy.
2.2. Podtypy receptora i ich rozmieszczenie
Receptory AMPA nie dzielą się na podtypy tak, jak receptory metabotropowe dzielą się na odrębne białka. Podtyp powstaje tutaj z doboru podjednostek, a dla czynności komórki rozstrzygające jest jedno pytanie: czy w zestawie znalazła się GluA2 [11].
Receptory zawierające GluA2 stanowią większość w korze mózgu, hipokampie i pozostałych obszarach przodomózgowia [6]. Przewodzą sód i potas, nie przewodzą wapnia, a ich prąd rośnie równomiernie wraz z hiperpolaryzacją błony. Receptory pozbawione GluA2 zachowują się odwrotnie w każdym z tych punktów. Przepuszczają wapń, mają większe przewodnictwo pojedynczego kanału i przy dodatnich potencjałach są zatykane od wewnątrz przez poliaminy, czyli naturalne cząsteczki cytoplazmy o kilku ładunkach dodatnich [11]. To zatykanie daje charakterystyczny kształt zależności prądu od napięcia i służy jako znacznik: po samym przebiegu prądu można stwierdzić, że komórka używa receptorów przepuszczalnych dla wapnia.
Takie receptory nie są rzadkością. Występują trwale w interneuronach hamujących o szybkim wyładowaniu, w części komórek glejowych oraz w niektórych synapsach pnia mózgu i móżdżku, gdzie o szybkości odpowiedzi decyduje podjednostka GluA4 [5, 11]. Pojawiają się też przejściowo w neuronach przodomózgowia po silnym pobudzeniu, a ich obecność zmienia wtedy synapsę z biernego przekaźnika w miejsce, gdzie sygnał elektryczny zamienia się na sygnał wapniowy [11]. Rozmieszczenie receptorów AMPA jest więc mapą nie tyle gęstości, ile ról: ta sama nazwa kryje kanał przenoszący informację i kanał uruchamiający przemiany wewnątrz komórki.
2.3. Kaskada po aktywacji
Receptor AMPA w spoczynku ma zamknięty kanał i rozwarte muszle domen wiążących ligand, a różnica potencjałów na błonie utrzymuje wnętrze komórki ujemne. Bodźcem jest pojedyncze uwolnienie pęcherzyka po stronie presynaptycznej. Dalszy przebieg zdarzeń mieści się w kilku milisekundach i daje się rozpisać na cztery kroki.
Glutaminian wpada do kieszeni utworzonej przez dwa płaty domeny wiążącej i zamyka je wokół siebie. Zamknięcie muszli napina krótkie łączniki biegnące do odcinków przezbłonowych i rozsuwa je jak przesłonę, co otwiera drogę przez błonę [7]. Przez otwarty kanał wpływa do komórki sód, a wypływa z niej potas, przy czym wpływ sodu przeważa, ponieważ siła go napędzająca jest w spoczynku większa. Ładunek dodatni gromadzący się pod błoną zmniejsza jej polaryzację i tworzy pobudzający potencjał postsynaptyczny [1]. Gdy transportery usuną glutaminian ze szczeliny, muszla rozwiera się, kanał zamyka się w czasie około jednej milisekundy, a potencjał zanika [2].
W receptorach pozbawionych GluA2 do tego samego kanału wpływa dodatkowo wapń. Jon ten nie tylko przenosi ładunek, lecz także uruchamia w kolcu dendrytycznym enzymy zależne od stężenia wapnia, więc ten sam impuls elektryczny zostaje przetłumaczony na sygnał chemiczny [11].
Depolaryzacja wytworzona przez receptory AMPA usuwa z kanału sąsiadującego receptora NMDA jony magnezu, które zatykają go przy potencjale spoczynkowym [1]. Krótki czas otwarcia receptora AMPA ma więc podwójne znaczenie. Odwzorowuje w błonie moment uwolnienia przekaźnika z dokładnością do ułamka milisekundy. Wyznacza też wąskie okno, w którym receptor NMDA może się otworzyć.
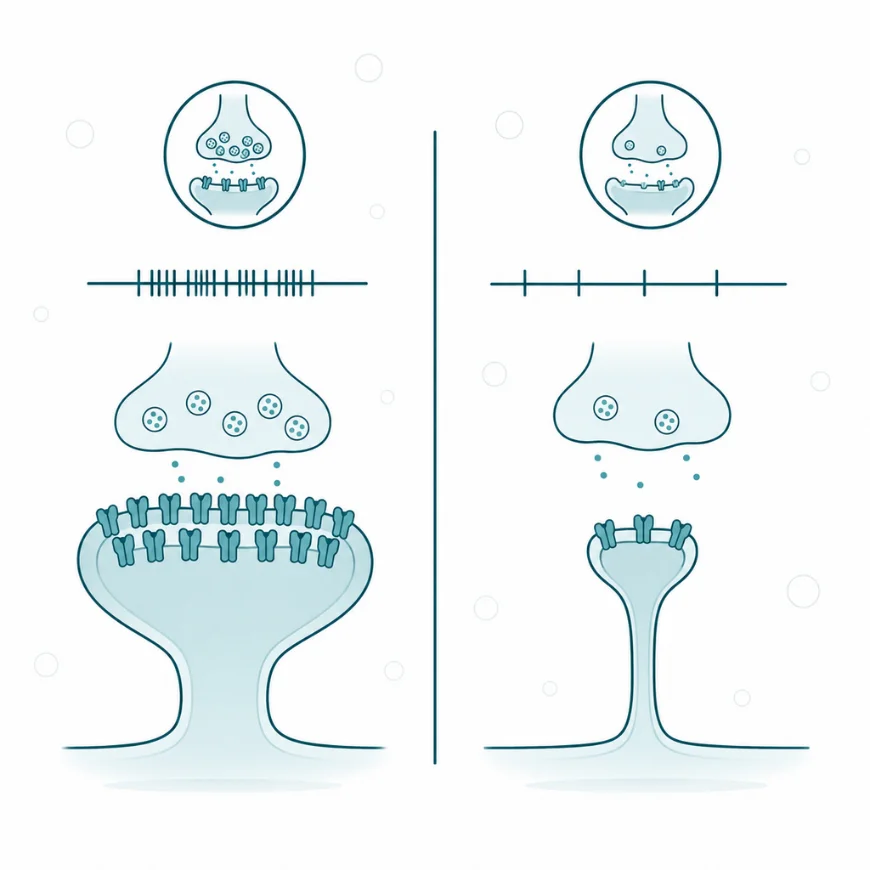
Wzmocnienie i osłabienie synaptyczne to ta sama synapsa w dwóch stanach: z gęstą albo rozrzedzoną warstwą receptorów i z inną wielkością kolca dendrytycznego.
2.4. Regulacja stężenia receptora AMPA
Receptor AMPA, który przez chwilę przewodził jony, nie wraca od razu do gotowości. Przy dłuższej obecności glutaminianu przechodzi w stan wygaszenia, w którym przekaźnik pozostaje związany, a kanał jest mimo to zamknięty. Ruchem odpowiadającym za to przejście jest rozerwanie styku między dwiema domenami wiążącymi ligand, które w stanie czynnym tworzą parę [7, 8]. Wygaszenie zaczyna się w czasie kilku milisekund, a powrót do gotowości trwa dziesiątki milisekund, dlatego synapsa pobudzana szybką serią impulsów odpowiada coraz słabiej.
Białka pomocnicze zmieniają te wartości bardziej niż jakikolwiek inny czynnik. Najlepiej poznaną ich rodziną są białka regulatorowe receptora AMPA związane z błoną (ang. transmembrane AMPA receptor regulatory proteins, TARP), których przedstawicielem jest stargazyna. Stargazyna wiąże się z odcinkami przezbłonowymi sąsiadujących podjednostek i rozluźnia stan zamknięty, przez co kanał otwiera się łatwiej i dłużej pozostaje otwarty [17, 18]. Osłabia też wygaszanie i zwiększa prąd utrzymujący się przy stałej obecności przekaźnika [17]. Inne białka pomocnicze działają odwrotnie albo w innym punkcie cyklu: kornichony spowalniają zamykanie kanału od pierwszej chwili zaniku prądu, a GSG1L i CKAMP44 wydłużają powrót ze stanu wygaszenia [16]. Receptor AMPA pozbawiony takiej obudowy jest zatem czymś innym niż receptor pracujący w synapsie.
Drugi sposób regulacji dotyczy nie pojedynczego kanału, lecz ich liczby. Receptory AMPA krążą nieprzerwanie między pęcherzykami wewnątrz komórki, błoną poza synapsą i samą synapsą, a ich pula w kolcu dendrytycznym wymienia się w ciągu minut [19]. O kierunku tego obrotu rozstrzygają zmiany na ogonie cytoplazmatycznym. Fosforylacja podjednostki GluA1 przez kinazę zależną od wapnia i kalmoduliny sprzyja dostawianiu receptorów do błony [20]. Utrzymuje je także w zagęszczeniu podbłonowym, czyli w gęstej warstwie białek pod błoną synapsy. Usunięcie tych reszt fosforanowych i przyłączenie ubikwityny działa odwrotnie i kieruje receptor do wchłonięcia oraz rozkładu [21].
Ten sam mechanizm utrwala zmianę siły synapsy. Podczas długotrwałego wzmocnienia synaptycznego rośnie liczba receptorów AMPA w kolcu, a nie przewodnictwo pojedynczego kanału, przy czym jako pierwsze dostawiane są receptory zawierające GluA1 [19, 23]. Podczas długotrwałego osłabienia synaptycznego zachodzi proces odwrotny, a receptory wchłonięte z błony trafiają do endosomów, skąd wracają do powierzchni albo idą do lizosomu na rozkład [21]. Zależność tę potwierdzono także poza warunkami skrawka. W badaniu u myszy uczących się sięgania po pokarm ilość receptorów AMPA rosła w skupiskach kolców kory ruchowej z każdym dniem treningu [22]. Siła synapsy jest więc wielkością zapisaną liczbą cząsteczek białka w błonie, a nie właściwością pojedynczego kanału.
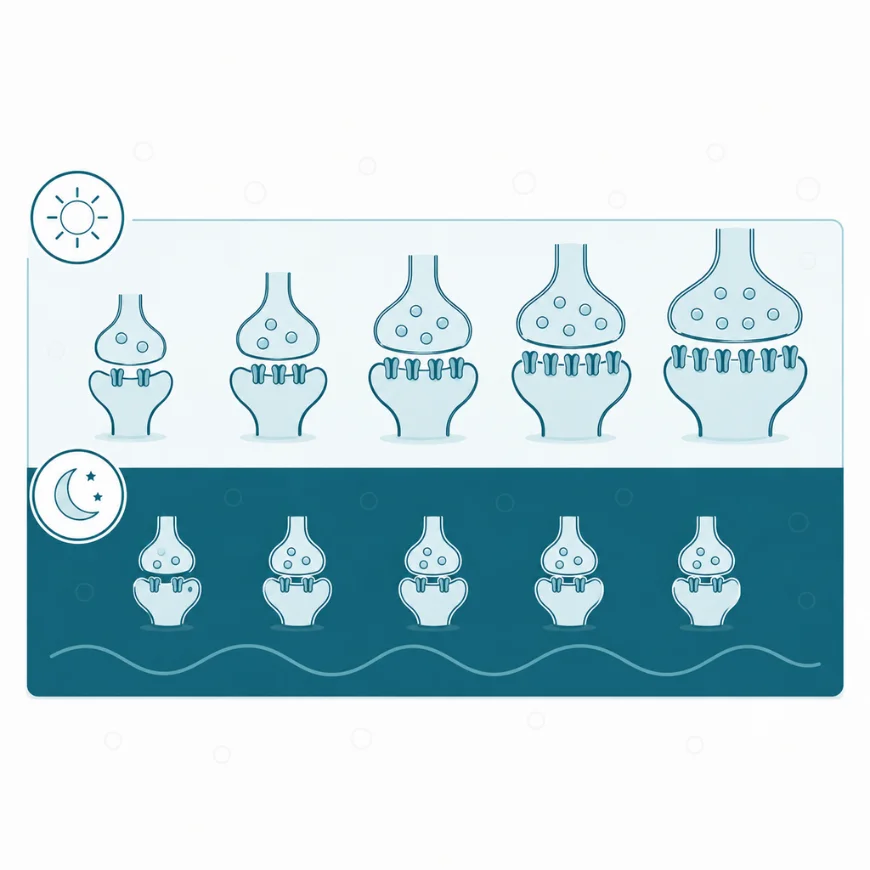
Liczba receptorów AMPA w błonie zmienia się w ciągu minut. To ich liczba, a nie ilość uwolnionego przekaźnika, decyduje o sile synapsy.
2.5. Farmakologia
Receptor AMPA ma trzy odrębne miejsca, w których może zadziałać substancja z zewnątrz: kieszeń wiążącą glutaminian, wnętrze kanału oraz styk dwóch domen wiążących ligand. Każde z nich daje inny typ działania i inną wybiórczość, a rozróżnienie to porządkuje całą farmakologię tego białka [4].
Antagoniści współzawodniczący, jak NBQX i CNQX, zajmują kieszeń wiążącą i nie dopuszczają do niej glutaminianu. Ich słabość wynika wprost z mechanizmu: przy dużym stężeniu przekaźnika glutaminian je wypiera, więc działają najsłabiej wtedy, gdy pobudzenie jest najsilniejsze. Obie substancje pozostają narzędziami pracowni elektrofizjologicznej i nie znalazły zastosowania leczniczego [1].
Antagoniści niewspółzawodniczący wiążą się poza kieszenią, w obrębie części przezbłonowej, i uniemożliwiają przeniesienie ruchu domeny na kanał. Ich działanie nie słabnie przy dużym stężeniu glutaminianu, co przy napadzie padaczkowym ma znaczenie rozstrzygające. Przedstawicielem tej grupy jest perampanel, jedyna substancja hamująca receptor AMPA zarejestrowana jako lek przeciwpadaczkowy [30]. W sieciowej metaanalizie szesnastu badań z randomizacją perampanel zmniejszał częstość napadów ogniskowych podobnie jak briwaracetam, eslikarbazepina i lakozamid [29]. Częściej niż briwaracetam wiązał się przy tym z wystąpieniem przynajmniej jednego działania niepożądanego [29]. Odrębną drogę do wybiórczości otwierają substancje celujące nie w sam receptor, lecz w jego białko pomocnicze. Związek LY3130481 wiąże się z białkiem TARP γ-8, obecnym głównie w przodomózgowiu, i hamuje wyłącznie receptory z nim związane. W modelach zwierzęcych dawało to działanie przeciwdrgawkowe bez zaburzeń ruchowych [31]. U ludzi substancja ta pozostaje w fazie badań.
Dodatnie modulatory allosteryczne wiążą się na styku dwóch domen wiążących ligand, czyli dokładnie tam, gdzie zachodzi rozerwanie prowadzące do wygaszenia odpowiedzi. Utrzymując ten styk, wydłużają prąd po związaniu glutaminianu, ale same kanału nie otwierają, więc wzmacniają sygnał wyłącznie w synapsach już czynnych [32]. Należą tu cyklotiazyd używany jako odczynnik, aniracetam oraz grupa związków nazywanych ampakinami, wśród nich CX614 i CX1739. Ich siła zależy od obudowy receptora: stargazyna zmienia powinowactwo tych substancji do receptora kilkukrotnie, co oznacza, że to samo stężenie działa inaczej w różnych typach komórek [36]. Ampakiny o słabszym wpływie na wygaszanie odpowiedzi nie wywoływały drgawek w badaniach przedklinicznych, a jedna z nich przeszła u zdrowych ochotników badanie pierwszej fazy oceniające bezpieczeństwo [37]. Danych o ich skuteczności u ludzi w jakimkolwiek wskazaniu nadal nie ma.
Osobną grupą są substancje zatykające kanał wyłącznie w receptorach pozbawionych GluA2, jak IEM-1460. Wykorzystują one to, że kanał przepuszczalny dla wapnia jest szerszy i inaczej naładowany niż kanał z argininą. W modelu mysim z upośledzoną poprawką RNA taka substancja znosiła napady drgawkowe, co pokazuje, że wybiórczość wobec receptorów przepuszczalnych dla wapnia jest osiągalna [14]. U ludzi związki z tej grupy nie były badane.
3. Znaczenie kliniczne
3.1. Skutki obniżonej aktywności
Synapsa uboga w receptory AMPA przewodzi słabo albo wcale, mimo że strona presynaptyczna działa prawidłowo i uwalnia przekaźnik. Skrajnym przypadkiem jest synapsa cicha, wyposażona w receptory NMDA i pozbawiona receptorów AMPA. Taka synapsa nie odpowiada na pojedynczy impuls przy potencjale spoczynkowym, a staje się czynna dopiero wtedy, gdy zależne od czynności dostawienie receptorów AMPA nada jej zdolność przewodzenia [24]. Synapsy ciche są liczne w niedojrzałej korze i stanowią rezerwę, z której powstają połączenia utrwalane w rozwoju.
U człowieka trwały niedobór czynności receptora ma dwa dobrze opisane źródła. Pierwszym są warianty genu GRIA3 znoszące czynność podjednostki GluA3. Wpływ takich wariantów na receptor oceniono elektrofizjologicznie, a dane kliniczne zebrano od dwudziestu pięciu chorych [25]. Osoby z wariantami znoszącymi czynność miały obniżone napięcie mięśniowe, zaburzenia snu i późniejszy wiek pierwszych napadów niż osoby z wariantami nasilającymi czynność [25]. Drugim źródłem są przeciwciała skierowane przeciw podjednostkom GluA1 i GluA2, które wiążą receptor i kierują go do wchłonięcia z błony. W przeglądzie systematycznym trzydziestu siedmiu opisanych chorych z takimi przeciwciałami najczęstszym objawem początkowym była nagła utrata pamięci świeżej, a zapalenie obejmowało układ limbiczny [26]. Ubytek receptorów AMPA daje więc obraz, w którym tkanka jest nienaruszona, a przekaz między neuronami zanika.
3.2. Skutki podwyższonej aktywności
Nadmierna czynność receptora AMPA szkodzi w sposób, którego nie da się sprowadzić do samej wielkości prądu. Rozstrzygające jest to, jaki jon przez kanał przechodzi, a o tym decyduje obecność GluA2. Ten sam ładunek przeniesiony przez sód i przez wapń ma dla komórki zupełnie inne następstwa, ponieważ wapń uruchamia enzymy trawiące białka i uszkadzające mitochondria.
Warianty genu GRIA3 nasilające czynność receptora dają obraz cięższy niż warianty ją znoszące: napady pojawiały się wcześniej, a chorzy mieli wzmożone napięcie mięśniowe i zaburzenia ruchowe [25]. Znacznie lepiej poznany jest skutek zawodzącej poprawki RNA. U myszy z poprawką w miejscu Q/R obniżoną o około jedną piątą stwierdzono ubytek kolców dendrytycznych i zanik neuronów pola CA1 hipokampa [14]. Zwierzęta te miały też napady drgawkowe niezależne od receptora NMDA [14]. U myszy pozbawionych enzymu ADAR2 w neuronach ruchowych wapń wpływał do komórki przez nieprawidłowe receptory i nadmiernie pobudzał kalpainę [13]. Kalpaina jest proteazą zależną od wapnia i tnie białko TDP-43 na fragmenty skłonne do zlepiania się [13]. Dane te pochodzą z modeli zwierzęcych. U chorych na stwardnienie zanikowe boczne opisano jak dotąd zbieżność obu zmian w tych samych neuronach ruchowych [13].
Ogólne uszkodzenie neuronu przez nadmiar glutaminianu dokonuje się głównie przez receptor NMDA [1]. Udziałem receptora AMPA jest krok wcześniejszy i bardziej wybiórczy: zmiana składu podjednostek, po której kanał przeznaczony do przenoszenia sygnału zaczyna wpuszczać jon uruchamiający rozpad białek.
3.3. Udział receptora AMPA w chorobach
Receptor AMPA uczestniczy w czterech grupach chorób na cztery różne sposoby. Wspólnym mianownikiem jest zmiana składu podjednostek albo zmiana liczby receptorów w błonie. Z tego powodu ten sam kanał jonowy pojawia się zarówno w neurologii, jak i w onkologii.
W stwardnieniu zanikowym bocznym o postaci sporadycznej neurony ruchowe z patologią białka TDP-43 wykazują jednocześnie obniżoną ilość enzymu ADAR2 i nieskuteczną poprawkę RNA w podjednostce GluA2 [13]. Powstające wtedy receptory przepuszczalne dla wapnia są jedną z nielicznych zmian molekularnych opisanych w postaci sporadycznej choroby, dlatego uznaje się je za punkt uchwytu projektowanych metod leczenia [12].
W padaczce receptor AMPA jest nie tyle przyczyną, ile ogniwem podtrzymującym wyładowanie. Napad polega na rozprzestrzenianiu się pobudzenia przez synapsy glutaminianergiczne, a hamowanie receptora przerywa to rozprzestrzenianie niezależnie od tego, co napad wywołało [30]. Ta sama zależność łączy padaczkę z chorobą Alzheimera, w której napady pojawiają się częściej niż w populacji ogólnej, a przekaźnictwo przez receptory AMPA jest nasilone [30].
Po niedokrwieniu mózgu skład receptorów zmienia się w ciągu godzin. W skrawkach hipokampa szczura poddanych pozbawieniu tlenu i glukozy podjednostka GluA2 była usuwana z błony i rozkładana, a w synapsach pozostawały receptory przepuszczalne dla wapnia [27]. Napływ wapnia tą drogą uczestniczy w opóźnionym obumieraniu neuronów, czyli w ubytku, który następuje po przywróceniu krążenia. Danych z bezpośrednich pomiarów u ludzi nie ma, a wnioskowanie opiera się na zgodności modeli zwierzęcych z obrazem neuropatologicznym.
Osobne miejsce zajmują glejaki. Komórki nowotworu tworzą z neuronami czynne połączenia, w których przekaźnictwo odbywa się właśnie przez receptory AMPA, a wywołana nimi depolaryzacja komórki nowotworowej pobudza jej podziały. W modelu przeszczepu ludzkiego glejaka u myszy sygnał przez receptor kinazy tropomiozynowej B zwiększał dostawianie receptorów AMPA do błony komórek nowotworu [28]. Przerwanie tego sygnału hamowało wzrost guza i wydłużało przeżycie zwierząt [28]. Przeniesienie tych wyników na leczenie u ludzi pozostaje przedmiotem badań.
3.4. Wsparcie suplementacyjne
Receptor AMPA jest punktem uchwytu dla kilku substancji dostępnych poza lecznictwem. Wszystkie mają status badawczy albo lekopodobny, a ich podstawę dowodową stanowią dane z modeli komórkowych i zwierzęcych. Zestawienie obejmuje substancje z katalogu platformy, dla których opisano działanie na sam receptor, a nie na zjawisko z nim powiązane.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Aniracetam | Wiąże się na styku domen wiążących ligand i spowalnia wygaszanie odpowiedzi, wydłużając prąd wywołany glutaminianem; status badawczy [32] | ↑ | C |
| IDRA-21 | Pochodna benzotiadiazyny nasilająca prąd przez receptor; w skrawkach hipokampa szczura zwiększała amplitudę potencjałów pobudzających i ułatwiała wywołanie wzmocnienia synaptycznego; status badawczy [33] | ↑ | C |
| Nefiracetam | Nasila fosforylację receptora przez kinazę zależną od wapnia i kalmoduliny, zwiększając odpowiedź synaptyczną w polu CA1 hipokampa szczura; status lekopodobny [35] | ↑ | C |
Wszystkie trzy pozycje mają jednakowo słabą podstawę: żadna nie ma potwierdzenia w badaniu u ludzi, a kierunek działania opisano wyłącznie na preparatach tkankowych i u gryzoni. Dane niekorzystne są przy tym wyraźne. W modelu całkowitego niedokrwienia u szczura IDRA-21 podana doustnie zwiększała ubytek neuronów pola CA1, ponieważ nasilenie odpowiedzi receptora AMPA szkodzi wtedy, gdy przekaźnictwo glutaminianergiczne jest już nadmierne [34]. Ta sama właściwość, która ułatwia wzmocnienie synaptyczne w zdrowej tkance, obciąża tkankę niedokrwioną. Szczegóły dawkowania, łączenia i przeciwwskazań zawierają karty substancji w dziale Suplementy.
4. Na co warto zwrócić uwagę
Receptor AMPA obrósł uproszczeniami, które biorą się głównie z jego nazwy i z popularności jednej grupy substancji. Pierwsze z nich każe widzieć w nim „receptor nootropowy”, ponieważ aniracetam i ampakiny opisuje się w piśmiennictwie popularnym jako środki działające przez ten właśnie receptor. Kierunek zależności jest odwrotny. Receptor AMPA jest podstawowym elementem szybkiego przekaźnictwa w całym ośrodkowym układzie nerwowym. Substancje modulujące jego czynność są względem tej roli marginesem, a ich skuteczności u ludzi nie potwierdzono w żadnym wskazaniu [37]. Sama nazwa też wprowadza w błąd, bo AMPA jest odczynnikiem otrzymanym w laboratorium, a nie substancją występującą w organizmie [1].
Drugie nieporozumienie dotyczy tego, co znaczy „silniejsza synapsa”. Potoczne wyjaśnienie odwołuje się do większej ilości uwalnianego przekaźnika, tymczasem zasadnicza część zmiany zachodzi po stronie odbiorczej i polega na zmianie liczby receptorów AMPA w błonie kolca dendrytycznego [19]. Ma to konsekwencję praktyczną przy czytaniu piśmiennictwa: we wzmocnieniu synaptycznym mierzy się zwykle liczbę receptorów w błonie albo amplitudę prądu, a nie ilość glutaminianu w szczelinie.
Trzecie uproszczenie przypisuje wpuszczanie wapnia wyłącznie receptorowi NMDA. Podział ten obowiązywał do 1991 roku i został wtedy obalony dwiema niezależnymi pracami [9, 10]. Receptory AMPA pozbawione podjednostki GluA2 przewodzą wapń, występują trwale w części neuronów i komórek glejowych, a przejściowo pojawiają się także tam, gdzie ich normalnie nie ma [11]. Rozróżnienie ma znaczenie dla interpretacji doświadczeń: napady drgawkowe u myszy z zaburzoną poprawką RNA utrzymywały się mimo hamowania receptora NMDA i ustępowały dopiero po zatkaniu kanału receptorów przepuszczalnych dla wapnia [14].
Ograniczenia dowodowe układają się w trzy grupy. Opis budowy i cyklu czynnościowego receptora opiera się w znacznej części na receptorach wytworzonych w liniach komórkowych i na obrazach z mikroskopii krioelektronowej, czyli na białku wyjętym z synapsy [5, 8]. Dane o modulatorach dodatnich pochodzą niemal wyłącznie z preparatów tkankowych i z gryzoni, a pojedyncze badania u ludzi oceniały bezpieczeństwo, nie skuteczność [37]. Udział receptorów przepuszczalnych dla wapnia w chorobach człowieka wnioskuje się z badań pośmiertnych i z modeli zwierzęcych. Czynności receptora u konkretnej osoby zmierzyć się nie da. Nie istnieje badanie laboratoryjne ani obrazowe, którego wynik opisywałby stan receptorów AMPA u pacjenta, a obrazowanie receptorowe pozostaje narzędziem pracowni badawczych [4].
Ostatnia uwaga dotyczy substancji nasilających odpowiedź receptora. Ich działanie nie polega na otwieraniu kanału, lecz na przedłużaniu odpowiedzi tam, gdzie przekaźnik już się pojawił, przez co efekt zależy od stanu tkanki i bywa przeciwny do zamierzonego [32, 34]. Treść hasła ma charakter edukacyjny i nie zastępuje porady medycznej.