1. Charakterystyka melatoniny
1.1. Definicja i klasyfikacja
Melatonina, czyli N-acetylo-5-metoksytryptamina, to hormon z grupy indoloamin. Indoloaminy są pochodnymi tryptofanu i zawierają pierścień indolowy. W klasyfikacji hormonów melatonina zajmuje miejsce osobne. Nie jest ani steroidem, ani peptydem, lecz małą cząsteczką z grupy amin biogennych, a jej najbliższym krewnym jest serotonina, ponieważ właśnie z niej melatonina powstaje. Głównym miejscem wytwarzania u kręgowców jest szyszynka, a wydzielanie zachodzi w porze ciemności [1, 17].
Melatoninę odróżnia się od trzech pojęć, z którymi bywa mieszana. Nie jest typowym neuroprzekaźnikiem, bo nie gromadzi się w pęcherzykach ani nie jest uwalniana w szczelinie synaptycznej. Pinealocyt wydziela ją do krwi w miarę powstawania. Stężenie w osoczu odzwierciedla więc bieżące tempo syntezy [1]. Nie jest też lekiem nasennym w rozumieniu farmakologicznym, ponieważ nie wygasza czuwania przez wzmocnienie przekaźnictwa hamującego, a jej wpływ na sen polega na przestawieniu fazy rytmu dobowego [1, 19]. Nie jest wreszcie tożsama z 6-sulfatoksymelatoniną, przy czym właśnie ten metabolit, wydalany z moczem, oznacza się w praktyce zamiast hormonu [1].
Zakres pojęcia obejmuje jedną cząsteczkę o stałej budowie. Jest ona identyczna niezależnie od tkanki, w której powstała, i niezależnie od tego, czy pochodzi z organizmu, czy z preparatu. Termin nie obejmuje natomiast całej czynności szyszynki, która wydziela także inne indole i peptydy.
Osobne hasło uzasadnia pozycja melatoniny jako jedynego hormonalnego wyjścia zegara biologicznego u człowieka. Jej nocny profil w osoczu jest najwiarygodniejszym dostępnym wskaźnikiem fazy tego zegara i dzięki temu stał się w chronobiologii punktem odniesienia [1]. Melatonina jest ponadto punktem uchwytu zarejestrowanych leków działających na receptory melatoninowe [13].
1.2. Budowa i właściwości melatoniny
O zachowaniu melatoniny w organizmie decydują dwa podstawniki pierścienia indolowego. Pierwszym jest grupa metoksylowa w pozycji piątej, drugim łańcuch N-acetylowy. Razem czynią cząsteczkę amfifilową, dostatecznie tłuszczolubną, by przechodzić przez błony, a jednocześnie dość polarną, by krążyć w osoczu. Z tej jednej cechy wynikają trzy następstwa o różnym charakterze.
Pierwsze dotyczy zasięgu. Melatonina przenika przez błony w znacznej mierze biernie, więc nie potrzebuje osobnego nośnika, aby dotrzeć do wnętrza komórki, jądra i mitochondriów. Wejście do samego mitochondrium zachodzi dodatkowo przez nośniki glukozy z rodziny GLUT oraz przez nośnik oligopeptydów PEPT, podczas gdy przez błonę zewnętrzną wystarcza prosta dyfuzja [8]. Stąd bierze się zasięg działania obejmujący praktycznie każdą tkankę, a nie tylko narządy z receptorem powierzchniowym.
Drugie następstwo dotyczy chemii. Pierścień indolowy z grupą metoksylową łatwo się utlenia. Melatonina reaguje zatem z rodnikami bez udziału enzymu, a produkty tej reakcji zachowują zdolność do dalszego wiązania utleniaczy [27, 28]. Reakcja ta nie wymaga receptora i przebiega tam, gdzie utleniacze powstają.
Trzecie następstwo dotyczy dynamiki. Melatoniny nie da się zmagazynować w ziarnistościach wydzielniczych, bo swobodnie opuszcza pinealocyt. Krzywa stężenia w osoczu odczytuje więc bezpośrednio aktywność enzymu ograniczającego syntezę [1, 6]. Hormon o zapasie tkankowym takiej właściwości nie ma, a właśnie ona czyni melatoninę wskaźnikiem czasu, nie tylko jego nośnikiem.
1.3. Synteza i źródła melatoniny
Melatonina powstaje z tryptofanu w czterech reakcjach, z których dwie ostatnie przebiegają w pinealocycie i decydują o rytmie jej wydzielania. Tryptofan jest najpierw hydroksylowany przez hydroksylazę tryptofanu do 5-hydroksytryptofanu. Ten jest następnie dekarboksylowany przez dekarboksylazę aromatycznych L-aminokwasów do serotoniny. Serotoninę acetyluje N-acetylotransferaza arylalkyloaminowa (AANAT) do N-acetyloserotoniny. Ostatnią reakcję, przeniesienie grupy metylowej, katalizuje O-metylotransferaza acetyloserotoninowa (ASMT).
tryptofan → 5-hydroksytryptofan → serotonina → N-acetyloserotonina → melatonina
Etapem ograniczającym tempo całego szlaku jest reakcja katalizowana przez AANAT. Ilość tego enzymu zmienia się w ciągu doby wielokrotnie, a ilość pozostałych zmienia się nieznacznie [6, 7]. Nocna indukcja AANAT zaczyna się od noradrenaliny, którą zakończenia zwoju szyjnego górnego uwalniają na pinealocycie. Noradrenalina pobudza receptory beta-adrenergiczne i podnosi stężenie cyklicznego adenozynomonofosforanu (cAMP), czyli wewnątrzkomórkowego przekaźnika uruchamiającego kinazę białkową A [6, 7]. Kinaza ta pobudza transkrypcję genu AANAT, a wynikający z niej wzrost ilości enzymu przekłada się w rezultacie na nocny wzrost stężenia melatoniny w osoczu. Dostępność samego prekursora nie jest w tym układzie czynnikiem rozstrzygającym, a podział podaży tryptofanu między szlaki opisuje hasło Tryptofan.
Szyszynka nie jest jedynym miejscem, w którym zachodzi ten szlak. Aktywność AANAT i obecność melatoniny opisano w siatkówce, w przewodzie pokarmowym oraz w komórkach odpornościowych [2]. W warunkach zapalenia czynnik jądrowy NF-κB, czyli białko przełączające ekspresję genów prozapalnych, przenosi wytwarzanie hormonu z pinealocytów na komórki odpornościowe [5]. Udział tych źródeł w stężeniu osoczowym pozostaje jednak sporny. Pogląd o czterystokrotnej przewadze jelita nad szyszynką oparto na oznaczeniach immunologicznych zawyżających wynik, natomiast po przeliczeniu na podstawie oznaczeń późniejszych proporcja wypada odwrotnie [4]. Usunięcie szyszynki znosi rytm osoczowy, co wskazuje na nią jako źródło melatoniny krążącej [4].
1.4. Transport melatoniny
Melatonina wyróżnia się wśród hormonów drogą, jaką dociera do receptora, ponieważ nie wymaga nośnika białkowego ani nie napotyka bariery, która stanowiłaby przeszkodę. Cząsteczka amfifilowa przechodzi przez barierę krew-mózg, przez łożysko i przez błony komórkowe. Do mitochondriów wnika dodatkowo przy udziale nośników glukozy i oligopeptydów [8]. Frakcja dostępna dla receptorów jest zatem bliska stężeniu całkowitemu, co odróżnia melatoninę od hormonów steroidowych i tarczycowych, krążących w większości w połączeniu z globulinami nośnikowymi.
Praktyczne następstwo tej właściwości jest jedno: stężenie melatoniny mierzone w dostępnym materiale odzwierciedla sygnał docierający do tkanek. Oznaczenie w ślinie wyznacza ten sam początek wydzielania co oznaczenie w osoczu, choć bezwzględne wartości są niższe [33]. Progi rozpoznania różnią się dlatego między materiałami i wynoszą 10 pg/ml w osoczu oraz 3 pg/ml w ślinie [31].
Odmiennie wygląda dostępność melatoniny podanej z zewnątrz. Po podaniu doustnym do krążenia trafia około piętnastu procent, bo pozostała część zostaje rozłożona przy pierwszym przejściu przez wątrobę [9]. Maksimum stężenia przypada na kilkadziesiąt minut od podania [9]. Rozbieżność między dostępnością wewnętrzną a zewnętrzną ma wymierne następstwo: stężenia uzyskiwane po podaniu preparatu bywają wielokrotnie wyższe od nocnych stężeń fizjologicznych [9].
1.5. Rys historyczny
Szyszynkę uznawano do połowy dwudziestego wieku za narząd szczątkowy, pozbawiony czynności wydzielniczej [3]. Punktem zwrotnym była praca Aarona Lernera i współpracowników z 1958 roku. Zespół wyizolował z szyszynki bydlęcej związek rozjaśniający skórę płaza, ustalił jego strukturę i nadał mu nazwę melatonina [2, 3].
Samo wyizolowanie nie rozstrzygnęło jeszcze, po co kręgowcowi ten związek. Odpowiedź przyniosło następne siedmiolecie prac biochemicznych i anatomicznych. Richard Wurtman i Julius Axelrod podsumowali je w 1965 roku opisem szyszynki jako przetwornika neuroendokrynnego, czyli narządu zamieniającego sygnał nerwowy o oświetleniu na sygnał hormonalny [3]. Dopiero to ujęcie zamieniło melatoninę z ciekawostki barwnikowej w hormon informujący o porze doby.
Kolejne rozstrzygnięcie dotyczyło samego źródła hormonu. Raikhlin i Kvetnoy wykryli melatoninę w tkance przewodu pokarmowego w 1974 roku [2]. Szyszynka przestała wtedy być jedynym znanym miejscem syntezy, a pytanie o udział źródeł pozaszyszynkowych pozostaje otwarte do dziś [2, 4].
2. Mechanizm działania i funkcje melatoniny
2.1. Receptory i punkty uchwytu
Melatonina ma u człowieka dwa receptory błonowe, MT1 i MT2, kodowane przez geny MTNR1A i MTNR1B. Oba są sprzężone z białkami G, to znaczy przekazują sygnał nie przez kanał jonowy, lecz przez białko zmieniające aktywność enzymów wnętrza komórki. Oba wiążą melatoninę z powinowactwem pikomolowym, czyli w zakresie stężeń osiąganych we krwi nocą, w odróżnieniu od receptorów wymagających stężeń farmakologicznych [11].
Rozmieszczenie obu receptorów wyznacza zasięg działania hormonu. Obecne są w jądrze nadskrzyżowaniowym podwzgórza, w części guzowatej przysadki, w siatkówce i w ścianie naczyń [11, 17]. Mają je także komórki beta wysp trzustkowych oraz komórki odpornościowe [11, 23]. Podział pracy między podtypami jest częściowy i nie w pełni rozstrzygnięty. U myszy pozbawionych receptora MT1 melatonina nie przesuwała fazy rytmu aktywności. Przesuwała natomiast fazę rytmu wyładowań neuronów jądra nadskrzyżowaniowego w skrawkach, co przypisano receptorowi MT2 [12]. Danych o tym podziale u człowieka brakuje, więc wnioskowanie opiera się na modelach zwierzęcych.
Poza receptorami błonowymi melatonina ma dwa punkty uchwytu o odmiennym charakterze. Wiąże się z jądrowymi receptorami z rodziny RORα i wpływa przez nie na ekspresję genów [8]. Reaguje też z rodnikami bez udziału jakiegokolwiek białka [27]. Wśród ligandów zewnętrznych tych receptorów są zarejestrowane leki: ramelteon i tasimelteon są agonistami obu podtypów, a agomelatyna łączy agonizm melatoninowy z hamowaniem receptora serotoninowego 5-HT2C [13]. Istnienie takich cząsteczek dowodzi, że miejscem oddziaływania na ten układ jest sam receptor, a nie tylko stężenie hormonu.
2.2. Kaskada sygnałowa
Stanem wyjściowym komórki docelowej jest podstawowa aktywność cyklazy adenylanowej, czyli enzymu wytwarzającego cAMP z adenozynotrifosforanu. Bodźcem jest związanie melatoniny z receptorem MT1 albo MT2. Receptor pobudza wtedy białko Gi, którego podjednostka alfa hamuje cyklazę, a stężenie cAMP w komórce spada [11]. Spadek cAMP zmniejsza aktywność kinazy białkowej A, czyli enzymu fosforylującego białka regulujące transkrypcję. Maleje w konsekwencji pobudzenie genów zależnych od tej drogi.
Do tego trzonu dochodzą dwa rozgałęzienia. Podjednostki beta i gamma uwolnionego białka G otwierają kanały potasowe, a wypływ potasu hiperpolaryzuje błonę i podnosi próg wyzwolenia potencjału czynnościowego [11, 12]. W części tkanek receptor MT2 pobudza dodatkowo fosfolipazę C i uruchamia drogę wapniową, wskutek czego ten sam hormon daje w różnych komórkach odpowiedzi różnego kierunku. Zjawisko to opisuje się jako uprzywilejowanie jednej drogi przekazu, zależne od białek towarzyszących i od tworzenia dimerów receptorowych [11].
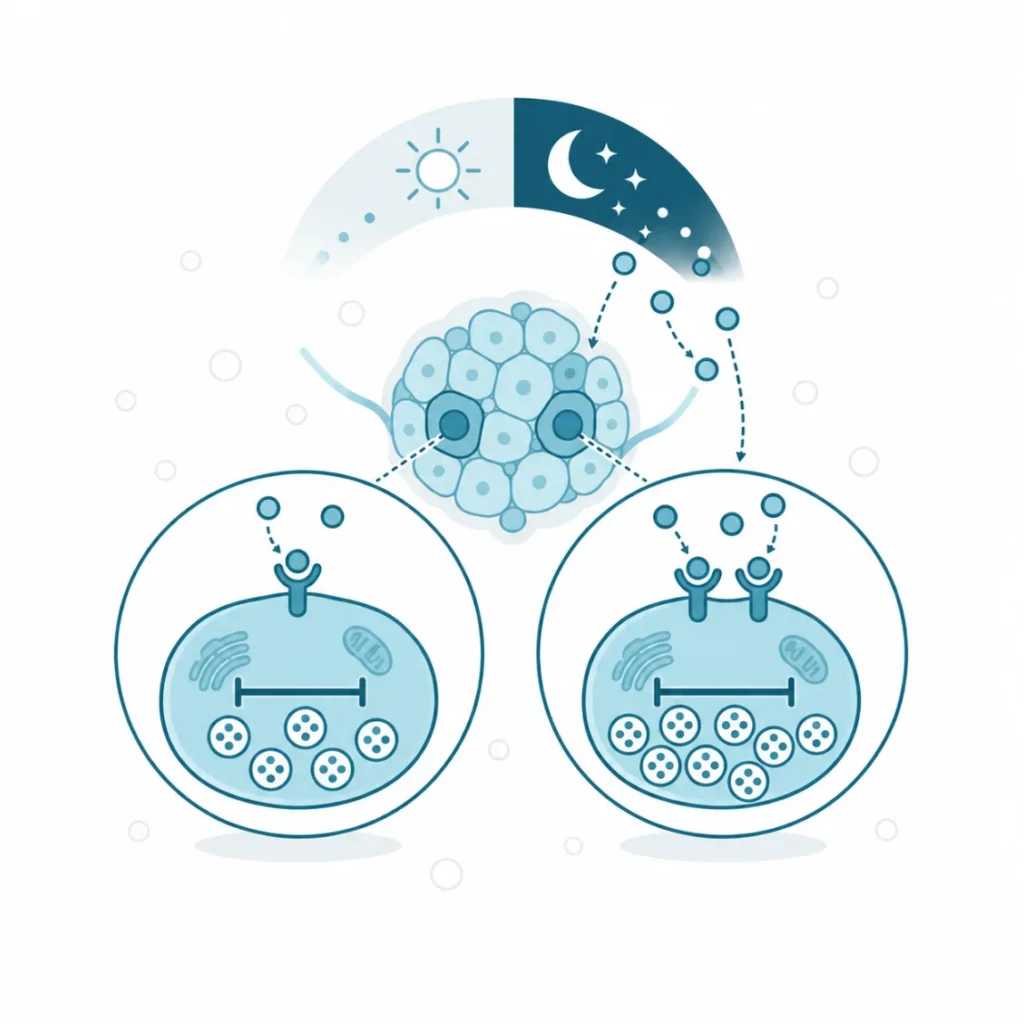
Stanem końcowym jest obniżenie aktywności komórki docelowej w większości tkanek. W jądrze nadskrzyżowaniowym hiperpolaryzacja obniża częstość wyładowań neuronów zegara, a jednoczesny spadek cAMP przestawia ich fazę [12]. W komórce beta wyspy trzustkowej spadek cAMP zmniejsza egzocytozę pęcherzyków insuliny, bo ten przekaźnik wzmacnia wydzielanie wywołane glukozą [23, 24]. Wspólna konsekwencja jest jedna: melatonina nie wprowadza do tkanki nowej czynności, lecz obniża natężenie czynności już zachodzącej, i robi to tylko w porze, w której krąży.
2.3. Funkcje
2.3.1. Sygnał długości nocy
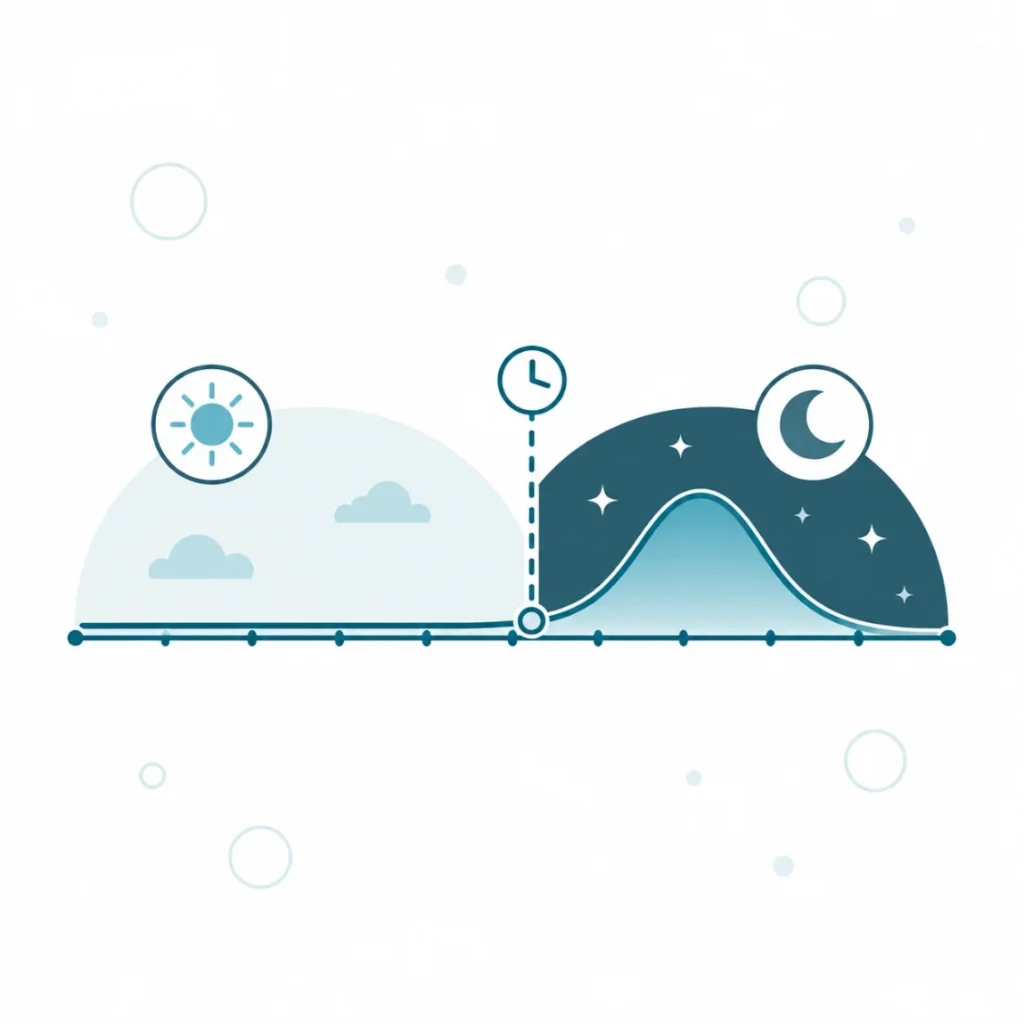
Podstawową funkcją melatoniny jest przenoszenie informacji o tym, jak długo trwa ciemność. Nośnikiem tej informacji nie jest maksymalne stężenie hormonu, lecz czas, przez który stężenie pozostaje podwyższone. Wydzielanie zaczyna się przed zwyczajową porą snu, utrzymuje przez całą noc i kończy nad ranem [1, 17]. Szerokość tego okna odpowiada więc długości nocy. Tkanki wyposażone w receptory melatoninowe odczytują nie natężenie sygnału, a jego rozciągłość w czasie.
Sygnał ten wraca także do samego zegara. Jądro nadskrzyżowaniowe, które wydzielanie melatoniny uruchamia, ma receptory dla własnego produktu. Hormon wzmacnia więc i stabilizuje rytm, z którego pochodzi [1]. Gdy melatonina trafia na układ o fazie przesuniętej, przestawia go. W metaanalizie badań nad zespołem opóźnionej fazy snu podanie hormonu przyspieszyło początek endogennego wydzielania średnio o 1,18 godziny, a początek snu o 0,67 godziny [20].
Konsekwencją takiego sposobu kodowania jest wspólna pora dla całego organizmu, ponieważ wszystkie narządy dostają jedną informację czasową, niezależną od własnych oscylatorów tkankowych. Opis samego oscylatora i czynników nastawiających go, w tym światła, zawiera hasło Rytm dobowy, którego melatonina jest wyjściem.
2.3.2. Ułatwienie zasypiania
Melatonina obniża próg zasypiania, ale nie wywołuje snu. Jej nocny wzrost towarzyszy spadkowi temperatury wewnętrznej ciała i narastaniu senności. Oba zjawiska następują po sobie w stałej kolejności względem początku wydzielania [1]. Mechanizm tego działania nie polega na wzmocnieniu przekaźnictwa hamującego w korze, lecz na zmianie stanu jądra nadskrzyżowaniowego, które przestaje utrzymywać czuwanie z siłą właściwą dla dnia [1, 12].
Wielkość efektu jest niewielka i dobrze zmierzona. Metaanaliza objęła dziewiętnaście badań z randomizacją i 1683 osoby z pierwotnymi zaburzeniami snu. Melatonina skróciła w nich czas zasypiania o 7,06 minuty i wydłużyła całkowity czas snu o 8,25 minuty wobec placebo [19]. Jakość snu poprawiła się o 0,22 standardowej różnicy średnich [19]. W metaanalizie zależności dawka-odpowiedź, opartej na dwudziestu sześciu badaniach z randomizacją, istotnym czynnikiem przewidującym skrócenie czasu zasypiania był odstęp między podaniem a zamierzoną porą snu [21]. Znaczenie odstępu bierze się z tego, że kierunek przesunięcia fazy zależy od jego wielkości względem własnego początku wydzielania [20, 21].
Z tych liczb wynika wniosek mechanistyczny. Działanie melatoniny na sen jest chronobiotyczne, to znaczy porządkuje porę snu. Ujawnia się więc najwyraźniej tam, gdzie pora snu jest przesunięta, a najsłabiej tam, gdzie faza jest prawidłowa, a sen mimo to zły. Rolę melatoniny w postępowaniu w bezsenności opisuje hasło o tym zaburzeniu.
2.3.3. Sezonowość
U gatunków rozmnażających się sezonowo melatonina przenosi informację o porze roku. Nośnikiem jest ta sama zmienna co przy rytmie dobowym, czyli długość nocnego wydzielania. Zimą okno wydzielania jest szerokie, latem wąskie. Układ rozrodczy odczytuje tę szerokość i odpowiednio dopuszcza albo wstrzymuje owulację i wytwarzanie plemników [17]. Miejscem odczytu jest część guzowata przysadki, w której gęstość receptorów melatoninowych jest największa. Docelowe działanie na wydzielanie gonadoliberyny zachodzi natomiast w podwzgórzu i przebiega przez sieć neuronów pośredniczących [17].
Dalszy ciąg tej drogi opisano najdokładniej u przepiórki. Sygnał z części guzowatej uruchamia miejscowe wydzielanie tyreotropiny, a ta pobudza dejodynazę typu drugiego w przypodstawnej części podwzgórza. Powstająca miejscowo trijodotyronina zmienia budowę zakończeń neuronów gonadoliberynowych i znosi zahamowanie wydzielania gonadotropin [18]. Droga poniżej odbioru sygnału świetlnego jest zachowana między ssakami a ptakami. U ptaków wejściem są jednak fotoreceptory głębokie mózgu, a nie melatonina [18].
U człowieka ta funkcja nie ma odpowiednika w postaci sezonowej płodności. Dane o sezonowej zmienności czynności innych układów pozostają niejednoznaczne [18]. Wnioskowanie o sezonowej roli melatoniny u ludzi opiera się więc na modelach zwierzęcych i jest ekstrapolacją, co ma znaczenie przy ocenie doniesień o sezonowych zaburzeniach nastroju.
2.3.4. Działanie metaboliczne
Melatonina wyznacza tkankom metaboliczną noc, czyli okres, w którym podaż składników pokarmowych jest nieoczekiwana, a odpowiedź na nią przytłumiona. Najlepiej opisanym ogniwem tego działania jest hamowanie wydzielania insuliny. Komórki beta wysp trzustkowych mają receptor MT2, a melatonina obniża w nich stężenie cAMP. Wyrzut insuliny wywołany glukozą maleje, co potwierdzono w komórkach linii wydzielniczych i w wyspach ludzkich [23, 24].
Dowód fizjologicznego znaczenia tego mechanizmu przyszedł z genetyki. Nosiciele wariantu ryzyka genu MTNR1B mają w wyspach więcej receptora i słabszą wczesną odpowiedź insulinową. Ich wydzielanie insuliny pogarsza się też szybciej w czasie, a sam wariant przewiduje wystąpienie cukrzycy typu 2 w dwóch dużych badaniach prospektywnych [23]. W badaniu z doborem uczestników według genotypu podanie melatoniny obniżyło wydzielanie insuliny i podniosło glikemię silniej u nosicieli wariantu ryzyka, podczas gdy myszy z usuniętym receptorem wydzielały insuliny więcej [24]. Zależność ta ma następstwo praktyczne: w badaniu z randomizacją i naprzemiennym przydziałem posiłek wieczorny zjedzony w porze wysokiego stężenia melatoniny pogarszał tolerancję glukozy, silniej u nosicieli wariantu ryzyka [25].
Melatonina wpływa również na ciśnienie tętnicze. W przeglądzie systematycznym ośmiu badań z randomizacją u osób z zaburzeniami metabolicznymi jej podawanie obniżyło ciśnienie skurczowe i rozkurczowe, przy znacznej niejednorodności wyników [26]. Konsekwencja obu obserwacji jest jedna: melatonina nie jest wobec metabolizmu obojętna, a przesunięcie jej wydzielania względem pory jedzenia zmienia odpowiedź na ten sam posiłek.
2.3.5. Działanie antyoksydacyjne
Melatonina wiąże rodniki w reakcji chemicznej, która nie wymaga receptora ani enzymu. Pierścień indolowy z grupą metoksylową oddaje elektron utleniaczowi, a powstający produkt zachowuje zdolność do dalszej reakcji. Jedna cząsteczka usuwa dlatego kolejno kilka utleniaczy, zamiast zużywać się w jednym zdarzeniu [27, 28]. Największe znaczenie ma ta reakcja w mitochondrium, bo tam powstaje większość utleniaczy, a stężenie melatoniny bywa wyższe niż w osoczu [8, 28].
Poza reakcją bezpośrednią melatonina zmienia ekspresję genów enzymów przeciwutleniających, między innymi przez receptory jądrowe RORα [27]. Ta droga jest wolniejsza i wymaga godzin, a nie sekund. Oba mechanizmy działają więc na różnych skalach czasu. Funkcja rodnikowa jest prawdopodobnie ewolucyjnie pierwotna. Melatonina występuje u bakterii, a organelle komórki eukariotycznej zachowały zdolność do jej wytwarzania po endosymbiozie, co jest postulowanym wyjaśnieniem jej obecności w mitochondriach [27].
Ocena znaczenia tej funkcji u człowieka wymaga ostrożności. Większość danych pochodzi z układów bezkomórkowych, z hodowli i z modeli zwierzęcych [8, 27, 28]. Stężenia stosowane w tych warunkach bywają o rzędy wielkości wyższe od nocnych stężeń fizjologicznych [8]. Wniosek o antyoksydacyjnej roli melatoniny endogennej w tkankach człowieka pozostaje zatem hipotezą mechanistyczną, nie ustalonym faktem klinicznym.
2.4. Regulacja wydzielania melatoniny i zmienność dobowa
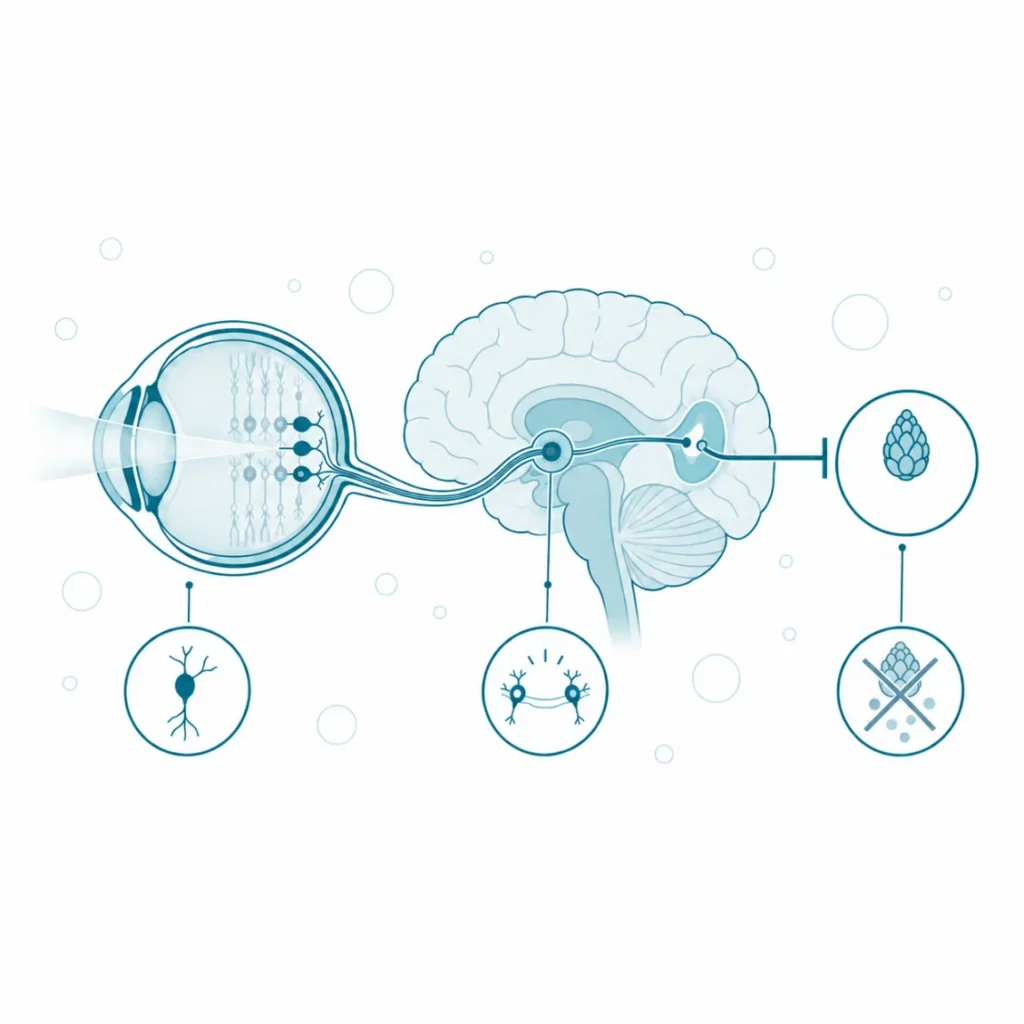
Tempo wydzielania melatoniny ustala droga nerwowa biegnąca od siatkówki do szyszynki, a nie krążący hormon zwrotny. Informację o oświetleniu odbierają wewnętrznie światłoczułe komórki zwojowe siatkówki, zawierające melanopsynę, czyli barwnik wrażliwy na światło krótkofalowe i działający niezależnie od pręcików i czopków [15]. Ich aksony biegną drogą siatkówkowo-podwzgórzową do jądra nadskrzyżowaniowego. Stamtąd sygnał przechodzi przez jądro przykomorowe podwzgórza i rdzeń kręgowy do zwoju szyjnego górnego, którego włókna zaopatrują szyszynkę [1, 15].
Światło w porze nocnej przerywa to pobudzenie i tłumi wydzielanie w ciągu minut. Zmiany ilości transkryptów zależnych od noradrenaliny w szyszynce cofają się po ekspozycji na światło z połową czasu od dziewięciu do trzydziestu dwóch minut [7]. Wrażliwość układu jest przy tym wysoka. Modelowanie danych z badań u ludzi wskazuje na tłumienie już przy około 1,5 luksa melanopowego i nasycenie przy 305 luksach melanopowych [14]. Najlepszym predyktorem siły tłumienia jest naświetlenie przeliczone na pobudzenie melanopsyny, nie zaś jasność postrzegana [14].
Na tę dobową regulację nakładają się trzy źródła zmienności. Pierwszym jest długość naświetlenia w poprzednich dniach, która zmienia podatność genu AANAT na cAMP. U szczura wymagało to co najmniej siedmiu cykli i nastawiało szybkość nocnego wzrostu enzymu do pory roku [6]. Drugim jest wiek, który obniża amplitudę rytmu. U osób starszych nocne maksimum stężenia jest spłaszczone, u chorych z otępieniem spłaszczenie jest głębsze i koreluje z nasileniem zaburzeń poznawczych [29]. U stulatków różnica między dniem a nocą zostaje natomiast zachowana [29]. Trzecim jest choroba krytyczna, która zmienia rytm w dwie strony. Nasilenie encefalopatii tłumi i opóźnia szczyt, a wlew amin katecholowych wywołuje nadmierne wydzielanie [30]. Wspólna konsekwencja jest kłopotliwa dla interpretacji wyniku, ponieważ wydzielanie melatoniny odzwierciedla nie tylko fazę zegara, lecz także historię oświetlenia, wiek i stan pobudzenia adrenergicznego.
2.5. Inaktywacja i wydalanie melatoniny
Melatonina jest usuwana z organizmu szybko i głównie przez wątrobę. Pierwszą i podstawową reakcją jest hydroksylacja w pozycji szóstej, katalizowana przez cytochrom P450 1A2. Mniejszy udział mają izoformy 1A1 i 1B1, a drogą uboczną jest O-demetylacja przez izoformy 2C19 i 1A2 [10]. Powstająca 6-hydroksymelatonina zostaje sprzężona z siarczanem do 6-sulfatoksymelatoniny, która jest wydalana z moczem i stanowi główny metabolit oznaczany w praktyce [1].
Szybkość tej przemiany wyznacza całą farmakokinetykę hormonu. Okres półtrwania w osoczu wynosi około czterdziestu pięciu minut niezależnie od drogi podania [9]. Dostępność biologiczna po podaniu doustnym sięga około piętnastu procent, bo większość podanej ilości ulega rozkładowi przed wejściem do krążenia [9]. Na tempo rozkładu wpływają czynniki zmieniające aktywność izoformy 1A2, w tym kofeina, palenie tytoniu, doustne środki antykoncepcyjne oraz fluwoksamina [9]. U chorych w stanie krytycznym wchłanianie jest przyspieszone, a eliminacja upośledzona [9].
Obok drogi enzymatycznej istnieje droga nieenzymatyczna. Melatonina utleniana przez rodniki przechodzi w związki kynuraminowe, czyli produkty rozerwania pierścienia [27, 28]. Droga ta nie ma znaczenia ilościowego dla usuwania hormonu, ale wiąże jego inaktywację z działaniem antyoksydacyjnym, gdyż część cząsteczek ulega zużyciu właśnie tam, gdzie reaguje z utleniaczami. Konsekwencją krótkiego okresu półtrwania jest wysoka rozdzielczość czasowa sygnału: stężenie melatoniny podąża za bieżącą aktywnością AANAT z opóźnieniem liczonym w minutach.
3. Zaburzenia i modyfikacja
3.1. Zaburzenia stężenia i dostępności melatoniny
Obniżone wydzielanie melatoniny ma trzy powtarzalne przyczyny, a każda działa na innym odcinku tej samej drogi. Pierwszą jest światło w porze nocnej, które tłumi wydzielanie już przy oświetleniu bardzo słabym [14]. Drugą jest przerwanie przekazu współczulnego do szyszynki, bo nocna indukcja AANAT zależy od pobudzenia receptorów beta-adrenergicznych [6, 7]. Trzecią jest wiek, który spłaszcza amplitudę rytmu, najsilniej u chorych z otępieniem [29].
Następstwa takiego obniżenia trudno oddzielić od następstw samego rozregulowania rytmu. U chorych z otępieniem spłaszczenie nocnego szczytu korelowało z nasileniem zaburzeń poznawczych, ale korelacja nie rozstrzyga kierunku zależności [29]. Zachowanie różnicy między dniem a nocą u stulatków wskazuje raczej na amplitudę rytmu jako wskaźnik stanu zdrowia niż na niedobór hormonu jako przyczynę [29].
Nadmiar melatoniny nie tworzy natomiast opisanego zespołu klinicznego. Udokumentowana nadmierna produkcja ma charakter jatrogenny i dotyczy chorych leczonych wlewem amin katecholowych, u których stężenia przekraczają wartości spotykane w warunkach prawidłowych [30]. Osobną sytuacją jest wzmocnienie sygnału melatoninowego bez wzrostu stężenia hormonu. Zachodzi ono przy wariancie genu MTNR1B zwiększającym ilość receptora i ma własne następstwa metaboliczne [23, 24]. Rozróżnienie obu sytuacji jest istotne dlatego, że skutek zależy od liczby receptorów, a nie tylko od ilości krążącego hormonu.
3.2. Rola melatoniny w patogenezie chorób
Udział melatoniny w mechanizmach chorobowych ma dwa różne kształty. W jednym hormon jest ogniwem przyczynowym, w drugim jego rytm jest wskaźnikiem stanu innego układu.
Najlepiej udokumentowany udział przyczynowy dotyczy cukrzycy typu 2. Ciąg zdarzeń jest tu domknięty na każdym etapie: wariant ryzyka genu MTNR1B podnosi ilość receptora MT2 w komórce beta, a większa liczba receptorów silniej obniża cAMP w odpowiedzi na melatoninę. Niższe stężenie cAMP zmniejsza wyrzut insuliny, a osłabiona wczesna odpowiedź insulinowa przewiduje rozwój cukrzycy w badaniach prospektywnych [23]. Eksperyment z doborem według genotypu i eksperyment z usunięciem receptora u myszy potwierdziły oba końce tego łańcucha [24]. W związku z tym niezgodność pory jedzenia z porą wydzielania melatoniny stała się czynnikiem ryzyka dającym się badać, a późny posiłek pogarszał tolerancję glukozy właśnie u nosicieli wariantu ryzyka [25].
W zaburzeniach rytmu okołodobowego snu i czuwania melatonina jest zarazem wskaźnikiem i punktem uchwytu. W zespole opóźnionej fazy snu początek endogennego wydzielania jest przesunięty na późne godziny. Podanie hormonu przed tym początkiem przyspiesza zarówno wydzielanie własne, jak i porę zasypiania [20]. Opis samych tych zaburzeń, ich kryteriów i postępowania zawiera hasło Zaburzenia rytmu snu i czuwania.
Trzeci obszar dotyczy zapalenia. W warunkach odczynu zapalnego czynnik jądrowy NF-κB przenosi wytwarzanie melatoniny z pinealocytów na komórki odpornościowe [5]. Nocny sygnał szyszynkowy słabnie wtedy, a hormon powstaje miejscowo, w ognisku. Taka zmiana źródła łączy rozregulowanie rytmu w chorobach zapalnych z samym odczynem, a nie z uszkodzeniem szyszynki. Podobnie w stanie krytycznym zaburzenie rytmu narastało wraz z nasileniem encefalopatii i nie cofało się wraz ze stabilizacją stanu chorego [30].
3.3. Modyfikacja behawioralna i dietetyczna
Czynnikiem, który zmienia wydzielanie melatoniny najsilniej i najszybciej, jest rozkład oświetlenia w ciągu doby. Światło wieczorem opóźnia i tłumi wydzielanie, a światło rano przyspiesza fazę [38]. Wielkość obu efektów zależy od naświetlenia przeliczonego na pobudzenie melanopsyny, czyli od udziału krótkich fal, a nie od jasności odczuwanej [14, 38]. Próg tłumienia odpowiada oświetleniu bardzo słabemu, więc znaczenie ma także światło ekranów i oświetlenie pomieszczeń o niewielkiej jasności [14, 15].
Praca zmianowa i podróż przez strefy czasowe rozsuwają porę oświetlenia względem pory snu, przez co rytm melatoninowy i rytm zachowania rozchodzą się w fazie. U pielęgniarek i lekarzy przechodzących ze zmian dziennych na nocne przesunięcie fazy metabolitu melatoniny dawało się przewidzieć tylko częściowo na podstawie zapisu światła i aktywności [16]. Pokazuje to, jak duża jest w tym zakresie zmienność osobnicza.
Wpływ diety na wydzielanie melatoniny jest mniejszy, niż wynikałoby z samej budowy szlaku. Podaż tryptofanu zwiększa dostępność serotoniny dla AANAT. U starych ptaków ozdobnych podanie tego aminokwasu podnosiło amplitudę rytmu aktywności i spoczynku oraz obniżało aktywność nocną [37]. Doniesienia o wzroście stężenia melatoniny w osoczu po podaniu tryptofanu u ludzi opierały się jednak na oznaczeniach immunologicznych. Sam tryptofan i jego metabolity reagowały w nich krzyżowo z przeciwciałem, więc wzrost był w części artefaktem pomiaru [4]. Podział podaży tryptofanu między szlak serotoninowy i pozostałe opisuje osobne hasło o tym aminokwasie, a zalecenia dotyczące ekspozycji na światło i pory posiłków należą do działu Zaleceń.
3.4. Wsparcie suplementacyjne
Melatonina jest jednym z niewielu hormonów, których punkt uchwytu jest dostępny dwiema drogami. Pierwszą jest podaż samej cząsteczki, drugą podaż substratów jej szlaku. Zestawienie obejmuje wyłącznie substancje mające karty w katalogu platformy, dla których opisano wpływ na stężenie melatoniny albo na jej sygnał receptorowy. Przy każdej podano kierunek tego wpływu oraz siłę dowodów w skali A, B i C.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Melatonina | Wiązanie z receptorami MT1 i MT2 w jądrze nadskrzyżowaniowym przesuwa fazę oscylatora, a przy podaniu przed początkiem własnego wydzielania przyspiesza je o około 1,18 godziny [20] | ↑ | A |
| 5-HTP | Omija hydroksylację tryptofanu i zwiększa dostępność serotoniny dla AANAT; wlew u dwudziestu chorych z zaburzeniem panicznym i dwudziestu osób zdrowych podniósł stężenie melatoniny w osoczu [35] | ↑ | B |
| Tryptofan | Prekursor szlaku; u starych ptaków ozdobnych podanie podnosiło amplitudę rytmu aktywności i spoczynku, a doniesienia o wzroście stężenia u ludzi obciążała reakcja krzyżowa w oznaczeniu [4, 37] | ↑ | C |
| Pirydoksyna | Kofaktor dekarboksylazy aromatycznych L-aminokwasów; u szczurów na diecie bez pirydoksyny stężenie melatoniny w szyszynce było obniżone, a uzupełnienie witaminy je przywracało [36] | ↑ | C |
Z zestawienia wynika wniosek o nierównej jakości podstaw. Mocne dowody dotyczą wyłącznie podaży samej melatoniny, i to w odniesieniu do przesunięcia fazy, nie do podniesienia stężenia nocnego. Trzy pozostałe pozycje opisują punkt uchwytu w szlaku syntezy. Opierają się jednak na jednym badaniu u ludzi albo na modelach zwierzęcych, a w przypadku tryptofanu na wyniku obciążonym błędem metody oznaczania [4, 35, 36, 37]. Dawkowanie, łączenie i przeciwwskazania zawierają karty tych substancji w dziale Suplementy.
4. Uwagi praktyczne
4.1. Jak to zbadać
Oznaczenie melatoniny służy w praktyce jednemu celowi, czyli wyznaczeniu fazy zegara wewnętrznego. Wyznacza się do tego początek wydzielania melatoniny w warunkach przyćmionego światła (ang. dim light melatonin onset, DLMO). Jest to godzina, w której stężenie przekracza ustalony próg w serii próbek pobieranych wieczorem przy słabym oświetleniu [1, 32]. Materiałem jest osocze albo ślina, a progi różnią się między nimi i wynoszą 10 pg/ml w osoczu oraz 3 pg/ml w ślinie [31]. Wyznaczenie ze śliny daje wynik zgodny z osoczowym, więc oznaczenie domowe stało się przedmiotem uzgodnionego protokołu [32, 33]. Rozstrzygające są w nim kontrola oświetlenia, częstość i pora pobierania próbek oraz sprawdzenie, czy badany zastosował się do instrukcji [32].
Drogą alternatywną jest oznaczenie 6-sulfatoksymelatoniny w moczu, które nie wymaga wielokrotnego pobierania krwi. Zbiórka obejmująca pięćdziesiąt sześć godzin daje dopasowanie krzywej dobowej w blisko dziewięciu przypadkach z dziesięciu. Zbiórka trzydziestosześciogodzinna daje je w mniej niż połowie, a rozbieżność jest największa u chorych, nie u osób zdrowych [34]. W stanie krytycznym ten sam parametr przestaje odzwierciedlać rytm ośrodkowy i nie jest wtedy wiarygodnym wskaźnikiem fazy [30].
Odrębnym problemem jest jakość samego oznaczenia. Przegląd dwudziestu jeden zestawów immunologicznych jedenastu wytwórców pokazał, że wiele z nich nie ma opublikowanych badań walidacyjnych [31]. Część nie osiąga czułości potrzebnej do rozpoznania progu DLMO. Niektóre podają dzienne stężenia rzędu setek pikogramów na mililitr, czyli wartości nierealne u człowieka [31]. Z wyniku pojedynczej próbki pobranej w ciągu dnia nie da się zatem wyprowadzić wniosku o fazie ani o niedoborze. „Niedobór melatoniny” nie jest rozpoznaniem laboratoryjnym.
4.2. Na co warto zwrócić uwagę
Pierwszym nieporozumieniem jest traktowanie melatoniny jako łagodnego leku nasennego. Wielkość jej działania na sam sen jest niewielka. W przeglądach systematycznych dotyczących bezsenności przewlekłej u dorosłych nie stwierdzono istotnej poprawy czasu zasypiania, całkowitego czasu snu ani wydajności snu [22]. U dzieci i młodzieży poprawa była natomiast istotna [22]. Rozbieżność ta zgadza się z mechanizmem: hormon przestawia porę snu, więc pomaga wtedy, gdy pora snu jest przesunięta, a nie wtedy, gdy zaburzona jest sama ciągłość snu [20, 21]. Z tego samego powodu rozstrzygający jest odstęp między podaniem a własnym początkiem wydzielania [21].
Drugim nieporozumieniem jest pogląd o jelicie jako głównym pozaszyszynkowym źródle melatoniny. Twierdzenie o czterystokrotnej przewadze zawartości jelitowej nad szyszynkową oparto na jednym oznaczeniu z 1992 roku. Oznaczenia późniejsze dają proporcję rzędu jednej dziesiątej na korzyść szyszynki [4]. Melatonina powstaje w przewodzie pokarmowym, w siatkówce i w komórkach odpornościowych [5]. Rytm osoczowy zanika jednak po usunięciu szyszynki, więc te źródła nie podtrzymują puli krążącej [4].
Trzecim jest założenie, że więcej melatoniny znaczy lepiej. Wzmocnienie sygnału melatoninowego w komórce beta wyspy trzustkowej jest udokumentowanym czynnikiem ryzyka cukrzycy typu 2 [23, 24]. Niezgodność pory jedzenia z porą wydzielania pogarsza dodatkowo tolerancję glukozy [25]. Hormon ten porządkuje czas, a jego działanie zależy od pory, nie od ilości.
Ograniczenia dowodowe dotyczą przede wszystkim funkcji antyoksydacyjnej i mitochondrialnej. Większość danych pochodzi z hodowli i z modeli zwierzęcych, przy stężeniach o rzędy wielkości wyższych od nocnych stężeń u człowieka [8, 27, 28]. Przeniesienie tych wyników na fizjologię melatoniny endogennej pozostaje ekstrapolacją. Drugim źródłem niepewności jest jakość oznaczeń, która obciąża część piśmiennictwa o stężeniach melatoniny w tkankach i płynach [31]. Melatonina jest zarazem substancją czynną zarejestrowanych produktów leczniczych i składnikiem suplementów. Dawki, interakcje i przeciwwskazania zawiera jej karta w dziale Suplementy. Treść hasła ma charakter edukacyjny i nie zastępuje porady medycznej.