
1. Charakterystyka tryptofanu
1.1. Definicja i klasyfikacja
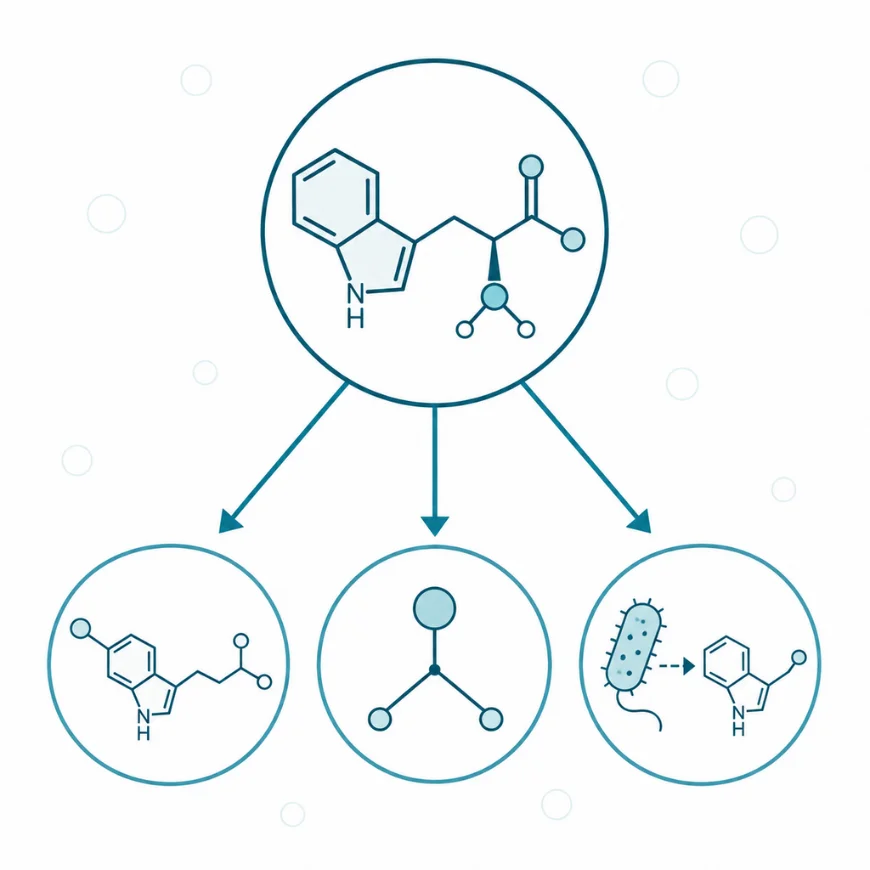
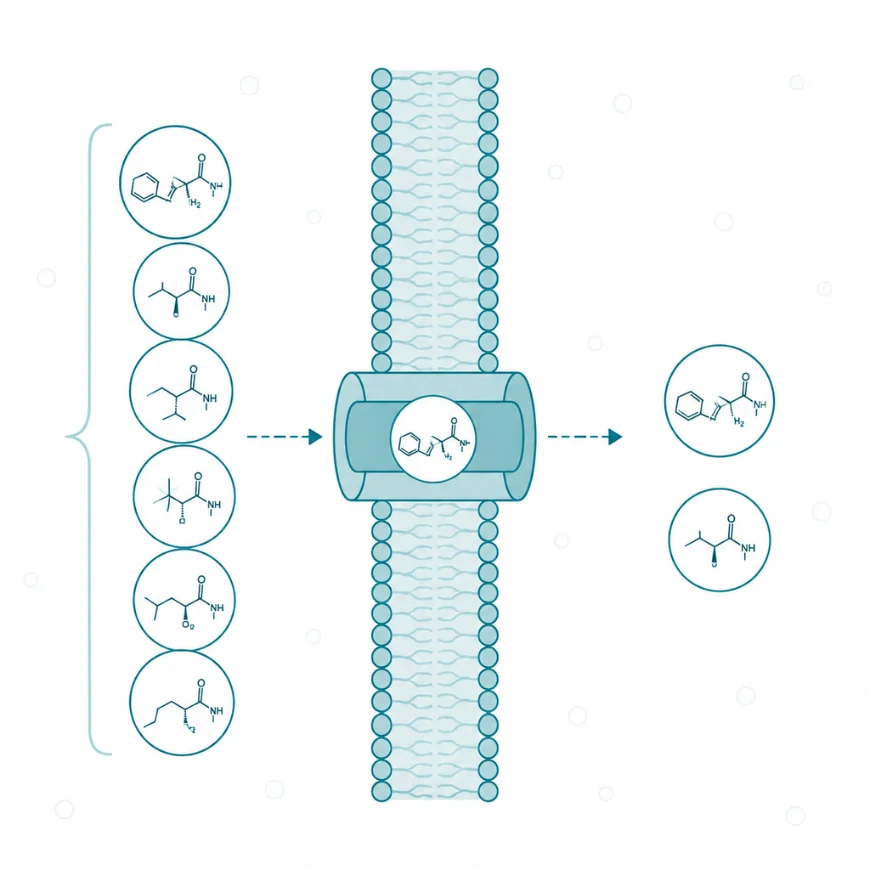
Tryptofan to aminokwas białkowy należący do aminokwasów niezbędnych. Niezbędny oznacza tu, że organizm człowieka nie potrafi go wytworzyć i pobiera go z białka pokarmowego [1, 4]. W klasyfikacji chemicznej zalicza się go do aminokwasów aromatycznych. Jego łańcuch boczny zawiera pierścień indolowy, czyli dwupierścieniowy układ z atomem azotu, nieobecny w żadnym innym aminokwasie białkowym. Pod względem transportu tryptofan należy do aminokwasów obojętnych o dużej cząsteczce. Grupę tę przenosi wspólny nośnik, a wchodzą do niej także walina, leucyna, izoleucyna, fenyloalanina, tyrozyna i metionina [9, 10]. W białkach organizmu występuje wyłącznie postać L i tylko ona wchodzi do przemian ustrojowych.
Tryptofan bywa mylony z trzema pojęciami bliskimi, lecz odrębnymi. Nie jest tożsamy z 5-hydroksytryptofanem (5-HTP), który powstaje z niego w pierwszej reakcji drogi serotoninowej. Ten metabolit wchodzi do drogi serotoninowej już za jej etapem ograniczającym [31]. Tryptofan nie jest też serotoniną ani melatoniną, bo obie są produktami przemiany, a nie odmianami tej samej cząsteczki. Nie jest wreszcie tryptaminą, czyli aminą powstającą z niego przez odłączenie grupy karboksylowej, wytwarzaną głównie przez bakterie jelitowe [24].
Zakres pojęcia obejmuje samą cząsteczkę oraz jej pulę w organizmie. Należą do niej aminokwas wolny w osoczu i w komórkach, jego postać związana z albuminą oraz reszty wbudowane w białka. Losy metabolitów powstających z tryptofanu mają własne opisy, a sam tryptofan jest w nich punktem wyjścia. Osobne hasło uzasadnia pozycja tego aminokwasu w gospodarce ustroju. Jest on jednocześnie budulcem białek, jedynym substratem syntezy serotoniny i jedynym aminokwasowym źródłem dinukleotydu nikotynamidoadeninowego. Jest też surowcem, z którego mikrobiota jelitowa wytwarza własne związki sygnałowe [1, 2, 3].
1.2. Budowa i właściwości tryptofanu
Tryptofan jest największą i najbardziej hydrofobową cząsteczką spośród aminokwasów białkowych, a decyduje o tym budowa jego łańcucha bocznego. Pierścień indolowy jest płaski, aromatyczny i słabo rozpuszczalny w wodzie. Zawiera przy tym grupę iminową zdolną do tworzenia wiązania wodorowego, a z tej dwoistości biorą się trzy następstwa praktyczne.
Pierwsze następstwo dotyczy sposobu, w jaki tryptofan pokonuje błony. Cząsteczka tej wielkości nie przenika przez błonę biologiczną drogą swobodnej dyfuzji. Jej wejście do komórki i do mózgu wymaga nośnika białkowego, a to oznacza konkurencję o miejsce wiązania z aminokwasami o podobnym rozmiarze [9, 10].
Drugie następstwo dotyczy sposobu krążenia aminokwasu we krwi. Tryptofan wiąże się odwracalnie z albuminą, a przez barierę krew-mózg przechodzi pula wolna [2, 15]. Każdy czynnik zmieniający siłę tego wiązania zmienia więc dostępność aminokwasu, nie zmieniając jego zawartości całkowitej. Wolne kwasy tłuszczowe zajmują na albuminie miejsca sąsiadujące z miejscem wiążącym tryptofan i podnoszą frakcję wolną, co obserwuje się podczas długiego wysiłku fizycznego [15, 16].
Trzecie następstwo dotyczy trwałości cząsteczki w warunkach analitycznych. Pierścień indolowy łatwo ulega utlenieniu, przez co tryptofan rozpada się podczas kwaśnej hydrolizy białka, a jego oznaczenie wymaga z tego powodu odrębnej procedury. Ten sam pierścień pochłania światło nadfioletowe i emituje własną fluorescencję. Dzięki temu reszty tryptofanowe służą jako wbudowany znacznik przy badaniu białek błonowych [6].
1.3. Rys historyczny
Miejsce tryptofanu w fizjologii ustaliły dwa rozstrzygnięcia oddalone od siebie o pół wieku. Oba dotyczyły nie samej cząsteczki, lecz tego, co z niej powstaje.
Pierwsze dotyczyło pelagry, którą na początku dwudziestego wieku uznawano za chorobę zakaźną albo za następstwo zatrucia zepsutą kukurydzą. Badania Josepha Goldbergera prowadzone w latach 1914–1929 wskazały tło żywieniowe wbrew obu tym poglądom [20]. W 1937 roku Conrad Elvehjem wyodrębnił czynnik zapobiegający pelagrze i rozpoznał w nim kwas nikotynowy [20]. W latach czterdziestych i pięćdziesiątych pelagrę opisano jako niedobór niacyny oraz jej aminokwasowego prekursora, czyli tryptofanu [20]. Rozstrzygnięcie to wyjaśniło obserwację kłopotliwą dla ówczesnej nauki o żywieniu. Dieta oparta na kukurydzy dostarczała białka w ilości pozornie wystarczającej, a mimo to wywoływała chorobę, ponieważ białko kukurydzy jest w tryptofan wyjątkowo ubogie.
Drugie rozstrzygnięcie przeniosło uwagę z ilości tryptofanu na jego podział. Pod koniec lat sześćdziesiątych Izjasław Łapin powiązał obniżoną aktywność serotoninergiczną w depresji nie z niedoborem aminokwasu w diecie, lecz z przekierowaniem jego przemiany [23]. Mechanizmem tego przekierowania miała być indukcja wątrobowej dioksygenazy tryptofanowej przez kortyzol [23]. Przedtem tryptofan traktowano przede wszystkim jako budulec i substrat dwóch niezależnych przemian. Po tej pracy samo rozgałęzienie stało się przedmiotem badań, a pytanie o dostępność aminokwasu zastąpiło pytanie o jego podaż.
1.4. Synteza i źródła tryptofanu
Organizm człowieka nie wytwarza tryptofanu, ponieważ nie ma enzymów szlaku szikimowego budujących pierścień indolowy. Szlak ten działa u roślin, grzybów i bakterii, więc cały tryptofan obecny w ustroju pochodzi z zewnątrz albo z rozpadu białek własnych. Zapotrzebowanie dobowe wyznaczono metodami bilansu azotowego i utleniania znacznika aminokwasowego. Przeglądy systematyczne wskazują przy tym, że dla tryptofanu dane u dzieci, kobiet w ciąży i osób starszych pozostają nieliczne [4].
Źródłem pokarmowym jest białko, a nie pojedynczy produkt. Tryptofan występuje we wszystkich białkach zwierzęcych i w większości roślinnych. Jego udział w masie białka jest natomiast najniższy spośród aminokwasów niezbędnych. Białka o niskiej wartości odżywczej limitują więc podaż właśnie na nim. Skrajnym przykładem pozostaje zeina, czyli białko zapasowe kukurydzy, uboga w tryptofan do tego stopnia, że dieta na niej oparta wywołuje pelagrę mimo dostatecznej ilości azotu [20].
Wchłanianie zachodzi w jelicie cienkim przez transporter B0AT1, kodowany przez gen SLC6A19. Białko to przenosi aminokwasy obojętne wraz z jonami sodu. Umieszczenie go w rąbku szczoteczkowym wymaga obecności konwertazy angiotensyny 2. Jej brak u myszy obniżał wchłanianie tryptofanu i prowadził do niedoboru niacyny oraz do słabszego wytwarzania jelitowych peptydów przeciwbakteryjnych [8], przy czym odpowiednich danych u człowieka jest mało. Mutacje samego SLC6A19 dają natomiast u ludzi chorobę Hartnupa z utratą aminokwasów obojętnych z moczem i z objawami przypominającymi pelagrę [7]. Drugim źródłem aminokwasu, ilościowo porównywalnym z dietą, jest ciągły rozpad białek własnych.
1.5. Transport tryptofanu
O tym, ile tryptofanu dotrze do neuronu, decyduje nie zawartość aminokwasu w posiłku. Rozstrzygają dwa filtry ustawione szeregowo: wiązanie z albuminą w osoczu i konkurencja o nośnik na barierze krew-mózg. Bez nich nie da się wyjaśnić zjawiska pozornie sprzecznego z intuicją. Posiłek bogaty w białko, a więc i w tryptofan, obniża jego dostępność dla mózgu.
Pierwszy filtr działa w osoczu, gdzie tryptofan krąży częściowo związany z albuminą, a pula wolna pozostaje w równowadze z pulą związaną [2]. Wolne kwasy tłuszczowe, których stężenie rośnie podczas głodzenia i długiego wysiłku, zajmują sąsiednie miejsca wiążące na cząsteczce albuminy i przesuwają tę równowagę w stronę frakcji wolnej. Podaż węglowodanów w czasie długiej jazdy na rowerze obniżała stężenie wolnych kwasów tłuszczowych i hamowała wzrost wolnego tryptofanu w osoczu, przez co kierunek tej zależności potwierdzono u ludzi [15].
Drugi filtr działa na barierze krew-mózg, czyli na śródbłonku naczyń mózgowych. Tryptofan przechodzi przez nią za pośrednictwem transportera LAT1, czyli nośnika aminokwasów obojętnych o dużej cząsteczce (ang. large neutral amino acid transporter 1). Białko to jest produktem genu SLC7A5 i działa jako wymiennik: wprowadza jeden aminokwas obojętny, wyprowadzając inny, i nie zużywa przy tym energii [9, 10]. Na powierzchni odwróconej do mózgu działają dodatkowo nośniki sodozależne, które usuwają aminokwasy z tkanki nerwowej z powrotem do krwi [11]. Nośnik LAT1 nie jest wybiórczy wobec tryptofanu, ponieważ przenosi także walinę, leucynę, izoleucynę, fenyloalaninę, tyrozynę i metioninę, a wszystkie one rywalizują o to samo miejsce wiązania [9]. Wielkością rozstrzygającą jest więc stosunek stężenia tryptofanu do sumy stężeń pozostałych aminokwasów obojętnych, a nie stężenie samego tryptofanu.
Z tego układu wynika zależność odwrotna do potocznego wyobrażenia. Posiłek białkowy podnosi stężenie wszystkich aminokwasów obojętnych, a tryptofanu podnosi najmniej, bo jest go w białku najmniej. Rozstrzygający stosunek spada zatem, a transport do mózgu maleje [12]. Posiłek węglowodanowy działa odwrotnie, ponieważ insulina kieruje aminokwasy rozgałęzione do mięśni, przez co stężenie konkurentów spada, a stosunek rośnie.
Wielkość tego wpływu zmierzono także przy manipulacji składem białka. Alfa-laktoalbumina jest białkiem serwatki o wyjątkowo dużej zawartości tryptofanu. Dieta z tym białkiem podniosła u ludzi rozstrzygający stosunek o 48% wobec diety z kazeiną [13]. Aminokwasy rozgałęzione działają w drugą stronę i ich podaż obniża wychwyt tryptofanu przez mózg. Na tej obserwacji opiera się hipoteza o ich udziale w zmęczeniu ośrodkowym [16]. Dostępność prekursora jest zatem wielkością sterowaną proporcją, a nie podażą, i ta cecha odróżnia tryptofan od pozostałych aminokwasów niezbędnych.
2. Mechanizm działania i funkcje tryptofanu
2.1. Wejście do przemian i punkty regulacji
Tryptofan wchodzi do komórki jako aminokwas wolny i od razu trafia na rozgałęzienie. Cztery drogi rywalizują tam o tę samą, niewielką pulę. Pierwszą jest wbudowanie w białko po przyłączeniu do własnego tRNA. Drugą jest droga serotoninowa, otwierana przez hydroksylację pierścienia indolowego, a trzecią droga kynureninowa, otwierana przez rozerwanie tego pierścienia. Czwartą przemiana bakteryjna w świetle jelita, prowadząca do pochodnych indolowych [3, 24].
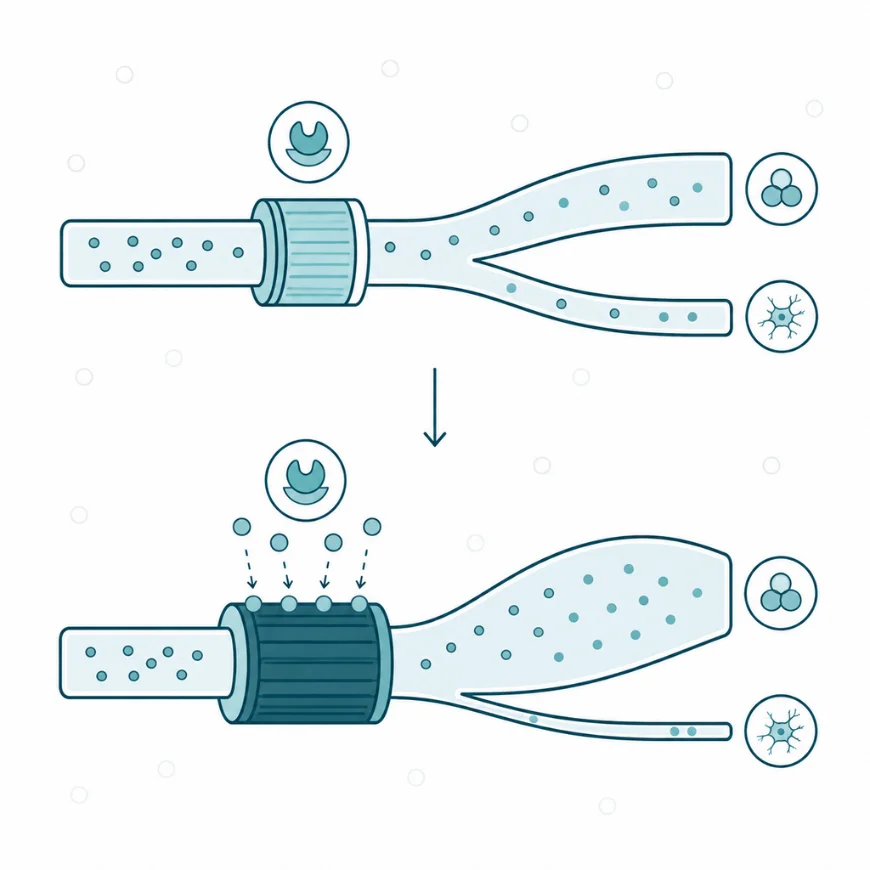
Proporcje między tymi drogami są dalekie od równowagi. Droga kynureninowa pochłania około 95% tryptofanu wchodzącego do rozkładu, a dziewięć dziesiątych tej ilości rozkłada wątroba [2]. Droga serotoninowa zużywa ułamek puli, co stawia ją w położeniu odbiorcy resztkowego, więc jej tempo reaguje na zmiany dostępności aminokwasu silniej niż tempo drogi głównej.
Rozgałęzieniem sterują trzy punkty, a pierwszym z nich jest samo stężenie substratu. Hydroksylaza tryptofanu, czyli enzym otwierający drogę serotoninową, nie jest w warunkach fizjologicznych nasycona swoim substratem, więc tempo syntezy zmienia się wraz z dostępnością aminokwasu [17]. Drugim punktem jest dioksygenaza tryptofanowa 2,3 (TDO), enzym wątrobowy otwierający drogę kynureninową. Indukują ją glikokortykosteroidy, stabilizuje własny substrat, a hamują zredukowane postaci dinukleotydu nikotynamidoadeninowego [2]. Trzecim punktem jest dioksygenaza indoloaminowa 2,3 (IDO1), czyli odpowiednik tego enzymu poza wątrobą. Indukują ją interferon gamma i inne cytokiny, przez co stan zapalny przesuwa podział puli w stronę kynureniny [2]. Dalsze enzymy i metabolity tej drogi opisuje osobne hasło o szlaku kynureninowym.
Konsekwencja tego układu jest podwójna: dostępność tryptofanu dla mózgu zmienia się przy każdym posiłku i przy każdej zmianie stężenia kortyzolu. W stanie zapalnym maleje dodatkowo wskutek indukcji drogi kynureninowej, choć zawartość aminokwasu w diecie pozostaje ta sama.
Szlak rozgałęzia się na serotoninowy i kynureninowy, ale proporcje są skrajnie nierówne — do serotoniny trafia tylko kilka procent puli tryptofanu.
2.2. Działanie sygnałowe i strukturalne
Tryptofan nie ma własnego receptora i nie działa jako cząsteczka sygnałowa w takim sensie jak hormon. Jego wpływ na czynność komórki bierze się z dwóch innych źródeł. Pierwszym jest miejsce, jakie zajmuje w białkach, a drugim właściwości związków, które z niego powstają.
Rola strukturalna wynika z hydrofobowości pierścienia indolowego, dzięki której reszty tryptofanowe skupiają się w białkach błonowych na granicy między fazą lipidową a wodną. Kotwiczą tam odcinek przezbłonowy i wyznaczają jego położenie oraz nachylenie wobec płaszczyzny błony [6]. W badaniach na modelowych peptydach przezbłonowych zamiana tryptofanu na inne reszty aromatyczne zmieniała orientację i ruchliwość całego odcinka [6]. Aminokwas ten pełni więc w błonie funkcję pozycjonującą, nie tylko wypełniającą. Ta sama cecha ma następstwo w laboratorium, bo fluorescencja reszt tryptofanowych zmienia się wraz z otoczeniem i służy jako miara zmian budowy białka.
Działanie sygnałowe przenoszą natomiast metabolity, ponieważ bakterie jelitowe przekształcają tryptofan w pochodne indolowe, a te wiążą się z receptorem węglowodorów aromatycznych (AhR). Receptor ten jest czynnikiem transkrypcyjnym obecnym w komórkach nabłonka i układu odpornościowego [24, 25]. Szczepy Lactobacillus wytwarzające kwas indolo-3-aldehydowy pobudzały u myszy wydzielanie interleukiny 22 i wzmacniały odporność błony śluzowej wobec grzybów z rodzaju Candida [25]. Ten sam receptor wiąże również metabolity drogi kynureninowej [25], przy czym danych opisujących tę zależność u ludzi jest niewiele, a jej znaczenie kliniczne pozostaje przedmiotem badań [24]. Tryptofan oddziałuje zatem na komórkę pośrednio: przez to, gdzie osiada w białku, i przez to, co z niego zrobią enzymy gospodarza oraz bakterie jelitowe.
2.3. Funkcje tryptofanu
2.3.1. Budulec białek
Tryptofan wchodzi do każdego powstającego białka na zasadach wspólnych dla wszystkich aminokwasów. Swoista syntetaza przyłącza go do własnego tRNA, a rybosom wbudowuje go w łańcuch w miejscu wskazanym przez kodon. Odrębność polega na proporcji: udział tryptofanu w masie białka jest najniższy spośród aminokwasów niezbędnych, więc jego pula wolna wystarcza na krótko [4, 5]. Przerwa w podaży odbija się z tego powodu na syntezie białek szybciej niż przerwa w podaży aminokwasów obfitszych.
Następstwo tej proporcji widać w ocenie jakości białka pokarmowego. Białko o niedostatecznej zawartości tryptofanu ogranicza wykorzystanie wszystkich pozostałych aminokwasów. Synteza zatrzymuje się bowiem na tym składniku, którego brakuje najwcześniej. Tryptofan bywa z tego powodu aminokwasem ograniczającym w dietach opartych na zbożach. Wartość odżywcza białka zależy zatem od jego składu, nie od samej ilości [4, 20].
2.3.2. Prekursor serotoniny i melatoniny
Tryptofan jest jedynym substratem, z którego powstaje serotonina, a droga do niej liczy dwa etapy. Pierwszym jest przyłączenie grupy hydroksylowej do pierścienia indolowego przez hydroksylazę tryptofanu. Drugim odłączenie grupy karboksylowej przez dekarboksylazę aromatycznych aminokwasów, z fosforanem pirydoksalu jako kofaktorem. Etapem ograniczającym jest pierwszy z nich, a enzym ten występuje w dwóch postaciach kodowanych przez odrębne geny. Hydroksylaza tryptofanu 1 (TPH1) działa w komórkach enterochromatofilnych jelita i w innych tkankach obwodowych. Hydroksylaza tryptofanu 2 (TPH2) działa w neuronach jąder szwu [17, 18].
Podział ten rozstrzyga częste nieporozumienie, ponieważ serotonina nie przechodzi przez barierę krew-mózg, więc pula obwodowa i ośrodkowa są od siebie oddzielone i pracują niezależnie [17]. Mózg nie korzysta z serotoniny wytworzonej w jelicie, a jedyną postacią, w jakiej może otrzymać surowiec, jest sam tryptofan. Znaczna większość serotoniny ustroju powstaje w jelicie i stamtąd trafia do płytek krwi, gdzie pełni funkcje niezwiązane z przekaźnictwem nerwowym [19]. W szyszynce serotonina ulega nocą dalszej przemianie do melatoniny, a enzymy tej przemiany opisuje hasło o melatoninie.
2.3.3. Substrat drogi kynureninowej
Droga kynureninowa jest głównym odbiorcą tryptofanu i pełni wobec niego funkcję regulującą, a nie tylko usuwającą. Rozerwanie pierścienia indolowego daje kynureninę, od której zaczyna się ciąg dalszych przemian. Reakcję tę prowadzi dioksygenaza tryptofanowa w wątrobie albo dioksygenaza indoloaminowa poza nią [2]. Sama możliwość szybkiego zwiększenia przepustowości tej drogi pozwala wątrobie usunąć nadmiar aminokwasu po posiłku białkowym. Stężenie tryptofanu utrzymuje się dzięki temu w wąskim przedziale.
Ta sama zdolność działa jednak w drugą stronę. Indukcja dioksygenazy indoloaminowej przez interferon gamma w przebiegu stanu zapalnego obniża stężenie tryptofanu w osoczu [2, 3]. Maleje przez to ilość dostępna dla syntezy serotoniny, a rośnie wytwarzanie metabolitów działających na receptory glutaminianu [3]. Droga ta wpływa również na gospodarkę hemem w wątrobie, ponieważ hem jest kofaktorem jej pierwszego enzymu [2]. Losy kynureniny i jej pochodnych opisuje osobne hasło o szlaku kynureninowym. Dla samego tryptofanu istotne jest to, że odbiorca pochłaniający większość puli reaguje na sygnały odpornościowe i hormonalne.
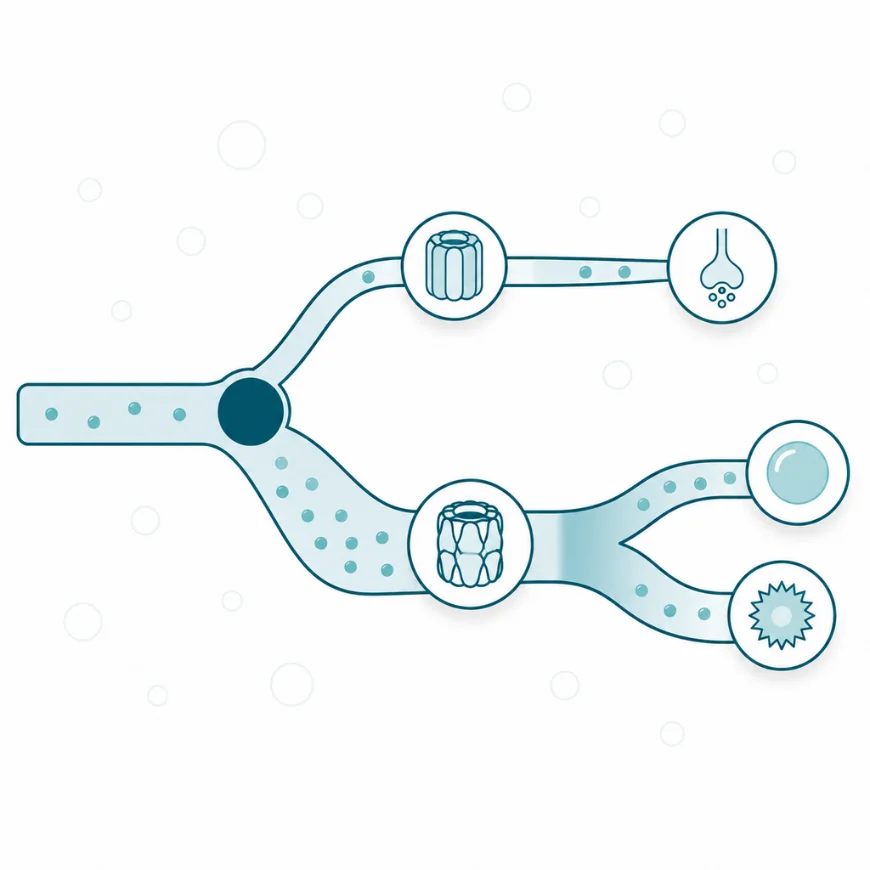
Zapalenie przesuwa metabolizm w stronę kynureniny. Ten sam tryptofan daje wtedy mniej serotoniny i więcej metabolitów neuroaktywnych.
2.3.4. Źródło niacyny i dinukleotydu nikotynamidoadeninowego
Tryptofan jest jedynym aminokwasem, z którego organizm wytwarza witaminę. Odgałęzienie drogi kynureninowej prowadzi przez kwas chinolinowy do mononukleotydu kwasu nikotynowego, a stamtąd do dinukleotydu nikotynamidoadeninowego (NAD) [2, 22]. Związek ten przenosi elektrony w reakcjach utleniania i redukcji oraz służy jako substrat enzymów naprawiających DNA [22]. Droga ta działa równolegle do dwóch pozostałych: wykorzystania niacyny z pokarmu i odzyskiwania nikotynamidu z rozpadu samego NAD [22].
Wydajność tej przemiany jest niska i mierzalna: bilans wydalania metabolitów niacyny z moczem u młodych kobiet na diecie pozbawionej tej witaminy dał współczynnik przeliczeniowy sześćdziesiąt siedem [21]. Wartość ta jest zbliżona do przyjmowanej w tabelach żywieniowych liczby sześćdziesiąt. Praktyczne następstwo dotyczy oceny podaży, ponieważ dieta uboga w niacynę nie wywołuje pelagry, o ile dostarcza dość białka bogatego w tryptofan. Dieta uboga w oba te składniki wywołuje ją nawet przy pozornie wystarczającej ilości azotu [20].
2.4. Regulacja przemian i zmienność dobowa
Stężenie tryptofanu w osoczu nie jest wielkością stałą, lecz zmienia się w rytmie wyznaczonym przez posiłki oraz przez wydzielanie hormonów. Pomiary u ludzi otrzymujących diety o różnej zawartości białka ujawniły dobowe wahania stężenia tryptofanu i pozostałych aminokwasów obojętnych [12]. Kształt tych wahań zależał od rozkładu białka w ciągu dnia [12]. Sam stosunek tryptofanu do konkurentów zmienia się przy tym inaczej niż jego stężenie bezwzględne, ponieważ posiłek działa na obie wielkości w przeciwnych kierunkach.
Na tę zmienność nakłada się regulacja enzymatyczna, bo poranny szczyt wydzielania kortyzolu indukuje wątrobową dioksygenazę tryptofanową i przyspiesza rozkład aminokwasu drogą kynureninową [2]. Sam tryptofan stabilizuje natomiast ten enzym, przez co po dużej podaży białka przepustowość drogi rośnie [2]. Trzecim czynnikiem jest insulina, która po posiłku węglowodanowym usuwa aminokwasy rozgałęzione z krwi do mięśni i podnosi stosunek tryptofanu do konkurentów bez zmiany jego stężenia.
Ten sam układ tłumaczy zmianę zachodzącą podczas długiego wysiłku. Rosnące stężenie wolnych kwasów tłuszczowych podnosi frakcję wolną tryptofanu [15]. Jednoczesne zużywanie aminokwasów rozgałęzionych przez mięśnie zmniejsza konkurencję na nośniku, więc obie zmiany działają w tę samą stronę [16]. Dostępność prekursora dla mózgu zmienia się więc w skali godzin, a pojedynczy pomiar stężenia opisuje stan chwilowy, nie właściwość osoby.
2.5. Przemiany końcowe i wydalanie
Tryptofan opuszcza organizm niemal wyłącznie jako produkt przemiany, bo jego wydalanie w postaci niezmienionej jest znikome. Główna droga kończy się całkowitym utlenieniem, bo ciąg reakcji kynureninowych prowadzi do acetylo-CoA, który wchodzi do cyklu kwasów trikarboksylowych [2]. Odgałęzienie tej drogi zasila natomiast syntezę dinukleotydu nikotynamidoadeninowego [22]. Nadmiar wytworzonej tą drogą niacyny opuszcza ustrój z moczem w postaci metylowanych pochodnych nikotynamidu. Pomiar tych pochodnych posłużył do wyznaczenia wydajności całej przemiany [21].
Pozostałe drogi mają własne produkty końcowe. Serotonina wytworzona w tkankach obwodowych i w mózgu ulega utlenieniu przez monoaminooksydazę do kwasu 5-hydroksyindolooctowego. Związek ten jest wydalany z moczem i służy w rozpoznawaniu guzów wydzielających serotoninę [17]. Pochodne indolowe powstałe z tryptofanu w jelicie wchłaniają się do krwi, ulegają sprzęganiu w wątrobie i opuszczają ustrój przez nerki, natomiast przy ich niewydolności gromadzą się w osoczu [24]. Niewielka część drogi kynureninowej kończy się przedwcześnie kwasem ksanturenowym. Ilość tego związku w moczu rośnie przy niedoborze witaminy B6, ponieważ jej czynna postać jest kofaktorem jednego z enzymów szlaku [32].
3. Zaburzenia i modyfikacja
3.1. Niedobór – przyczyny i następstwa
Niedobór tryptofanu rzadko bywa wybiórczy i najczęściej stanowi element niedoboru białka albo następstwo zaburzonego wchłaniania. Klasycznym mechanizmem żywieniowym pozostaje dieta oparta na kukurydzy. Białko zeiny dostarcza azotu, lecz zawiera tak mało tryptofanu, że synteza niacyny nie pokrywa zapotrzebowania [20]. Rozwija się wtedy pelagra z zapaleniem skóry, biegunką i zaburzeniami poznawczymi [20].
Drugą przyczyną jest defekt transportu, a jego przykładem pozostaje choroba Hartnupa. Mutacje genu SLC6A19 upośledzają w niej wchłanianie aminokwasów obojętnych w jelicie i ich zwrotne wchłanianie w cewce nerkowej [7]. Tryptofan jest wtedy tracony z moczem, a przy diecie ubogobiałkowej pojawiają się zmiany skórne i objawy neurologiczne przypominające pelagrę [7]. Podobny mechanizm opisano u zwierząt pozbawionych konwertazy angiotensyny 2. Brak białka towarzyszącego transporterowi obniżał u nich wchłanianie tryptofanu i wytwarzanie jelitowych peptydów przeciwbakteryjnych [8]. Danych opisujących tę zależność u człowieka jest mało.
Trzecią przyczyną jest nadmierne zużycie, bo w przebiegu przewlekłego zapalenia indukcja dioksygenazy indoloaminowej obniża stężenie tryptofanu w osoczu [2]. W zespole rakowiaka pula aminokwasu zużywa się na nadmierne wytwarzanie serotoniny przez guz, co w ciężkich postaciach prowadzi do objawów niedoboru niacyny [18]. Wszystkie trzy mechanizmy mają wspólne następstwo, ponieważ obniżają stosunek tryptofanu do pozostałych aminokwasów obojętnych, czyli ilość docierającą do mózgu.
3.2. Nadmiar – przyczyny i następstwa
Nadmiar tryptofanu nie powstaje z diety, bo udział tego aminokwasu w białku jest zbyt mały, a wątroba rozkłada nadwyżkę drogą kynureninową o dużej przepustowości [2]. Stan taki powstaje wyłącznie przy podaży czystego aminokwasu i dopiero wtedy pojawia się pytanie o granicę tolerancji.
Przegląd badań nad tolerancją aminokwasów podawanych ludziom w postaci wolnej objął również tryptofan [5]. Dane pozwalające wyznaczyć górną granicę bezpieczeństwa okazały się dla większości z nich nieliczne i pochodzące z badań krótkotrwałych [5]. Opisywanym następstwem dużej podaży są objawy ze strony przewodu pokarmowego oraz senność wynikająca z przyspieszonej syntezy serotoniny.
Odrębnym zagadnieniem jest połączenie z lekami hamującymi wychwyt zwrotny serotoniny albo jej rozkład. Podaż prekursora zwiększa wtedy ilość serotoniny uwalnianej w synapsie. Nałożenie obu mechanizmów opisano jako drogę do zespołu serotoninowego, przede wszystkim przy 5-hydroksytryptofanie łączonym z inhibitorami monoaminooksydazy [31]. Drugim następstwem dużej podaży jest przesunięcie podziału puli: nadmiar substratu stabilizuje dioksygenazę tryptofanową, przez co rośnie nie tylko synteza serotoniny, lecz również wytwarzanie metabolitów kynureninowych [2].
3.3. Rola tryptofanu w patogenezie chorób
Udział tryptofanu w chorobach polega nie na jego niedoborze w diecie. Rozstrzyga przesunięcie podziału jego puli między drogami przemian, a ten sam mechanizm powraca w kilku odległych od siebie stanach.
W depresji punktem wyjścia była hipoteza obniżonej dostępności prekursora. Narzędziem jej sprawdzenia stało się ostre zubożenie tryptofanu, czyli podanie mieszaniny aminokwasów pozbawionej tego składnika. Postępowanie to obniża stężenie tryptofanu w osoczu w ciągu kilku godzin, przez nasilenie syntezy białka i przez konkurencję na nośniku. W badaniu z randomizacją u zdrowych ochotników postępowanie to obniżało wskaźniki obwodowej przemiany serotoniny, co potwierdza skuteczność samej metody [29]. U osób zdrowych bez obciążenia rodzinnego nastrój zwykle nie zmienia się w sposób istotny. Ujawniają się natomiast zmiany węższe, na przykład w zachowaniach odwzajemniających w zadaniach ekonomicznych [30]. Odtworzenie objawów depresji obserwowano przede wszystkim u chorych w remisji po lekach serotoninergicznych [1]. Przemawia to za udziałem układu serotoninergicznego w utrzymaniu poprawy, a nie za tezą o pierwotnym niedoborze prekursora jako przyczynie choroby.
Drugim obszarem są choroby przebiegające z przewlekłym zapaleniem. Indukcja dioksygenazy indoloaminowej przez interferon gamma obniża stężenie tryptofanu i podnosi stężenie kynureniny. Zmianę tę opisano w zaburzeniach nastroju, w chorobach zapalnych jelit i w przewlekłej chorobie nerek [2, 3]. Dla samego aminokwasu istotny jest kierunek: im silniejsza aktywacja odpornościowa, tym mniejsza pula dostępna dla drogi serotoninowej.
Trzecim obszarem jest oś jelita-mózg. Skład mikrobioty jelitowej rozstrzyga, jaka część tryptofanu ze światła jelita zostanie przekształcona w pochodne indolowe, a jaka pozostanie do wchłonięcia [24]. Bakterie współdecydują więc o podaży prekursora dla gospodarza, a w zwierzęcych modelach zapalenia jelit przesunięcie tego podziału zmieniało stężenia metabolitów tryptofanu jednocześnie w jelicie i w mózgu [3, 26]. Badań u ludzi, które rozstrzygałyby kierunek tej zależności, brakuje.
3.4. Modyfikacja behawioralna i dietetyczna
Dostępność tryptofanu dla mózgu zmienia się pod wpływem czynników, które w większości dotyczą nie jego samego, lecz jego konkurentów i jego wiązania z albuminą. Rozpoznanie tych czynników wyjaśnia, dlaczego zmiana diety daje inny wynik, niż wskazywałby skład tabeli wartości odżywczych.
Skład posiłku działa dwutorowo, bo posiłek białkowy podnosi stężenie tryptofanu, ale silniej podnosi stężenie aminokwasów konkurujących z nim o nośnik [12]. Rozstrzygający stosunek spada zatem mimo większej podaży. Posiłek węglowodanowy nie zawiera tryptofanu w istotnej ilości, a mimo to ten stosunek podnosi, ponieważ insulina usuwa konkurentów z krwi do mięśni. Wyjątkiem są białka o nietypowym składzie, bo dieta z alfa-laktoalbuminą podniosła stosunek tryptofanu do pozostałych aminokwasów obojętnych o 48% wobec diety z kazeiną [13]. W grupie osób podatnych na stres towarzyszyło temu obniżenie stężenia kortyzolu [13].
Wysiłek fizyczny przesuwa równowagę w tę samą stronę przez dwa niezależne mechanizmy. Podnosi stężenie wolnych kwasów tłuszczowych wypierających tryptofan z połączenia z albuminą [15]. Zużywa przy tym aminokwasy rozgałęzione w mięśniu, co zmniejsza konkurencję na nośniku [16].
Trzecim czynnikiem jest skład mikrobioty jelitowej, który rozstrzyga o udziale tryptofanu przekierowanego na pochodne indolowe [24]. Zmiana diety wpływa przez to na podaż prekursora także drogą pośrednią [26]. Czwartym czynnikiem pozostaje stan zapalny, który obniża dostępność aminokwasu niezależnie od diety [2]. Zależności te opisano dotąd przede wszystkim w badaniach krótkotrwałych. Ich przełożenie na wielotygodniowe zmiany sposobu żywienia pozostaje nierozstrzygnięte [28].
3.5. Wsparcie suplementacyjne
Substancje z katalogu platformy wpływają na tryptofan trzema odrębnymi drogami. Pierwszą jest zmiana stosunku aminokwasów rywalizujących o transporter, drugą zmiana podziału puli między szlakami przemian. Trzecią jest wejście do drogi serotoninowej z pominięciem etapu ograniczającego. Kolumna kierunku opisuje wpływ na dostępność tryptofanu dla przemian gospodarza, nie na objaw kliniczny.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Tryptofan | Podaż wolnego aminokwasu poza posiłkiem białkowym podnosi jego stosunek do sumy pozostałych aminokwasów obojętnych rywalizujących o transporter LAT1 na barierze krew-mózg [9, 13, 27] | ↑ | B |
| Niacyna | Podaż niacyny zmniejsza zapotrzebowanie na jej wytwarzanie z tryptofanu, a zredukowane postaci dinukleotydu nikotynamidoadeninowego hamują dioksygenazę tryptofanową jako produkt końcowy szlaku [2, 21, 22] | ↑ | C |
| Pirydoksyna | Fosforan pirydoksalu jest kofaktorem dekarboksylazy aromatycznych aminokwasów i kynureninazy, więc jego niedobór zmienia podział tryptofanu między drogami przemian, nie zmieniając wielkości puli [2, 32] | ~ | B |
| 5-HTP | Hydroksytryptofan wchodzi do drogi serotoninowej za etapem ograniczającym i zwiększa syntezę serotoniny bez udziału hydroksylazy tryptofanu oraz bez zmiany puli samego tryptofanu [31] | ~ | B |
Z zestawienia wynika rozróżnienie, które ginie w opisach marketingowych. Tylko pierwszy wiersz zmienia ilość tryptofanu dostępną dla mózgu. Dwa kolejne przesuwają podział jego puli, a czwarty omija tryptofan całkowicie, więc nie jest jego zamiennikiem ani wzmocnieniem. Dawkowanie, formy i interakcje opisują karty substancji w dziale Suplementy.
4. Uwagi praktyczne
4.1. Jak to zbadać
Tryptofan oznacza się w osoczu metodami chromatograficznymi, najczęściej sprzężonymi ze spektrometrią mas. Oznaczenie wykonuje się w ramach profilu aminokwasowego albo jako pojedynczy parametr. Obejmuje ono stężenie całkowite, a frakcję wolną wyznacza się po oddzieleniu białek osocza przez ultrafiltrację. Sam wynik całkowity ma ograniczoną wartość, ponieważ o transporcie do mózgu rozstrzyga stosunek tryptofanu do sumy stężeń waliny, leucyny, izoleucyny, fenyloalaniny i tyrozyny [9, 12]. Wielkość tę wylicza się z pełnego profilu aminokwasowego [13]. W grupie dzieci z cukrzycą typu 1 stwierdzono obniżoną frakcję wolną tryptofanu oraz obniżony jej stosunek do aminokwasów obojętnych, co pokazuje, do czego obie wielkości bywają używane w badaniach [14].
Warunki pobrania zmieniają wynik bardziej niż różnice między osobami. Znaczenie mają pora doby, odstęp od ostatniego posiłku i jego skład [12]. Liczy się także wysiłek fizyczny poprzedzający pobranie oraz stężenie wolnych kwasów tłuszczowych, które przesuwa równowagę między frakcją wolną a związaną [15]. Czas od pobrania do odwirowania również wpływa na oznaczenie frakcji wolnej, ponieważ równowaga ta ustala się na nowo w probówce.
Trzy ograniczenia interpretacyjne pozostają istotne niezależnie od jakości oznaczenia. Stężenie tryptofanu w osoczu nie opisuje tempa syntezy serotoniny w mózgu, bo między jednym a drugim leżą transport, konkurencja na nośniku i aktywność enzymu. Stosunek kynureniny do tryptofanu służy jako wskaźnik aktywności dioksygenazy indoloaminowej. Opisuje on szlak kynureninowy, a nie stan zaopatrzenia w aminokwas, i omawia go osobne hasło. Oznaczenia „profilu neuroprzekaźników” w moczu, oferowane komercyjnie, nie mierzą przekaźnictwa ośrodkowego i nie mają udokumentowanej wartości interpretacyjnej.
4.2. Na co zwrócić uwagę
Z tryptofanem wiąże się kilka rozpowszechnionych przekonań, a każde z nich ma źródło w rzeczywistym mechanizmie odczytanym w niewłaściwą stronę.
Pierwsze dotyczy zdarzenia z 1989 roku, kiedy w Stanach Zjednoczonych rozpoznano ponad tysiąc przypadków zespołu eozynofilii i mialgii [33]. Choroba ta przebiega z bólem mięśni, eozynofilią i włóknieniem tkanek, a powiązano ją z przyjmowaniem preparatów tryptofanu [33]. Analiza epidemiologiczna wskazała partie pochodzące od jednego wytwórcy, który zmienił proces produkcji, a w preparatach wykryto zanieczyszczenia nieobecne w czystym aminokwasie [33]. Strukturę jednego z nich, oznaczanego wcześniej roboczo jako pik AAA, ustalono dopiero po latach [34]. Rozróżnienie to ma znaczenie dla oceny ryzyka, ponieważ odpowiedzialność ponosiła partia produkcyjna, a nie sama cząsteczka obecna w każdym białku pokarmowym.
Drugie przekonanie łączy senność po obfitym posiłku z zawartością tryptofanu w mięsie indyka. Mechanizm działa jednak odwrotnie, bo posiłek białkowy podnosi stężenie aminokwasów konkurujących z tryptofanem mocniej niż jego własne [12]. Rozstrzygający stosunek spada zatem, a nie rośnie. Ten sam błąd stoi za założeniem, że produkt bogaty w tryptofan zwiększa jego dopływ do mózgu.
Trzecie przekonanie dotyczy wniosków z ostrego zubożenia tryptofanu. Metoda ta obniża dostępność prekursora i bywa przedstawiana jako dowód, że depresja polega na niedoborze serotoniny. Wyniki badań przemawiają przeciwko takiemu odczytaniu, ponieważ u osób zdrowych obniżenie dostępności prekursora nie wywołuje depresji [30]. Nawrót objawów dotyczy przede wszystkim chorych w remisji po lekach serotoninergicznych [30]. Metoda mierzy zależność obecnego stanu od przekaźnictwa serotoninergicznego, nie przyczynę choroby.
Ograniczenia dowodowe wymagają odnotowania w trzech miejscach. W metaanalizie czterech badań nad podażą tryptofanu stwierdzono skrócenie czuwania po zaśnięciu przy braku wpływu na pozostałe składowe jakości snu [27]. Liczba badań i ich niejednorodność pozostają głównym ograniczeniem tego wniosku [27]. Przegląd systematyczny jedenastu badań z randomizacją nad nastrojem u osób zdrowych stwierdził efekt w czterech z nich, bez wpływu na wskaźniki agresji i przy bardzo zróżnicowanych sposobach podania [28]. Dane o działaniu pochodnych indolowych na receptor węglowodorów aromatycznych pochodzą w większości z modeli zwierzęcych i hodowli komórkowych, a odpowiednich badań u ludzi brakuje [24, 25].
Osobnego zaznaczenia wymaga granica warstw, bo tryptofan jest w wielu krajach dostępny jako składnik preparatów. Informacje o dawkach stosowanych w badaniach, o interakcjach z lekami serotoninergicznymi oraz o przeciwwskazaniach zawiera karta substancji w dziale Suplementy. Treść tego hasła ma charakter edukacyjny i nie zastępuje porady medycznej.