1. Charakterystyka tkanki tłuszczowej
1.1. Definicja i nazewnictwo
Tkanka tłuszczowa to rodzaj tkanki łącznej, której komórką właściwą jest adipocyt gromadzący triglicerydy w kropli lipidowej. W klasyfikacji histologicznej należy do tkanek łącznych szczególnych, a jej trzy postaci różnią się podstawowym zadaniem. Tkanka tłuszczowa biała magazynuje energię, brunatna zamienia ją w ciepło, a beżowa powstaje wewnątrz białej i przejmuje właściwości brunatnej [1, 2]. Adipocyt białej tkanki tłuszczowej zawiera jedną dużą kroplę lipidową, która odsuwa cytoplazmę i jądro na obwód komórki. Adipocyt brunatny ma wiele drobnych kropli i gęstą sieć mitochondriów z białkiem rozprzęgającym UCP1. Dzięki temu białku utlenianie substratów kończy się wydzieleniem ciepła zamiast wytworzeniem adenozynotrifosforanu [19, 20].
Określenie „narząd endokrynny” opisuje czynność, nie budowę. Tkanka tłuszczowa nie ma torebki, miąższu ani przewodu wyprowadzającego, spełnia jednak warunek wydzielania wewnętrznego, ponieważ wytwarza cząsteczki sygnałowe, wypuszcza je do krwi i działa nimi na odległe narządy [1]. Od pojęć pokrewnych odgranicza ją kilka różnic. Nie jest tożsama z tłuszczem pokarmowym, czyli mieszaniną lipidów w diecie, ani z masą tłuszczową ciała, która jest wynikiem pomiaru składu ciała. Od otyłości różni ją to, że otyłość jest stanem nadmiernego rozrostu tego narządu wraz z następstwami. Sam adipocyt również nie wyczerpuje pojęcia, ponieważ komórki tłuszczowe stanowią mniejszość komórek tkanki, a czynność wydzielnicza jest wypadkową ich pracy oraz pracy makrofagów, limfocytów, komórek śródbłonka i preadipocytów [12, 13].
Zakres pojęcia obejmuje wszystkie depozyty tłuszczowe organizmu: podskórne, trzewne oraz wyspecjalizowane, takie jak tkanka nasierdziowa, okołonaczyniowa, okołonerkowa i szpikowa [2, 4]. Osobne hasło uzasadnia skala tej czynności, gdyż tkanka tłuszczowa jest u osoby dorosłej jednym z największych pod względem masy narządów wydzielania wewnętrznego. Jej hormony docierają do wątroby, mięśni, naczyń, gonad i mózgu, dlatego uczestniczy w regulacji przemiany energetycznej na równi z klasycznymi gruczołami [1, 3].
1.2. Położenie i granice tkanki tłuszczowej
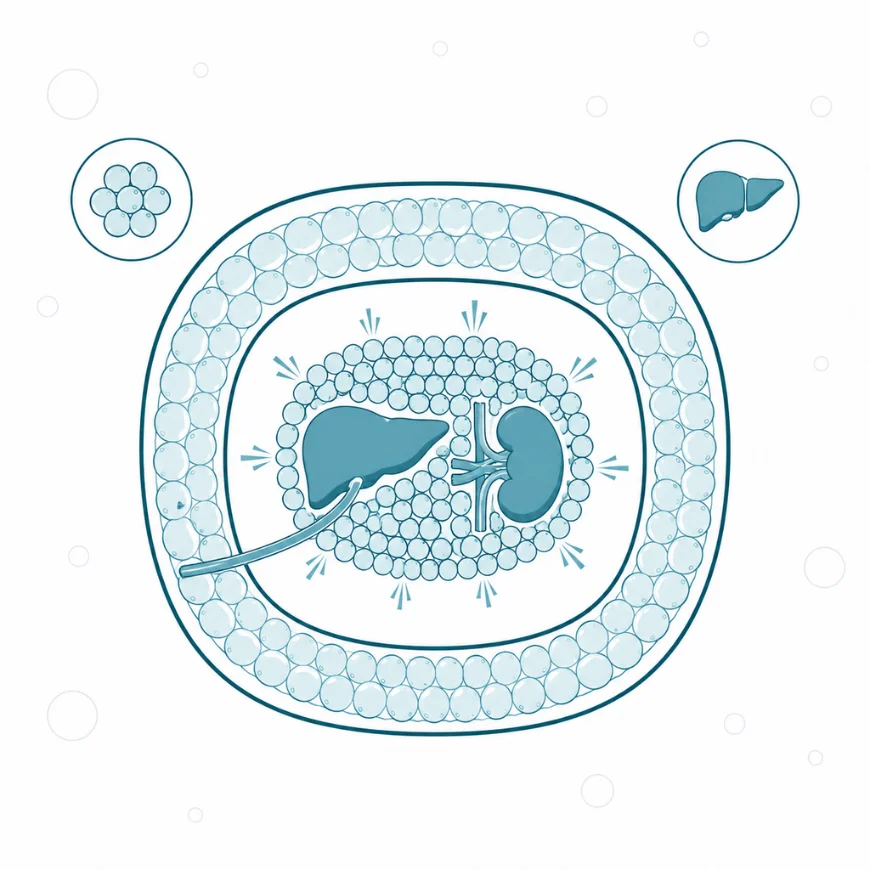
Depozyty tkanki tłuszczowej nie mają wspólnej granicy anatomicznej, natomiast układają się w dwa główne przedziały i kilka miejsc wyspecjalizowanych. Przedział podskórny leży pod skórą właściwą, a blaszka powięzi rozdziela go na warstwę powierzchowną i głęboką, przy czym obie różnią się profilem genów i wrażliwością na insulinę [2]. Przedział trzewny wypełnia jamę brzuszną i obejmuje tkankę sieciową, krezkową oraz zaotrzewnową, przylegającą bezpośrednio do pętli jelitowych i dużych naczyń [4].
Rozgraniczenie obu przedziałów ma następstwo krążeniowe. Krew z tkanki trzewnej odpływa do żyły wrotnej, więc uwolnione tam wolne kwasy tłuszczowe i cytokiny trafiają najpierw do wątroby. Ich stężenia są w krążeniu wrotnym wyższe niż w krążeniu ogólnym [4, 11]. Krew z tkanki podskórnej wchodzi wprost do krążenia systemowego i rozcieńcza się, zanim dotrze do narządu docelowego. Ta sama masa tłuszczu obciąża zatem organizm inaczej, zależnie od przedziału, w którym się odłożyła.
Zestawienie poniżej porównuje główne depozyty według położenia, drogi odpływu krwi i cechy wydzielania.
| Depozyt | Położenie | Odpływ krwi | Cecha wydzielania |
| Podskórny brzuszny | pod skórą przedniej ściany brzucha | krążenie systemowe | duże wydzielanie leptyny |
| Podskórny pośladkowo-udowy | pod skórą pośladków i ud | krążenie systemowe | mała lipoliza, profil przeciwzapalny |
| Trzewny sieciowy i krezkowy | jama brzuszna, przy jelitach | żyła wrotna | duże wydzielanie cytokin |
| Nasierdziowy | między mięśniem sercowym a osierdziem | naczynia wieńcowe | działanie na naczynia wieńcowe |
| Okołonaczyniowy | zewnętrznie od ściany tętnicy | ściana naczynia | wydzielanie czynników wazoaktywnych |
Wszystkie depozyty łączy brak własnej granicy torebkowej. Dzięki temu tkanka tłuszczowa rozrasta się i cofa bez przebudowy sąsiednich narządów, a jej objętość zmienia się w ciągu życia wielokrotnie [2, 3].
Depozyt trzewny i podskórny to tkanki o zupełnie odmiennym profilu metabolicznym. Ten pierwszy wydziela znacznie więcej mediatorów zapalnych, które przez krążenie wrotne trafiają bezpośrednio do wątroby. Depozyt podskórny to przede wszystkim magazyn energii.
1.3. Budowa makroskopowa i podział na części
Biała tkanka tłuszczowa ma barwę od białej do żółtej, zależną od karotenoidów rozpuszczonych w lipidach, a jej konsystencja jest miękka i ustępuje pod naciskiem. Brunatna jest ciemniejsza, gdyż zawiera gęstszą sieć naczyń włosowatych i znacznie więcej mitochondriów bogatych w cytochromy [19, 20]. Różnica barwy odpowiada różnicy zadania: narząd magazynujący potrzebuje objętości, natomiast narząd wytwarzający ciepło potrzebuje dopływu tlenu i odpływu ogrzanej krwi.
U noworodka brunatna tkanka tłuszczowa tworzy wyraźne skupiska międzyłopatkowe i szyjne, które chronią przed utratą ciepła. U osoby dorosłej jej rozmieszczenie jest inne i przez dekady uznawano ją za szczątkową. Badania z użyciem pozytonowej tomografii emisyjnej sprzężonej z tomografią komputerową (PET-TK) wykazały obecność czynnych metabolicznie skupisk u znacznej części osób badanych [16, 17]. Skupiska te leżą w okolicy szyjnej, nadobojczykowej, przykręgosłupowej i okołonerkowej, a ich masa jest mała w porównaniu z masą tkanki białej [19]. Wykrywalność zależy ponadto od temperatury otoczenia w czasie badania [20].
Podział narządu na części opiera się zatem na dwóch niezależnych kryteriach. Kryterium anatomiczne dzieli go na depozyty według położenia, natomiast kryterium czynnościowe na tkankę białą, brunatną i beżową, według sposobu wykorzystania lipidów [1, 2]. Oba podziały przecinają się, ponieważ komórki beżowe pojawiają się wewnątrz depozytów białych, najczęściej podskórnych, i nie tworzą osobnego skupiska [2, 19]. Opis tkanki tłuszczowej u konkretnej osoby wymaga więc podania jednocześnie miejsca i rodzaju komórek, a nie samej masy tłuszczu.
1.4. Budowa mikroskopowa
Obraz mikroskopowy tkanki tłuszczowej przeczy wyobrażeniu jednorodnego magazynu, gdyż adipocyty zajmują większość jej objętości, ale stanowią mniejszość liczby komórek. Pozostałą część tworzy frakcja zrębowo-naczyniowa, do której należą preadipocyty, komórki śródbłonka, makrofagi, limfocyty T, komórki tuczne i fibroblasty [12, 13]. Każdy adipocyt styka się z naczyniem włosowatym, dzięki czemu dyfuzja tlenu i odpływ uwolnionych kwasów tłuszczowych zachodzą na krótkim odcinku [1].
Trzy typy adipocytów różnią się budową wnętrza, pochodzeniem i czynnością. Adipocyt biały ma jedną kroplę lipidową zajmującą prawie całą komórkę i niewiele mitochondriów, bo jego zadaniem jest przechowywanie substratu, nie jego utlenianie. Adipocyt brunatny ma wiele drobnych kropli, co zwielokrotnia powierzchnię styku lipidów z cytoplazmą, oraz mitochondria z białkiem UCP1 w błonie wewnętrznej [19, 20]. Adipocyt beżowy pojawia się wewnątrz tkanki białej po pobudzeniu współczulnym i ma cechy pośrednie, a jego liczba rośnie i maleje wraz z bodźcem [2, 19].
| Cecha | Adipocyt biały | Adipocyt brunatny | Adipocyt beżowy |
| Kropla lipidowa | jedna, duża | wiele drobnych | wiele drobnych po pobudzeniu |
| Mitochondria z UCP1 | brak | liczne | pojawiają się po pobudzeniu |
| Umiejscowienie | wszystkie depozyty | szyja, nadobojczyk, przykręgosłupowo | wewnątrz depozytów białych |
| Zadanie | magazyn triglicerydów | wytwarzanie ciepła | wytwarzanie ciepła na żądanie |
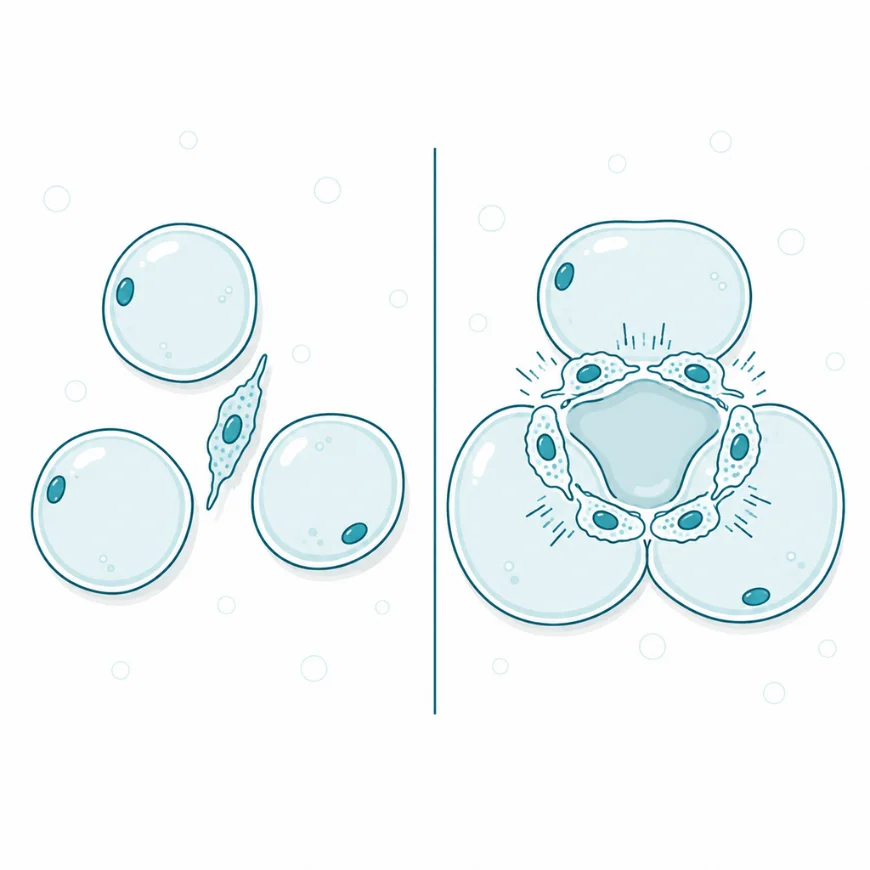
Wraz z rozrostem depozytu zmienia się także macierz zewnątrzkomórkowa. Przy szybkim powiększaniu adipocytów odkładanie kolagenu wyprzedza rozbudowę naczyń, a powstające pasma włókniste usztywniają tkankę i ograniczają dalsze magazynowanie lipidów [11, 13]. Wokół komórek obumierających makrofagi układają się w pierścienie, opisywane jako tak zwane struktury koronowe. Te właśnie skupiska są w otyłości głównym miejscem wytwarzania cytokin prozapalnych [12, 13]. Obraz mikroskopowy pozwala zatem odczytać, czy narząd magazynuje lipidy sprawnie, czy pracuje na granicy swojej pojemności.
1.5. Unaczynienie i unerwienie tkanki tłuszczowej
Tkanka tłuszczowa jest narządem obficie unaczynionym, a rozbudowa sieci naczyń warunkuje jej rozrost. Nowe adipocyty powstają wyłącznie w sąsiedztwie naczyń włosowatych, bo tam znajdują się ich prekursory, a rozrost bez towarzyszącej angiogenezy kończy się miejscowym niedotlenieniem [1, 11]. Niedotlenienie stabilizuje czynnik indukowany hipoksją HIF-1α, który nasila włóknienie i wydzielanie cytokin [11, 13]. Niedobór naczyń jest więc jednym z ogniw przejścia tkanki ze stanu prawidłowego w stan zapalny.
Unerwienie jest dwukierunkowe i to ono czyni z tkanki tłuszczowej narząd sterowany, a nie wyłącznie sterujący. Włókna współczulne kończące się w miąższu wydzielają noradrenalinę, która pobudza receptory β-adrenergiczne, a te uruchamiają rozkład triglicerydów i powstawanie komórek beżowych [19, 21]. Odrębną drogę tworzą włókna czuciowe zawierające peptyd związany z genem kalcytoniny i substancję P. Ciała ich komórek leżą w zwojach rdzeniowych. W modelach zwierzęcych przerwanie tej drogi zmieniało wydzielanie adipokin i tempo lipolizy w odnerwionym depozycie, co wskazuje na przepływ informacji od tkanki do ośrodków nerwowych [21]. Danych z badań u ludzi dotyczących czucia w tkance tłuszczowej brakuje. Narząd ma zatem trzy drogi łączności z organizmem: wydzielanie do krwi, odbiór sygnałów współczulnych i przekazywanie informacji drogą czuciową.
1.6. Rozwój tkanki tłuszczowej
Adipocyty powstają z mezenchymalnych komórek prekursorowych pochodzenia mezodermalnego, przy czym różne depozyty wywodzą się z odrębnych linii rozwojowych, co tłumaczy ich trwałe różnice czynnościowe [2, 5]. Przekształcenie preadipocytu w dojrzały adipocyt, czyli adipogeneza, przebiega według ustalonej kolejności zdarzeń transkrypcyjnych. Sygnał różnicujący uruchamia najpierw czynniki z rodziny C/EBP, czyli białek wiążących sekwencję CCAAT, a te podnoszą ekspresję receptora PPARγ, aktywowanego proliferatorami peroksysomów. Receptor ten wraz z czynnikiem C/EBPα włącza geny gospodarki lipidowej i utrwala fenotyp komórki magazynującej [5].
Prekursory tkanki brunatnej mają inne pochodzenie niż prekursory tkanki białej i dzielą linię rozwojową z komórkami mięśni szkieletowych, co odpowiada ich wysokiemu wyposażeniu w mitochondria [2]. Liczba adipocytów zwiększa się przede wszystkim w okresie wzrastania, natomiast u osoby dorosłej powiększanie depozytu polega głównie na przyroście objętości komórek już istniejących [3]. Ta kolejność ma następstwo praktyczne. Pojemność magazynowa narządu jest u dorosłego ograniczona liczbą komórek, a jej przekroczenie kieruje nadwyżkę lipidów do tkanek nieprzystosowanych do ich przechowywania [3, 11].
1.7. Rys historyczny
Przez większą część dwudziestego wieku tkankę tłuszczową opisywano jako bierny magazyn energii, a jej rolę sprowadzano do przyjmowania i oddawania triglicerydów. Doświadczenia nad regulacją masy ciała wskazywały wprawdzie na istnienie krążącego sygnału, który informuje mózg o wielkości zapasów. Cząsteczki nośnika tego sygnału nie udało się jednak wskazać, więc hipoteza pozostawała nierozstrzygnięta [7]. Rozstrzygnięcie przyniosło klonowanie pozycyjne: w 1994 roku zespół Yiying Zhang i Jeffreya Friedmana ustalił, że mysi gen ob koduje białko wydzielane przez adipocyty [6]. Mutacja tego genu daje skrajną otyłość, a samo białko nazwano leptyną. Autorzy odnaleźli wtedy również ludzki odpowiednik genu, co przeniosło wniosek z myszy na człowieka [6].
Odkrycie zmieniło status całego narządu, nie tylko jednej cząsteczki. Tkanka tłuszczowa wytwarza hormon informujący ośrodki podwzgórzowe o własnej masie, a zatem bierze udział w regulacji, której dotąd była wyłącznie przedmiotem [7]. W ciągu następnych dwóch dekad opisano kolejne cząsteczki wydzielane przez ten narząd i jego komórki zrębu. Pojęcie adipokin objęło wtedy zarówno hormony o działaniu metabolicznym, jak i mediatory zapalne [1]. Tkanka tłuszczowa przeszła w ten sposób z opisów tkanki łącznej do opisów gruczołów wydzielania wewnętrznego.
2. Działanie tkanki tłuszczowej
2.1. Funkcje podstawowe
2.1.1. Magazyn energii i bufor strumienia lipidów
Tkanka tłuszczowa przechowuje energię w formie o najwyższej dostępnej gęstości, gdyż triglicerydy są bezwodne i dostarczają po utlenieniu ponad dwukrotnie więcej energii niż ta sama masa węglowodanów [11]. Zapas ten pokrywa wydatki między posiłkami oraz podczas głodzenia, a jego rozmiar rozstrzyga, jak długo organizm zachowuje sprawność bez dostawy pokarmu [3].
Magazynowanie jest tylko jedną stroną tej funkcji. Drugą jest buforowanie strumienia lipidów, czyli wyłapywanie kwasów tłuszczowych z krwi po posiłku i oddawanie ich w tempie zgodnym z zapotrzebowaniem [11]. Sprawny bufor utrzymuje stężenie wolnych kwasów tłuszczowych w osoczu w wąskim przedziale. Chroni w ten sposób mięśnie, wątrobę, serce i komórki beta wysp trzustkowych przed nadmiarem substratu. Gdy pojemność bufora zostaje przekroczona, lipidy odkładają się w tych narządach jako tłuszcz pozamaciczny [3, 11]. Uruchamiają wtedy lipotoksyczność, czyli uszkodzenie komórek przez pośrednie produkty przemian lipidowych, takie jak diacyloglicerole i ceramidy [11]. Wartość tej funkcji widać zatem najlepiej wtedy, gdy przestaje ona być wykonywana.
2.1.2. Izolacja cieplna i ochrona mechaniczna
Tkanka tłuszczowa podskórna tworzy warstwę o niskiej przewodności cieplnej, która ogranicza oddawanie ciepła przez powierzchnię ciała i zmniejsza wydatek energetyczny potrzebny do utrzymania ciepłoty [1, 2]. Nie jest rozłożona równomiernie, a jej grubość różni się między obszarami ciała i między płciami, stąd bierze się różna tolerancja zimna [2].
Osobne depozyty pełnią funkcję czysto mechaniczną, a ich rozmieszczenie wynika z obciążeń, nie z gospodarki energetycznej. Tkanka tłuszczowa podeszwy stopy i okolicy pięty rozkłada nacisk podczas chodu. Tkanka oczodołu stabilizuje gałkę oczną, a tkanka okołonerkowa utrzymuje położenie nerki i amortyzuje wstrząsy [2]. Depozyty te są w warunkach głodzenia uruchamiane później i w mniejszym stopniu niż podskórne, gdyż ich utrata pozbawiałaby narządy podparcia [2, 4]. Rozdzielenie funkcji magazynowej od ochronnej wyjaśnia jedną obserwację praktyczną. Znaczna redukcja masy ciała nie usuwa tłuszczu z tych okolic w tym samym tempie co z brzucha.
2.1.3. Termogeneza bezdrżeniowa
Brunatna tkanka tłuszczowa wytwarza ciepło bez udziału skurczu mięśni, za pomocą białka rozprzęgającego UCP1 w wewnętrznej błonie mitochondrialnej. Punktem wyjścia jest gradient protonowy wytworzony przez łańcuch oddechowy. Bodźcem jest pobudzenie współczulne w odpowiedzi na zimno, a kolejnym krokiem uwolnienie kwasów tłuszczowych z kropli lipidowych i otwarcie kanału protonowego UCP1 [19, 20]. Protony wracają wtedy do macierzy mitochondrialnej, omijając syntazę adenozynotrifosforanu, wskutek czego energia gradientu rozprasza się jako ciepło, zamiast napędzać fosforylację.
Wielkość tego wkładu u człowieka dorosłego pozostaje przedmiotem badań. Czynne skupiska tkanki brunatnej wykryto metodą PET-TK u znacznej części osób badanych, a ich obecność wiązała się z korzystniejszym profilem metabolicznym [16, 17]. Ekspresja UCP1 w pobranej tkance brunatnej pozostawała w odwrotnej zależności z czynnikami ryzyka sercowo-naczyniowego [18]. Potwierdza to związek na poziomie białka, a nie tylko wychwytu znacznika. Zależność ma jednak charakter obserwacyjny, a większość danych o powstawaniu komórek beżowych pochodzi z modeli gryzoni [19, 20]. Przełożenie jej na wielkość dobowego wydatku energetycznego u ludzi pozostaje niepewne. Termogeneza bezdrżeniowa jest zatem u dorosłego mechanizmem realnym, lecz o skali znacznie mniejszej niż u noworodka.
2.1.4. Miejscowa przemiana steroidów
Tkanka tłuszczowa przekształca hormony steroidowe na miejscu i zmienia w ten sposób ich stężenie w tkankach docelowych niezależnie od wydzielania gruczołowego. Najlepiej opisaną reakcją jest aromatyzacja, w której enzym aromataza przekształca androgeny pochodzenia nadnerczowego i gonadalnego w estrogeny. Tkanka tłuszczowa jest po menopauzie głównym miejscem tej przemiany [14]. Ilość powstających estrogenów zależy od masy tkanki, zatem stężenie estronu u kobiet po menopauzie rośnie wraz z otłuszczeniem, mimo ustania czynności jajników [14].
Druga reakcja dotyczy glikokortykosteroidów: dehydrogenaza 11β-hydroksysteroidowa typu 1 odtwarza w adipocytach czynny kortyzol z nieczynnego kortyzonu. Miejscowe stężenie hormonu bywa dzięki temu wyższe niż jego stężenie w osoczu [15]. Kortyzol wytworzony tą drogą pobudza różnicowanie preadipocytów i rozkład triglicerydów, a aktywność enzymu jest w tkance trzewnej wyższa niż w podskórnej [15]. Przemiany steroidowe czynią z tkanki tłuszczowej narząd, którego masa zmienia nie tylko bilans energii, lecz również środowisko hormonalne całego organizmu.
2.2. Czynność wydzielnicza i endokrynna
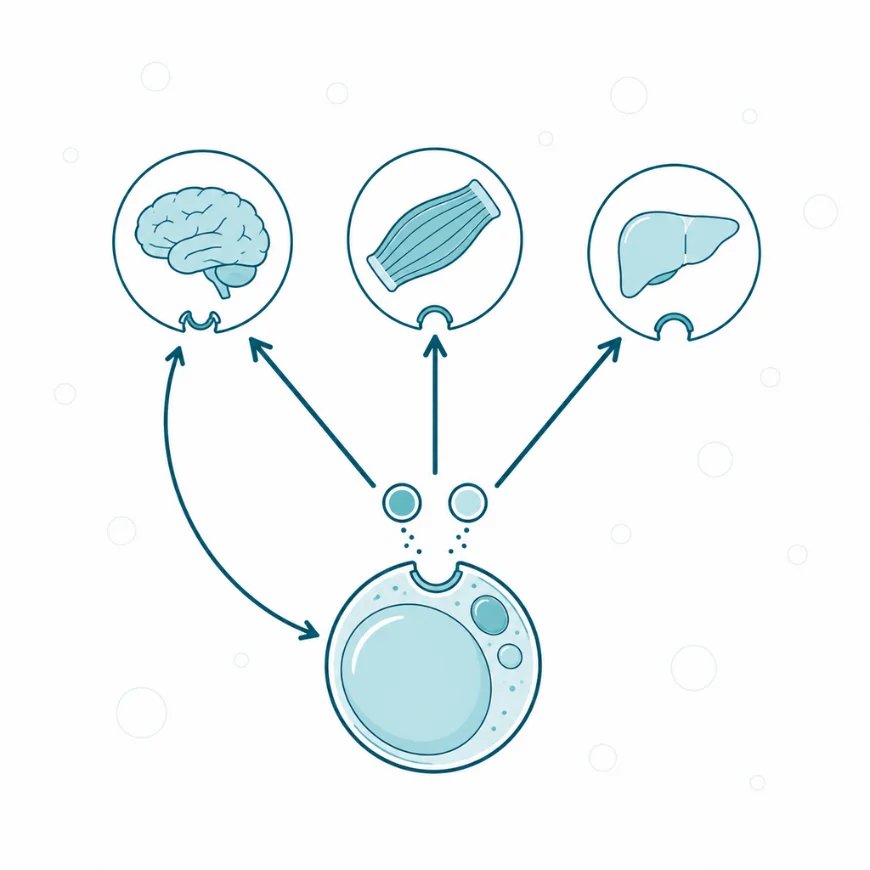
Cząsteczki sygnałowe wydzielane przez tkankę tłuszczową noszą wspólną nazwę adipokin, choć powstają w różnych komórkach tego narządu i działają przez różne receptory [1]. Wspólna jest ich funkcja informacyjna: przez skład wydzieliny narząd zgłasza organizmowi wielkość własnych zapasów, tempo ich obrotu oraz stan zapalny swojego miąższu [1, 3]. Profil wydzielania zmienia się wraz z masą tkanki, a w otyłości zmienia się kierunkowo, nie przypadkowo. To właśnie przesunięcie łączy rozrost narządu z zaburzeniami w narządach odległych [1, 4].
Leptyna jest wydzielana przez dojrzałe adipocyty proporcjonalnie do masy tkanki tłuszczowej, silniej z depozytów podskórnych niż trzewnych [2, 8]. Tempo wydzielania zależy od podaży energii, ponieważ karmienie i insulina je podnoszą, a głodzenie obniża szybciej, niż zmienia się masa tkanki [8]. W ciągu doby stężenie osiąga maksimum w godzinach nocnych [9]. Poza ośrodkowym układem nerwowym leptyna działa na limfocyty T, komórki kostne i komórki naczyń [9, 35]. Niskie stężenia towarzyszące skrajnemu wychudzeniu upośledzają wskutek tego również odpowiedź odpornościową i przebudowę kości [35]. Opis samej cząsteczki i jej receptora zawiera hasło leptyna.
Adiponektyna jest najobficiej wydzielanym białkiem adipocytu i równocześnie jedyną spośród dobrze opisanych adipokin, której stężenie obniża się wraz ze wzrostem masy tkanki tłuszczowej [9, 10]. Krąży w postaci kilku oligomerów, a największą aktywność metaboliczną ma frakcja wielkocząsteczkowa. Działa przez receptory AdipoR1 i AdipoR2, czyli własne receptory błonowe adipocytu i tkanek docelowych. Receptory te uruchamiają kinazę aktywowaną AMP oraz aktywność ceramidazową, która obniża zawartość ceramidów w komórkach docelowych [10]. Następstwem jest ułatwienie utleniania kwasów tłuszczowych w mięśniach, zmniejszenie wytwarzania glukozy w wątrobie i osłabienie odpowiedzi zapalnej w ścianie naczynia [9, 10]. Niskie stężenie adiponektyny jest dlatego wskaźnikiem nie małej masy tkanki tłuszczowej, lecz jej zaburzonej czynności.
Czynnik martwicy nowotworów i interleukina 6 reprezentują drugą rodzinę sygnałów, o pochodzeniu głównie zrębowym. TNF-α, czyli czynnik martwicy nowotworów alfa, pochodzi w otyłości przede wszystkim z makrofagów naciekających tkankę [12, 13]. Działa miejscowo na komórki tłuszczowe i uruchamia w nich kinazy stresowe. Kinazy te fosforylują białko substratowe receptora insuliny IRS-1 w pozycjach serynowych, a tak zmodyfikowane białko przekazuje sygnał insulinowy słabiej [11]. Skutkiem jest osłabienie hamującego działania insuliny na lipolizę, więc tkanka oddaje do krwi więcej wolnych kwasów tłuszczowych i pogłębia zaburzenie, które ten strumień wywołał [11, 13]. Interleukina 6 pochodzi zarówno z adipocytów, jak i z komórek odpornościowych. Jej stężenie rośnie wraz z masą tkanki trzewnej, a w wątrobie pobudza wytwarzanie białka C-reaktywnego [1, 13].
Osobną grupę tworzą adipokiny działające na krzepnięcie i napięcie naczyń. Tkanka tłuszczowa wytwarza inhibitor aktywatora plazminogenu typu 1, który hamuje rozpuszczanie skrzepu. Wytwarza także angiotensynogen, czyli prekursor angiotensyny II, przez co uczestniczy w podnoszeniu ciśnienia tętniczego [1, 4]. Depozyt okołonaczyniowy wydziela te czynniki bezpośrednio do ściany tętnicy, dlatego jego wpływ nie zależy od stężeń w krążeniu ogólnym [4].
Pozostałe adipokiny mają węższy opisany zakres działania, a ich stężenia zmieniają się w otyłości w różnych kierunkach.
| Adipokina | Główne źródło | Punkt uchwytu | Zmiana w otyłości |
| Rezystyna | komórki jednojądrzaste u człowieka | receptory komórek zapalnych | wzrost |
| Białko wiążące retinol 4 | adipocyt | sygnał insulinowy mięśni i wątroby | wzrost |
| Chemeryna | adipocyt | receptor CMKLR1 komórek odpornościowych | wzrost |
| Omentyna | zrąb tkanki trzewnej | śródbłonek naczyń | spadek |
Rezystyna u człowieka pochodzi głównie z komórek jednojądrzastych, nie z adipocytów. Różni się w tym od swojego mysiego odpowiednika, co bywa źródłem nieporozumień przy przenoszeniu wyników z gryzoni [1]. Białko wiążące retinol 4 osłabia sygnał insulinowy w mięśniach i wątrobie. Chemeryna przyciąga komórki odpornościowe do tkanki przez receptor CMKLR1, czyli receptor podobny do receptora chemokinowego. Omentyna działa na śródbłonek ochronnie, a jej stężenie w otyłości spada [1, 2].
Brunatna tkanka tłuszczowa wydziela własny zestaw cząsteczek, określanych jako batokiny, zatem jej czynność endokrynna nie sprowadza się do wytwarzania ciepła [20]. Do opisanych batokin należą czynnik wzrostu fibroblastów 21, neureguliny oraz lipid 12,13-diHOME, który zwiększa wychwyt kwasów tłuszczowych w mięśniach. Większość tych obserwacji pochodzi z modeli gryzoni, a potwierdzenia u ludzi są pojedyncze [20]. Czynność wydzielnicza tkanki tłuszczowej obejmuje więc dwa strumienie informacji. Jeden zgłasza stan zapasów, drugi stan zapalny miąższu, a dopiero ich rozejście się tłumaczy, dlaczego nadmiar tkanki szkodzi.
Adipokiny docierają do mózgu, mięśni i wątroby. Tkanka tłuszczowa nie tylko odbiera sygnały metaboliczne, ale również je wysyła.
2.3. Regulacja czynności narządu
Tkanka tłuszczowa pracuje w dwóch przeciwnych kierunkach, a przełączanie między nimi odbywa się w skali minut. Lipogeneza polega na wychwycie kwasów tłuszczowych z lipoprotein osocza przy udziale lipazy lipoproteinowej i na wbudowaniu ich w triglicerydy. Lipoliza polega na rozkładzie triglicerydów i wypuszczeniu kwasów tłuszczowych oraz glicerolu do krwi [11].
Insulina jest głównym sygnałem kierunku magazynowania: podnosi aktywność lipazy lipoproteinowej i zwiększa dopływ glukozy przez transporter GLUT4. Równocześnie hamuje lipolizę, obniżając stężenie cyklicznego adenozynomonofosforanu w adipocycie [3, 11]. Sygnał przeciwny przekazują katecholaminy. Adrenalina i noradrenalina pobudzają receptory β-adrenergiczne, a te podnoszą stężenie cyklicznego adenozynomonofosforanu i aktywują kinazę białkową A [11]. Kinaza fosforyluje perylipinę 1 na powierzchni kropli lipidowej, a fosforylowana perylipina uwalnia białko aktywujące CGI-58, które uruchamia lipazę triglicerydową tkanki tłuszczowej [11]. Po niej działa lipaza wrażliwa na hormony, a wynikiem całej kaskady jest szybkie zwiększenie dowozu substratu energetycznego do mięśni i wątroby.
Regulację uzupełniają hormony o wolniejszym działaniu. Kortyzol i hormony tarczycy nasilają lipolizę, a hormon wzrostu ją podtrzymuje [11, 15]. Peptydy natriuretyczne uruchamiają ją niezależnie od katecholamin, przez szlak cyklicznego guanozynomonofosforanu [11]. Rozrost samego narządu podlega odrębnej kontroli, gdyż powiększanie istniejących adipocytów zachodzi szybko, natomiast powstawanie nowych wymaga różnicowania prekursorów i przebiega wolniej [3, 5]. Gdy rozrost opiera się głównie na przeroście komórek, tkanka wcześniej osiąga granicę pojemności, wcześniej włóknieje i zaczyna oddawać nadmiar lipidów do innych narządów [3, 11]. Sposób powiększania depozytu ma więc dla przemiany materii większe znaczenie niż sama jego masa.
2.4. Oś narząd-mózg
Informacja o stanie zapasów energii dociera z tkanki tłuszczowej do mózgu drogą krwi i drogą nerwową, a odpowiedź wraca do narządu włóknami współczulnymi. Ramię wstępujące drogi hormonalnej opiera się na leptynie, która przenika do mózgu przez wysycalny układ transportowy bariery krew-mózg. Wiąże się tam z receptorem LepRb, czyli długą postacią receptora leptyny, w jądrze łukowatym podwzgórza [7, 8]. Pobudzenie tego receptora aktywuje neurony wytwarzające proopiomelanokortynę, które tłumią przyjmowanie pokarmu. Hamuje równocześnie neurony wytwarzające neuropeptyd Y oraz białko Agouti, które je nasilają [7].
Kierunek tej regulacji bywa w opisach odwracany. Leptyna nie działa jako hormon sytości po posiłku, lecz jako sygnał wystarczalności zapasów, a jej spadek jest bodźcem znacznie silniejszym niż jej wzrost [7]. Gdy podaż energii maleje, stężenie leptyny opada w ciągu godzin i uruchamia reakcję oszczędzania. Rośnie wtedy przyjmowanie pokarmu, maleje wydatek energetyczny, a czynność osi tarczycowej i gonadalnej słabnie [7, 8]. Organizm broni się zatem energiczniej przed ubytkiem tkanki tłuszczowej niż przed jej przyrostem.
W otyłości oś ta przestaje działać proporcjonalnie, ponieważ stężenie leptyny jest wysokie, a odpowiedź ośrodkowa słaba, co określa się mianem leptynooporności [22, 23]. Do opisanych mechanizmów należą wysycenie transportu przez barierę krew-mózg oraz nasilona ekspresja białka SOCS3 i fosfatazy PTP1B w neuronach docelowych. Oba te białka wyłączają przekaźnictwo za receptorem leptyny [22]. Trzecim mechanizmem jest miejscowa reakcja zapalna w podwzgórzu [23]. Następstwo praktyczne jest jednoznaczne: podawanie leptyny przywraca regulację u osób z jej wrodzonym niedoborem i w lipodystrofiach, a w otyłości pospolitej działania nie wykazuje [23, 24].
Ramię zstępujące tworzy układ współczulny. Pobudzenie zimnem albo niedoborem energii zwiększa wydzielanie noradrenaliny w miąższu tkanki, a to uruchamia lipolizę i powstawanie komórek beżowych [19, 21]. Drogę wstępującą nerwową opisano dotąd głównie w modelach zwierzęcych, w których włókna czuciowe przekazują z depozytu informację zmieniającą skierowaną do niego zwrotnie aktywność współczulną [21]. Autonomiczny układ nerwowy zamyka tak pętlę, w której tkanka tłuszczowa jest jednocześnie nadawcą i odbiorcą sygnału. Jej masa staje się dzięki temu parametrem regulowanym, a nie tylko wynikiem bilansu.
3. Uszkodzenie i patologia
3.1. Następstwa uszkodzenia tkanki tłuszczowej
Uszkodzenie tkanki tłuszczowej ujawnia jej rolę wyraźniej niż jej nadmiar, ponieważ organizm pozbawiony miejsca magazynowania lipidów nie ma dla nich alternatywy. W lipodystrofiach, czyli chorobach z wrodzonym albo nabytym ubytkiem tkanki tłuszczowej, występuje ciężka insulinooporność, wysokie stężenie triglicerydów, stłuszczenie wątroby i wczesna cukrzyca [23, 3]. Stężenie leptyny jest w nich bardzo niskie [23]. Obraz metaboliczny przypomina obraz skrajnej otyłości, mimo przeciwnego kierunku zmiany masy tkanki. Wspólnym ogniwem jest brak sprawnego bufora lipidowego: raz z powodu jego nieobecności, raz z powodu przekroczenia jego pojemności [3, 11].
Uzupełnienie brakującego sygnału potwierdza ten mechanizm od strony leczenia. Podanie metreleptyny, czyli rekombinowanego analogu leptyny, obniża w lipodystrofii generalizowanej stężenie triglicerydów i glikemię oraz zmniejsza stłuszczenie wątroby [23]. Tego samego nie udaje się osiągnąć w otyłości z wysokim stężeniem własnej leptyny [23]. Niedobór tkanki tłuszczowej jest więc niedoborem narządu wydzielniczego, nie tylko magazynu.
Odrębnym przypadkiem jest uszkodzenie mechaniczne i usunięcie chirurgiczne. W badaniu z udziałem piętnastu kobiet z otyłością brzuszną odessanie tkanki podskórnej zmniejszyło jej objętość o 44% u osób z prawidłową tolerancją glukozy i o 28% u chorych na cukrzycę typu 2 [24]. Odpowiadało to ubytkowi około jednej piątej masy tłuszczowej ciała, mimo to wrażliwość wątroby, mięśni i tkanki tłuszczowej na insulinę nie zmieniła się. Nie zmieniły się również stężenia białka C-reaktywnego, interleukiny 6, TNF-α i adiponektyny ani ciśnienie tętnicze [24]. Zmniejszenie masy narządu bez zmiany jego czynności nie daje zatem korzyści metabolicznych, jakie przynosi utrata masy ciała drogą ujemnego bilansu energetycznego.
Przerost komórek tkanki tłuszczowej prowadzi do ich pęknięcia, po czym wokół nich zbierają się makrofagi. Stąd bierze się przewlekłe zapalenie o niskim nasileniu.
3.2. Udział tkanki tłuszczowej w chorobach
Tkanka tłuszczowa uczestniczy w chorobach przewlekłych nie jako ich bierne tło, lecz jako źródło sygnałów, które je napędzają. Ogniwem wspólnym dla większości z nich jest przesunięcie profilu wydzielania: stężenie adiponektyny spada, a stężenia cytokin prozapalnych i wolnych kwasów tłuszczowych rosną [1, 9].
Insulinooporność i cukrzyca typu 2 wiążą się z tkanką tłuszczową dwiema drogami. Pierwszą jest strumień wolnych kwasów tłuszczowych z tkanki trzewnej do wątroby przez krążenie wrotne, który zwiększa wytwarzanie glukozy i odkładanie lipidów w hepatocytach [4, 11]. Drugą drogą jest napływ makrofagów do miąższu tkanki, wydzielanie cytokin i osłabienie sygnału insulinowego w samym adipocycie [12, 13]. Oba mechanizmy prowadzą do utraty kontroli insuliny nad lipolizą i wzajemnie się wzmacniają. Ta sama sekwencja stanowi rdzeń zespołu metabolicznego oraz stłuszczeniowej choroby wątroby, w której nadmiar substratu lipidowego przekracza możliwości utleniania i wydzielania hepatocytu [11, 4].
W chorobach naczyń tkanka tłuszczowa działa zarówno ogólnoustrojowo, jak i miejscowo. Niskie stężenie adiponektyny osłabia ochronę śródbłonka, a wydzielanie inhibitora aktywatora plazminogenu typu 1 sprzyja zakrzepicy [9, 10]. Depozyt nasierdziowy i okołonaczyniowy wydzielają mediatory wprost do ściany naczynia, dlatego ich objętość pozostaje w związku z zaawansowaniem miażdżycy niezależnie od ogólnej masy tłuszczu [4].
Związek z nowotworami hormonozależnymi wynika z przemian steroidowych i z adipokin. Aromataza tkanki tłuszczowej jest po menopauzie głównym źródłem estrogenów [14]. Ich miejscowe stężenie w tkance sutka pobudza podział komórek nabłonka, co należy do uznanych ogniw ryzyka raka piersi w tej grupie wieku [33]. Leptyna działa równolegle i wzmacnia w komórkach nowotworowych szlaki proliferacyjne oraz angiogenezę. Obserwacje te opisano głównie w modelach komórkowych i zwierzęcych, a dane kliniczne pozostają niejednolite [32]. Osobnym kierunkiem badań jest wpływ tkanki tłuszczowej na czynność mózgu. Niskie stężenie adiponektyny wiązano z szybszym pogorszeniem funkcji poznawczych, przy danych z badań obserwacyjnych i modeli doświadczalnych [36]. Otyłość jest ponadto czynnikiem ryzyka wielu chorób przewlekłych jednocześnie, gdyż zmienia nie jeden parametr, lecz cały skład informacji krążącej we krwi [34].
3.3. Wsparcie suplementacyjne
Stan czynnościowy tkanki tłuszczowej zmieniają czynniki modyfikowalne i niemodyfikowalne, a punktem uchwytu większości z nich jest profil wydzielania. Do niemodyfikowalnych należą wiek, płeć i uwarunkowania genetyczne rozmieszczenia depozytów, które przesądzają o proporcji tkanki trzewnej do podskórnej [2, 3]. Wśród modyfikowalnych najlepiej udokumentowany jest bilans energetyczny, gdyż ujemny obniża stężenia cytokin prozapalnych i podnosi stężenie adiponektyny, a dodatni działa przeciwnie [1, 11]. Aktywność fizyczna zmienia czynność tkanki także bez ubytku masy ciała, bo zmniejsza naciek makrofagów i pobudza powstawanie komórek beżowych [19, 21]. Ekspozycja na zimno pobudza tkankę brunatną drogą współczulną [19]. Odrębną grupę stanowią substancje o opisanym punkcie uchwytu na wydzielanie adipokin, zestawione poniżej wraz z siłą dowodów w skali od A do C.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Kwasy omega-3 | Zwiększenie wydzielania adiponektyny przez adipocyt; w metaanalizie 43 badań z randomizacją u 3 434 osób stężenie adiponektyny wzrosło (SMD 0,21), bez zmiany stężenia leptyny, przy dużej niejednorodności wyników [26] | ↑ adiponektyna | A |
| Kurkuma | Tłumienie sygnału zapalnego w miąższu tkanki z następczą zmianą wydzielania adipokin; w metaanalizie 13 badań z randomizacją adiponektyna wzrosła (SMD 0,86), a leptyna obniżyła się (SMD 1,42); wynik potwierdzony w przeglądzie parasolowym metaanaliz [27, 28] | ↑ adiponektyna, ↓ leptyna | A |
| Cholekalcyferol | Postulowany wpływ receptora witaminy D na czynność wydzielniczą adipocytu; w metaanalizie badań z randomizacją bez zmiany stężeń adiponektyny i leptyny [29] | ~ | A |
| Resweratrol | Postulowana aktywacja sirtuin i kinazy aktywowanej AMP w adipocycie; w metaanalizie 23 badań z randomizacją u 1 005 osób bez zmiany stężeń adiponektyny i leptyny, z obniżeniem obwodu talii o 1,93 cm [30] | ~ | A |
| Berberyna | Hamowanie różnicowania preadipocytów w mechanizmie zależnym i niezależnym od kinazy aktywowanej AMP, opisane w adipocytach świni in vitro [31] | ↓ adipogeneza | C |
Z zestawienia wynika rozstrzygnięcie o kierunku, nie o sile działania. Wpływ na stężenia adipokin potwierdzono w metaanalizach badań z randomizacją dla kwasów omega-3 oraz dla kurkumy [26, 27, 28]. Wielkości efektu były w nich umiarkowane, a niejednorodność wyników między badaniami duża. Cholekalcyferol i resweratrol nie zmieniły stężeń adiponektyny ani leptyny [29, 30]. Jedyną istotną zmianą po resweratrolu było obniżenie obwodu talii o 1,93 cm [30]. Dane dla berberyny pochodzą z hodowli komórkowych i nie mają odpowiednika w badaniach u ludzi oceniających wydzielanie adipokin [31]. Żadna z tych substancji nie ma dotąd danych o wpływie na twarde punkty końcowe. Szczegóły stosowania zawierają karty substancji w dziale Suplementy, a opisane zależności nie zastępują porady medycznej.
4. Uwagi praktyczne
4.1. Jak to zbadać
Ocena tkanki tłuszczowej odpowiada na dwa różne pytania: ile tego narządu jest i gdzie leży oraz w jaki sposób funkcjonuje. Na pierwsze odpowiadają pomiary antropometryczne i obrazowe, natomiast na drugie oznaczenia adipokin, których wartość diagnostyczna jest znacznie mniejsza.
Wskaźnik masy ciała opisuje masę względem wzrostu, lecz nie rozróżnia tkanki tłuszczowej od mięśniowej ani rozmieszczenia depozytów. W stanowisku uzgodnionym grup roboczych do spraw otyłości trzewnej pomiar obwodu talii uznano za badanie o wartości większej niż sam wskaźnik masy ciała [25]. Autorzy tego dokumentu zalecili rutynowe wykonywanie pomiaru w praktyce klinicznej. Zaznaczyli równocześnie, że wartości progowe obwodu talii dla poszczególnych przedziałów wskaźnika masy ciała wymagają dopracowania i różnią się między grupami wieku, płciami oraz populacjami [25]. Obwód talii mierzy się taśmą w płaszczyźnie poziomej, a powtarzalność wyniku zależy od wskazania punktu odniesienia i od fazy oddechu.
Skład ciała ocenia się metodami o różnej rozdzielczości. Absorpcjometria podwójnej energii promieniowania rentgenowskiego podaje masę tłuszczową i beztłuszczową oraz jej rozkład na obszary ciała. Analiza impedancji bioelektrycznej szacuje zawartość tłuszczu na podstawie oporu tkanek i jest wrażliwa na stan nawodnienia. Tomografia komputerowa i rezonans magnetyczny pozwalają zmierzyć powierzchnię tkanki trzewnej na przekroju i oddzielić ją od podskórnej [25, 4]. Ultrasonografia służy ocenie grubości warstwy podskórnej i przedotrzewnowej.
Ocena tkanki brunatnej pozostaje narzędziem badawczym. Wykrywa się ją metodą PET-TK z fluorodeoksyglukozą, najczęściej po kontrolowanym wychłodzeniu, przy czym wynik zależy od temperatury otoczenia i pory roku [16, 17]. Potwierdzenie na poziomie białka wymaga pobrania tkanki i oznaczenia ekspresji UCP1, co wykonuje się wyłącznie w badaniach naukowych [18].
Oznaczenia adipokin są dostępne, lecz ich interpretacja napotyka trzy ograniczenia. Stężenie leptyny odzwierciedla masę tkanki tłuszczowej, więc powtarza informację uzyskaną z pomiaru składu ciała i samodzielnego znaczenia rozpoznawczego nie ma [8, 9]. Zakresy referencyjne dla leptyny i adiponektyny zależą od metody oznaczania, płci i wieku, a wspólnych wartości odniesienia dla laboratoriów nie ustalono [9, 10]. Stosunek stężeń adiponektyny do leptyny opisywano jako wskaźnik zaburzonej czynności tkanki lepszy niż każde z tych oznaczeń osobno [9, 10]. Pozostaje on jednak narzędziem badawczym bez progów decyzyjnych. W postępowaniu klinicznym zwiększony obwód talii jest podstawą do oceny gospodarki węglowodanowej i lipidowej oraz ciśnienia tętniczego [25]. To właśnie te parametry określają ryzyko związane z otłuszczeniem trzewnym, a nie sama jego wielkość [4].
4.2. Na co zwrócić uwagę
Pierwsze nieporozumienie dotyczy samego charakteru tkanki tłuszczowej. Opis narządu jako biernego magazynu utrzymywał się w podręcznikach do lat dziewięćdziesiątych ubiegłego wieku. Rozstrzygnęło go ustalenie, że adipocyty wydzielają leptynę, a za nią kolejne dziesiątki cząsteczek sygnałowych [6, 1]. Konsekwencją jest odmienne rozumienie otyłości, w którym nadmiar tkanki tłuszczowej zmienia skład informacji krążącej we krwi, a nie tylko masę ciała.
Drugie nieporozumienie łączy usunięcie tkanki tłuszczowej z poprawą przemiany materii. Odessanie znacznej części tkanki podskórnej brzucha nie zmieniło wrażliwości na insulinę ani stężeń markerów zapalnych u operowanych kobiet [24]. Ubytek masy ciała uzyskany ujemnym bilansem energetycznym poprawia te parametry, więc różnica nie dotyczy samej ilości usuniętego tłuszczu [24]. Zabieg usuwa komórki, lecz nie zmienia strumienia lipidów, który do tkanki dopływa.
Trzecie nieporozumienie dotyczy tkanki brunatnej. Jej obecność u osób dorosłych wiąże się z korzystniejszym profilem metabolicznym, a ekspresja UCP1 pozostaje w odwrotnej zależności z czynnikami ryzyka sercowo-naczyniowego [17, 18]. Dane te są obserwacyjne i nie rozstrzygają kierunku zależności. Masa tkanki brunatnej u dorosłego jest niewielka wobec masy tkanki białej, a wielkości jej wkładu w dobowy wydatek energetyczny człowieka dotąd nie ustalono [19, 20]. Większość opisów powstawania komórek beżowych pochodzi z modeli gryzoni, u których stosunek masy tkanki brunatnej do masy ciała jest znacznie wyższy niż u ludzi [19, 20].
Czwarte nieporozumienie dotyczy leptyny jako środka zmniejszającego masę ciała. Leptyna przywraca regulację u osób z jej wrodzonym niedoborem oraz w lipodystrofiach [23]. W otyłości pospolitej, przebiegającej z wysokim własnym stężeniem hormonu, skuteczności nie wykazano [22, 23]. Nazwa „hormon sytości” myli kierunek działania, bo silniejszym bodźcem jest spadek stężenia leptyny niż jego wzrost [7].
Ograniczenia dowodowe wymagają zaznaczenia w trzech miejscach. Podział makrofagów tkanki tłuszczowej na fenotyp prozapalny i naprawczy jest uproszczeniem wyprowadzonym z warunków hodowli i nie odpowiada wprost zróżnicowaniu obserwowanemu w tkance ludzkiej [13]. Część adipokin ma u człowieka inne źródło i inne znaczenie niż u myszy, czego przykładem jest rezystyna pochodząca u ludzi z komórek jednojądrzastych [1]. Dane o wpływie substancji suplementacyjnych na wydzielanie adipokin obejmują punkty końcowe zastępcze, a nie zachorowalność [26, 27, 29, 30]. Treść hasła ma charakter edukacyjny i nie zastępuje porady medycznej.