1. Charakterystyka białek
1.1. Definicja i przynależność
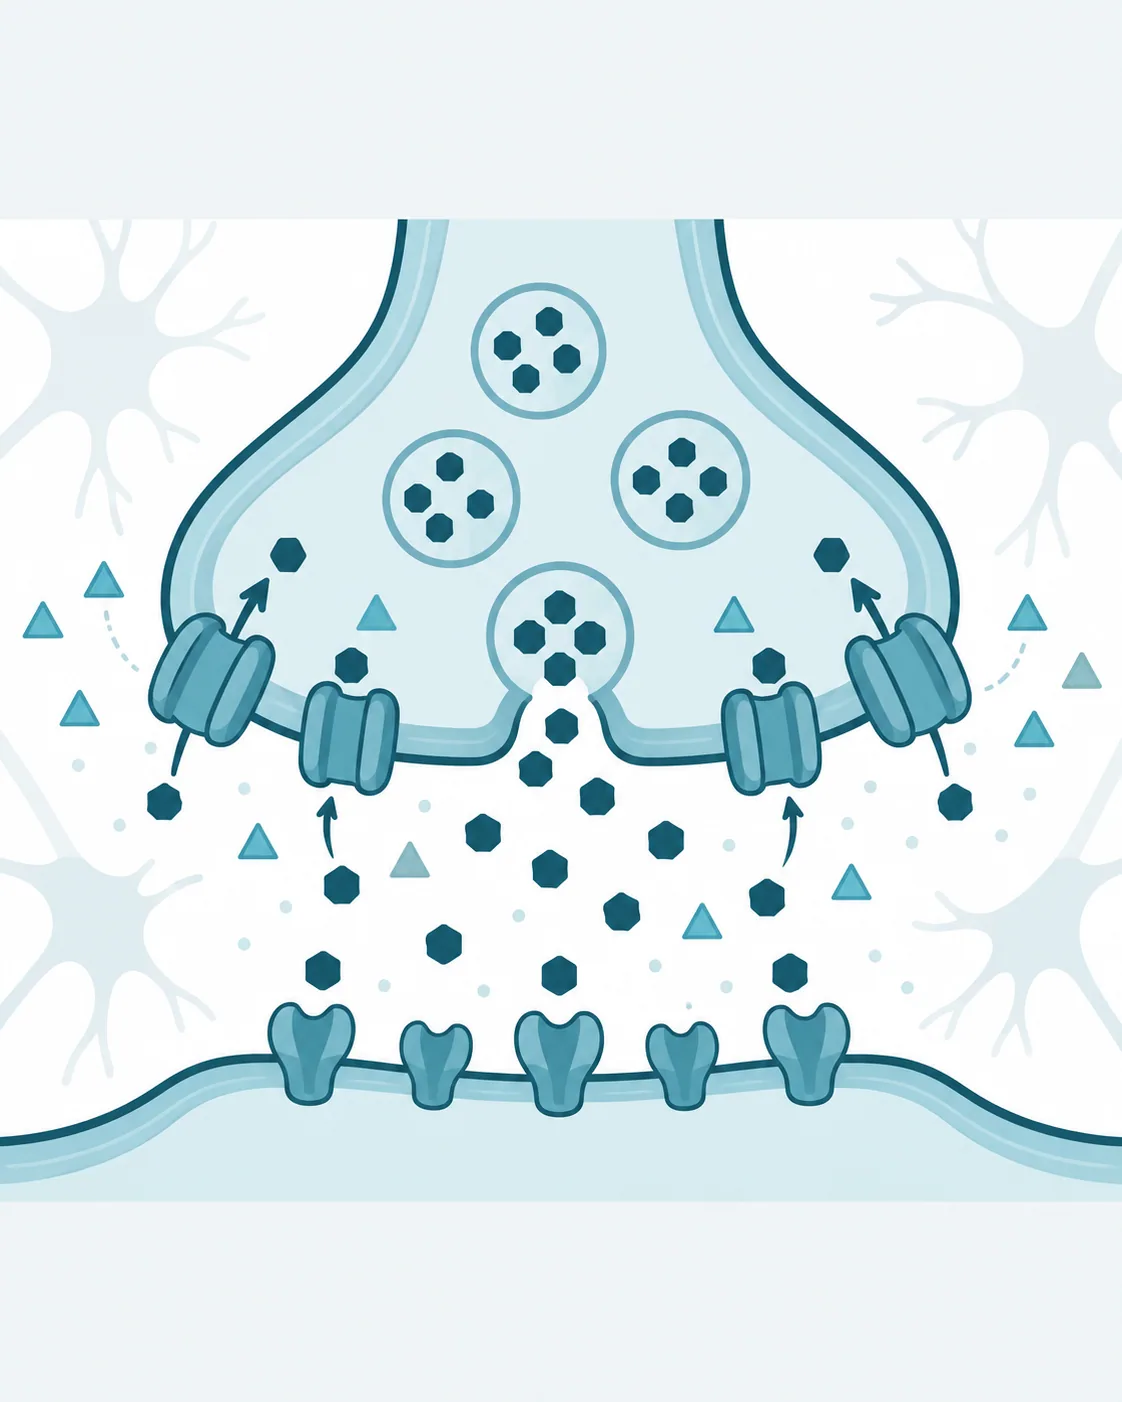
Transporter dopaminy (ang. dopamine transporter, DAT) i transporter noradrenaliny (ang. norepinephrine transporter, NET) to białka błonowe wychwytu zwrotnego. Przenoszą wydzielony przekaźnik z przestrzeni zewnątrzkomórkowej do wnętrza neuronu. Oba należą do rodziny SLC6, nazywanej też rodziną symporterów sodowych neuroprzekaźników, a kodują je geny SLC6A3 i SLC6A2 [1]. Do tej samej rodziny należą transporter serotoniny oraz nośniki kwasu gamma-aminomasłowego i glicyny, wszystkie zależne od jonów sodu i chlorkowych [1]. Wspólną cechą rodziny jest to, że nośnik nie zmienia przenoszonej cząsteczki. Dopamina i noradrenalina wracają do komórki w postaci niezmienionej i nadają się do ponownego użycia [1].
Trzy grupy białek bywają mylone z transporterami monoamin. Pierwszą tworzą receptory dopaminowe i adrenergiczne, które odbierają sygnał i przekładają go na kaskadę wewnątrzkomórkową. DAT i NET ten sam sygnał kończą, usuwając przekaźnik z okolicy receptora [1]. Drugą jest pęcherzykowy transporter monoamin typu 2, który przenosi katecholaminy z cytoplazmy do pęcherzyka wydzielniczego. Napędza go gradient protonowy, nie sodowy [2]. Kryterium rozróżniającym jest więc błona, w której białko pracuje, oraz źródło energii. Trzecią grupę stanowią transportery kationów organicznych, w tym transporter PMAT kodowany przez gen SLC29A4. Przenoszą one monoaminy z niskim powinowactwem i dużą wydajnością, a łącznie nazywa się je układem wychwytu drugiego typu [3]. DAT i NET należą do wychwytu pierwszego typu, czyli nośników o wysokim powinowactwie i małej pojemności, działających blisko miejsca wydzielania [3].
Zakres pojęcia obejmuje dwa odrębne białka kodowane przez dwa geny, a nie podtypy jednego nośnika. Każde z nich ma własny profil substratowy, własne rozmieszczenie i własny zestaw ligandów. Oba przenoszą przy tym zarówno dopaminę, jak i noradrenalinę [4]. W liniach komórkowych transporter noradrenaliny przenosił dopaminę ze stałą Michaelisa niższą niż noradrenalinę [4]. U myszy w tkankach o małej gęstości DAT to on usuwa większość dopaminy [5].
O znaczeniu obu białek decyduje ich pozycja w farmakologii i w diagnostyce. DAT jest punktem uchwytu leków stosowanych w zespole nadpobudliwości ruchowej z deficytem uwagi oraz celem substancji psychostymulujących. NET jest punktem uchwytu części leków przeciwdepresyjnych [1, 2]. Gęstość DAT w prążkowiu jest ponadto podstawą badania obrazowego używanego w rozpoznawaniu różnicowym parkinsonizmu [6, 7].
1.2. Budowa i różnice między postaciami
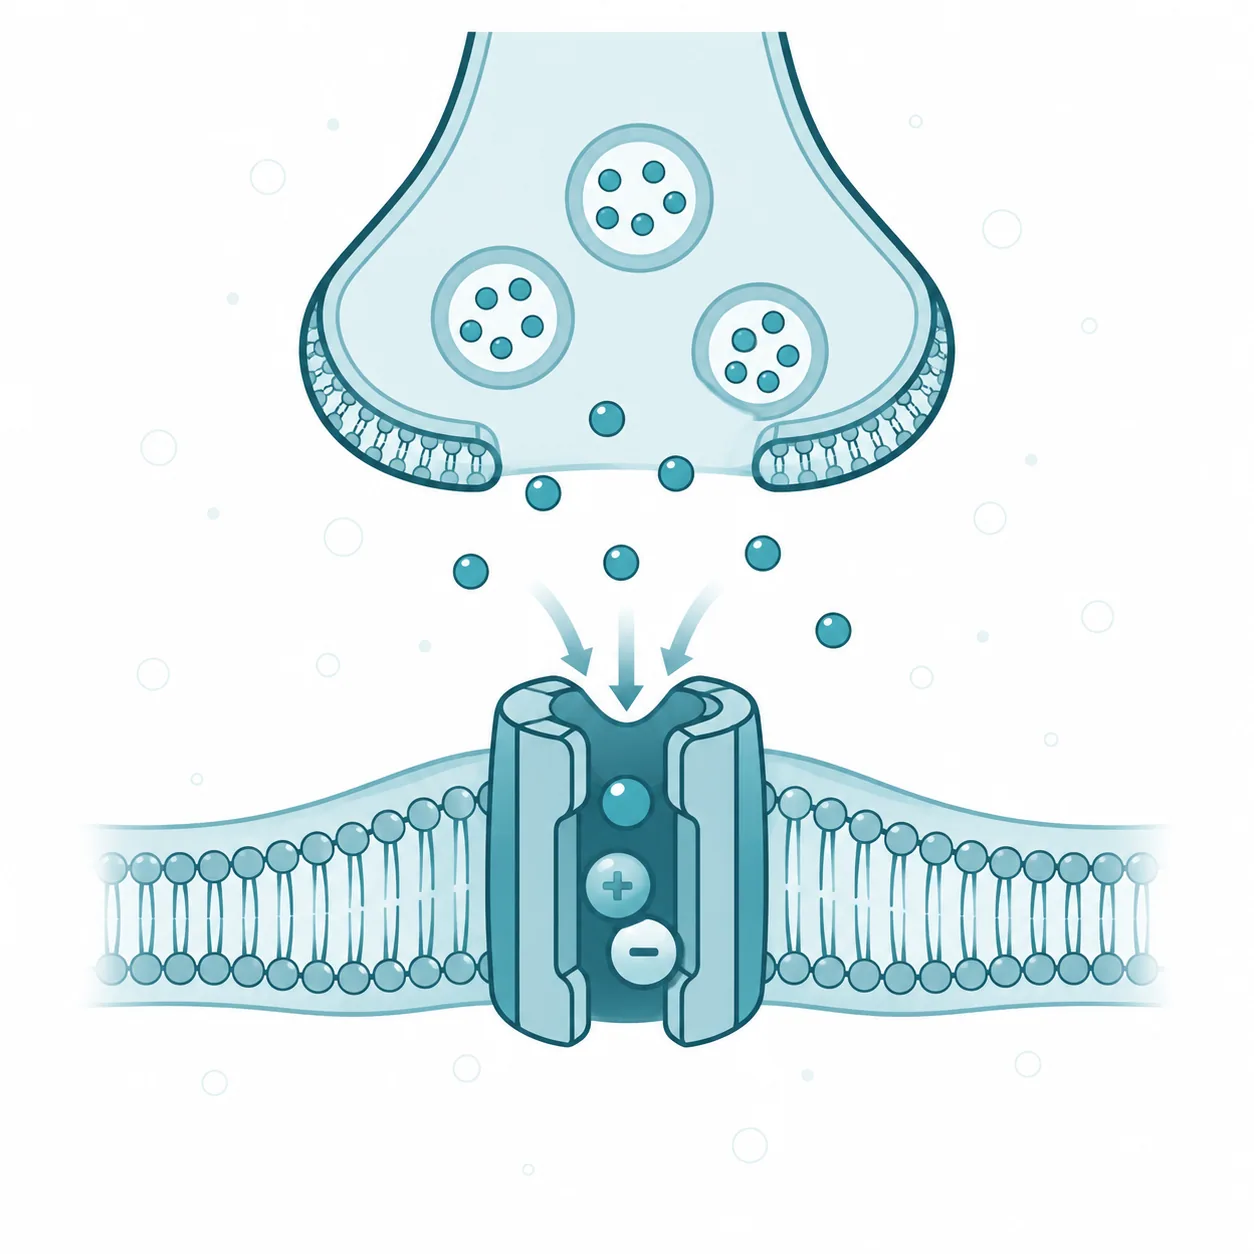
Oba transportery monoamin mają ten sam zwój łańcucha, znany z bakteryjnego nośnika aminokwasów LeuT. Dwanaście helis przechodzi przez błonę, a oba końce łańcucha pozostają w cytoplazmie [8, 9]. Helisy pierwsza i szósta są przerwane w połowie grubości błony. Odsłonięte w tym miejscu grupy szkieletu peptydowego tworzą centralne miejsce wiązania, oznaczane jako S1 [8]. Leży ono mniej więcej w połowie dwuwarstwy lipidowej, obok miejsc dla jonu sodu i jonu chlorkowego. Wiąże zarówno przekaźnik, jak i większość substancji hamujących wychwyt [10, 11].
Wczesny obraz przestrzenny transportera katecholamin uzyskano nie dla białka ludzkiego, lecz dla nośnika dopaminy muszki owocowej. Struktura rozwiązana w rozdzielczości 3,0 Å pokazała białko związane z nortryptyliną i zamknięte w postaci otwartej na zewnątrz. Cząsteczka leku tkwiła między helisami pierwszą, trzecią, szóstą i ósmą [12]. W tym samym obrazie znalazły się dwie cechy nieobecne u bakteryjnego poprzednika. Pierwszą jest zagięcie helisy dwunastej w połowie grubości błony, drugą końcowa helisa przykrywająca bramkę cytoplazmatyczną. Między helisami pierwszą, piątą i siódmą tkwiła cząsteczka cholesterolu, co wiąże pracę nośnika ze składem otaczających go lipidów [12].
Obrazy białek ludzkich przyniosły opis miejsc, których w strukturze owadziej nie było. Ludzki DAT związany z kokainą albo z jej analogiem przyjmuje postać otwartą na zewnątrz, a cząsteczka zajmuje miejsce centralne [8, 10]. Obok niego opisano miejsce allosteryczne pod czwartą pętlą zewnątrzkomórkową, przy odcinku helisy pierwszej. Niekompetycyjny inhibitor działa w nim jak klin i uniemożliwia zamknięcie bramki zewnętrznej [10]. Jon cynku łączy przy tym czwartą pętlę z drugą oraz z helisami siódmą i ósmą. Usztywnia w ten sposób postać otwartą na zewnątrz i hamuje transport [10]. W strukturach ludzkiego NET noradrenalina i dopamina wiążą się nie tylko w miejscu centralnym. Drugim punktem wiązania jest nowo opisane miejsce allosteryczne w przedsionku zewnątrzkomórkowym [9].
Różnice między obiema postaciami dotyczą kinetyki i zależności jonowej, nie zwoju łańcucha. W liniach komórkowych wytwarzających pojedynczy nośnik oba transportery przenosiły dopaminę z niższą stałą Michaelisa niż noradrenalinę [4]. Dopamina jest zatem dla obu białek substratem lepiej dopasowanym [4]. Zależność od stężenia sodu wskazywała przy tym na różną stechiometrię. Transport przez NET wiąże się z przeniesieniem jednego jonu sodu, a przez DAT więcej niż jednego [4]. Ludzki NET liczy 617 aminokwasów [13], a sekwencja szczurzego DAT obejmuje 619 reszt [18]. Zmienność między osobami dotyczy w opisanych badaniach liczby cząsteczek w błonie i wariantów sekwencji genu [24, 38].
1.3. Rys historyczny
Zanim opisano wychwyt zwrotny, inaktywację katecholamin przypisywano przede wszystkim rozkładowi enzymatycznemu, czyli działaniu monoaminooksydazy i katecholo-O-metylotransferazy. Rozstrzygnięcie przyniosły doświadczenia z noradrenaliną znakowaną trytem. Hertting i Axelrod opisali w 1961 roku losy znakowanego przekaźnika w zakończeniach współczulnych [15]. W tym samym roku Axelrod, Whitby i Hertting pokazali, że rezerpina, amfetamina, imipramina i chlorpromazyna zmniejszają pobieranie krążącej noradrenaliny przez tkanki [16]. Stężenie znakowanej katecholaminy w osoczu rosło przy tym [16]. Inaktywacja przekaźnika okazała się więc procesem transportu, a nie tylko rozkładu, a hamowanie tego wychwytu wyjaśniło działanie leków przeciwdepresyjnych [17]. Nagrodę Nobla w dziedzinie fizjologii lub medycyny Axelrod otrzymał za to odkrycie w 1970 roku [17].
Samo białko pozostawało przez trzy dekady obiektem wnioskowanym z pomiarów wychwytu. Pacholczyk, Blakely i Amara wyizolowali w 1991 roku komplementarny DNA kodujący ludzki transporter noradrenaliny [13]. Przenoszenie w komórkach z tym genem zależało od sodu, a sekwencja białka przypominała nośnik kwasu gamma-aminomasłowego [13]. Tym samym opisano nową rodzinę genów transporterów przekaźników. W tym samym roku dwa zespoły niezależnie uzyskały komplementarny DNA szczurzego transportera dopaminy [14, 18]. Oba potwierdziły wrażliwość białka na kokainę w komórkach transfekowanych [14, 18]. Dopiero posiadanie sekwencji umożliwiło badania mutantów, myszy pozbawionych genu i krystalografię, od której zaczyna się dzisiejszy obraz mechanizmu [12].
2. Działanie molekularne
2.1. Substrat i mechanizm transportu
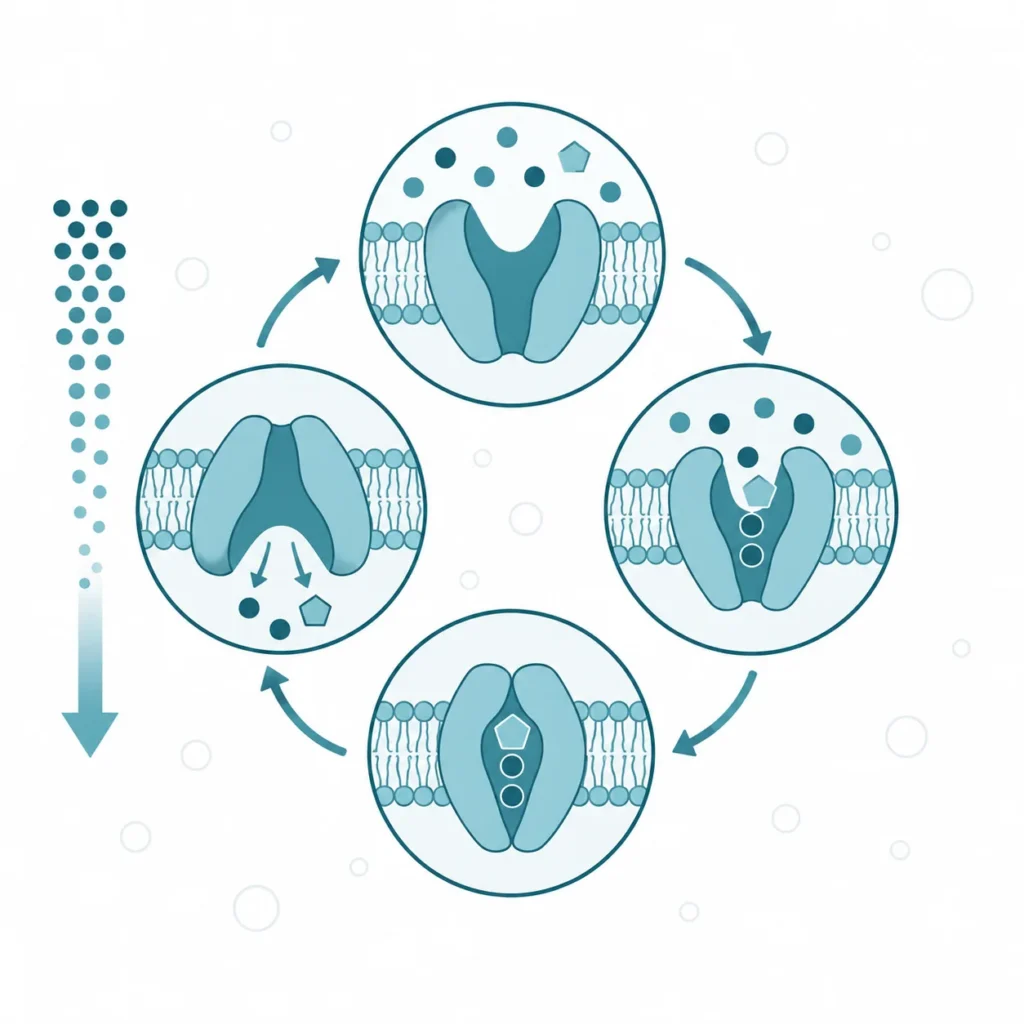
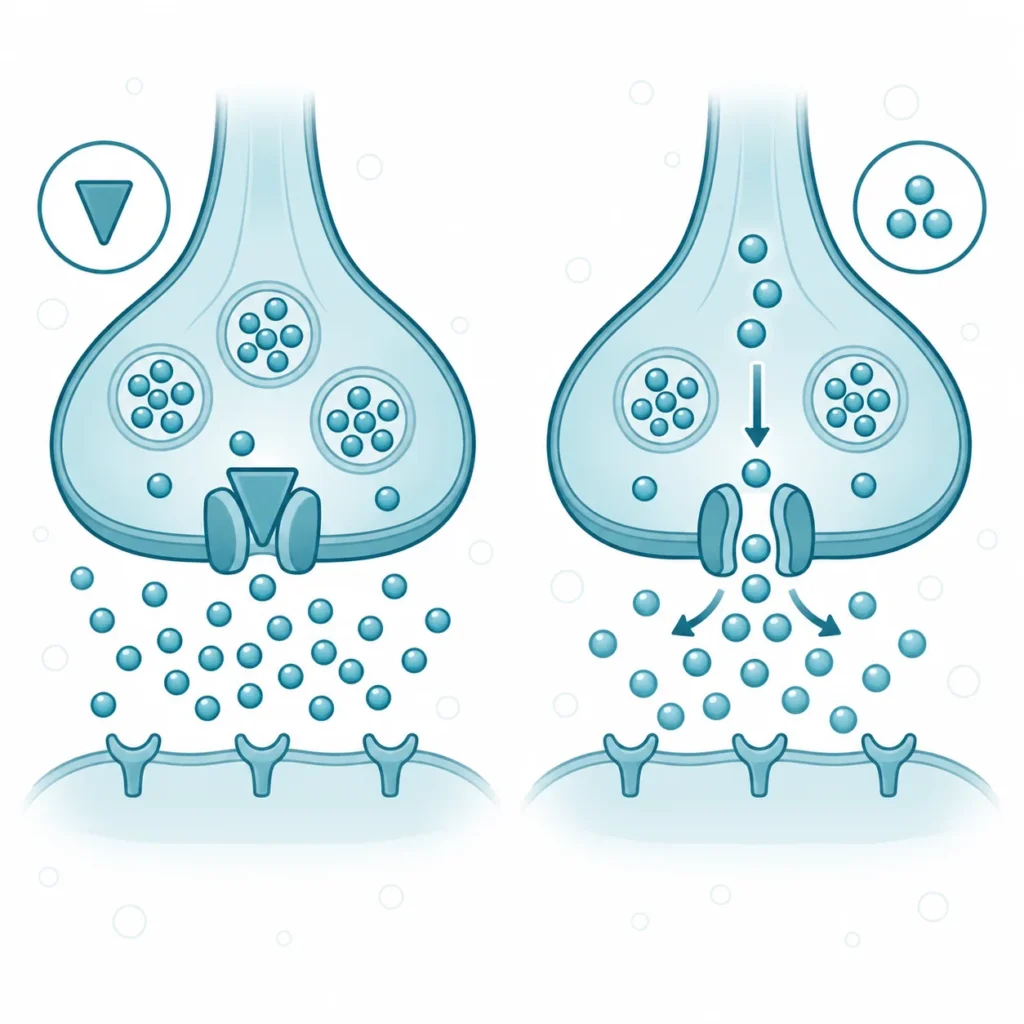
Substratem DAT i NET są katecholaminy wydzielone do przestrzeni zewnątrzkomórkowej, a także substancje o podobnym kształcie, w tym pochodne amfetaminy [11]. Oba nośniki pracują w rytmie naprzemiennego dostępu, czyli ich miejsce wiązania jest w danej chwili dostępne tylko z jednej strony błony [1]. Taki tryb pracy odróżnia je od kanałów jonowych, w których otwarta droga łączy obie strony błony jednocześnie.
Stanem wyjściowym cyklu jest postać otwarta na zewnątrz z przyłączonymi jonami, w której miejsce centralne pozostaje dostępne dla przekaźnika [8, 10]. Bodźcem uruchamiającym cykl jest związanie cząsteczki dopaminy albo noradrenaliny w tym miejscu, obok jonu sodu i jonu chlorkowego [9, 11]. Następnym krokiem jest zamknięcie bramki zewnętrznej przez ruch odcinków helis pierwszej i szóstej, które nasuwają się na związany ładunek. Powstaje stan zamknięty obustronnie, w którym przekaźnik i jony tkwią wewnątrz białka [8]. Potem otwiera się bramka wewnętrzna i cząsteczka wraz z jonami przechodzi do cytoplazmy, a nośnik wraca do postaci wyjściowej. W strukturze ludzkiego NET związanego z dezypraminą, otrzymanej w obecności chlorku potasu, uchwycono jon potasu w miejscu wiązania sodu [9]. Obserwacja ta nie rozstrzyga jeszcze, czy potas bierze udział w cyklu transportu [9].
Z takiego przebiegu wynika następstwo, którego nie widać w samym opisie kroków. Miejsce wiązania nigdy nie jest otwarte na obie strony błony naraz, dlatego przez nośnik nie przecieka ani sód, ani przekaźnik [8]. Komórka gromadzi w ten sposób katecholaminę wbrew jej gradientowi stężeń [8]. Ceną tej szczelności jest tempo. Jeden cykl przenosi jedną cząsteczkę i wymaga pełnej przebudowy białka. O szybkości usuwania przekaźnika decyduje więc liczba nośników w błonie, a nie tempo pracy pojedynczego z nich [4].
Dalszy los wchłoniętej cząsteczki zależy od tkanki. Część przekaźnika wraca do pęcherzyków wydzielniczych dzięki transporterowi pęcherzykowemu i zostaje użyta ponownie [2]. Pozostała część ulega rozkładowi przez monoaminooksydazę związaną z zewnętrzną błoną mitochondriów [2]. Transporter błonowy dostarcza więc substrat obu drogom, lecz sam żadnej reakcji nie katalizuje.
2.2. Siła napędowa transporterów monoamin
Transportery monoamin nie rozkładają adenozynotrifosforanu i nie mają miejsca wiążącego nukleotyd. Energię do przenoszenia przekaźnika czerpią z gradientu sodu, który po obu stronach błony utrzymuje pompa sodowo-potasowa [1]. Taki sposób napędu nazywa się transportem wtórnie czynnym i występuje w wielu układach transportu przez błony.
Bilans jonowy pojedynczego cyklu różni oba nośniki. W obu przypadkach przekaźnik wchodzi do komórki razem z jonem sodu i jonem chlorkowym [1]. Zależność transportu od chlorku występuje w całej rodzinie SLC6 [1]. Pomiary w liniach komórkowych wskazały jednak na różnicę w liczbie przenoszonych jonów sodu. NET przenosi wraz z substratem jeden jon, a DAT więcej niż jeden [4]. W strukturze ludzkiego DAT związanego z kokainą jedno z dwóch miejsc sodowych pozostawało puste [8]. Jego przestrzeń zajmował łańcuch boczny asparaginy [8].
Z bilansu ładunku wynikają dwa następstwa. Pierwsze jest elektryczne: przeniesienie jonu sodu czyni transport procesem elektrogennym [1]. Towarzyszący mu prąd błonowy służy w badaniach do śledzenia kolejnych kroków cyklu [1]. Drugie dotyczy kierunku pracy. Gradient sodu jest jedyną siłą napędową nośnika. Jego spadek odbiera białku zdolność zagęszczania przekaźnika i otwiera drogę transportowi w stronę przeciwną [19]. Taki spadek mogą wywoływać substancje, które same są przenoszone przez nośnik i wprowadzają przy tym sód do cytoplazmy [19].
2.3. Obszar działania transporterów DAT i NET
Każdy z dwóch transporterów jest kodowany przez własny gen, więc o ich roli decyduje przede wszystkim miejsce, w którym są aktywne. DAT leży w błonie neuronów dopaminowych śródmózgowia, najgęściej na ich zakończeniach w prążkowiu, gdzie usuwa większość wydzielonej dopaminy [5]. NET leży w błonie neuronów noradrenergicznych, a kodujący go przekaźnikowy kwas rybonukleinowy stwierdzono w pniu mózgu i w nadnerczu [13]. Poza mózgiem to samo białko pracuje w zakończeniach współczulnych narządów, w tym serca [20].
O tym, który nośnik kończy działanie dopaminy w danej okolicy, decyduje jego miejscowa gęstość. W synaptosomach z kory czołowej myszy wychwyt dopaminy hamowała nizoksetyna, czyli inhibitor NET [5]. Wybiórczy inhibitor DAT go nie zmieniał, a u myszy pozbawionych genu NET nie działał żaden z tych związków [5]. W jądrze ogoniastym i w jądrze półleżącym zależność była odwrotna i wychwyt dopaminy zależał głównie od DAT [5]. O przynależności zadania decyduje zatem nie powinowactwo samo w sobie, lecz jego zestawienie z miejscową gęstością obu nośników [5]. Dlatego u szczura lek wybiórczo hamujący NET, atomoksetyna, podnosił w korze przedczołowej stężenie obu katecholamin, a w prążkowiu pozostawiał dopaminę bez zmian [21].
| Transporter | Główne umiejscowienie | Przenoszony neuroprzekaźnik | Następstwo zahamowania |
| DAT | zakończenia neuronów dopaminowych w prążkowiu i w jądrze półleżącym | dopamina | dłuższe działanie dopaminy w prążkowiu [5, 21] |
| NET | neurony noradrenergiczne pnia mózgu, kora przedczołowa | noradrenalina i dopamina | wzrost stężenia obu katecholamin w korze przedczołowej [5, 21] |
| NET obwodowy | zakończenia współczulne, w tym serca, oraz nadnercze | noradrenalina | wolniejsze usuwanie noradrenaliny z przestrzeni okołosynaptycznej [13, 22] |
Zestawienie pokazuje, dlaczego ten sam mechanizm molekularny daje odmienne skutki w różnych tkankach. Zahamowanie NET w korze przedczołowej zmienia przekaźnictwo dopaminowe, a to samo zahamowanie w zakończeniach współczulnych zmienia gospodarkę noradrenaliny w krążeniu [21, 22]. Obwodowe umiejscowienie NET wykorzystuje się ponadto do obrazowania. Znakowany analog noradrenaliny wnika do zakończeń współczulnych serca właśnie tym nośnikiem [20].
2.4. Regulacja aktywności
Liczba czynnych nośników w błonie zmienia się w ciągu minut, niezależnie od tempa przepisywania genu. Transportery monoamin mają kilka miejsc fosforylacji [23]. Kinazy i fosfatazy zmieniają przez nie rozmieszczenie podkomórkowe nośnika, jego wiązanie z białkami towarzyszącymi, tempo rozkładu i zdolność przenoszenia substratu [23]. Pobudzenie kinazy białkowej C prowadzi do fosforylacji nośnika i do wycofania go z błony [1]. Wychwyt maleje wtedy bez zmiany całkowitej ilości białka [1]. Mechanizmy te pozwalają neuronowi dostroić tempo usuwania przekaźnika do natężenia jego wydzielania [24].
Drugim poziomem regulacji jest zestaw białek, z którymi nośnik tworzy kompleksy. Receptor dopaminowy D2 łączy się bezpośrednio z końcem aminowym DAT przez swoją trzecią pętlę wewnątrzkomórkową [25]. Takie połączenie sprzyja przeniesieniu nośnika do błony i zwiększa wychwyt dopaminy [25]. Wstrzyknięcie myszom peptydów rozrywających to połączenie zmniejszało wychwyt w synaptosomach [25]. Zwierzęta stawały się przy tym nadruchliwe, podobnie jak przy braku nośnika [25]. Receptor presynaptyczny reguluje zatem nie tylko uwalnianie przekaźnika, lecz także tempo jego odbierania.
Trzecim mechanizmem jest pobudzenie receptora amin śladowych typu 1, oznaczanego jako TAAR1. Receptor ten pośredniczy w działaniu substancji o budowie amfetaminy i uczestniczy w regulacji czynności transporterów monoamin [26]. Dane pochodzą jednak głównie z modeli komórkowych i zwierzęcych [26]. Wszystkie trzy warstwy regulacji działają na tę samą wielkość, czyli na liczbę nośników dostępnych w błonie [23]. Dlatego tempo wychwytu może się różnić także przy tej samej sekwencji genu [24].
2.5. Farmakologia
Transportery monoamin są jednym z najlepiej zbadanych punktów uchwytu w farmakologii ośrodkowego układu nerwowego. Substancje działające na nie dzielą się według tego, czy nośnik je wiąże, czy przenosi [11]. Leki hamujące wychwyt zajmują miejsce centralne i zatrzymują białko w postaci otwartej na zewnątrz, więc przekaźnik traci dostęp do własnego miejsca wiązania [10, 12]. Powinowactwo leków do poszczególnych nośników jest bardzo zróżnicowane [27]. Stałe dysocjacji oznaczono dla trzydziestu siedmiu leków przeciwdepresyjnych i wszystkich trzech nośników monoamin [27]. Sertralina i nomifenzyna wiązały się z ludzkim DAT ze stałymi 25 nM i 56 nM [27].
Wybiórczość wynika z dopasowania cząsteczki do jednej kieszeni. Struktury transportera owadziego związanego z nizoksetyną i reboksetyną wskazały na źródło tej przewagi [28]. Decydują o niej podstawniki pierścieni aromatycznych i ich oddziaływanie ze ścianami miejsca wiązania [28]. W strukturach ludzkiego NET atomoksetyna, dezypramina, bupropion i escitalopram zajmowały to samo miejsce centralne, lecz utrzymywały białko w różnych postaciach pośrednich [9]. Atomoksetyna wiąże się z ludzkim NET ze stałą hamowania 5 nM, z transporterem serotoniny ze stałą 77 nM, a z DAT ze stałą 1451 nM [21]. Wobec nośnika noradrenaliny jest zatem wybiórcza [21].
Osobną grupę stanowią substancje, które nośnik przenosi jak substrat. Pochodne amfetaminy wchodzą do miejsca centralnego, zostają przeniesione do cytoplazmy, a napływający z nimi sód osłabia gradient napędzający transport [11, 19]. Nośnik zaczyna wtedy pracować w stronę przeciwną i wyrzuca katecholaminę z komórki niezależnie od aktywności neuronu. Drugim mechanizmem tej grupy jest przemieszczenie przekaźnika z pęcherzyków do cytoplazmy, co zwiększa pulę dostępną dla odwróconego transportu [19]. Udział w tym działaniu przypisuje się także receptorowi TAAR1, przez który pochodne amfetaminy mogą zmieniać czynność nośnika [26].
| Grupa substancji | Sposób działania na nośnik | Nośnik wiązany z większym powinowactwem | Skutek dla katecholaminy zewnątrzkomórkowej |
| Leki hamujące wychwyt noradrenaliny (atomoksetyna, dezypramina) | wiązanie w miejscu centralnym potwierdzone w strukturze NET [9] | NET | hamowanie transportu substratu [9]; dla atomoksetyny u szczura wzrost w korze przedczołowej [21] |
| Metylofenidat | hamowanie wychwytu | DAT i NET | u szczura wzrost w prążkowiu i w korze przedczołowej [21]; u zdrowych dorosłych zajęcie DAT bez korelacji z wielkością wzrostu dopaminy [29] |
| Bupropion | wiązanie w miejscu centralnym potwierdzone w strukturze NET [9] | NET (w strukturze [9]) | hamowanie transportu substratu [9] |
| Kokaina i jej analogi | wiązanie w miejscu centralnym | DAT (w strukturach [8, 10]); także NET i transporter serotoniny [1] | zahamowanie wychwytu, a tym samym dłuższa obecność przekaźnika w przestrzeni zewnątrzkomórkowej [8, 10] |
| Pochodne amfetaminy | transport jako substrat i odwrócenie kierunku pracy | DAT i NET | wzrost niezależny od wyładowań neuronu [11, 19] |
Zestawienie tłumaczy, dlaczego określenie „substancja podnosząca stężenie dopaminy” nie wystarcza do przewidzenia skutków. Zablokowanie nośnika wydłuża działanie przekaźnika tylko tam, gdzie jest on wydzielany. Odwrócenie kierunku pracy opróżnia zapasy komórkowe niezależnie od aktywności neuronu [19]. Pomiary u ludzi pokazują przy tym, że samo zajęcie nośnika nie przewiduje wielkości odpowiedzi. W badaniu z pozytonową tomografią emisyjną u dziesięciu zdrowych dorosłych metylofenidat zajmował średnio 60% transportera dopaminy w prążkowiu [29]. Stopień zajęcia nie korelował jednak z wielkością wzrostu stężenia dopaminy [29]. Autorzy wiążą tę rozbieżność z różnicami w ilości uwalnianego przekaźnika, bo przy tym samym zahamowaniu wychwytu mniej aktywny neuron oddaje mniej dopaminy [29].
3. Znaczenie kliniczne
3.1. Następstwa obniżonej aktywności
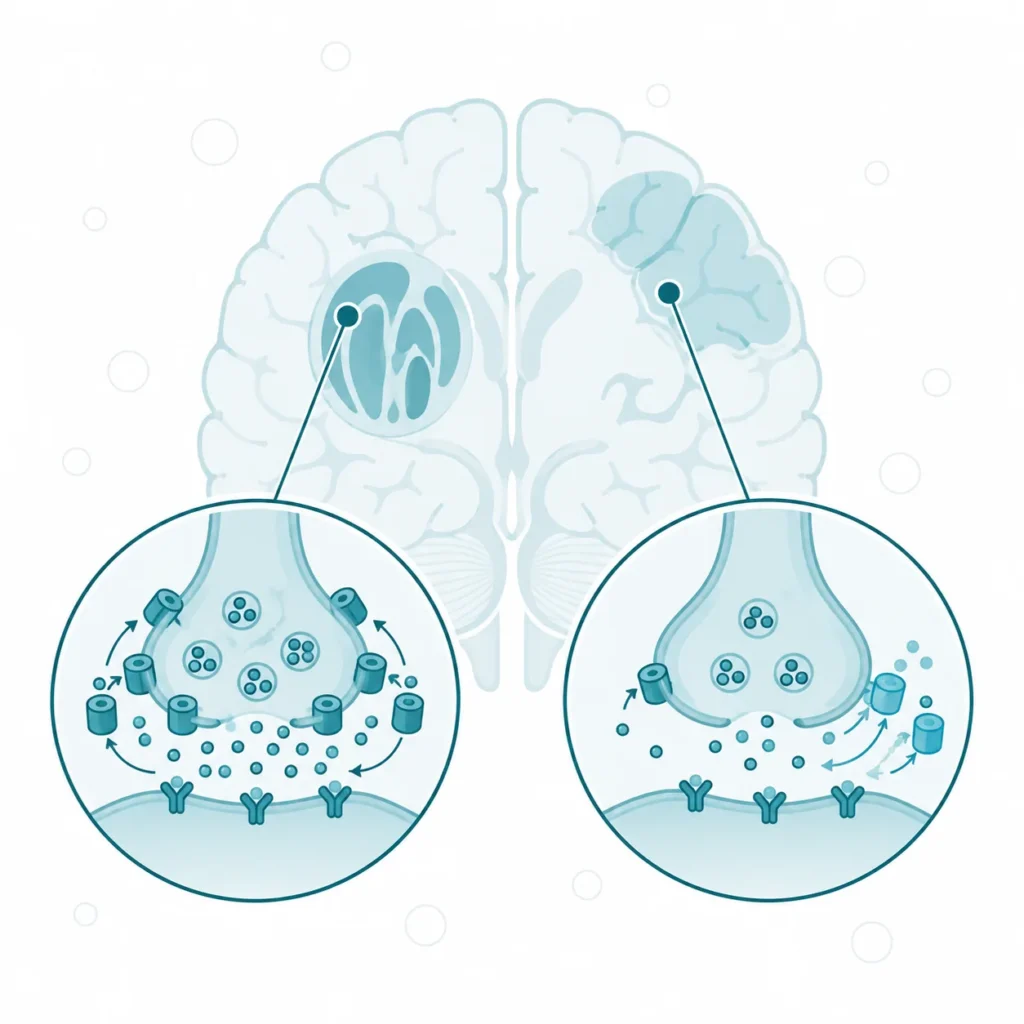
Obniżenie aktywności transportera monoamin wydłuża obecność przekaźnika w przestrzeni zewnątrzkomórkowej, a skutki tej zmiany zależą od jej skali i od tkanki. Obraz skrajny poznano dzięki zwierzętom pozbawionym genu nośnika. U myszy bez genu DAT dopamina utrzymywała się w przestrzeni zewnątrzkomórkowej co najmniej sto razy dłużej niż u zwierząt kontrolnych [30]. Zwierzęta były spontanicznie nadruchliwe, mimo obniżonej zawartości przekaźnika i mniejszej gęstości receptorów [30]. U myszy bez genu NET usuwanie noradrenaliny było wydłużone, a jej stężenie zewnątrzkomórkowe podwyższone [31]. W teście przesiewowym zwierzęta te zachowywały się jak zwierzęta kontrolne otrzymujące lek przeciwdepresyjny, a na kokainę i amfetaminę odpowiadały silniejszą aktywnością ruchową niż zwierzęta kontrolne [31].
Całkowity brak czynnego DAT opisano także u ludzi. Zespół niedoboru transportera dopaminy jest chorobą dziedziczoną autosomalnie recesywnie, w której obustronne mutacje genu SLC6A3 znoszą czynność nośnika [32, 33]. W kohorcie jedenastu dzieci objawy pojawiały się w wieku niemowlęcym, z medianą dwóch i pół miesiąca [33]. Pierwszy obraz tworzyły ruchy mimowolne albo zespół parkinsonowski [33]. Siedmioro z tych dzieci miało wcześniej rozpoznane mózgowe porażenie dziecięce, co pokazuje, jak łatwo chorobę pomylić z częstszym rozpoznaniem [33].
Obniżenie aktywności NET u człowieka opisano w rodzinie z nietolerancją ortostatyczną. U osoby heterozygotycznej pod względem mutacji w dziewiątym eksonie genu SLC6A2 zmutowany allel wykazywał ponad 98-procentową utratę czynności [22]. Stężenie noradrenaliny w jej osoczu w pozycji stojącej wynosiło 923 pg/ml wobec 439 pg/ml u osób zdrowych, przy obniżonym usuwaniu przekaźnika [22]. Wariant genu segregował w tej rodzinie z przyspieszeniem czynności serca po przyjęciu pozycji stojącej [22]. Opisany przypadek wskazuje więc, że upośledzone usuwanie noradrenaliny może dawać obraz nadmiernego pobudzenia współczulnego. Wniosek opiera się na jednej rodzinie [22].
3.2. Następstwa podwyższonej aktywności
Podwyższona aktywność nośnika skraca czas działania przekaźnika na receptory, ponieważ każda cząsteczka zostaje szybciej wciągnięta do wnętrza komórki. Zależność tę zmierzono u myszy z dodatkową kopią genu DAT. Trzykrotny wzrost całkowitej ilości białka dawał u nich pięćdziesięcioprocentowy wzrost tempa wychwytu dopaminy i obniżenie jej stężenia zewnątrzkomórkowego o około 40% [34]. Zwierzęta te reagowały na substancje blokujące nośnik podobnie jak zwierzęta kontrolne [34]. Na amfetaminę odpowiadały jednak silniejszym wzrostem aktywności ruchowej, a ilość uwolnionej dopaminy rosła u nich trzykrotnie [34].
U ludzi dane o podwyższonej aktywności pochodzą z badań obrazowych i są trudniejsze w interpretacji. Metaanaliza dziewięciu badań z tomografią emisyjną (pojedynczego fotonu albo pozytonową) objęła 169 osób z zespołem nadpobudliwości ruchowej z deficytem uwagi i 173 osoby zdrowe [35]. Gęstość DAT w prążkowiu była w grupie z tym rozpoznaniem średnio o 14% wyższa [35]. Niejednorodność między badaniami była jednak duża i istotna statystycznie [35]. Metaregresja wskazała na wcześniejsze stosowanie leków psychostymulujących: gęstość była wyższa u osób leczonych, a niższa u nieleczonych [35]. Kierunek zależności u człowieka pozostaje zatem nierozstrzygnięty. Pomiar wykonany po leczeniu może zatem opisywać stan układu po przystosowaniu, a nie stan wyjściowy [35].
3.3. Udział transporterów monoamin w chorobach
Transportery monoamin występują w mechanizmach kilku chorób w dwóch odmiennych rolach: jako białko uszkodzone i jako wskaźnik stanu neuronów, które je wytwarzają. W chorobie Parkinsona rolą DAT jest druga z nich. Ubytek neuronów dopaminowych śródmózgowia zmniejsza liczbę zakończeń w prążkowiu, a wraz z nimi liczbę cząsteczek nośnika [7]. Pomiar gęstości DAT odzwierciedla zatem stan układu dopaminergicznego, a nie wadę samego białka [36]. W otępieniu z ciałami Lewy’ego badanie gęstości nośnika w prążkowiu odróżnia tę postać otępienia od otępień innego rodzaju [6].
Zespół niedoboru transportera dopaminy jest natomiast przykładem roli pierwszej, czyli choroby samego białka. Homozygotyczne mutacje typu zmiany sensu opisano w dwóch niespokrewnionych rodzinach z parkinsonizmem i dystonią niemowlęcą [32]. Obniżały one ilość dojrzałej postaci nośnika o masie 85 kDa i zmieniały powinowactwo wobec dopaminy [32]. Od pierwszego opisu w 2009 roku w piśmiennictwie zebrano trzydzieści jeden przypadków, z wariantami skracającymi białko i wariantami zmiany sensu [37]. Wśród badanych kierunków leczenia wymienia się farmakochaperony i terapię genową [37]. Podejrzenie budzi podwyższony stosunek kwasu homowanilinowego do kwasu 5-hydroksyindolooctowego w płynie mózgowo-rdzeniowym, a rozpoznanie potwierdza analiza genu [33]. W kohorcie jedenastu dzieci, włączonych na podstawie takiego profilu biochemicznego, wynosił on od 5,0 do 13,2 przy wartościach prawidłowych od 1,3 do 4,0 [33].
W zespole nadpobudliwości ruchowej z deficytem uwagi transportery monoamin są przede wszystkim punktem uchwytu leków. Ich udział w powstawaniu samego zaburzenia pozostaje niepewny [38]. Polimorfizm liczby powtórzeń w regionie nieulegającym translacji genu SLC6A3 oceniano w badaniach rodzinnych i kontrolnych objętych metaanalizą [38]. W metaanalizie z 2019 roku allel dziesięciopowtórzeniowy wiązał się z rozpoznaniem u dzieci i młodzieży, z ilorazem szans 1,11 i nominalną wartością p równą 0,013 [38]. W populacji europejskiej iloraz szans wyniósł 1,13 [38]. Siła tego związku jest zatem niewielka, a u dorosłych tego samego kierunku nie potwierdzono [38]. Wariant genu wiąże się także ze skutecznością leczenia. Metaanaliza trzydziestu sześciu badań objęła 3647 dzieci, a allel dziesięciopowtórzeniowy wiązał się w niej z gorszą odpowiedzią na metylofenidat, z ilorazem szans 0,74 [39]. Dwa podstawienia w genie SLC6A2 wiązały się z odpowiedzią lepszą [39]. Autorzy odnotowali przy tym asymetrię wykresu lejkowego w badaniach nad SLC6A3, przypisaną efektom małych badań [39].
Poza tymi trzema obszarami oba nośniki pojawiają się w opisach chorób ze zmienioną gospodarką katecholamin, w tym zaburzeń nastroju i uzależnień [24]. Dane mają tam charakter korelacyjny, a zależność jest dwukierunkowa. Zmiana ilości nośnika może być zarówno ogniwem mechanizmu, jak i jego następstwem [24, 35].
3.4. Czynniki wpływające na aktywność
Aktywność transporterów monoamin zmienia się pod wpływem czynników stałych i modyfikowalnych, a różnica między nimi ma znaczenie dla interpretacji każdego pomiaru. Czynnikiem stałym jest sekwencja genu. Polimorfizm liczby powtórzeń w genie SLC6A3 może wpływać na ilość białka [38]. Według części prac dłuższe warianty wiążą się z niższą ekspresją nośnika [38]. W genie SLC6A2 opisano zarówno pojedyncze podstawienia powiązane z odpowiedzią na leczenie [39], jak i mutację niemal całkowicie znoszącą czynność zmutowanego allelu [22].
Warstwę pośrednią tworzy regulacja potranslacyjna, czyli fosforylacja i przemieszczanie nośnika między błoną a wnętrzem komórki [23]. Na tym poziomie działają sygnały z receptorów presynaptycznych, w tym receptora D2, oraz pobudzenie kinaz wewnątrzkomórkowych [1, 25]. Ta warstwa odpowiada za zmiany w ciągu minut i godzin, a to ona rozstrzyga o tempie wychwytu w danej chwili [23].
Czynnikiem modyfikowalnym o najlepiej udokumentowanym wpływie są substancje wiążące się do nośnika. Do tej grupy należą leki hamujące wychwyt katecholamin, substancje psychostymulujące i część leków przeciwdepresyjnych o budowie trójpierścieniowej [27]. Przegląd systematyczny objął czterdzieści cztery badania kliniczne z lat 2008–2022 [40]. Część leków oraz substancji używanych w sposób pozamedyczny, w tym tytoń i alkohol, może zmieniać wiązanie znacznika transportera dopaminy w prążkowiu [40]. Zmiana ta może wpływać na odczyt badania obrazowego [40].
Czwartym czynnikiem jest stan samych neuronów katecholaminowych. Ubytek zakończeń dopaminowych zmniejsza liczbę nośników w prążkowiu niezależnie od ich czynności [7]. Wcześniejsze stosowanie substancji psychostymulujących wiązało się natomiast z wyższą gęstością białka w metaanalizie badań obrazowych [35]. Ocena aktywności w konkretnej tkance wymaga zatem rozstrzygnięcia trzech możliwości. Zmiana może dotyczyć liczby neuronów, liczby cząsteczek nośnika w ich błonie albo tempa pracy pojedynczej cząsteczki.
4. Uwagi praktyczne
4.1. Jak to zbadać
Transporter dopaminy jest jednym z niewielu białek przekaźnictwa, których ilość ocenia się u konkretnego człowieka. Badaniem służącym do tego celu jest tomografia emisyjna pojedynczego fotonu z ioflupanem, czyli znakowanym jodem promieniotwórczym ligandem wiążącym się z DAT [36]. Znacznik gromadzi się w prążkowiu proporcjonalnie do liczby zakończeń neuronów dopaminowych [36]. Obraz przedstawia więc stan zakończeń, a nie czynność pojedynczej cząsteczki nośnika [36]. Materiałem jest sam mózg, badany po dożylnym podaniu znacznika [36]. Wynik odczytuje się wzrokowo oraz półilościowo, przez porównanie wiązania w prążkowiu z okolicą odniesienia i z bazą danych osób zdrowych [36].
Zastosowaniem o najlepiej opisanej trafności jest rozpoznanie różnicowe zespołów parkinsonowskich i otępień. Przegląd systematyczny objął osiem badań, w których punktem odniesienia było badanie neuropatologiczne albo powtórzone obrazowanie po co najmniej dwóch latach [7]. W jedynym z nich obejmującym osoby z niepewnym rozpoznaniem klinicznym czułość i swoistość w wykrywaniu ubytku neuronów szlaku nigrostriatalnego wyniosły 98% [7]. Metaanaliza czterech badań objęła 419 osób [6]. Zbiorcza czułość w odróżnianiu otępienia z ciałami Lewy’ego od innych otępień wyniosła w niej 86,5%, a swoistość 93,6% [6]. Przedział ufności dla czułości był szeroki (72–94,1%), a liczba badań mała [6]. Badanie nie odróżnia natomiast choroby Parkinsona od zespołów parkinsonowskich o innym mechanizmie, bo wszystkie przebiegają z ubytkiem tych samych zakończeń [36].
Dwa ograniczenia techniczne decydują o interpretacji wyniku. Pierwszym są leki i substancje zmieniające wiązanie znacznika [40]. Przy części leków, a także po tytoniu i alkoholu, zmiana wiązania w prążkowiu może prowadzić do wyniku fałszywie dodatniego [40]. Decyzja o czasowym odstawieniu leku przed badaniem pozostaje przy tym w rękach lekarza prowadzącego, który rozważa korzyści i straty takiego postępowania [40]. Drugim ograniczeniem jest porównywalność pomiarów półilościowych między pracowniami [36]. Ujednoliceniu protokołów i baz normatywnych służą wspólne wytyczne dwóch towarzystw medycyny nuklearnej [36].
Transportera noradrenaliny nie ocenia się w taki sposób w praktyce klinicznej. Nośnik ten jest natomiast drogą wnikania znaczników używanych w badaniach izotopowych serca [20]. Należy do nich znakowany analog noradrenaliny, stosowany w ocenie unerwienia współczulnego mięśnia sercowego [20]. Wynik takiego badania opisuje stan unerwienia narządu, a nie ilość samego białka.
4.2. Na co warto zwrócić uwagę
Wokół transporterów monoamin narosło kilka uproszczeń, a najczęstsze dotyczy odczytu badania obrazowego. Obniżone wiązanie ioflupanu w prążkowiu bywa odczytywane jako rozpoznanie choroby Parkinsona, podczas gdy opisuje ono wyłącznie ubytek zakończeń neuronów dopaminowych [7, 36]. Ten sam obraz występuje w otępieniu z ciałami Lewy’ego [6] i w innych zespołach parkinsonowskich [36]. Badanie rozstrzyga więc o obecności ubytku, nie o jego przyczynie [7]. Dane o trafności w sytuacji, w której badanie jest najbardziej potrzebne, czyli przy niepewnym rozpoznaniu klinicznym, są ubogie: w przeglądzie [7] obejmowało takie osoby tylko jedno z ośmiu badań.
Drugie nieporozumienie polega na przypisywaniu gęstości nośnika roli znacznika zaburzenia psychicznego. Gęstość DAT w prążkowiu w zespole nadpobudliwości ruchowej z deficytem uwagi była w metaanalizie średnio o 14% wyższa niż w grupie zdrowej [35]. Rozrzut wyników był jednak duży, a kierunek różnicy zależał od wcześniejszego leczenia [35]. Podobnie wariant genu SLC6A3 może zmieniać wydajność wytwarzania białka [38]. Iloraz szans rzędu 1,1 opisuje jednak różnicę częstości w populacjach, a nie ryzyko u pojedynczej osoby [38]. Oznaczenie genotypu u konkretnego człowieka nie niesie zatem informacji o rozpoznaniu, chociaż sam efekt molekularny istnieje.
Trzecie uproszczenie dotyczy równoważności substancji podnoszących stężenie katecholamin. Zablokowanie nośnika wydłuża działanie przekaźnika tylko w okolicy jego wydzielania [19]. Odwrócenie kierunku transportu opróżnia zapasy komórkowe niezależnie od wyładowań neuronu [19]. Dwie substancje opisywane tym samym skrótowym określeniem mają więc odmienny mechanizm i odmienny zakres działania [11, 19]. Pomiar u ludzi dodaje do tego obrazu zastrzeżenie [29]. Stopień zajęcia transportera dopaminy nie korelował z wielkością wzrostu jej stężenia, więc sama blokada nie przesądza o odpowiedzi układu [29].
Ograniczenia dowodowe wymagają zaznaczenia w trzech punktach. Znaczna część wiedzy o regulacji nośnika pochodzi z linii komórkowych oraz z myszy pozbawionych genu albo z jego dodatkową kopią [30, 34]. Odpowiednika obu tych stanów u człowieka nie opisano poza rzadkimi chorobami genetycznymi [32, 33]. Następstwa fosforylacji transportera w żywym organizmie pozostają niejasne [23]. Opisano natomiast same miejsca fosforylacji i kinazy działające na nie w warunkach doświadczalnych [23]. Wreszcie dane łączące ilość nośnika z zaburzeniami nastroju i uzależnieniami mają charakter korelacyjny [24]. Zmiana gęstości białka może być zarówno ogniwem mechanizmu, jak i skutkiem przystosowania [35]. Treść hasła ma charakter edukacyjny i nie zastępuje porady lekarskiej.