
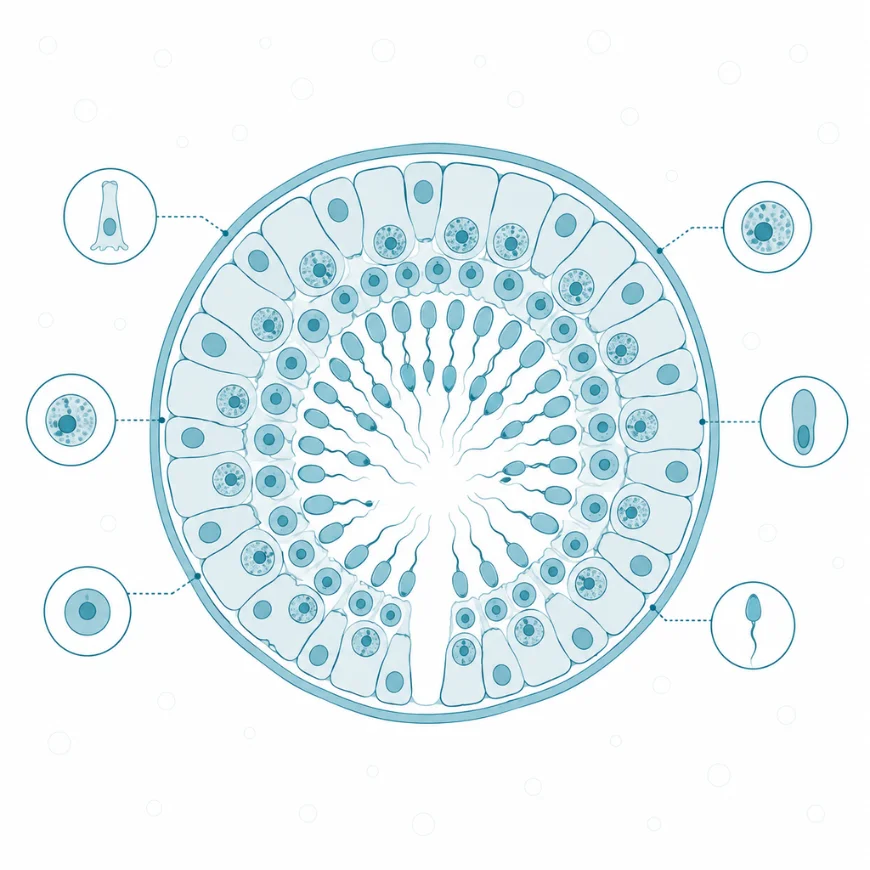
1. Charakterystyka procesu
1.1. Definicja i zakres procesu
Spermatogeneza to proces różnicowania męskich komórek płciowych, w którym z diploidalnych spermatogonii powstają haploidalne plemniki. Należy do gametogenezy, czyli wytwarzania komórek rozrodczych, i stanowi jej męską odmianę, odpowiadającą oogenezie u kobiet. Spermatogonie to komórki macierzyste i komórki pochodne leżące na obwodzie kanalików nasiennych jądra. Plemnik jest natomiast komórką o połowie zestawu chromosomów, zdolną do ruchu i do połączenia z komórką jajową. Proces obejmuje trzy następujące po sobie fazy: podziały mitotyczne spermatogonii, mejozę spermatocytów i przebudowę spermatyd w plemniki. Przez cały czas komórki płciowe pozostają zależne od komórek somatycznych jądra, które dostarczają im sygnałów regulacyjnych i substancji odżywczych, a także osłony immunologicznej [1], [2].
Spermatogeneza bywa mylona ze spermiogenezą, choć ta druga nazwa oznacza tylko ostatnią fazę całego procesu. Spermiogeneza obejmuje przebudowę okrągłej spermatydy w wydłużony plemnik, bez żadnego podziału komórki [3]. Kryterium różnicującym jest więc obecność podziałów: spermatogeneza zawiera mitozy i mejozę, spermiogeneza wyłącznie zmianę kształtu i upakowania jądra. Od spermatogenezy odróżnia się też dojrzewanie w najądrzu, w którym plemniki uwolnione z jądra nabywają ruchu postępowego i zdolności zapłodnienia [4]. Zakres pojęcia wyznaczają zatem dwa zdarzenia: podział spermatogonii macierzystej na początku i uwolnienie plemnika do światła kanalika, zwane spermiacją, na końcu. Różnica wobec oogenezy dotyczy przede wszystkim ciągłości: w jądrze populacja komórek macierzystych odnawia się i podtrzymuje wytwarzanie plemników przez całe dorosłe życie [5].
Spermatogeneza ma znaczenie wykraczające poza samą biologię komórki. Od jej wydajności zależy liczba plemników w nasieniu, a czynnik męski odpowiada za około połowę przypadków niepłodności par [6]. Proces jest też wrażliwy na leki, temperaturę i gorączkę, więc zmiany w nasieniu odzwierciedlają stan całego organizmu. Wytyczne Europejskiego Towarzystwa Urologicznego wskazują ponadto, że niepłodni mężczyźni mają większe ryzyko chorób sercowo-naczyniowych i nowotworów [6].
1.2. Umiejscowienie
Spermatogeneza zachodzi w nabłonku plemnikotwórczym, który wyściela kanaliki nasienne kręte jądra. Nabłonek ten składa się z dwóch populacji komórek: rozwijających się komórek płciowych oraz podtrzymujących je komórek Sertoliego. Komórki Sertoliego sięgają od błony podstawnej kanalika aż do jego światła i otaczają kolejne pokolenia komórek płciowych. Na zewnątrz kanalików leżą komórki mięśniowe okołokanalikowe, a w tkance śródmiąższowej komórki Leydiga, które wytwarzają testosteron [7].
Sąsiednie komórki Sertoliego łączą się połączeniami ścisłymi i adhezyjnymi, które tworzą barierę krew–jądro, jedną z najszczelniejszych barier między krwią a tkanką w organizmie ssaków [2]. Bariera dzieli nabłonek na dwa przedziały. W przedziale podstawnym, od strony naczyń, odnawiają się i różnicują spermatogonie, aż do stadium spermatocytu przedleptotenowego. W przedziale przyświetlnym, odgrodzonym od krwi, przebiegają oba podziały mejotyczne, spermiogeneza i spermiacja [2]. Taki układ chroni komórki mejotyczne i pomejotyczne przed układem odpornościowym, który mógłby rozpoznać ich białka jako obce i wytworzyć przeciw nim przeciwciała.
Kanaliki nasienne uchodzą przez sieć jądra do najądrza, gdzie plemniki przebywają po opuszczeniu miejsca powstania. U człowieka najądrze ma słabo rozwiniętą funkcję zbiornika plemników, a większość danych o jego czynności pochodzi z badań na zwierzętach laboratoryjnych i hodowlanych [4]. Umiejscowienie jąder w mosznie poza jamą brzuszną ma znaczenie czynnościowe, ponieważ spermatogeneza przebiega optymalnie w temperaturze nieco niższej od temperatury wnętrza ciała [8].
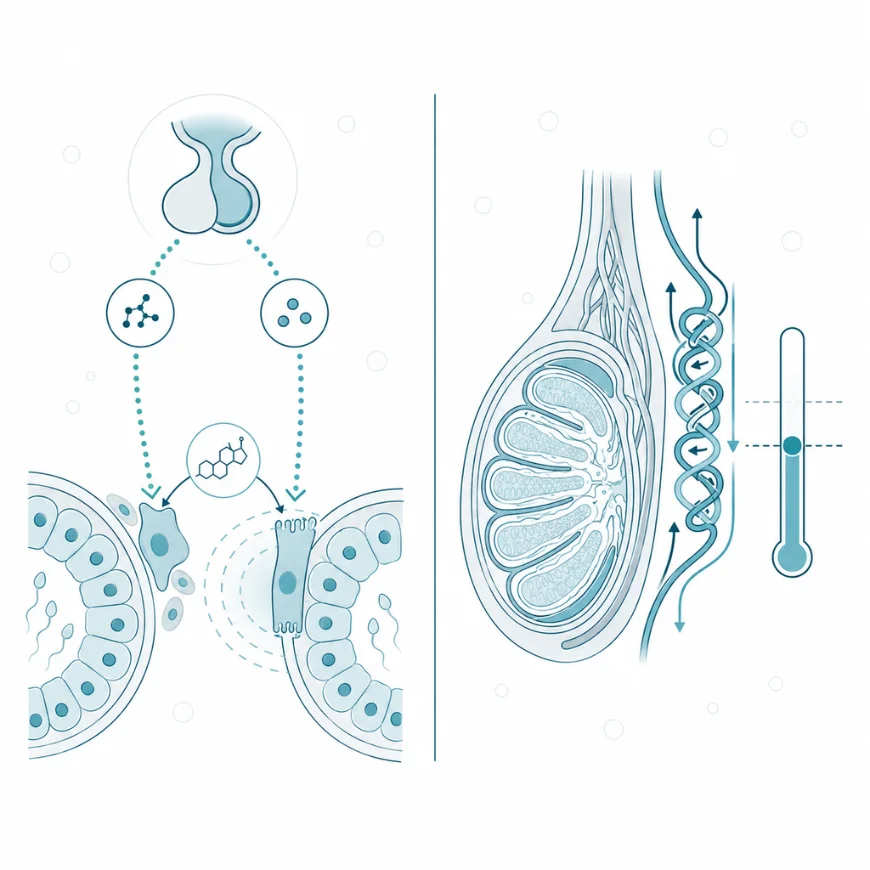
Spermatogeneza wymaga temperatury o kilka stopni niższej od głębokiej ciepłoty ciała.
1.3. Warunki i bodźce uruchamiające
Spermatogeneza w pełnej postaci rozpoczyna się w okresie dojrzewania płciowego, gdy uaktywnia się oś podwzgórze–przysadka–gonady. Podwzgórze zaczyna wtedy pulsacyjnie wydzielać gonadoliberynę, która pobudza przysadkę mózgową do uwalniania dwóch gonadotropin. Folikulotropina (ang. follicle-stimulating hormone, FSH), czyli hormon folikulotropowy, działa na komórki Sertoliego i wspiera namnażanie oraz różnicowanie komórek płciowych przed mejozą [7]. Lutropina (ang. luteinizing hormone, LH), czyli hormon luteinizujący, pobudza komórki Leydiga do wytwarzania testosteronu, który działa na komórki somatyczne kanalika [7].
Sygnał hormonalny uruchamia proces tylko wtedy, gdy w kanaliku istnieje populacja spermatogonii zdolnych do samoodnowy. Te komórki macierzyste dzielą się tak, że część potomstwa zachowuje charakter macierzysty, a część rozpoczyna różnicowanie [5]. Drugim warunkiem jest temperatura: jądra większości ssaków są o około 4–5 °C chłodniejsze od wnętrza ciała, a komórki płciowe znoszą przegrzanie gorzej niż komórki Sertoliego i Leydiga [9]. Trzecim warunkiem jest nienaruszona bariera krew–jądro, bez której mejoza nie ma chronionego środowiska [2]. Dopiero spełnienie wszystkich trzech warunków pozwala sygnałom z przysadki przełożyć się na stałe wytwarzanie plemników.
2. Przebieg i regulacja
2.1. Etapy procesu
Spermatogeneza przebiega w kanaliku nasiennym od błony podstawnej ku światłu. Każde kolejne pokolenie komórek płciowych leży bliżej światła niż poprzednie i jest od niego bardziej zaawansowane w rozwoju. W danym przekroju kanalika współistnieje zawsze kilka pokoleń, tworzących charakterystyczne zespoły komórkowe. Następstwo tych zespołów w jednym miejscu kanalika nazywa się cyklem nabłonka plemnikotwórczego [10].
Pierwszy etap to podziały mitotyczne spermatogonii w przedziale podstawnym. U naczelnych, w tym u człowieka, wyróżnia się spermatogonie typu A ciemne i A jasne, nazwane tak od wyglądu jądra w barwieniu hematoksyliną [5]. Obie grupy uznaje się za komórki macierzyste lub ich bezpośrednie potomstwo, choć związek ich wyglądu z zachowaniem komórki pozostaje słabo poznany [5]. Spermatogonie A jasne dzielą się i dają spermatogonie typu B, a te po ostatniej mitozie przekształcają się w spermatocyty pierwszego rzędu. Liczba podziałów mitotycznych między komórką macierzystą a spermatocytem nie została u człowieka ustalona z pewnością [10]. Mitozy zwiększają liczbę komórek wchodzących do mejozy, a więc bezpośrednio wyznaczają późniejszą liczbę plemników.
Drugi etap to mejoza, poprzedzona przejściem spermatocytów przez barierę krew–jądro. Spermatocyt przedleptotenowy przechodzi do przedziału przyświetlnego w ściśle określonym momencie cyklu nabłonka. Komórki Sertoliego budują wtedy nowe połączenia ścisłe pod wędrującą komórką, zanim rozłożą stare połączenia nad nią, więc bariera immunologiczna nie zostaje przerwana [2]. Spermatocyt pierwszego rzędu przechodzi pierwszy podział mejotyczny i daje dwa spermatocyty drugiego rzędu. Te szybko przechodzą drugi podział i dają okrągłe spermatydy o pojedynczym zestawie chromosomów [3]. Znaczna część potencjalnych plemników ginie na tym etapie, ponieważ spermatocyty ulegają degeneracji częściej niż spermatydy [10].
Trzeci etap, spermiogeneza, przekształca okrągłą spermatydę w wydłużony plemnik bez podziału komórki. Najgłębsza zmiana zachodzi w jądrze komórkowym, którego chromatyna zostaje skrajnie zagęszczona [3]. Histony, czyli białka nawijające DNA w zwykłej komórce, są najpierw zastępowane wariantami histonów i silnie acetylowane. W tym czasie w DNA powstają przejściowe pęknięcia nici, naprawiane w kolejnych krokach. Następnie miejsce histonów zajmują białka przejściowe, a na końcu protaminy, które upakowują DNA znacznie ciaśniej [3]. Równolegle spermatyda wytwarza akrosom, czyli pęcherzyk z enzymami potrzebnymi do przejścia przez osłonki komórki jajowej, oraz witkę. Proces kończy spermiacja, czyli uwolnienie gotowego plemnika do światła kanalika [2].
Czas trwania spermatogenezy u człowieka oszacowali w 1963 roku Heller i Clermont, którzy podawali do jądra tymidynę znakowaną trytem i śledzili znakowane komórki w kolejnych biopsjach [11]. Najbardziej dojrzałymi znakowanymi komórkami były po 16 dniach spermatocyty w środkowym stadium pachytenu, a po 32 dniach niedojrzałe spermatydy. Na tej podstawie autorzy przyjęli, że jeden cykl nabłonka trwa 16 dni, a cała spermatogeneza około 64 dni [11]. Późniejszy przegląd zwrócił uwagę, że dane z lat 60. nie są ani obszerne, ani precyzyjne, a przyjęta wartość może być błędna o około 6 dni [10]. Z tego powodu czas spermatogenezy podaje się jako przybliżenie rzędu dwóch miesięcy, a nie jako stałą.
Plemnik uwolniony z kanalika nie jest jeszcze w pełni sprawny. Zdolność do ruchu postępowego i do zapłodnienia nabywa dopiero podczas przejścia przez najądrze [4]. Zestawienie etapów pokazuje, jak zmieniają się kolejno typ komórki, liczba chromosomów i miejsce w kanaliku.
| Etap | Komórka | Zestaw chromosomów | Przedział kanalika | Główne zdarzenie |
| Faza mitotyczna | spermatogonie A ciemne, A jasne, B | diploidalny | podstawny | samoodnowa i namnażanie |
| Mejoza I | spermatocyt I rzędu | diploidalny, DNA podwojone | przyświetlny | rekombinacja, rozdział chromosomów homologicznych |
| Mejoza II | spermatocyt II rzędu | haploidalny, DNA podwojone | przyświetlny | rozdział chromatyd |
| Spermiogeneza | spermatyda okrągła, potem wydłużona | haploidalny | przyświetlny | protaminy, akrosom, witka |
| Spermiacja | plemnik | haploidalny | światło kanalika | uwolnienie z komórki Sertoliego |
| Dojrzewanie | plemnik | haploidalny | najądrze | ruch postępowy, zdolność zapłodnienia |
Liczba plemników w nasieniu zależy więc przede wszystkim od liczby mitoz spermatogonii i od strat w mejozie, a ich jakość od przebiegu spermiogenezy i dojrzewania w najądrzu.
2.2. Komórki i kluczowe białka
Komórka Sertoliego jest dla spermatogenezy komórką kluczową, ponieważ to ona odbiera sygnały hormonalne i przekazuje je komórkom płciowym. Folikulotropina wpływa na rozwój komórek płciowych za pośrednictwem komórek Sertoliego, które w odpowiedzi wytwarzają dla nich sygnały regulacyjne i substancje odżywcze [1]. Komórka Sertoliego ma receptor folikulotropiny, a także receptor androgenowy, przez który odbiera sygnał testosteronu [7]. Znaczenie receptora folikulotropiny pokazują rzadkie mutacje u ludzi. Mężczyźni z mutacją unieczynniającą gen podjednostki beta folikulotropiny mają azoospermię, a przy mutacji genu receptora spermatogeneza jest osłabiona [1].
Druga grupa białek kluczowych buduje barierę krew–jądro, której szczelność decyduje o bezpieczeństwie mejozy. Połączenia ścisłe między komórkami Sertoliego tworzą okludyna i klaudyna-5, związane z białkiem rusztowania ZO-1. Połączenia adhezyjne opierają się na N-kadherynie związanej z beta-kateniną [2]. Przebudowę tych połączeń w czasie przechodzenia spermatocytów koordynują kinazy białkowe, białka polarności i cytokiny, wśród nich transformujący czynnik wzrostu beta-3 i czynnik martwicy nowotworów alfa [2]. Dzięki temu bariera otwiera się przed spermatocytem, a jednocześnie nie traci ciągłości.
Komórka Leydiga dostarcza kanalikowi testosteronu, który jest głównym produktem czynności endokrynnej jąder. Hormon ten działa przez receptor androgenowy komórek Sertoliego, komórek Leydiga i komórek okołokanalikowych. W modelach zwierzęcych ten sygnał sprzyja tworzeniu bariery krew–jądro, dokończeniu mejozy i spermiacji [7]. W ostatniej fazie procesu kluczowe są protaminy, które zastępują histony w jądrze spermatydy i zagęszczają chromatynę [3]. Każda z tych grup białek odpowiada więc za inny odcinek procesu: receptory hormonów za tempo, białka połączeń za ochronę mejozy, protaminy za jakość materiału genetycznego plemnika.
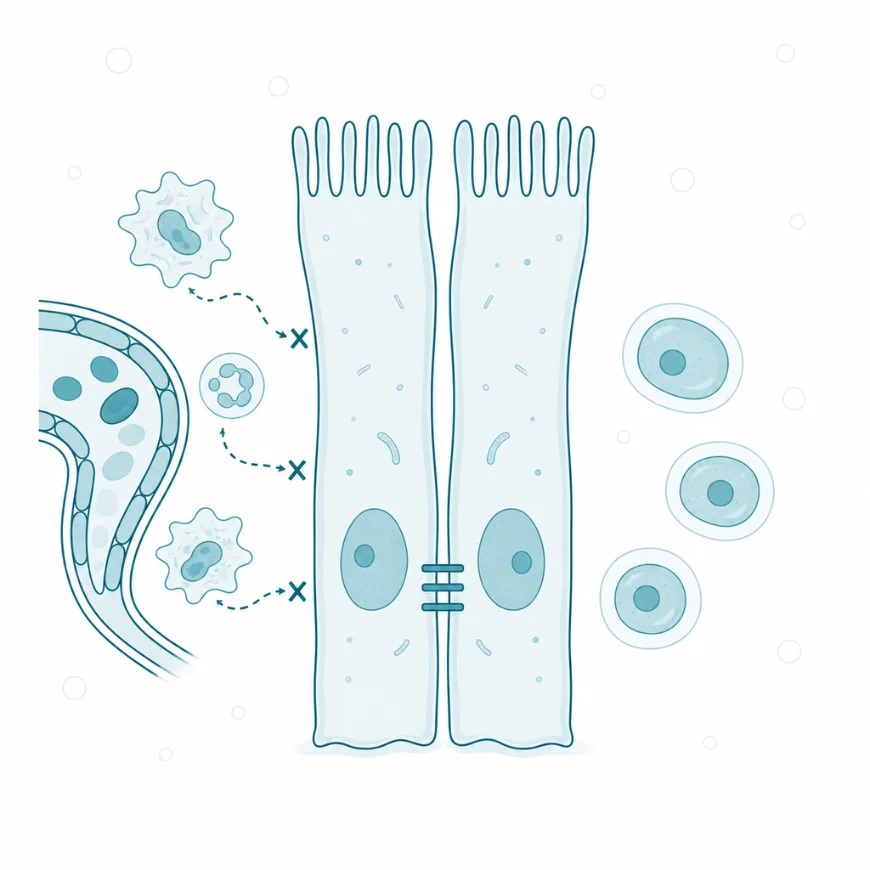
Bariera krew–jądro dzieli kanalik na dwa przedziały. Komórki w stadiach późniejszych są odizolowane od układu odpornościowego. Gdyby nie bariera krew–jądro, układ odpornościowy uznałby te komórki za obce i zacząłby je zwalczać.
2.3. Czynniki nasilające spermatogenezę
Tempo spermatogenezy u dorosłego mężczyzny zależy przede wszystkim od siły dwóch sygnałów hormonalnych docierających do kanalika. Pierwszym jest folikulotropina działająca na komórki Sertoliego, drugim testosteron wytwarzany lokalnie przez komórki Leydiga. W modelach zwierzęcych oba hormony działają zarówno wybiórczo, jak i synergistycznie, czyli wzmacniają nawzajem swój wpływ na rozwój komórek płciowych [7].
Testosteron działa w jądrze w stężeniu znacznie wyższym niż we krwi, ponieważ komórki Leydiga wydzielają go bezpośrednio do tkanki otaczającej kanaliki. W badaniu z płynem pobranym z jąder zdrowych mężczyzn stężenie śródjądrowe wynosiło średnio 822 nmol/l, czyli około 40 razy więcej niż w surowicy [12]. Klasyczny model regulacji traktuje to wysokie stężenie jako warunek prawidłowej spermatogenezy. Przegląd z 2021 roku nazywa jednak ten wymóg zarazem dogmatem i zagadką, ponieważ wielokrotnie przekracza on stężenie potrzebne do pobudzenia receptora androgenowego [13]. Autorzy opisali mężczyznę z mutacją podjednostki beta lutropiny, u którego wytwarzanie testosteronu spadło do 1–2% normy, a spermatogeneza przebiegała w pełni [13]. Podobnie u myszy pozbawionych receptora lutropiny spermatogenezę podtrzymywało podawanie niewielkich ilości testosteronu [13]. Dane te kwestionują przekonanie, że spermatogeneza wymaga stężenia testosteronu wielokrotnie wyższego niż we krwi, choć u zdrowego mężczyzny takie stężenie rzeczywiście występuje. U ludzi opiera się to na jednym opisanym przypadku, a w badaniu z hormonalnym hamowaniem stężenie śródjądrowe obniżone do poziomu zbliżonego do surowiczego nie wystarczało do utrzymania prawidłowej spermatogenezy [12].
2.4. Czynniki hamujące spermatogenezę
Najlepiej poznanym czynnikiem hamującym spermatogenezę jest testosteron podawany z zewnątrz, mimo że ten sam hormon wytwarzany w jądrze proces podtrzymuje. Sprzeczność wyjaśnia ujemne sprzężenie zwrotne. Testosteron krążący we krwi hamuje wydzielanie gonadotropin przez podwzgórze i przysadkę, więc komórki Leydiga tracą bodziec do wytwarzania własnego hormonu. Stężenie śródjądrowe spada wtedy, choć stężenie we krwi pozostaje prawidłowe albo rośnie [12].
Ten przebieg zmierzono u siedmiu mężczyzn otrzymujących testosteron z progestagenem w badaniu nad antykoncepcją hormonalną. Po sześciu miesiącach stężenie lutropiny w surowicy spadło o 98%, a folikulotropiny o 97% [12]. Stężenie testosteronu w jądrze obniżyło się o 98%, do poziomu zbliżonego do surowiczego, a średnia koncentracja plemników spadła z 65 do 1,3 miliona w mililitrze [12]. W wieloośrodkowym badaniu Światowej Organizacji Zdrowia u 271 zdrowych mężczyzn otrzymujących sam testosteron azoospermię, czyli brak plemników w nasieniu, osiągnęło w ciągu 6 miesięcy 65% uczestników [14]. Po odstawieniu hormonu mediana czasu do powrotu koncentracji do co najmniej 20 mln/ml wynosiła 3,7 miesiąca [14]. Zahamowanie było więc w tej grupie zdrowych mężczyzn odwracalne, co odpowiada mechanizmowi opartemu na odcięciu sygnału hormonalnego, a nie na uszkodzeniu kanalików.
Drugim czynnikiem hamującym jest podwyższona temperatura jądra. Przegrzanie wywołuje w komórkach płciowych uszkodzenie DNA i apoptozę, czyli zaprogramowaną śmierć komórki [8]. W modelach zwierzęcych uruchamia też nadmierne wytwarzanie reaktywnych form tlenu [9]. U zwierząt najbardziej wrażliwe są spermatocyty w stadium pachytenu, spermatydy i plemniki w najądrzu [9]. U ludzi efekt ten dobrze ilustruje gorączka. W badaniu 27 zdrowych mężczyzn oddających nasienie co miesiąc przez 16 miesięcy gorączka w okresie mejozy obniżała koncentrację plemników o 32,6%, a gorączka w okresie spermiogenezy o 35,0% [15]. Spadek był tym większy, im więcej dni trwała gorączka, a reakcja poszczególnych mężczyzn znacznie się różniła [15].
Trzecią grupę stanowią substancje toksyczne działające na barierę krew–jądro. W modelach zwierzęcych kadm i bisfenol A uszkadzają najpierw połączenia między komórkami Sertoliego, a dopiero w następstwie przyczepność komórek płciowych [2]. Komórki płciowe odrywają się wtedy od nabłonka przedwcześnie, co obniża liczbę plemników [2]. Opis ten opiera się głównie na doświadczeniach na gryzoniach, a skala zjawiska przy narażeniu środowiskowym u ludzi pozostaje nieokreślona. Wszystkie trzy mechanizmy trafiają w różne punkty procesu: testosteron z zewnątrz w sygnał hormonalny, ciepło w same komórki płciowe, toksyny w ich środowisko.
2.5. Powiązania z innymi szlakami
Spermatogeneza łączy się ze steroidogenezą jądrową przez wspólną komórkę Leydiga i wspólny sygnał z przysadki. Lutropina pobudza komórkę Leydiga do wytwarzania testosteronu, a ten hormon jest jednocześnie produktem szlaku steroidowego i sygnałem dla nabłonka plemnikotwórczego [7]. Mimo tej wspólnej regulacji obie czynności jądra mogą rozchodzić się w chorobie. U mężczyzn z ciężkim uszkodzeniem nabłonka plemnikotwórczego stężenie testosteronu w tkance jądra bywa podwyższone, a komórki Leydiga tworzą większe skupiska [16]. Powiązanie działa też w drugą stronę: spermiogeneza zależy od zamiany histonów na protaminy, czyli od przebudowy chromatyny wspólnej z innymi typami komórek [3].
3. Fizjologia a patologia
3.1. Rola spermatogenezy w warunkach prawidłowych
W warunkach prawidłowych spermatogeneza dostarcza dojrzałych plemników w sposób ciągły przez całe dorosłe życie mężczyzny. Ciągłość ta wynika z równowagi między samoodnową spermatogonii macierzystych a ich różnicowaniem [5]. Dzięki niej codziennie powstają nowe komórki płciowe, a ich strumień nie zależy od pojedynczego cyklu, lecz od wielu cykli przesuniętych względem siebie wzdłuż kanalika [10].
Dobowa produkcja plemników zwykle maleje wraz z wiekiem, a straty w mejozie sprawiają, że część potencjalnych komórek nigdy nie dojrzewa [10]. Produkcji tej nie da się przewidzieć na podstawie wielkości jądra ani wieku mężczyzny [10]. Prawidłowy przebieg procesu zapewnia więc nie tyle stała liczba plemników, ile utrzymanie populacji komórek macierzystych i chronionego środowiska mejozy przez dziesięciolecia. Rola spermatogenezy w organizmie sprowadza się do dostarczenia męskiej gamety zdolnej do zapłodnienia, a każde zaburzenie procesu ujawnia się jako obniżenie liczby lub jakości plemników.
3.2. Nasilenie niedostateczne – następstwa
Niedostateczna spermatogeneza objawia się obniżoną liczbą plemników w nasieniu, aż do ich całkowitego braku. Całkowity brak plemników w nasieniu nazywa się azoospermią i dzieli się na dwie postacie o odmiennym mechanizmie [17]. W azoospermii zaporowej sama spermatogeneza przebiega, ale plemniki nie docierają do nasienia z powodu niedrożności dróg wyprowadzających. W azoospermii bezzaporowej problem leży w samym kanaliku, w którym proces jest zatrzymany lub nie zachodzi wcale [17].
Skutki obniżonej spermatogenezy dla płodności zależą od jej głębokości. Przy azoospermii bezzaporowej plemniki bywają pobierane chirurgicznie z tkanki jądra, co wytyczne uznają w tej grupie za metodę z wyboru [6]. W badaniu nasienia obniżoną liczbę plemników rozpoznaje się przez porównanie z wartościami odniesienia, jednak nie stanowią one granicy między mężczyzną płodnym a niepłodnym [18]. Wynik pojedynczej próbki bywa więc mylący, ponieważ liczba plemników zmienia się między próbkami tego samego mężczyzny w szerokim zakresie [19].
3.3. Udział spermatogenezy w chorobach
Spermatogeneza bywa zaburzona przez przyczyny genetyczne, hormonalne i miejscowe. Do najlepiej poznanych należą przyczyny genetyczne, ponieważ w spermatogenezie uczestniczy co najmniej 2000 genów, a anomalie chromosomów płciowych mają duży udział w ciężkim upośledzeniu procesu [20]. Znany czynnik genetyczny wykrywa się u około jednej czwartej mężczyzn z azoospermią, choć przyczyna niepłodności męskiej w ogóle pozostaje nieznana u około 40% chorych [20].
Zespół Klinefeltera, w którym mężczyzna ma dodatkowy chromosom X w kariotypie 47,XXY, jest najczęstszą genetyczną przyczyną azoospermii [21]. W jądrach dochodzi w nim do apoptozy komórek płciowych i szkliwienia kanalików nasiennych [21]. Mimo to w metaanalizie 48 badań plemniki udało się pobrać chirurgicznie u mediany 44% mężczyzn z tym zespołem [21]. Drugą grupą są mikrodelecje chromosomu Y, czyli utrata drobnych fragmentów w regionie czynnika azoospermii (ang. azoospermia factor, AZF). Badanie tych delecji metodą multipleksowej reakcji łańcuchowej polimerazy jest elementem diagnostyki azoospermii i ciężkiej oligozoospermii, czyli znacznie obniżonej liczby plemników [22]. Częściowa delecja typu gr/gr jest w niektórych populacjach czynnikiem ryzyka upośledzonej produkcji plemników oraz nowotworów zarodkowych jądra [22].
Wśród przyczyn miejscowych częsty jest żylak powrózka nasiennego, czyli poszerzenie splotu żylnego odprowadzającego krew z jądra. Związek żylaka ze spermatogenezą pozostaje nie w pełni wyjaśniony, a najbezpieczniejsza i najskuteczniejsza metoda leczenia pozostaje niejasna [23]. W przeglądzie Cochrane leczenie żylaka wobec zwłoki lub braku leczenia mogło zwiększać szansę ciąży (ryzyko względne 1,55, niska pewność danych), lecz dane o żywych urodzeniach były zbyt niepewne, by wyciągnąć wniosek [23]. Osobną grupę stanowi zaburzenie ostatniej fazy procesu, w którym wadliwa zamiana histonów na protaminy pozostawia plemniki z gorzej upakowanym i bardziej podatnym na uszkodzenia materiałem genetycznym [3].
3.4. Modyfikacja behawioralna i dietetyczna
Spermatogeneza reaguje na czynniki zależne od trybu życia, spośród których najlepiej udokumentowane są masa ciała, palenie tytoniu i przegrzewanie jąder. W metaanalizie 21 badań obejmujących 13 077 mężczyzn nadwaga i otyłość wiązały się z częstszym występowaniem obniżonej liczby plemników, a iloraz szans oligozoospermii lub azoospermii rósł od 1,11 przy nadwadze do 2,04 przy otyłości olbrzymiej [24]. Sama koncentracja plemników nie różniła się jednak istotnie między kategoriami masy ciała, a związek dotyczył ryzyka skrajnie obniżonej liczby plemników, najsilniejszego przy otyłości olbrzymiej [24].
Palenie tytoniu wiąże się z gorszymi parametrami nasienia. W metaanalizie 20 badań obejmujących 5865 mężczyzn palenie łączyło się z niższą koncentracją plemników o 9,72 mln/ml, niższym odsetkiem ruchliwych o 3,48 punktu i mniejszym odsetkiem prawidłowych form o 1,37 punktu [25]. Efekt był wyraźniejszy u mężczyzn niepłodnych oraz u palących umiarkowanie i silnie [25]. Przegrzewanie jąder, na przykład przez gorączkę, obniża koncentrację i ruchliwość plemników, a mechanizm tego wpływu opisano wyżej [15].
3.5. Wsparcie suplementacyjne
Kilka substancji z katalogu suplementów badano pod kątem wpływu na parametry nasienia, które są wymiernym efektem spermatogenezy. Działanie większości z nich tłumaczy się ograniczaniem stresu oksydacyjnego w kanaliku i w plemnikach, uznawanego za częsty mechanizm upośledzenia płodności [26]. Poniższe zestawienie podaje kierunek wpływu na parametry nasienia oraz siłę dowodu, przy czym kolumna kierunku odnosi się do liczby, ruchliwości i morfologii plemników jako miary procesu.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Koenzym Q10 | ograniczenie stresu oksydacyjnego nasienia, wzrost liczby i ruchliwości plemników | ↑ | A |
| Kwasy omega-3 | wzrost koncentracji i ruchliwości, wbudowanie kwasu dokozaheksaenowego w błony plemników | ↑ | A |
| Acetylo-L-karnityna | wzrost ruchliwości całkowitej i postępowej, obfita w płynie najądrza | ↑ | A |
| Selen | wzrost koncentracji, ruchliwości i odsetka prawidłowych form | ↑ | A |
| Cynk | niewielki wzrost koncentracji i ruchliwości w metaanalizie; brak wpływu na żywe urodzenia w badaniu skojarzonym z kwasem foliowym | ~ | A |
Dowody dla tych substancji pochodzą z metaanaliz badań z randomizacją, w których poprawę parametrów nasienia obserwowano dla selenu, cynku, kwasów omega-3, koenzymu Q10 i karnityn, lecz autorzy podkreślają małą liczebność badań i dużą niejednorodność wyników [32]. Wpływ na ciążę i żywe urodzenia pozostaje niepewny [26]. W dużym badaniu z randomizacją kwas foliowy z cynkiem podawany przez sześć miesięcy nie poprawił parametrów nasienia ani odsetka żywych urodzeń, a nawet nieznacznie zwiększył fragmentację DNA plemników [27]. Przegląd Cochrane 90 badań uznał ogólny poziom dowodów dla antyoksydantów za niski do bardzo niskiego, a po wyłączeniu badań o wysokim ryzyku błędu przewaga w żywych urodzeniach zanikała [26]. Wytyczne Europejskiego Towarzystwa Urologicznego z 2021 roku uznają dowody na powszechne stosowanie antyoksydantów w niepłodności męskiej za niewystarczające [6]. Kierunek działania oznaczono więc jako korzystny tam, gdzie metaanalizy zgodnie wykazują poprawę parametrów, i jako niepewny dla cynku, dla którego wyniki są rozbieżne.
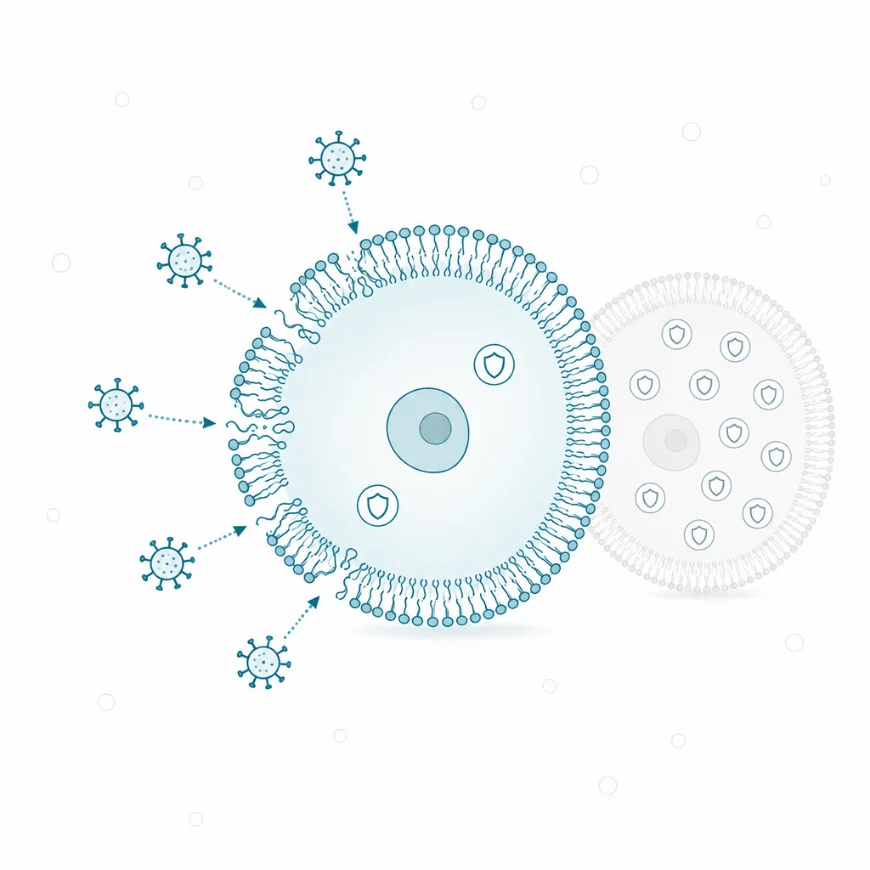
Błony plemników są bogate w wielonienasycone kwasy tłuszczowe, a cytoplazmy niemal w nich brak. Stąd wyjątkowa podatność na stres oksydacyjny.
4. Uwagi praktyczne
4.1. Jak to zbadać
Spermatogenezy nie ocenia się bezpośrednio, lecz przez badanie jej produktu, czyli nasienia. Podstawowym badaniem jest seminogram, w którym w próbce nasienia oznacza się objętość, koncentrację plemników, ich ruchliwość i odsetek prawidłowych form. Próbkę uzyskuje się po kilkudniowej wstrzemięźliwości, a wynik porównuje z rozkładem wyników u mężczyzn płodnych, opisanym w szóstej edycji podręcznika Światowej Organizacji Zdrowia z 2021 roku. Edycja ta odeszła od sztywnych progów referencyjnych na rzecz pojęcia granic decyzyjnych, nie podając jednak ich wartości [33].
Dolne wartości odniesienia wyznacza się jako piąty centyl rozkładu wyników u mężczyzn płodnych. W analizie ponad 3500 mężczyzn z dwunastu krajów, opracowanej z myślą o wartościach WHO z 2021 roku, piąty centyl wyniósł 16 mln/ml dla koncentracji, 42% dla ruchliwości całkowitej i 30% dla ruchliwości postępowej oraz 4% dla prawidłowych form [18]. Granice te nie oddzielają mężczyzn płodnych od niepłodnych, lecz wskazują zakres typowy dla populacji płodnej [18].
Interpretację utrudnia zmienność wyniku. Parametry nasienia, zwłaszcza koncentracja plemników, wahają się znacznie między próbkami tego samego mężczyzny, a współczynnik zmienności wewnątrzosobniczej koncentracji sięga około 45–54% [19]. Z tego powodu wiarygodna ocena wymaga co najmniej trzech próbek [19]. Osobnym badaniem jest ocena fragmentacji DNA plemników, która mierzy udział plemników z pękniętymi niciami DNA. Wartość tego badania w przewidywaniu wyników leczenia niepłodności pozostaje przedmiotem sporu [28].
4.2. Na co warto zwrócić uwagę
Doniesienia o powszechnym spadku koncentracji plemników w populacji są przedmiotem sporu. Metaanaliza z 2017 roku objęła 185 badań i 42 935 mężczyzn. Wykazała ona spadek koncentracji plemników o 52,4% w latach 1973–2011 wśród mężczyzn nieselekcjonowanych pod względem płodności z Ameryki Północnej, Europy, Australii i Nowej Zelandii, przy braku istotnego trendu na innych kontynentach [29]. Aktualizacja z 2023 roku, licząca 223 badania i 288 oszacowań, rozszerzyła obserwację na wszystkie kontynenty i podała spadek koncentracji o 51,6% wśród mężczyzn nieselekcjonowanych, z przyspieszeniem tempa po 2000 roku [30].
Autorzy obu metaanaliz podają, że wyniki zmieniały się tylko minimalnie w analizach wrażliwości [29], [30], lecz są one krytykowane co do metody i interpretacji. Autorzy hipotezy biozmienności wskazują, że liczba plemników zmienia się w szerokim zakresie, w dużej części niepatologicznym i typowym dla gatunku, a wnioski o spadku zależą od przyjętych założeń pomiarowych [31]. Krytyka ta ma charakter analizy założeń badań Levine’a i współautorów, a nie nowych pomiarów [31]. Trend liczony jako średnia populacyjna nie przekłada się więc wprost na płodność pojedynczego mężczyzny, ponieważ o niej decyduje wiele czynników poza samą koncentracją [31]. Rozbieżność między obiema stronami dotyczy nie tyle samych liczb, ile tego, czy średni spadek koncentracji oznacza pogorszenie zdrowia rozrodczego populacji.
Ostrożności wymaga też ocena fragmentacji DNA plemników jako wskaźnika rokowania. Wytyczne Europejskiego Towarzystwa Urologicznego opisują ją jako nowy biomarker, który może dostarczać informacji o wynikach technik wspomaganego rozrodu [6]. Przegląd parasolowy 22 przeglądów systematycznych, z których 18 miało krytycznie niską jakość, nie znalazł przekonujących dowodów na związek fragmentacji DNA z wynikami technik wspomaganego rozrodu [28]. Wynik badania nasienia opisuje więc stan spermatogenezy w przybliżeniu i wymaga powtórzenia oraz interpretacji w kontekście całej pary. Ocena płodności, dobór badań i decyzje dotyczące leczenia należą do kompetencji lekarza.