
1. Charakterystyka
1.1. Definicja i klasyfikacja
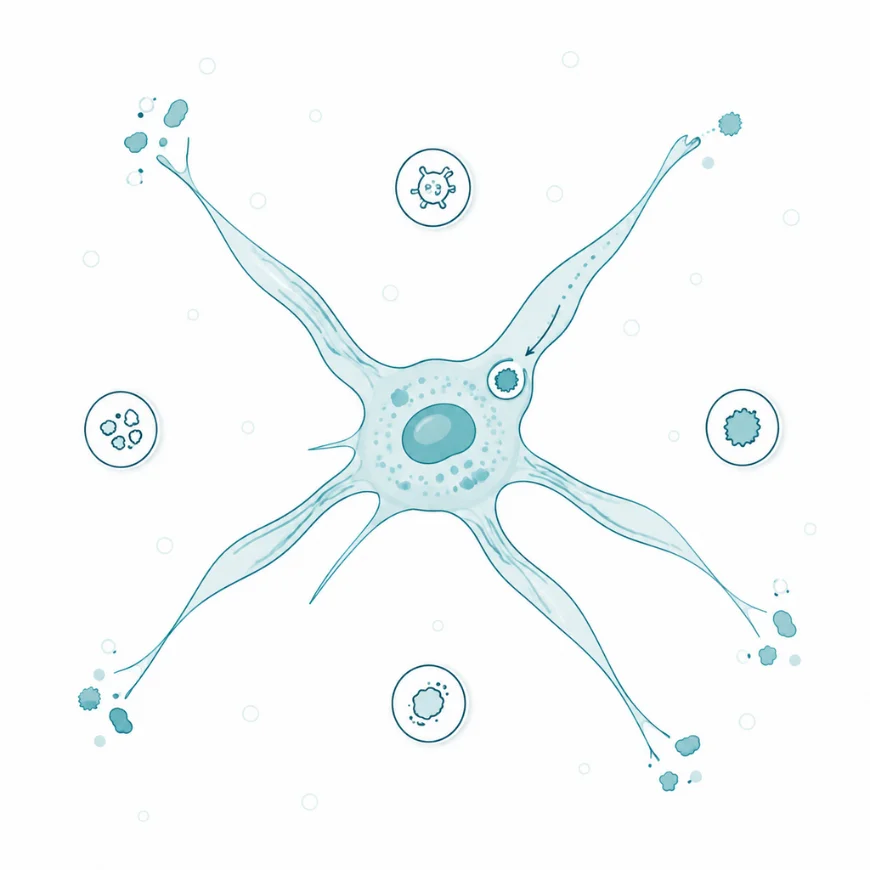
Komórki dendrytyczne to komórki prezentujące antygen, wywodzące się ze szpiku kostnego [4]. Należą do układu fagocytów jednojądrzastych, czyli rodziny obejmującej także monocyty i makrofagi [4]. Nazwę nadali im Steinman i Cohn ze względu na kształt. Komórka wysuwa i cofa długie wypustki cytoplazmatyczne, którymi przeszukuje otoczenie [1]. Czynnościowo stoi na styku dwóch odporności, ponieważ antygen rozpoznaje receptorami wrodzonymi, wspólnymi dla całej odpowiedzi nieswoistej. Wynik tego rozpoznania przekazuje natomiast limfocytom, czyli komórkom odporności swoistej [2].
Komórka dendrytyczna nie jest tożsama z komórką prezentującą antygen w ogóle, bo ta kategoria jest znacznie szersza. Peptydy w cząsteczkach głównego układu zgodności tkankowej przedstawiają również makrofagi i limfocyty B. Komórkę dendrytyczną wyodrębnia z tej grupy jedna cecha: zdolność pobudzenia limfocytu dziewiczego [2]. Limfocyt dziewiczy to taki, który nie zetknął się dotąd ze swoim antygenem. Makrofag przedstawia antygen limfocytowi już uczulonemu i podtrzymuje jego odpowiedź w tkance, jednak pierwszego pobudzenia w węźle chłonnym nie wywołuje [2]. Ta właśnie różnica była pierwszym powodem wyodrębnienia obu typów komórek i wraca do dziś w sporach o nazewnictwo [3].
Mylące bywa też samo określenie „dendrytyczny”. Komórki dendrytyczne pęcherzykowe w grudkach chłonnych mają podobny kształt i niemal tę samą nazwę, wywodzą się jednak z podścieliska, a nie ze szpiku. Nie przedstawiają też peptydów limfocytom T. Zamiast tego zatrzymują na powierzchni kompleksy antygenu z przeciwciałem i udostępniają je limfocytom wytwarzającym przeciwciała. Wspólna nazwa dwóch niespokrewnionych komórek jest pozostałością po opisie morfologicznym, który poprzedził ustalenie pochodzenia [3].
Zakres pojęcia obejmuje kilka odrębnych populacji o wspólnym zadaniu, nie jeden typ komórki. Należą do niego komórki dendrytyczne konwencjonalne dwóch linii oraz komórki plazmacytoidalne wytwarzające interferon. Trzecią grupę tworzą populacje powstające z monocytów w czasie zapalenia [2, 5]. Osobne hasło uzasadnia miejsce tej komórki w sterowaniu odpornością, ponieważ od jej stanu zależy, czy antygen zostanie potraktowany jako zagrożenie, czy jako element własny organizmu [16].
1.2. Morfologia i markery rozpoznawcze
Komórka dendrytyczna nie ma jednego markera, który wystarczyłby do jej rozpoznania. W preparacie zwraca uwagę duże, pofałdowane jądro oraz obfita cytoplazma, rozciągnięta w wypustki różnej długości i szerokości [1]. Rozpoznanie w cytometrii przepływowej opiera się na zestawie cząsteczek powierzchniowych, nie na jednej z nich. Zestaw ten różni się przy tym między człowiekiem a myszą [4].
Wspólnym mianownikiem populacji konwencjonalnych jest wysoka gęstość cząsteczek zgodności tkankowej klasy II, której towarzyszy obecność integryny CD11c. Linia cDC1 nosi na powierzchni cząsteczkę CD141, lektynę CLEC9A i receptor chemokinowy XCR1, a jej rozwój zależy od czynników transkrypcyjnych IRF8 i BATF3 [6, 8]. Linia cDC2 wyróżnia się cząsteczką CD1c i białkiem SIRPα, a jej powstawanie zależy głównie od czynnika IRF4 [6]. Komórki plazmacytoidalne wyglądem przypominają komórkę wydzielniczą i nie mają wypustek, a rozpoznaje się je po cząsteczkach CD123 i CD303 [9].
| Populacja | Markery u człowieka | Czynnik rozwoju | Wyróżniająca czynność |
| cDC1 | CD141, CLEC9A, XCR1 | IRF8, BATF3 | prezentacja krzyżowa w cząsteczkach klasy I |
| cDC2 | CD1c, CD11c, SIRPα | IRF4 | pobudzanie limfocytów pomocniczych CD4 |
| plazmacytoidalne | CD123, CD303, niski CD11c | TCF4 | wytwarzanie interferonu typu I |
| monocytarne | CD14 obok CD1c i CD11c | powstają z monocytów w zapaleniu | prezentacja i wydzielanie cytokin w ognisku zapalnym |
Należy podkreślić, że nazwa populacji nie opisuje jednej cząsteczki, tylko współwystępowanie kilku. Sekwencjonowanie pojedynczych komórek krwi ludzkiej pokazało, że tak zbudowane definicje bywają niedokładne [5]. W obrębie populacji CD1c ukrywają się dwie różne komórki, a część komórek o cechach plazmacytoidalnych silnie pobudza limfocyty [5].
1.3. Pochodzenie i różnicowanie komórek
Komórki dendrytyczne powstają w szpiku kostnym z krwiotwórczej komórki macierzystej. Droga ta wiedzie przez szereg progenitorów o coraz węższej zdolności różnicowania. Wspólny progenitor makrofagów i komórek dendrytycznych rozdziela obie linie, dając początek albo monocytom, albo progenitorowi ograniczonemu do linii dendrytycznej [4]. Z tego ostatniego powstają prekursory krążące we krwi, które osiedlają się w tkankach i tam kończą dojrzewanie do postaci cDC1 albo cDC2 [2].
Całą tą drogą steruje ligand kinazy FLT3, białko wiążące się z receptorem FLT3 na progenitorach. Troje chorych z wrodzonym brakiem czynnego białka FLT3L miało ubogokomórkowy szpik [7]. We krwi stwierdzono u nich niskie liczby limfocytów B, monocytów i komórek dendrytycznych, a w skórze właściwej komórek dendrytycznych brakowało całkowicie [7]. Ten sam opis ujawnił granicę przenoszenia wyników z myszy na człowieka. U myszy brak tego czynnika upośledza także rozwój komórek NK, natomiast u opisanych chorych liczba tych komórek pozostała prawidłowa [7].
Osobną drogę mają komórki Langerhansa naskórka, które powstają przed urodzeniem z prekursorów pęcherzyka żółtkowego i wątroby płodowej. Potem utrzymują się w naskórku dzięki własnym podziałom, bez stałego uzupełniania ze szpiku [11]. Pochodzenie zbliża je zatem do makrofagów tkankowych, a czynność do komórek dendrytycznych [11]. Wynika stąd konsekwencja praktyczna: wyczerpanie puli szpikowej nie usuwa komórek Langerhansa ze skóry, podczas gdy komórki dendrytyczne skóry właściwej znikają wraz z nią [7, 11].
1.4. Rozmieszczenie i liczebność komórek
Komórki dendrytyczne są nieliczne, a zarazem obecne wszędzie tam, gdzie organizm styka się ze środowiskiem zewnętrznym. W mysiej śledzionie, węzłach chłonnych i kępkach Peyera stanowią od 0,1 do 1,6% wszystkich komórek jądrzastych [1]. Własne populacje o odmiennym składzie podtypów mieszczą skóra, błony śluzowe, wątroba oraz narządy limfatyczne [2].
Ośrodkowy układ nerwowy jest pod tym względem wyjątkiem wśród narządów unaczynionych. W zdrowym miąższu mózgu komórek dendrytycznych praktycznie nie ma, a nadzór pełni tam mikroglej [27]. Populacje o cechach komórek dendrytycznych gromadzą się natomiast na granicach narządu. Cytometria masowa wykryła je u myszy w oponach, w splocie naczyniówkowym i w przestrzeni okołonaczyniowej [28]. Takie rozmieszczenie ma następstwo dla przebiegu odpowiedzi: limfocyt wchodzący do ośrodkowego układu nerwowego napotyka komórkę prezentującą antygen jeszcze przed przekroczeniem bariery krew-mózg [27].
1.5. Rys historyczny
Przed rokiem 1973 przylegające do szkła komórki narządów limfatycznych traktowano jako jednorodną populację makrofagów. Steinman i Cohn opisali wśród nich komórkę o dużym, pofałdowanym jądrze i ruchliwych wypustkach [1]. Stanowiła ona od 0,1 do 1,6% komórek jądrzastych śledziony, węzła chłonnego i kępki Peyera [1]. Rozstrzygnięciem nie był jednak sam kształt, lecz zachowanie: komórka ta, odmiennie niż makrofag, nie prowadziła czynnej endocytozy, więc nie mieściła się w ówczesnej definicji fagocyta. Autorzy zaproponowali dla niej nazwę komórki dendrytycznej [1].
Kolejne rozstrzygnięcia dotyczyły już czynności. W 1999 roku myszy pozbawione receptora chemokinowego CCR7 okazały się niezdolne do przemieszczenia dojrzałych komórek dendrytycznych skóry do węzłów chłonnych, co wskazało wędrówkę jako warunek odpowiedzi [14]. W 2008 roku myszy z usuniętym czynnikiem BATF3 straciły jedną linię komórek dendrytycznych [8]. Wraz z nią zniknęła prezentacja krzyżowa i zdolność odrzucania nowotworów, co przypisało tę czynność konkretnej populacji [8]. Nagrodę Nobla z fizjologii lub medycyny w 2011 roku przyznano Ralphowi Steinmanowi za odkrycie komórek dendrytycznych [30].
2. Mechanizm działania komórek dendrytycznych
2.1. Receptory i odbierane sygnały
Komórka dendrytyczna nie rozpoznaje antygenu jako takiego, odbiera natomiast cząsteczki towarzyszące zagrożeniu: składniki ścian bakteryjnych, kwasy nukleinowe wirusów oraz materiał uwalniany z komórek ginących [2]. Służą do tego receptory rozpoznające wzorce, a należą do nich receptory Toll-podobne, lektyny typu C i receptory wewnątrzkomórkowe.
Rozmieszczenie tych receptorów w komórce decyduje o tym, co komórka wykryje. Receptory Toll-podobne osadzone w błonie powierzchniowej wiążą składniki powierzchni drobnoustrojów, na przykład lipopolisacharyd bakterii Gram-ujemnych. Receptory osadzone w błonie endosomu wiążą kwasy nukleinowe, a materiał ten trafia tam dopiero po pochłonięciu drobnoustroju albo zakażonej komórki [9]. Lektyny typu C rozpoznają z kolei cukry powierzchniowe, a lektyna CLEC9A linii cDC1 wiąże ponadto aktynę odsłoniętą w komórce martwej, przez co kieruje do prezentacji materiał z uszkodzonej tkanki [6].
Komórki plazmacytoidalne mają ten repertuar receptorowy zawężony i wyostrzony, bo ich receptory endosomalne wiążą jednoniciowy RNA i niemetylowany DNA. Szlak sygnałowy jest przy tym tak zbudowany, że sygnał utrzymuje się w endosomie dłużej niż w innych komórkach [10]. Stąd bierze się ich osobliwość ilościowa: pojedyncza komórka plazmacytoidalna wytwarza po pobudzeniu kilkaset razy więcej interferonu typu I niż jakakolwiek inna komórka krwi [9].
Drugim źródłem sygnałów jest sam układ odpornościowy: limfocyt pomocniczy, który rozpoznał antygen, wystawia białko CD40L i przez nie pobudza komórkę dendrytyczną do dalszego dojrzewania [12]. Sygnały hamujące płyną natomiast z otoczenia tkankowego i obejmują interleukinę 10, transformujący czynnik wzrostu beta oraz kalcytriol [16, 19]. Komórka sumuje te wejścia, a wypadkowa rozstrzyga o jej stanie czynnościowym.
2.2. Wydzielanie mediatorów
Komórka dendrytyczna wydziela cytokiny w składzie zależnym od tego, co rozpoznała. Wydzielanie to nie jest odruchem jednakowym dla każdego bodźca, lecz odpowiedzią dobraną do rodzaju zagrożenia, i to ono przenosi na limfocyt informację o charakterze drobnoustroju [2].
Rozpoznanie bakterii wewnątrzkomórkowych i wirusów prowadzi do wydzielania interleukiny 12. Cytokina ta kieruje limfocyty pomocnicze na tor przeciwzakaźny z udziałem interferonu gamma [2]. Rozpoznanie grzybów i bakterii zewnątrzkomórkowych nasila z kolei wydzielanie interleukiny 23 oraz interleukiny 6, a obie wspierają tor zapalny z udziałem interleukiny 17 [2]. Kwasy nukleinowe rozpoznane w endosomie komórki plazmacytoidalnej uruchamiają wytwarzanie interferonów typu I. Cytokiny te hamują namnażanie wirusa w komórkach sąsiednich [10].
Repertuar obejmuje także cytokiny wyciszające, a interleukina 10 i transformujący czynnik wzrostu beta pochodzą z komórek o profilu tolerogennym. Hamują one dojrzewanie sąsiednich komórek prezentujących antygen i sprzyjają powstawaniu limfocytów regulatorowych [17]. Osobną grupą są chemokiny, w tym CCL17 i CCL22, którymi dojrzała komórka przyciąga limfocyty do siebie w obrębie węzła chłonnego [2]. Skład wydzieliny zamienia zatem rozpoznanie drobnoustroju w konkretny typ odpowiedzi.
2.3. Stany czynnościowe i fenotypy
Komórka dendrytyczna zmienia swoje właściwości w sposób odwracalny, a to przełączanie, nie sama obecność komórki, rozstrzyga o losie odpowiedzi. Piśmiennictwo opisuje zwykle trzy stany: niedojrzały, dojrzały i tolerogenny, choć podział ten jest pewnym uproszczeniem. Granice między stanami są płynne, a wiele obserwacji pochodzi z komórek hodowanych z monocytów, nie z komórek tkankowych [2].
Komórka niedojrzała przebywa w tkance obwodowej i pochłania materiał w dużych ilościach. Ma przy tym mało cząsteczek zgodności tkankowej na powierzchni i znikomą ekspresję białek kostymulujących CD80 i CD86 [12]. Nie ma też receptora CCR7, więc pozostaje w miejscu. Skutkiem jest to, że antygen własny, pobrany z komórek obumierających w prawidłowym obrocie tkanki, zostaje przedstawiony limfocytowi bez drugiego sygnału. Limfocyt taki ginie albo przechodzi w stan niewrażliwości [15].
Dojrzewanie zaczyna się od pobudzenia receptora rozpoznającego wzorce albo białka CD40. Komórka przestawia wtedy całą swoją gospodarkę: hamuje pobieranie nowego materiału i przenosi nagromadzone cząsteczki klasy II z przedziałów wewnętrznych na powierzchnię. Podnosi ekspresję białek CD80 i CD86 oraz włącza gen receptora CCR7 [12]. Dzięki temu receptorowi staje się wrażliwa na chemokiny CCL19 i CCL21 wytwarzane w naczyniach chłonnych i w węźle, więc opuszcza tkankę [14]. Stan końcowy jest odwrotnością wyjściowego: komórka słabo pobiera antygen, za to skutecznie go przedstawia, a znajduje się przy tym tam, gdzie krążą limfocyty dziewicze.
Trzeci stan bywa mylony z niedojrzałością, choć jest od niej odrębny. Komórka tolerogenna może mieć wysoką ekspresję cząsteczek zgodności tkankowej, a mimo to wyciszać odpowiedź. Wydziela bowiem interleukinę 10, wystawia białka hamujące z rodziny PD-L oraz zużywa tryptofan przez enzym IDO [16, 17]. W guzach nowotworowych opisano ponadto stan przekraczający granice linii komórkowych. Dojrzała komórka gromadzi w nim jednocześnie cząsteczki kostymulujące i hamujące [6]. Dane o samym przełączaniu pochodzą w większości z hodowli i z modeli mysich. U człowieka opierają się głównie na komórkach wytworzonych z monocytów krwi obwodowej i na materiale z guzów operowanych [6, 17].
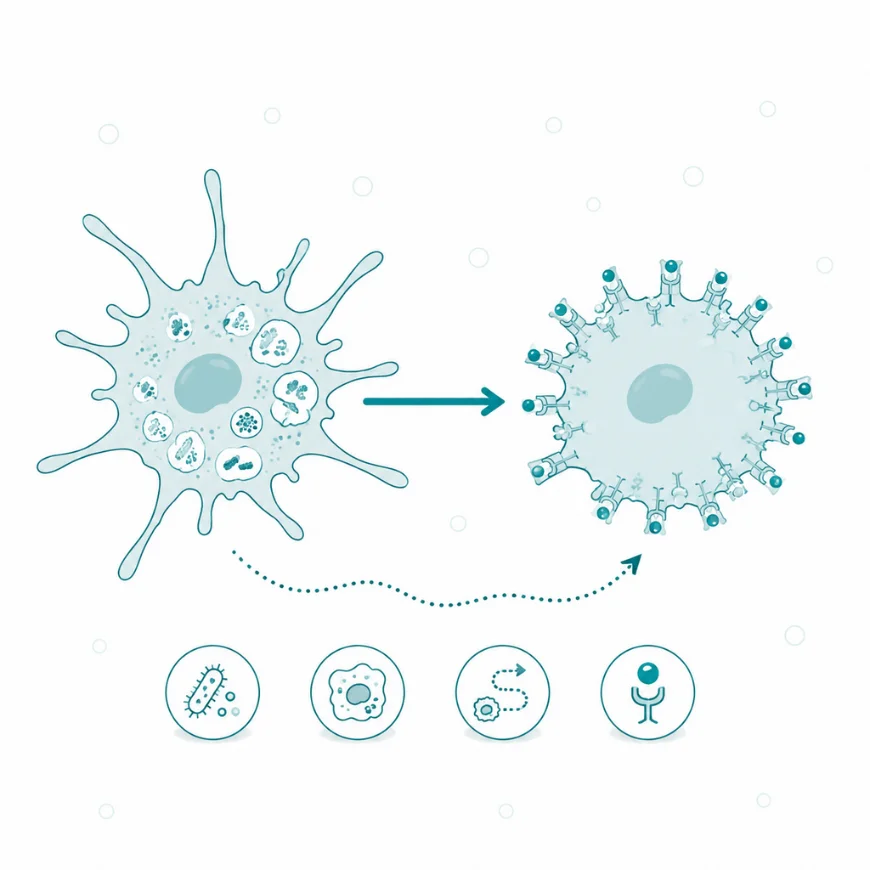
Podczas dojrzewania komórka dendrytyczna całkowicie zmienia swoją funkcję – z obwodowego detektora, który pochłania i analizuje cząsteczki z otoczenia, staje się wyspecjalizowanym instruktorem immunologicznym. W tym drugim stanie wygasza procesy żerne, zmienia swoją strukturę i koncentruje się wyłącznie na eksponowaniu zebranych antygenów, by móc skutecznie wyszkolić limfocyty.
2.4. Funkcje komórek dendrytycznych
2.4.1. Wychwyt i obróbka antygenu
Komórka dendrytyczna pobiera z otoczenia trzy rodzaje materiału: rozpuszczalne białka, całe drobnoustroje i szczątki komórek własnych, a służą temu trzy odrębne drogi. Pinocytoza pęcherzykami dużej objętości pozwala próbkować płyn tkankowy bez rozpoznawania czegokolwiek konkretnego. Fagocytoza obejmuje cząstki większe, endocytoza przez receptory wychwytuje zaś wybiórczo to, co receptor rozpoznał [12].
Pochłonięty materiał trafia do endosomu, który stopniowo zakwasza się i nabiera aktywności proteolitycznej. Obróbka w komórce dendrytycznej przebiega łagodniej niż w makrofagu, a odróżnienie to ma następstwo. Enzymy trawią białko do peptydów zdolnych związać się z cząsteczką zgodności tkankowej, zamiast rozłożyć je do wolnych aminokwasów [13]. Utrzymanie umiarkowanego zakwaszenia endosomu jest jednym z mechanizmów zachowujących antygen w postaci przydatnej do prezentacji [13].
Sam wychwyt zmienia się wraz ze stanem komórki: niedojrzała pobiera materiał intensywnie, dojrzała niemal przestaje. Antygen zabrany z tkanki pozostaje w niej dzięki temu jako zapis chwili, w której nastąpiło pobudzenie [12]. Komórka przybywająca do węzła chłonnego przedstawia więc peptydy z miejsca zakażenia, a nie z tkanek mijanych po drodze.
2.4.2. Prezentacja w cząsteczkach zgodności tkankowej
Prezentacja polega na wystawieniu peptydu w rowku cząsteczki zgodności tkankowej. Odczytuje go tam receptor limfocytu T. Dwie klasy tych cząsteczek obsługują dwa źródła materiału. Klasa II wiąże peptydy powstałe w endosomie z białek pobranych z zewnątrz i przedstawia je limfocytom CD4. Klasa I wiąże peptydy powstałe w cytozolu z białek własnych komórki i przedstawia je limfocytom CD8 [12].
Komórka dendrytyczna łamie ten podział, a złamanie to jest podstawą odporności przeciwwirusowej i przeciwnowotworowej. Antygen pobrany z komórki zakażonej albo nowotworowej potrafi trafić do cząsteczek klasy I. Zjawisko to nosi nazwę prezentacji krzyżowej, a opisano dla niej trzy drogi [13]. W drodze wakuolarnej peptyd powstaje i wiąże się z cząsteczką klasy I wewnątrz fagosomu. W dwóch pozostałych białko przedostaje się z fagosomu do cytozolu, gdzie tnie je proteasom. Powstałe peptydy wracają wtedy do siateczki śródplazmatycznej albo do samego fagosomu [13].
Znaczenie tej czynności pokazał model mysi, w którym usunięcie czynnika BATF3 pozbawiło zwierzęta linii komórek zdolnych do prezentacji krzyżowej [8]. Wraz z nią zniknęła odpowiedź cytotoksyczna na wirusa i zdolność odrzucania nowotworu [8]. Danych o równie ostrym wyłączeniu tej drogi u człowieka brakuje.
Sam peptyd w rowku nie wystarcza do pobudzenia limfocytu. Drugim sygnałem jest związanie białek CD80 albo CD86 komórki dendrytycznej z cząsteczką CD28 limfocytu [12]. Brak drugiego sygnału przy obecnym pierwszym daje wynik przeciwny do pobudzenia, bo limfocyt staje się wtedy niewrażliwy albo ginie [15]. Stąd bierze się rozstrzygająca rola stanu dojrzałości: ten sam peptyd przedstawiony przez komórkę niedojrzałą i przez dojrzałą kończy się przeciwnymi losami limfocytu.
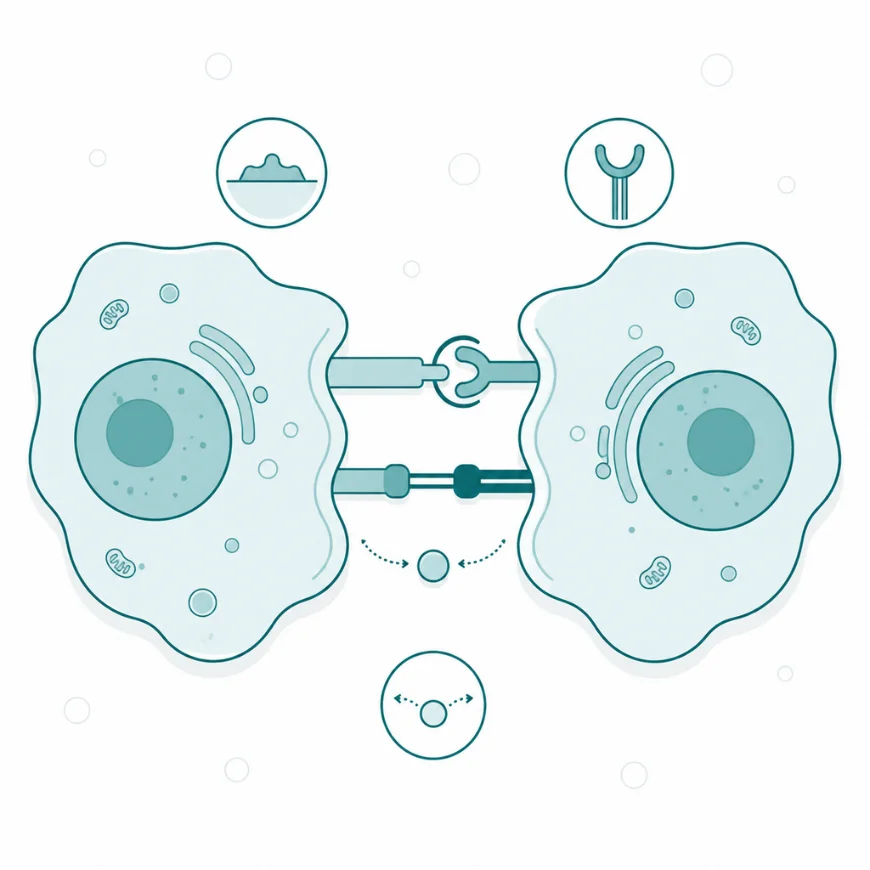
Limfocyt potrzebuje od komórki dendrytycznej trzech sygnałów naraz: rozpoznania fragmentu, kostymulacji i cytokiny. Brak któregokolwiek zmienia efekt całego procesu.
2.4.3. Kierowanie różnicowaniem limfocytów pomocniczych
Limfocyt pomocniczy pobudzony przez komórkę dendrytyczną nie jest komórką gotową, lecz komórką do ukierunkowania. Ukierunkowanie niesie trzeci sygnał, czyli skład cytokin wydzielanych w czasie kontaktu. Przekłada się ono wprost na rodzaj obrony, jaką organizm uruchomi [2].
Interleukina 12 kieruje limfocyt na tor pomocniczy typu 1, którego wyjściem jest interferon gamma, pobudzający makrofagi do zabijania drobnoustrojów wewnątrzkomórkowych. Interleukina 23 wraz z interleukiną 6 kieruje go na tor typu 17, mobilizujący granulocyty przeciw bakteriom zewnątrzkomórkowym i grzybom. Brak sygnału zapalnego przy obecności transformującego czynnika wzrostu beta kieruje limfocyt w stronę fenotypu regulatorowego [17]. Podział tych torów wyprowadzono z hodowli i modeli mysich, a u człowieka opiera się głównie na obserwacjach niedoborów odporności i chorób zapalnych [2].
Konsekwencja tego mechanizmu jest asymetryczna: ten sam antygen może wywołać odpowiedź ochronną albo szkodliwą zależnie od okoliczności pobrania. O kierunku rozstrzyga bowiem kontekst rozpoznany przez komórkę dendrytyczną, a nie sam peptyd [2].
2.4.4. Utrzymanie tolerancji obwodowej
Tolerancja obwodowa jest równorzędnym zadaniem komórki dendrytycznej, nie dodatkiem do pobudzania. Grasica usuwa limfocyty rozpoznające antygeny własne, które są w niej wytwarzane, wiele białek organizmu w grasicy jednak nie występuje. Limfocyty rozpoznające te białka wychodzą na obwód i tam wymagają wyciszenia [15].
Mechanizm opiera się na stałym krążeniu komórek niedojrzałych, z których każda pochłania szczątki komórek obumierających w prawidłowym obrocie tkanek. Wędruje następnie do węzła chłonnego i przedstawia uzyskane peptydy bez sygnału kostymulującego. Limfocyt, który rozpozna swój antygen w takich warunkach, ginie przez apoptozę albo przechodzi w stan trwałej niewrażliwości [15]. Część limfocytów przekształca się przy tym w komórki regulatorowe, hamujące odpowiedź na ten sam antygen [16]. W doświadczeniach kierujących antygen wybiórczo do komórek w stanie spoczynkowym wynikiem było właśnie wyciszenie, a dodanie bodźca dojrzewającego odwracało je na pobudzenie [15].
Tolerancja nie kończy się na stanie spoczynkowym. Komórki o profilu tolerogennym powstają również pod wpływem sygnałów z otoczenia, w tym interleukiny 10, i zachowują tę właściwość mimo dojrzewania [16, 17]. Zawodność tego mechanizmu widać od strony klinicznej: przedstawienie antygenu własnego razem z sygnałem kostymulującym, na przykład w przebiegu zakażenia, jest jedną z opisywanych dróg powstawania autoimmunizacji [18].
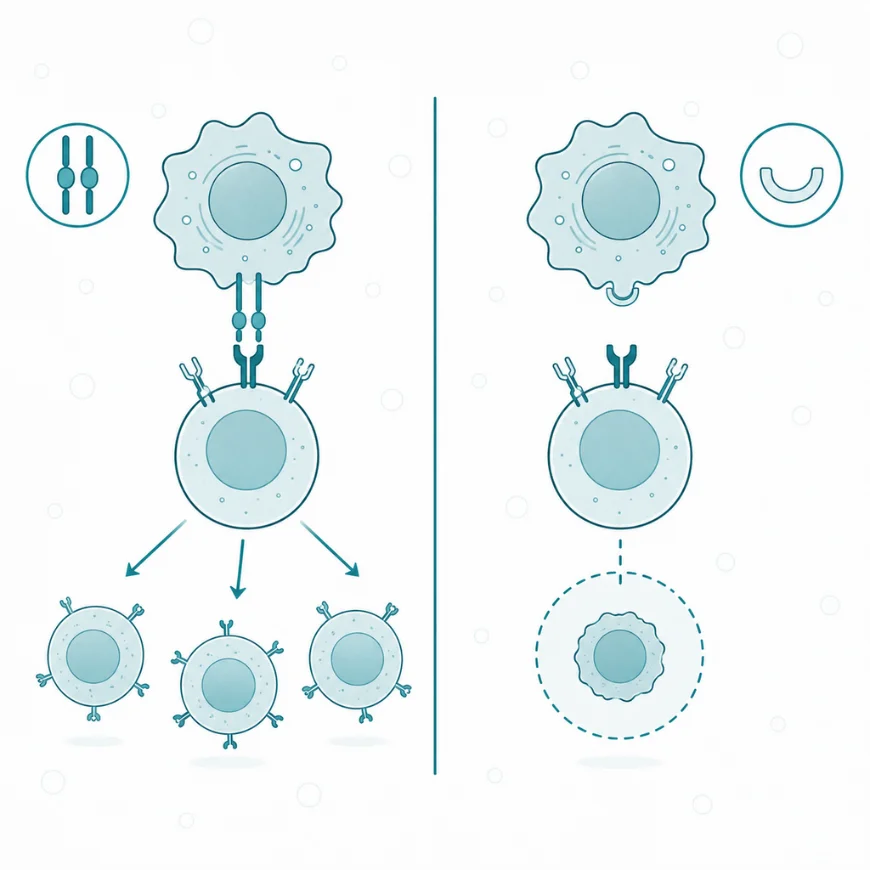
Bez sygnału kostymulacji ta sama interakcja prowadzi do wyciszenia i tolerancji zamiast do ataku.
2.5. Interakcje z innymi komórkami
Komórka dendrytyczna pracuje w sieci kontaktów, a nie w pojedynkę, a większość tych kontaktów zachodzi w węźle chłonnym. Sama droga do węzła zależy od komórek podścieliska, które wytwarzają chemokiny CCL19 i CCL21 wzdłuż naczyń chłonnych i w strefie przykorowej [14]. Bez receptora CCR7 komórka dendrytyczna nie trafia do tej strefy, a odpowiedź na antygen skórny nie powstaje [14].
W strefie przykorowej komórka kontaktuje się kolejno z wieloma limfocytami. Trwa to, dopóki nie napotka tego, którego receptor pasuje do przedstawianego peptydu. Kontakt z limfocytem T jest przy tym obustronny. Limfocyt otrzymuje trzy sygnały, a komórka dendrytyczna otrzymuje przez białko CD40 sygnał podtrzymujący jej dojrzałość i nasilający wydzielanie interleukiny 12 [12]. Pomoc dla limfocytów B jest natomiast pośrednia i biegnie przez limfocyty pomocnicze grudkowe, ukierunkowane wcześniej w strefie przykorowej [2].
Poza limfocytami T komórka dendrytyczna oddziałuje na komórki NK: pobudza je interleukinami 12 i 15, a otrzymuje w zamian interferon gamma wzmacniający jej własne dojrzewanie [2]. W tkance obwodowej wymienia sygnały z makrofagami i z komórkami nabłonka. W naskórku odpowiada jej wymiana z keratynocytami, które wydzielaniem cytokin współokreślają stan komórek Langerhansa [11]. Sieć ta sprawia, że pobudzenie komórki dendrytycznej nie jest zdarzeniem lokalnym, tylko sygnałem rozchodzącym się na kilka typów komórek naraz.
3. Dysfunkcja i choroby
3.1. Nadmierna aktywacja lub przeciążenie
Przewlekłe pobudzenie komórek dendrytycznych zmienia ich rolę z regulacyjnej na podtrzymującą zapalenie. Utrzymujące się dojrzewanie oznacza stałą obecność w węźle chłonnym komórek przedstawiających antygeny z sygnałem kostymulującym. Limfocyty rozpoznające te antygeny są wtedy pobudzane raz za razem, zamiast być wyciszane [18].
Najlepiej opisanym przykładem są komórki plazmacytoidalne w toczniu rumieniowatym układowym. Kompleksy złożone z przeciwciał i kwasów nukleinowych własnych komórek trafiają do endosomu. Pobudzają tam receptory Toll-podobne, mimo że materiał pochodzi z organizmu, a nie z drobnoustroju [9]. Powstający w nadmiarze interferon typu I podtrzymuje dojrzewanie kolejnych komórek prezentujących antygen. Pętla wzmacniająca chorobę zamyka się w ten sposób bez udziału czynnika zewnętrznego [9].
Nadmierne pobudzenie ma też postać ukierunkowaną, gdy przewaga sygnałów prowadzących limfocyty na tor typu 2 leży u podstaw reakcji alergicznych [18]. Komórka dendrytyczna błony śluzowej przedstawia wtedy alergen i kieruje odpowiedź przeciw białku obojętnemu dla organizmu [18]. Wspólnym mianownikiem tych sytuacji nie jest sama liczba komórek, lecz utrzymywanie stanu dojrzałego tam, gdzie prawidłowo go nie ma.
3.2. Utrata funkcji i ubytek
Ubytek komórek dendrytycznych objawia się inaczej niż ubytek granulocytów czy limfocytów, ponieważ dotyka zapoczątkowania odpowiedzi, a nie jej wykonania. Wrodzony brak czynnego ligandu FLT3 u trojga opisanych chorych dawał obraz złożony [7]. Szpik był ubogokomórkowy, a liczby monocytów, limfocytów B i komórek dendrytycznych we krwi niskie [7]. Komórek dendrytycznych skóry właściwej brakowało całkowicie, mimo że komórki Langerhansa pozostały zachowane [7]. Klinicznie odpowiadały temu nawracające zakażenia i rozległe brodawki skórne, czyli zmiany wywołane wirusem brodawczaka [7].
Drugą postacią ubytku jest niedobór miejscowy przy prawidłowej liczbie komórek w ustroju. W mysich modelach czerniaka guz zawierał niewiele komórek linii cDC1 [29]. Ich niedobór ograniczał skuteczność blokady punktu kontrolnego PD-L1, ponieważ bez nich limfocyty cytotoksyczne nie były pobudzane w węźle chłonnym [29]. Podanie ligandu FLT3 wraz z bodźcem dojrzewającym zwiększało liczbę tych komórek w guzie i poprawiało odpowiedź na leczenie [29]. Danych z badań u ludzi o podobnie bezpośrednim charakterze brakuje.
Trzecią sytuacją jest utrata czynności bez utraty liczebności, gdy komórki obecne w guzie bywają zatrzymane w stanie niedojrzałym albo przełączone na profil tolerogenny [6]. Sprawiają to czynniki wydzielane przez sam nowotwór, przez co antygeny nowotworowe są przedstawiane bez kostymulacji [6]. Skutek jest wówczas identyczny jak przy tolerancji obwodowej, tyle że skierowany przeciw interesowi chorego.
3.3. Udział komórek dendrytycznych w chorobach
Komórki dendrytyczne uczestniczą w chorobach na dwa przeciwstawne sposoby: bywają ogniwem, które uruchamia odpowiedź szkodliwą, albo ogniwem, którego zawodność pozwala uniknąć odpowiedzi potrzebnej. Oba układy widać w chorobach z autoagresji i w nowotworach.
W chorobach z autoagresji udział komórki dendrytycznej polega na przedstawieniu antygenu własnego w warunkach pobudzenia. W stwardnieniu rozsianym i w cukrzycy typu 1 komórki te przedstawiają peptydy mieliny albo wysp trzustkowych [18]. Przy sprawnej tolerancji obwodowej limfocyty rozpoznające te peptydy zostałyby wyciszone [18]. W mysim modelu cukrzycy typu 1 komórki dendrytyczne poddane działaniu kalcytriolu przybierały fenotyp tolerogenny [20]. Zachowywały przy tym zdolność wędrówki do węzła chłonnego, co przesuwało odpowiedź w stronę limfocytów regulatorowych [20]. Dane te pochodzą z modelu zwierzęcego, a odpowiedników u ludzi dotąd nie opisano.
W nowotworach zależność jest odwrotna, bo obecność licznych komórek linii cDC1 w guzie wiąże się z napływem limfocytów cytotoksycznych [6, 29]. Ich niedobór wiąże się natomiast z opornością na leczenie odblokowujące odpowiedź [29]. Niezależnie od typu nowotworu opisano w guzach stan dojrzały o właściwościach hamujących [6]. Komórka gromadzi w nim zarówno cząsteczki kostymulujące, jak i hamujące, przez co pobudzenie limfocytu jest niepełne [6]. To rozdwojenie ról tłumaczy, dlaczego ta sama komórka bywa celem leczenia hamującego w chorobach z autoagresji i celem leczenia pobudzającego w onkologii.
3.4. Wsparcie suplementacyjne
Stan czynnościowy komórek dendrytycznych zmieniają czynniki, na które organizm jest wystawiony niezależnie od suplementacji. Wiek przesuwa profil wydzielniczy w stronę zapalną, glikokortykosteroidy hamują dojrzewanie, a przewlekłe zapalenie utrzymuje pulę komórek pochodzenia monocytarnego [2, 18]. Odrębną grupę stanowią substancje z katalogu platformy, dla których opisano punkt uchwytu na samej komórce.
Zestawienie obejmuje substancje o udokumentowanym wpływie na dojrzewanie i fenotyp komórki dendrytycznej. Kolumna kierunku odnosi się do stanu czynnościowego komórki, nie do objawu klinicznego.
| Substancja | Mechanizm wpływu | Kierunek | Siła dowodu |
| Cholekalcyferol | Kalcytriol, czynna postać witaminy D, działa przez receptor VDR i utrzymuje niską ekspresję białek CD80 i CD86 oraz cząsteczek klasy II, nasilając wydzielanie interleukiny 10 [19, 20] | ↓ | C |
| Kurkuma | Kurkumina zatrzymuje dojrzewanie komórek w hodowli, a komórki tak zmienione rozszerzały u myszy pulę limfocytów regulatorowych [21] | ↓ | C |
| EGCG | Galusan epigallokatechiny obniża na ludzkich komórkach wytworzonych z monocytów ekspresję białek CD83, CD80, CD11c i cząsteczek klasy II [22] | ↓ | C |
| Resweratrol | Resweratrol hamuje dojrzewanie ludzkich komórek pobudzanych końcowymi produktami glikacji, blokując aktywację czynnika NF-κB [23] | ↓ | C |
Z zestawienia wynika wniosek jednoznaczny co do kierunku i ostrożny co do siły. Wszystkie cztery substancje hamują dojrzewanie komórek dendrytycznych, żadna jednak nie ma za sobą badania z randomizacją u ludzi, w którym punktem końcowym byłby stan tych komórek. Oznaczenie C przy każdym wierszu odpowiada danym z hodowli komórek ludzkich i z modeli zwierzęcych [19, 21, 22, 23]. Dawkowanie, łączenie i przeciwwskazania opisują karty substancji w dziale Suplementy.
4. Na co warto zwrócić uwagę
Nazewnictwo komórek dendrytycznych zmieniało się kilkakrotnie i utrudnia czytanie starszego piśmiennictwa. Podział na komórki mieloidalne i limfoidalne, powszechny w latach dziewięćdziesiątych, ustąpił podziałowi opartemu na pochodzeniu rozwojowym [3]. Obecne nazwy cDC1 i cDC2 powstały z porównania komórek mysich i ludzkich [4]. Opisują więc pary populacji odpowiadających sobie międzygatunkowo, a nie identycznych [4]. Sekwencjonowanie pojedynczych komórek krwi ludzkiej podzieliło dodatkowo populację CD1c [5] i wskazało komórki o cechach pośrednich, opisywane jako DC3 [6]. Nazwa z pracy sprzed dekady bywa zatem nietożsama z nazwą brzmiącą tak samo dzisiaj.
Rozróżnienie między komórką dendrytyczną a komórką prezentującą antygen bywa gubione w opracowaniach popularnych. Konsekwencja tego uproszczenia jest wymierna, bo peptydy przedstawiają również makrofagi i limfocyty B [2]. Bez wskazania na zdolność pobudzania limfocytu dziewiczego znika więc to, co czyni komórkę dendrytyczną punktem startu odporności swoistej [2]. Podobnie mylące jest utożsamianie stanu niedojrzałego z bezczynnością, skoro komórka w tym stanie wykonuje pracę wyciszającą odpowiedź na antygeny własne [15, 16].
Osobnego zaznaczenia wymaga pochodzenie danych, bo większość wiedzy o przełączaniu stanów czynnościowych pochodzi z modeli mysich oraz z hodowli ludzkich monocytów [2, 6]. Komórki uzyskane w takiej hodowli nie odpowiadają w pełni populacjom tkankowym [6]. Opis chorych z wrodzonym brakiem ligandu FLT3 pokazał, jak daleko sięgają różnice gatunkowe [7]. U myszy brak tego czynnika upośledza rozwój komórek NK, u ludzi zaś nie [7]. Ostrożność wobec ekstrapolacji jest tu regułą, nie zastrzeżeniem formalnym.
Komórek dendrytycznych nie oznacza się w rutynowej diagnostyce, a ich identyfikacja wymaga cytometrii przepływowej z zestawem kilku przeciwciał naraz. Wynik nie ma przy tym zakresów referencyjnych używanych w codziennej praktyce [4]. Oznaczenia tego rodzaju służą badaniom naukowym oraz rozpoznawaniu rzadkich niedoborów odporności i nowotworów tej linii [5].
Leczenie oparte na komórkach dendrytycznych rozwija się w dwóch przeciwnych kierunkach. W onkologii komórki pobrane od chorego wystawia się poza organizmem na antygen nowotworowy i podaje z powrotem, aby pobudzić limfocyty cytotoksyczne przeciw komórkom guza. Sipuleucel-T, jedyny taki preparat zarejestrowany na podstawie badania trzeciej fazy, wydłużył medianę przeżycia z 21,7 do 25,8 miesiąca [24]. Dotyczyło to raka gruczołu krokowego opornego na kastrację, przy współczynniku ryzyka zgonu 0,78, natomiast czasu do progresji choroby preparat nie zmienił [24]. W glejaku wielopostaciowym metaanaliza siedmiu badań z udziałem 3619 chorych dała współczynnik ryzyka zgonu 0,71 [25]. W raku wątrobowokomórkowym przegląd systematyczny dziewiętnastu badań wskazał wydłużenie mediany przeżycia przy łagodnych działaniach niepożądanych [26]. Są to korzyści rzeczywiste, lecz umiarkowane, i dotyczą przeżycia całkowitego bardziej niż kontroli choroby.
Kierunek przeciwny, czyli komórki tolerogenne w chorobach z autoagresji, jest na wcześniejszym etapie. Kalcytriol wywołuje ten fenotyp w hodowli komórek ludzkich, a uzyskane komórki zachowują go stabilnie [19]. Badania pierwszej fazy przeprowadzone u chorych na cukrzycę typu 1 i reumatoidalne zapalenie stawów oceniały bezpieczeństwo i wykonalność, nie skuteczność [17, 18]. Przeniesienie tych wyników na leczenie wymaga badań z grupą kontrolną, których dotąd nie ukończono. Treść hasła ma charakter edukacyjny i nie zastępuje porady lekarskiej.